H08 · Neural geometry from mixed sensorimotor selectivity for predictive sensorimotor control
Yiheng Zhang, Yun Chen, Tianwei Wang & He Cui (2024) eLife, 13, RP100064. doi:10.7554/eLife.100064
M1单细胞的方向调谐随目标运动改变,群体状态在低维投影中形成条件相关的倾斜环形。调谐模型和RNN可复现部分结构,但这尚不是输出零空间或真实脑内回路的因果证明。
核对依据:Zotero 条目 · 本地全文。本轮核对原文方法、关键结果、解释边界及所引主图;更新于2026-09-20。图注页码采用本地PDF文件页序,版本与未解决问题见正文及审查记录。
背景
单细胞方向调谐为理解运动皮层提供了直观框架,但在预测性拦截任务中,相同的伸手方向可以对应不同的目标速度与运动方向。若神经活动仅由即将执行的动作方向决定,这些条件应表现出相近的响应模式;若感觉背景仍参与运动控制,调谐曲线便可能随目标运动发生变化。这一问题进一步延伸至神经群体层面:单细胞内方向平移、增益和加性调制的混合,是否会涌现出具统计规律的整体几何结构?本文将经典单细胞调谐描述与低维群体动力学分析相联系,检验感觉与运动信息的交互在不同观察尺度下的具体表现。
研究采用包含延迟期与 GO 信号的触屏拦截任务,使动物在准备期后对静止或移动目标做出响应,并围绕运动时段分析神经放电。作者首先拟合多种单细胞调谐变化,随后考察伸手方向解码在跨越不同目标运动条件迁移时的表现,最后利用主成分分析刻画群体状态的几何排布。所观察到的环形流形及其随目标速度倾斜的特征,提出了一个比泛指“存在混合选择性”更明确的问题:哪些类型的单细胞调制足以构建出这种依赖于任务条件的群体几何?为此,论文构建了表征模型并训练了循环神经网络,检验相似的调谐调制与几何流形能否共同涌现。手部运动学匹配分析则用于排除此类几何仅源自实测手速差异的可能性。
这些结果将单细胞调制、跨条件读出与群体几何联系起来,但其解释边界需审慎划定。部分可视化基于跨会话拼接的伪群体,且前三个低维主成分仅覆盖总变异的一部分,不能将图中的投影散点理解为大量神经元同步记录下的真实单试次。主成分轴相互正交是线性分解的数学性质,并不意味着其中的特定方向就是对肌肉收缩毫无驱动作用的输出零空间。人工网络能够复现部分几何结构,展示的是一种充分性构造;该网络预先获得了未来会合点坐标,因而不能用来证明真实 M1 独立从即时视觉中解算出了该位置。模型内的单元消融亦仅反映该人工网络对特定节点的参数依赖。本文深化了对混合选择性与群体几何内在关联的认识,但关于真实下行运动输出映射以及顶叶—运动皮层环路的生理因果,仍需进一步的神经测量与直接干预验证。
研究思路
分析偏好方向平移、增益与加性调制,执行跨条件解码与主成分分析,再利用表征模型和任务训练的 RNN 检验哪些计算构造能复现相似的几何结构。
方法
三只恒河猴完成包含 400–800 ms 延迟期与 GO 信号的触屏拦截任务,区别于 H05/H06 中无延迟的自由启动设计。表 1 中猴 C、G、D 的每会话平均记录单元数分别约为 84.9、97.5 与 44.5。1162 为跨会话单元记录总数,不能默认均为长期跟踪去重后的不同独立细胞。
图 2 主要示例来自猴 C 的单会话记录,图 3A 则合并猴 C 六次会话的 480 个单元构建为伪群体;其中所谓的“单试次点”并非 480 个细胞同时记录的真实试次。前三个主成分仅解释约 34.9% 的总方差。表 1 与图 3 图注列出 7/4/4 会话,正文另称九个数据集;本篇保留原文的统计口径差异,不强行统一为九次记录。
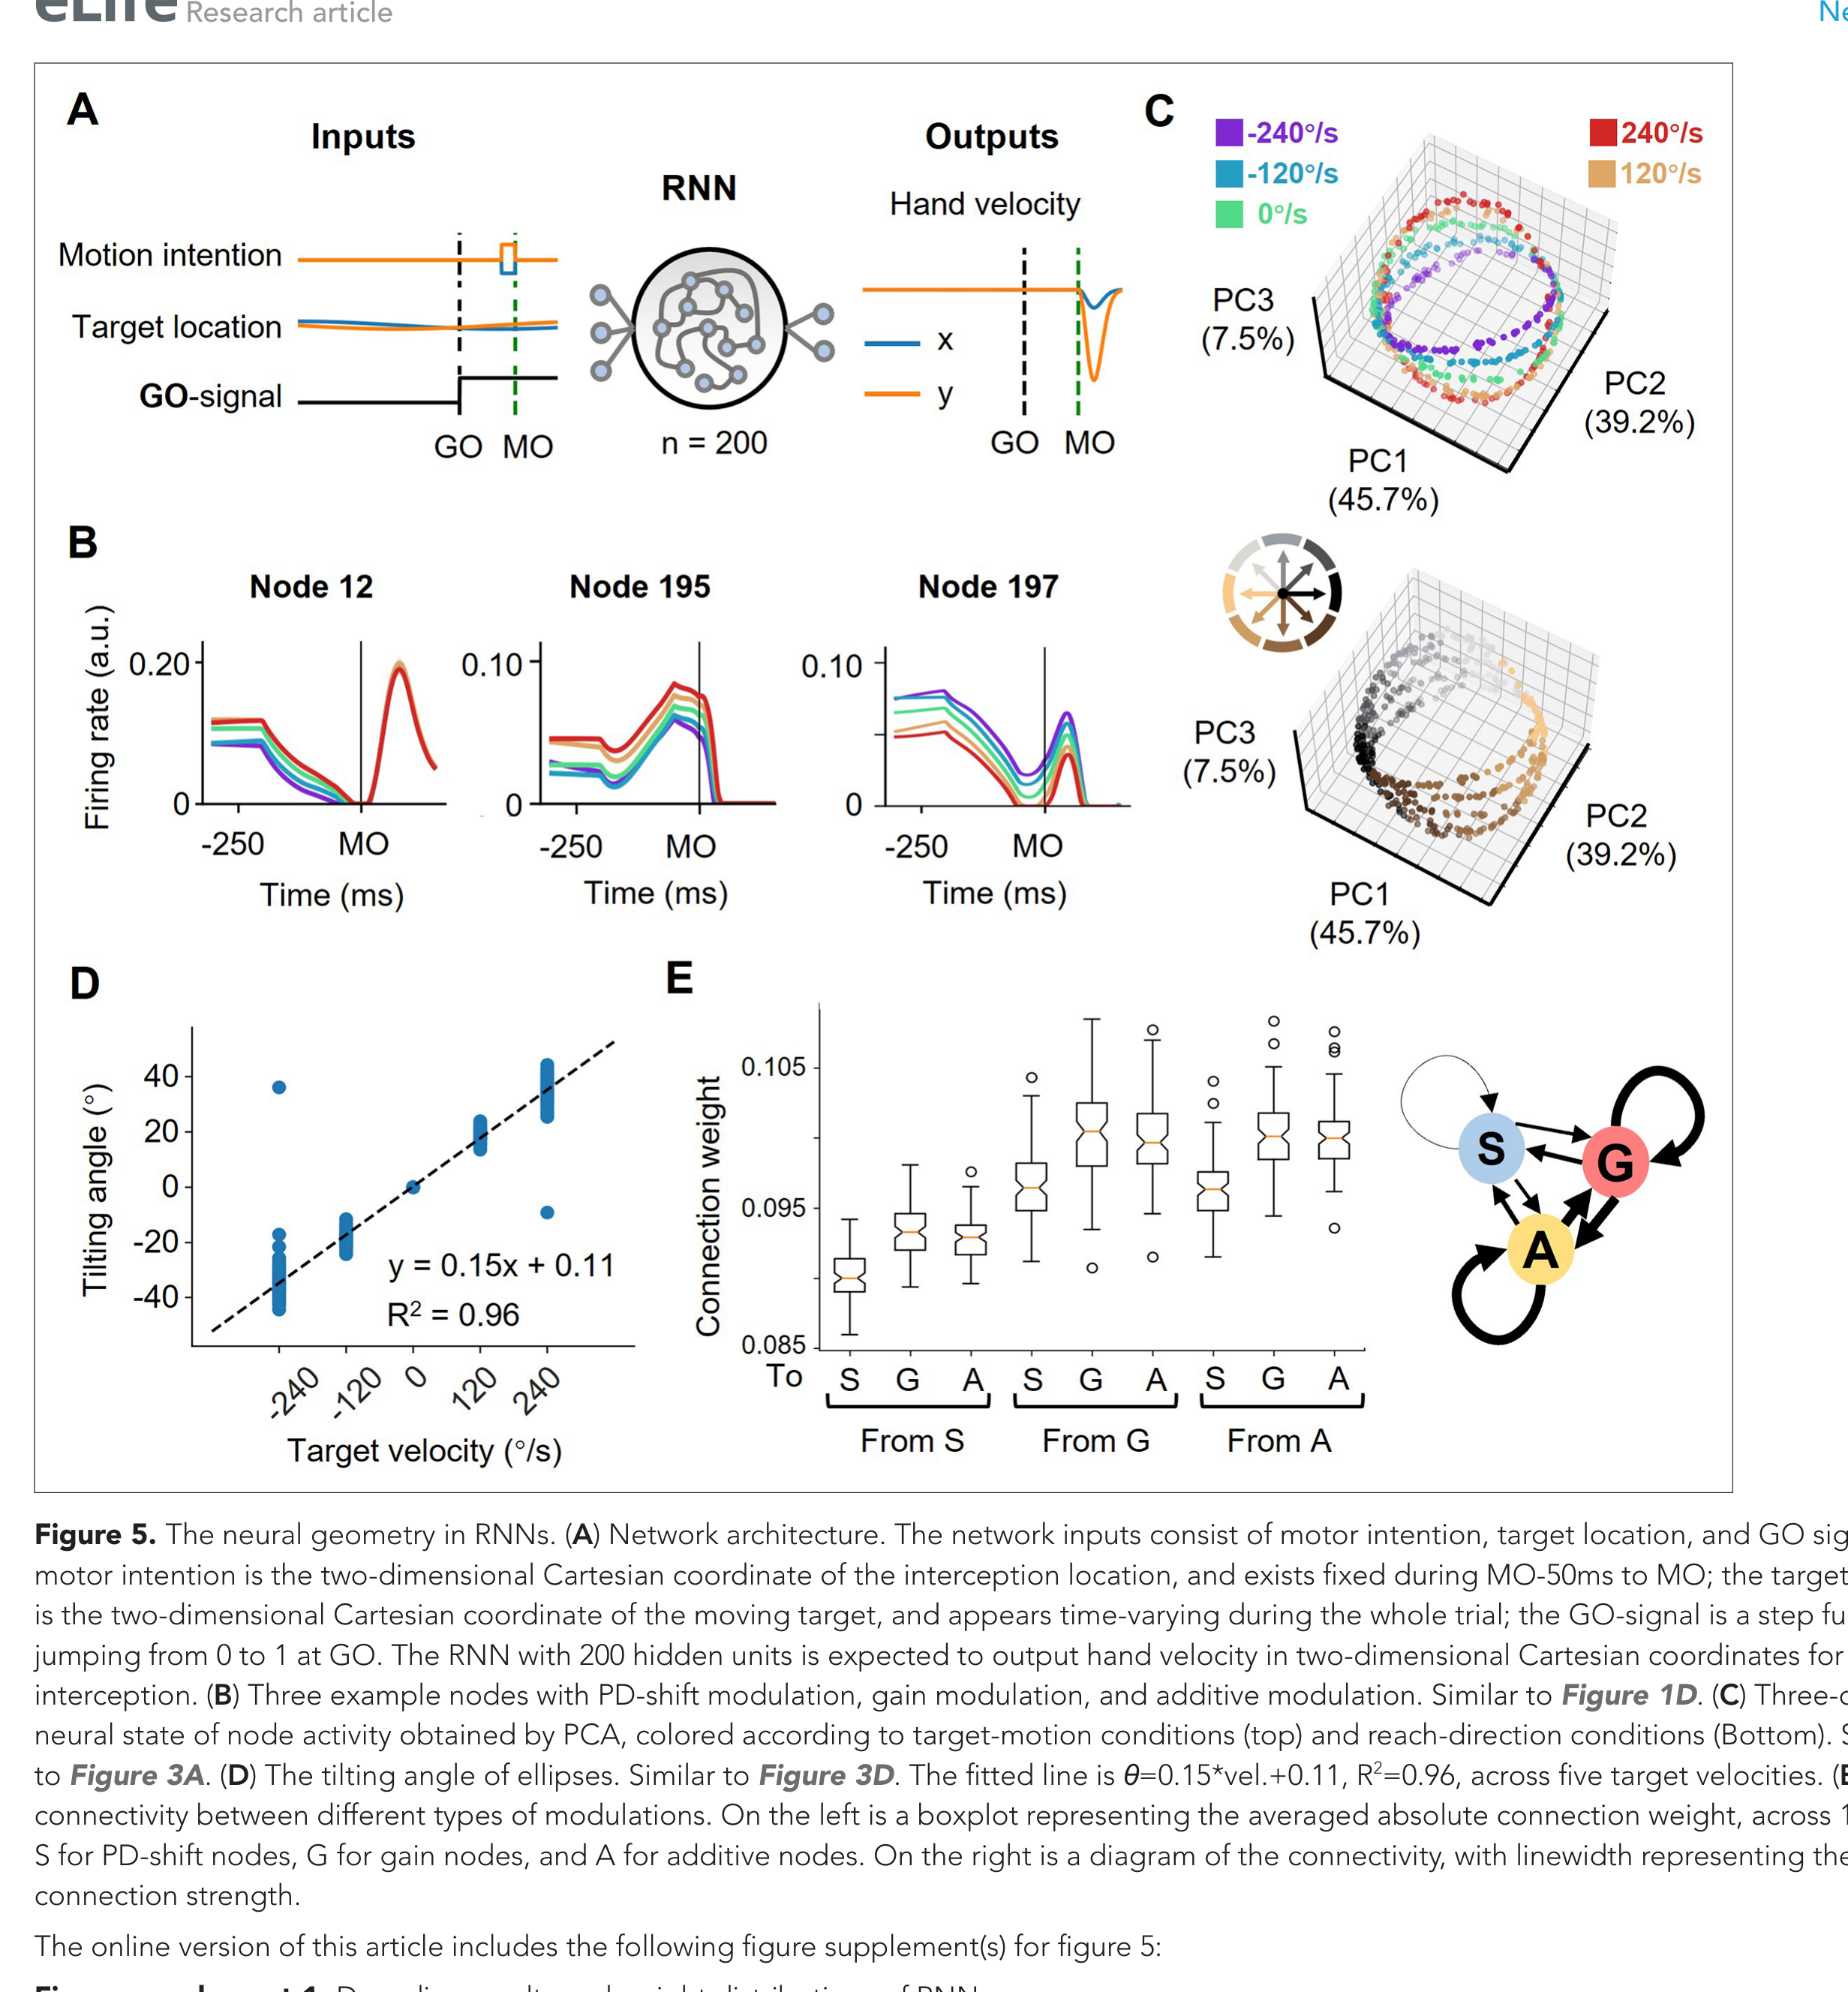
RNN 包含 200 个单元,输入显式提供预设的会合点坐标、当前目标位置和 GO 信号;训练目标为人工构造的钟形手部速度曲线,损失函数由速度误差与活动正则项构成,并非仅基于最终拦截误差训练。模型预先获得了未来会合点输入,故不能用来证明生物 M1 是独立从即时视觉中解算出该位置的。
主要结果
许多记录单元同时表现出多种调制模式,完整调谐模型的调整后 R² 约为 0.55,优于各项单因素模型;此为模型拟合优度对比,不能视为对未知数据的泛化预测,亦不能据此划分三类离散细胞类型。
跨目标运动方向迁移时,伸手解码准确率出现较明显的下降,表明群体信息存在非线性交互。主成分分析呈现按伸手方向排列、随目标速度规律倾斜的环形流形;在匹配手速分布后,主要几何结构依然保留,但因缺乏同步肌电与力学测量,尚未完全排除下行运动输出相关的潜在解释。
倾角是指相对于静态目标条件环面所测得的夹角,静态条件自身倾角定义为零。线性拟合中约 4° 的截距是统计回归截距,并非实测静态环存在“残留倾斜”。主成分轴正交属数学性质,不能据此证明 PC3 轴直接对应作用于肌肉的输出零空间。
增益调制模型与混合调谐模型均能生成相似的几何流形;RNN 亦涌现出相似的调谐调制与倾角变化。在模型内消融单元会损害任务表现或几何构型,这确证了训练所得网络对特定节点的参数依赖,但不能直接外推为猴脑中三类神经调制在生理上均具因果必要性。
逐图解读
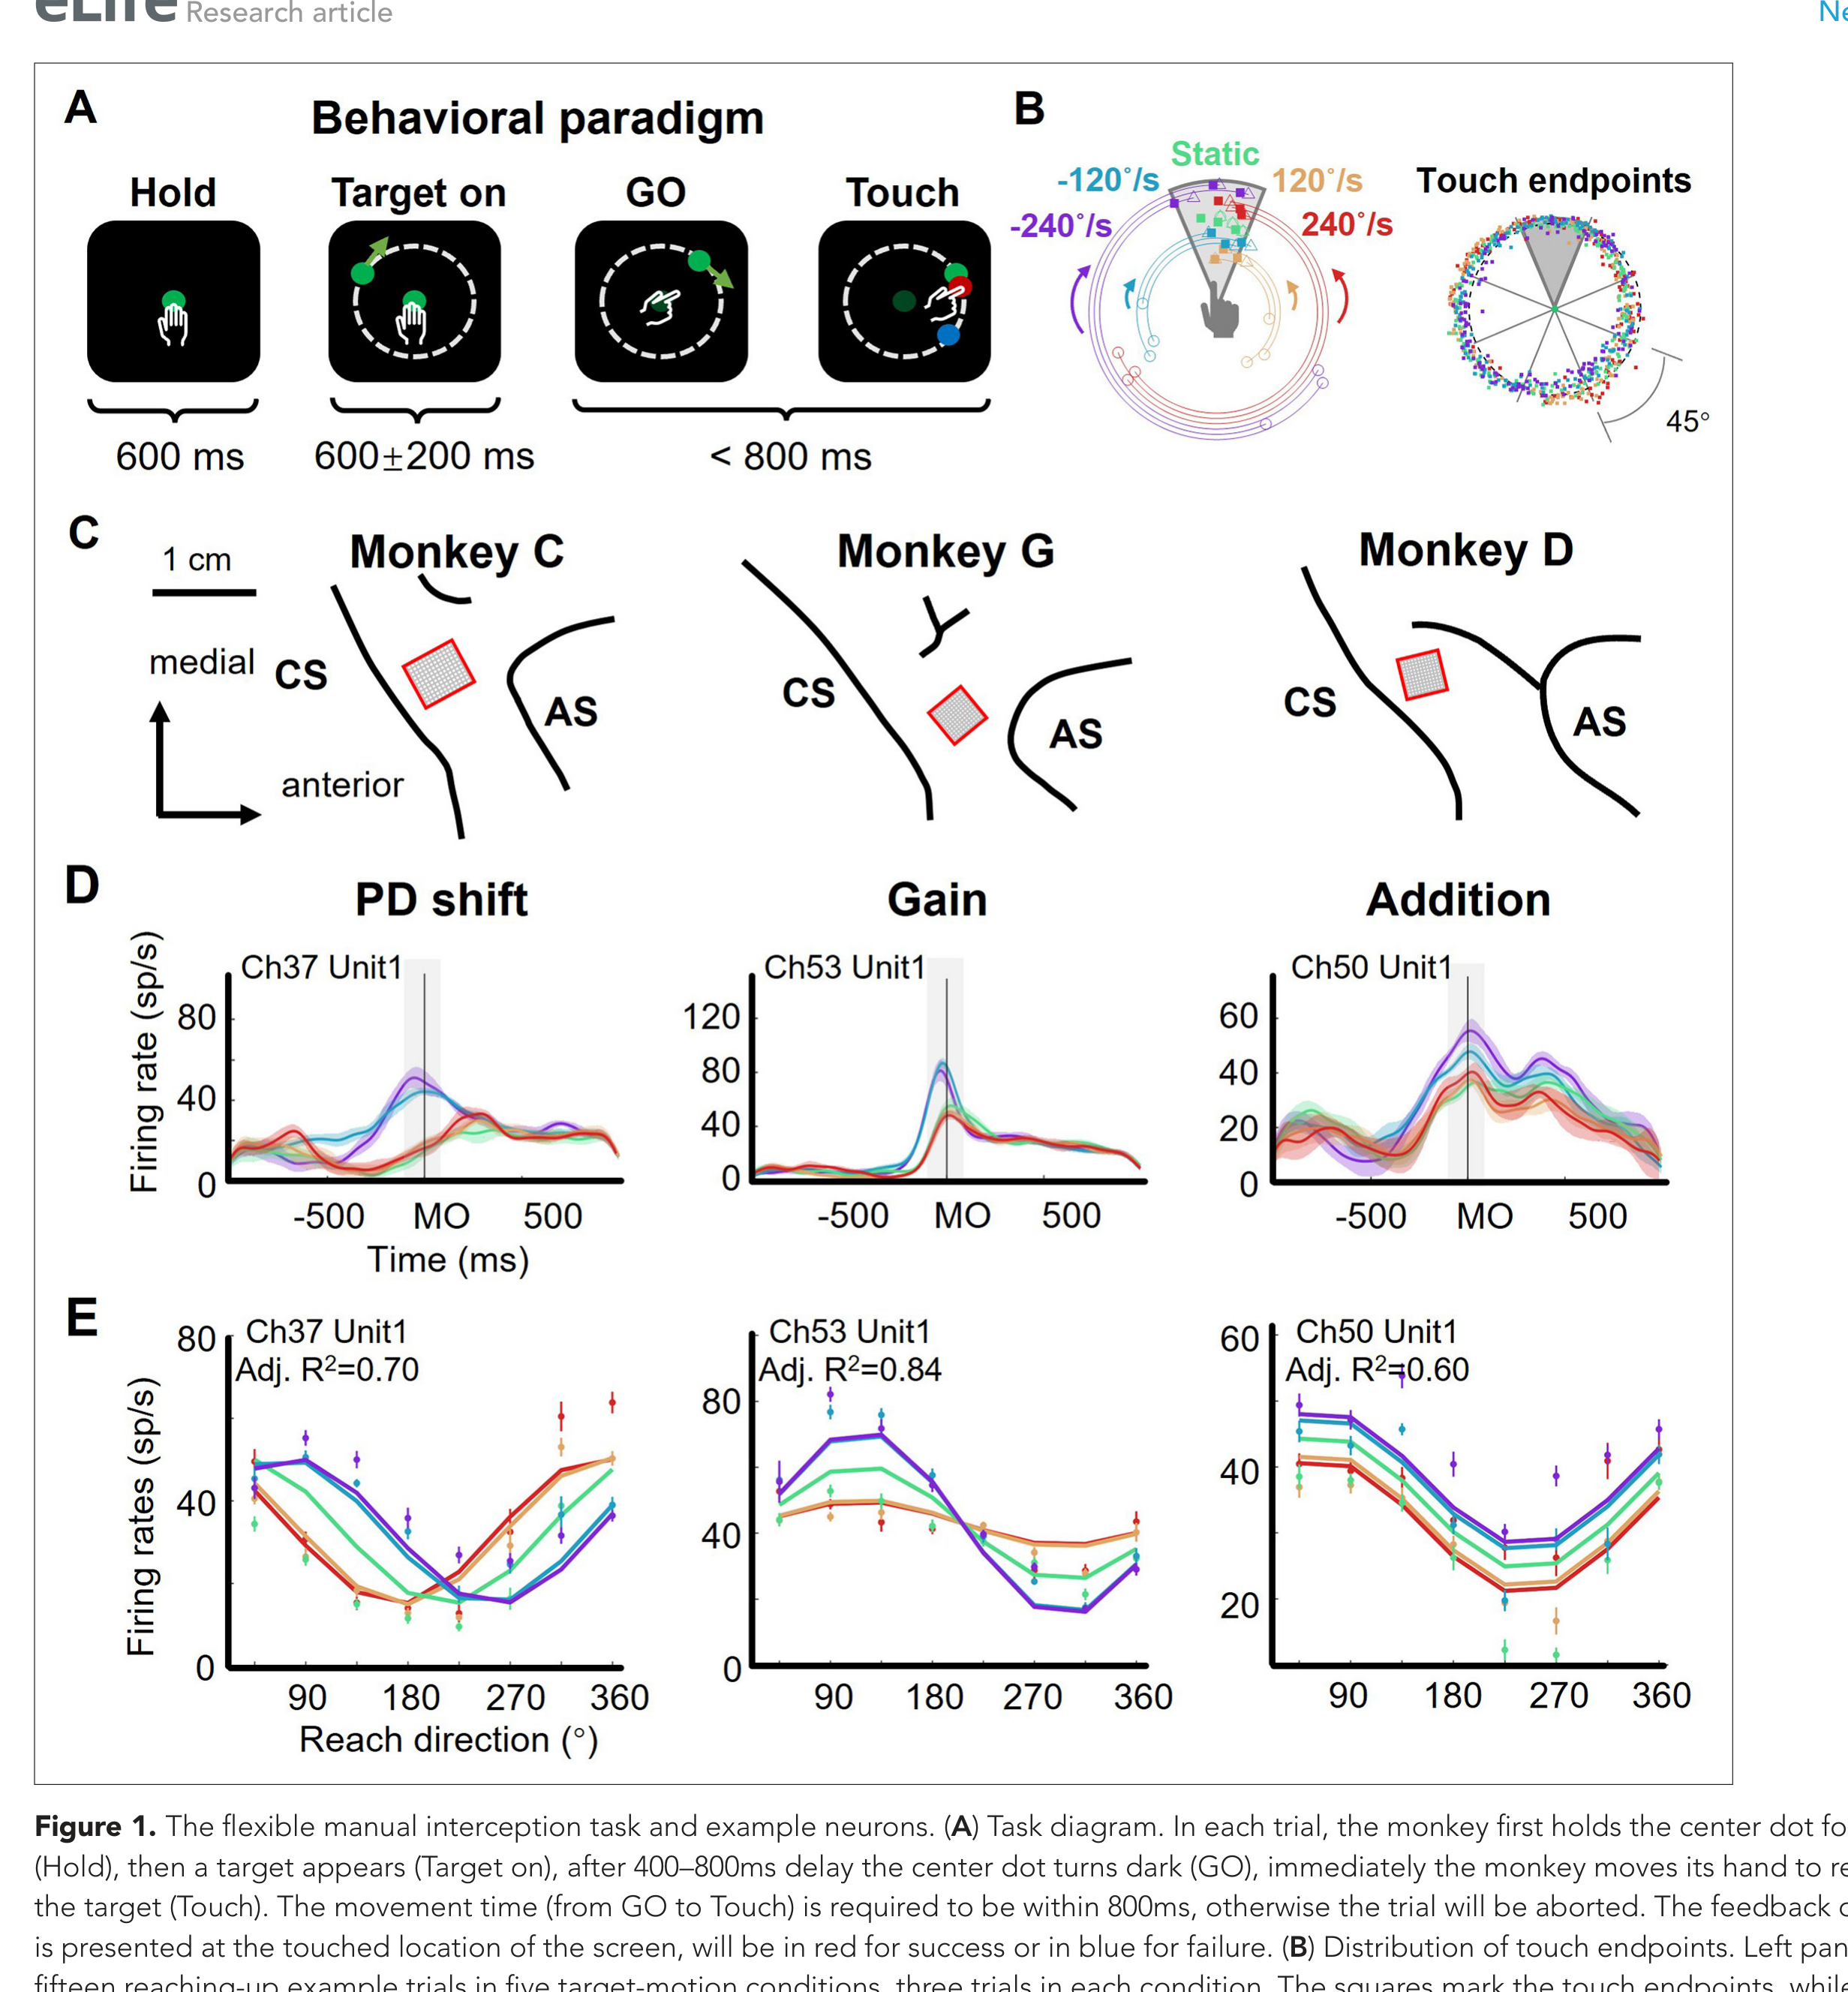 原文 Fig. 1 · PDF 第 3 页 · 原文图像 · 查看来源
图1 · 延迟拦截与单元调制。 三类示例不意味着类别互斥,实际神经元可混合。
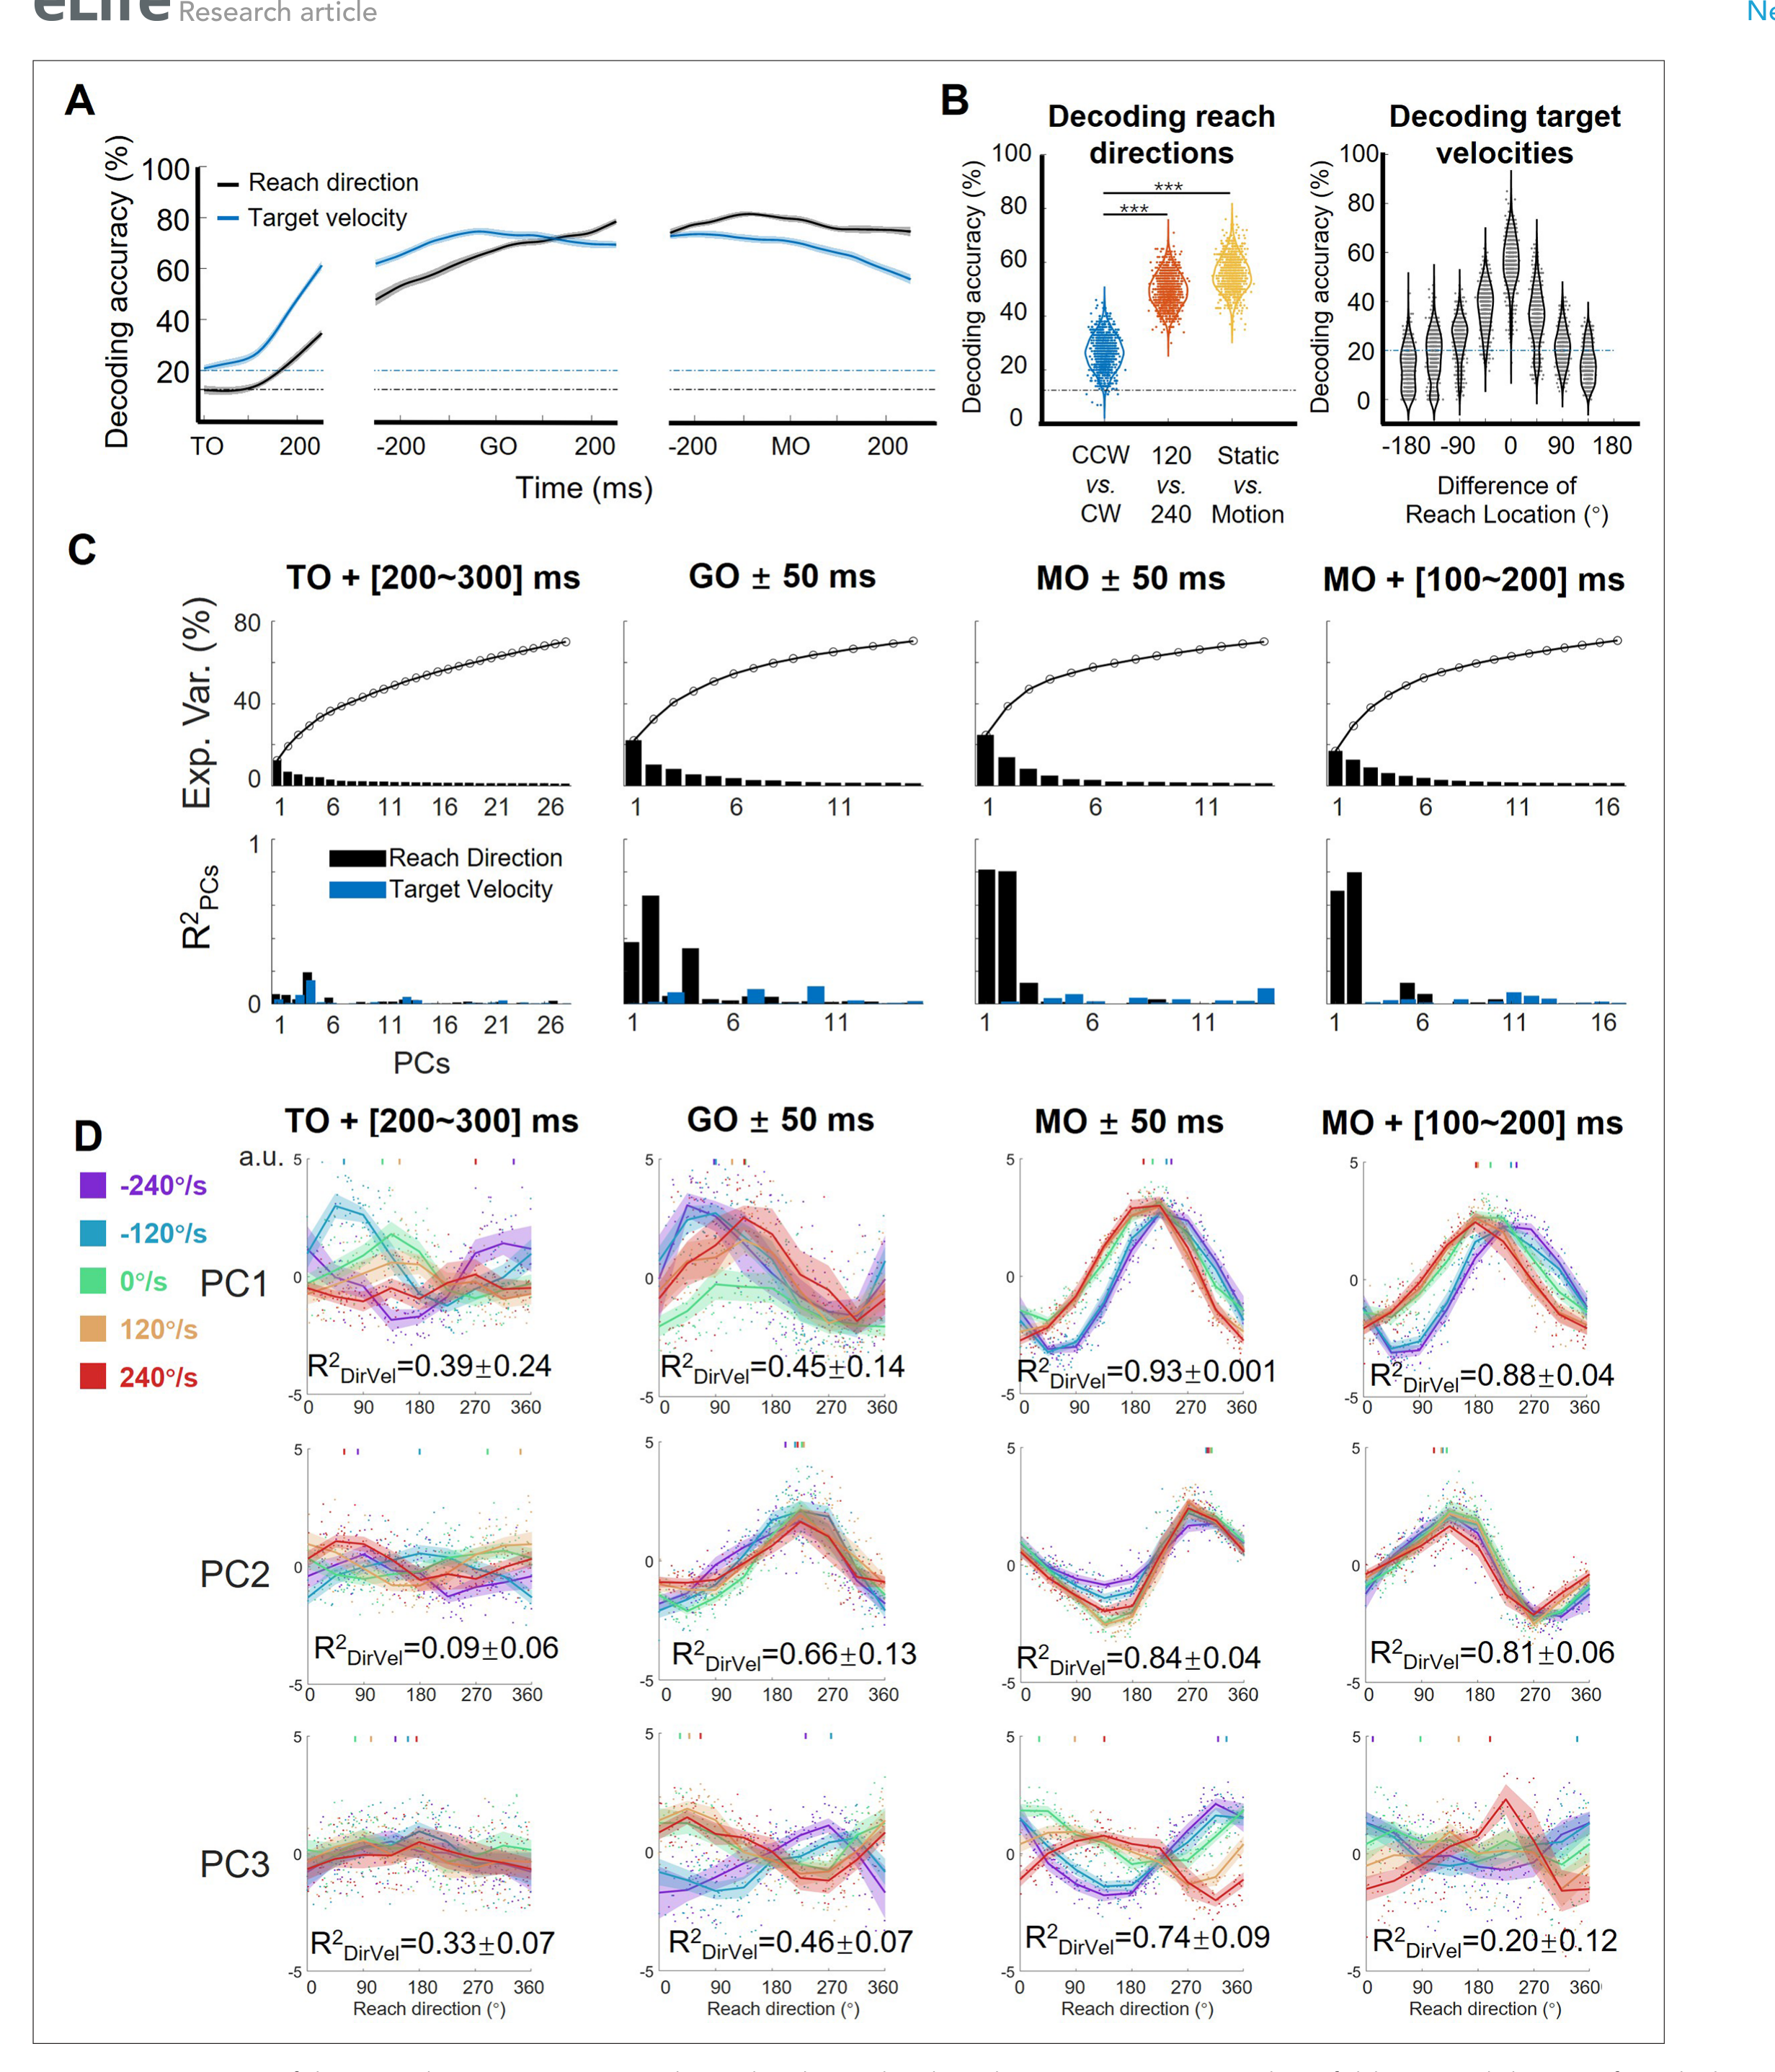 原文 Fig. 2 · PDF 第 6 页 · 原文图像 · 查看来源
图2 · 解码与主成分。 时间信息、伸手方向和目标运动都有贡献;跨条件准确率下降不等于信息消失。
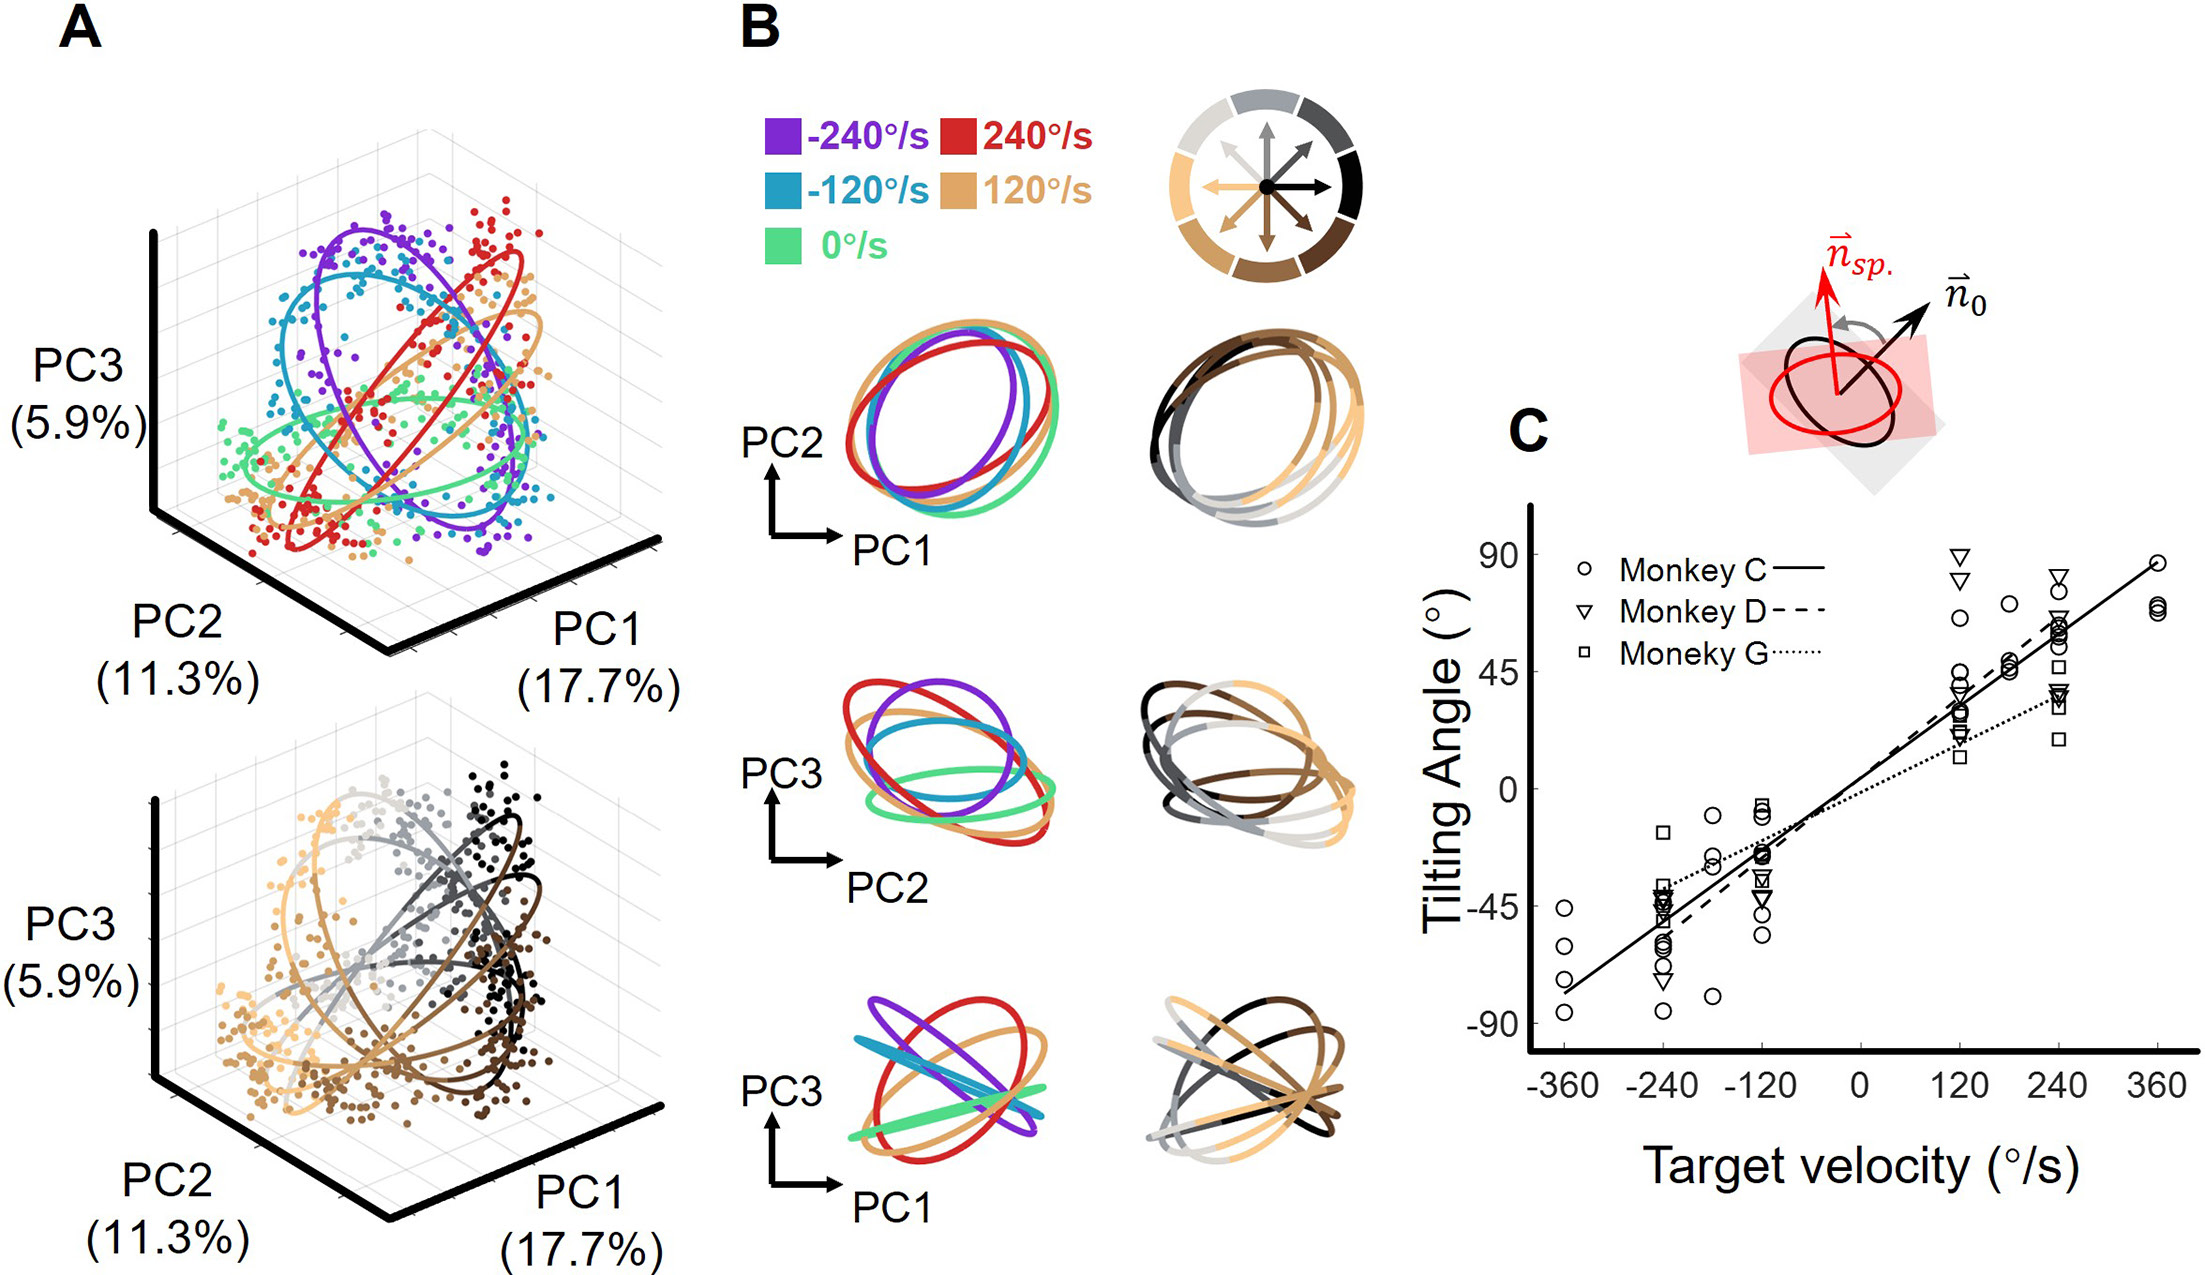 原文 Fig. 3 · PDF 第 7 页 · 原文图像 · 查看来源
图3 · 环形几何。 A来自跨会话伪群体,C的倾角以静态环为参照;不能将回归截距解释为静态倾斜。
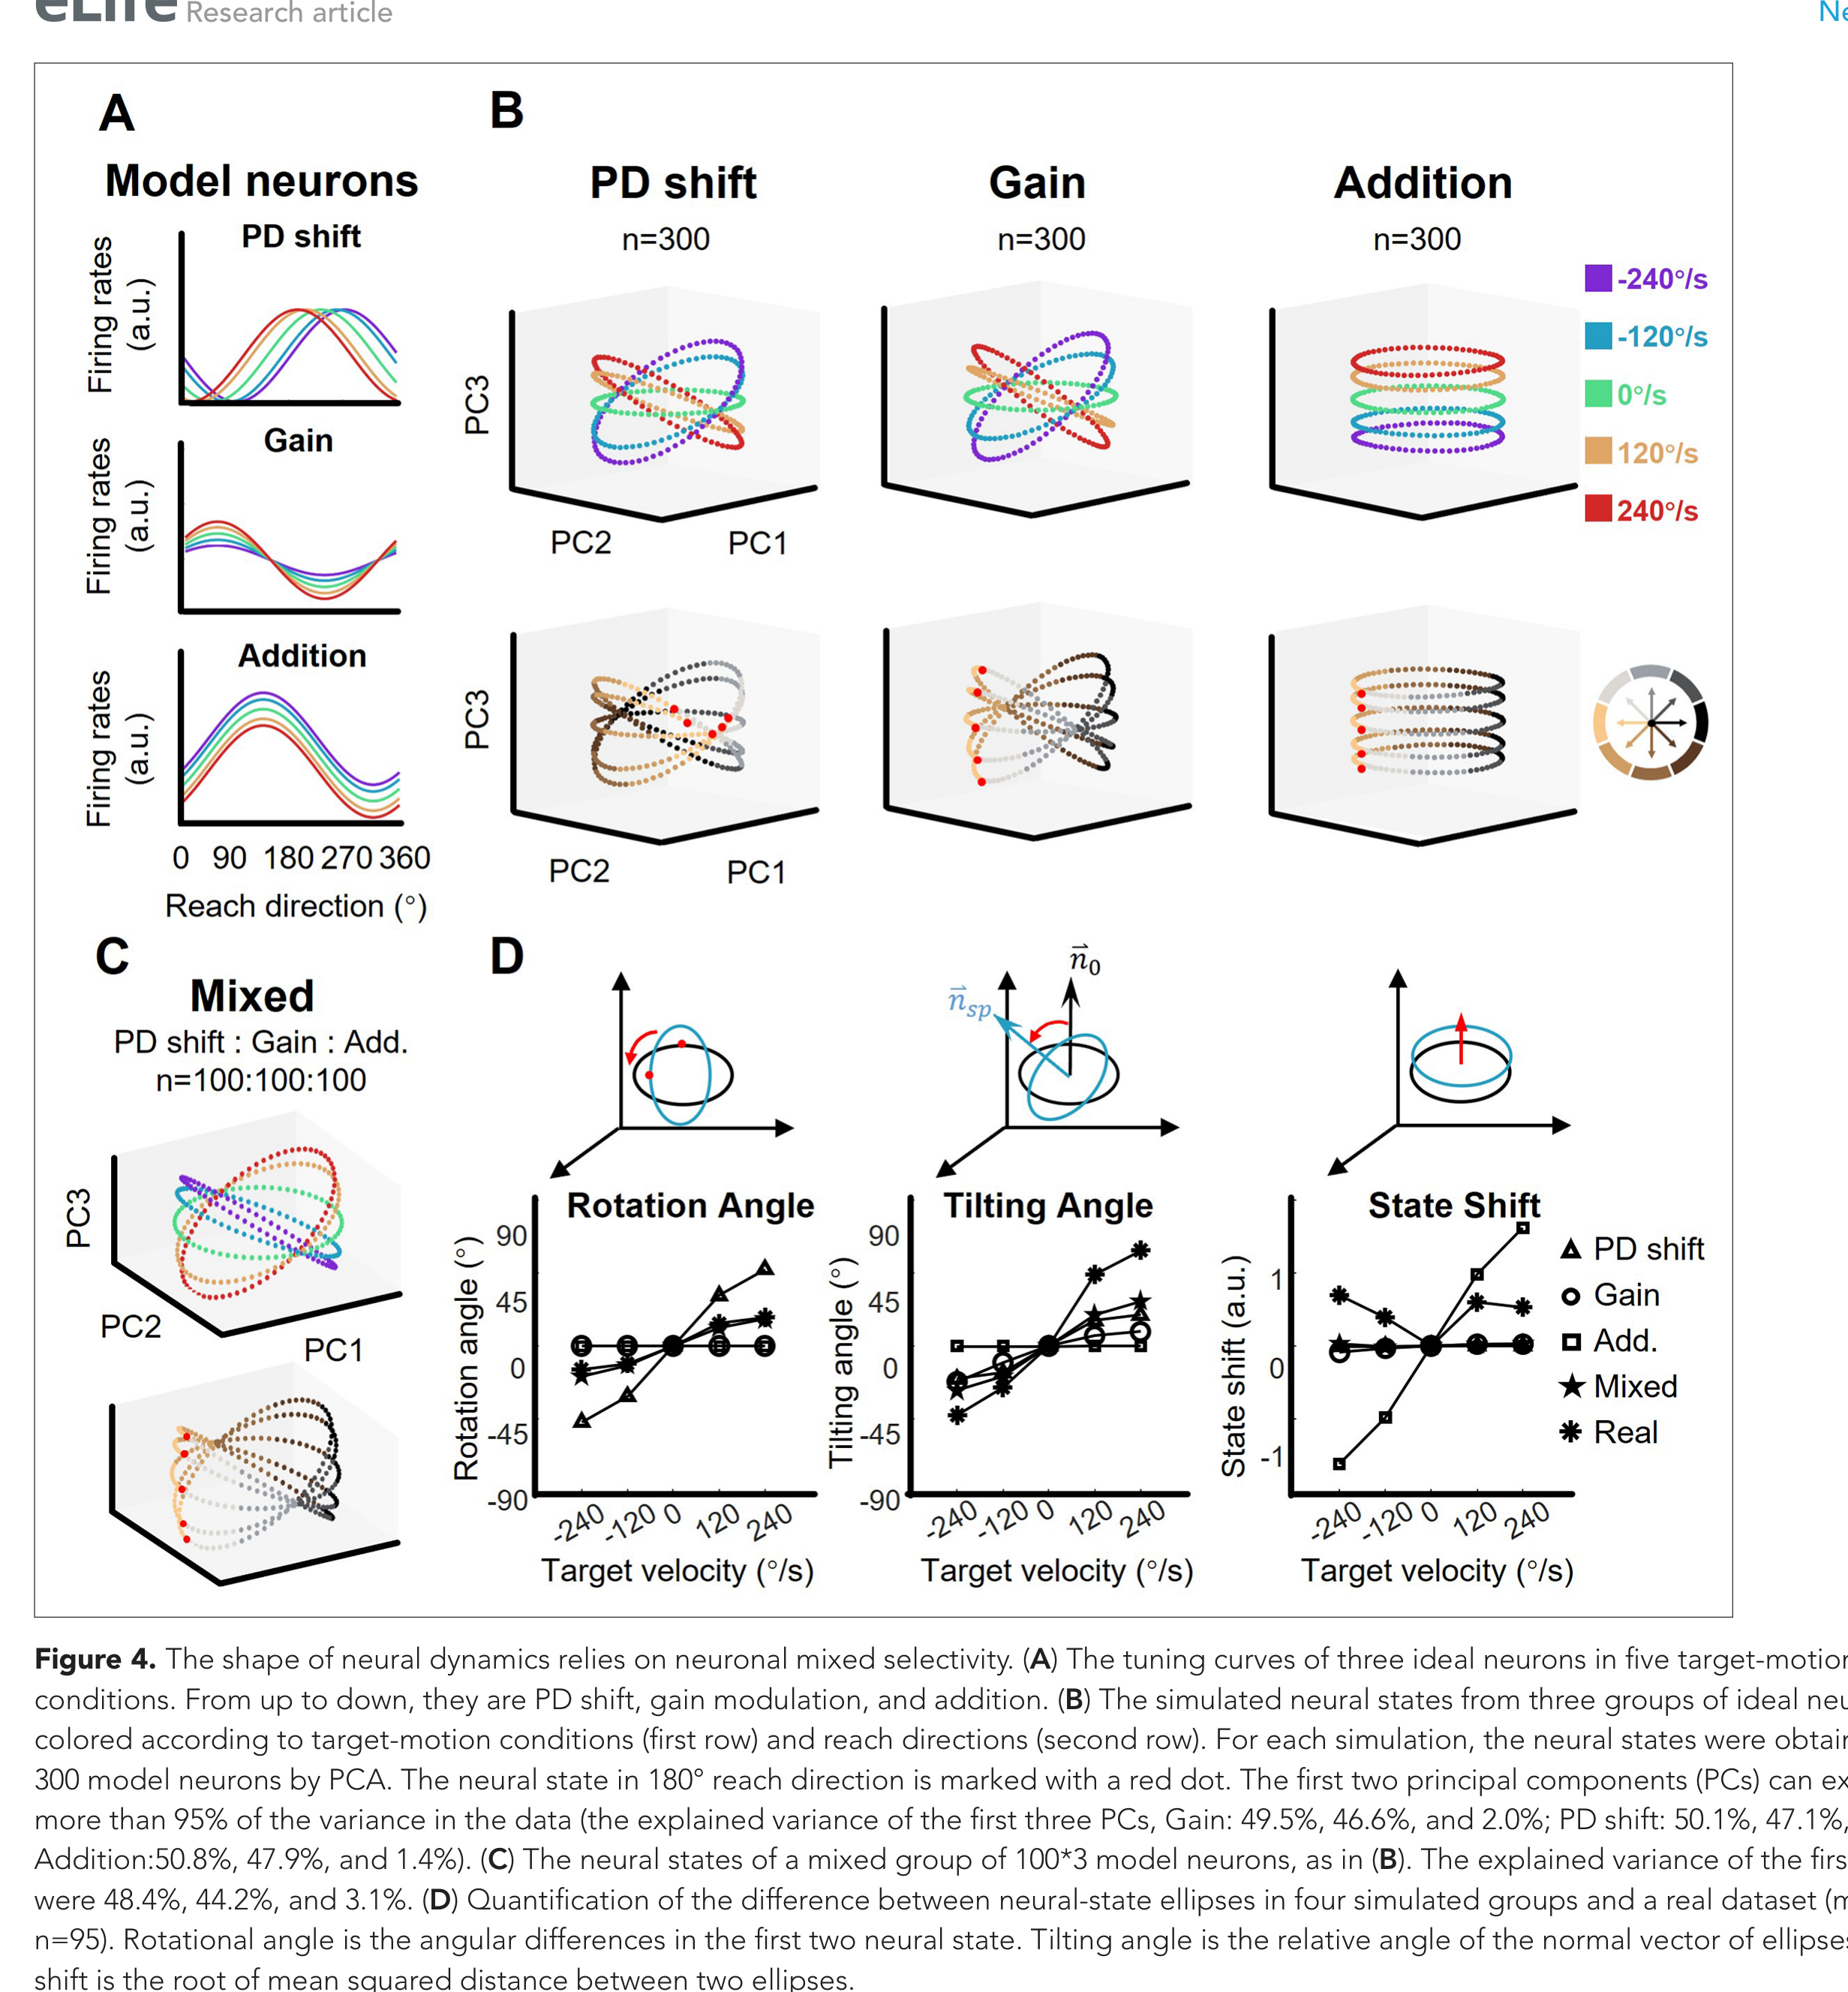 原文 Fig. 4 · PDF 第 9 页 · 原文图像 · 查看来源
图4 · 表征模型。 理想调谐可生成不同几何,展示充分构造而非脑内唯一机制。
 原文 Fig. 5 · PDF 第 10 页 · 原文图像 · 查看来源
图5 · RNN结构与几何。 输入显式包含会合点,连接图是模型权重;不是测得的猴脑突触连接。
讨论与解读边界
论文页眉按 eLife 2024 卷著录,本地全文首页则标注 Version of Record 发表日期为 2025-05-01,本篇按该 21 页文本核对。正文中引用的在线图文补充材料未完全包含于该 PDF 内,相关结论依据正文叙述转述,未逐项独立复核。PPC—M1 环路交互为作者提出的假说框架,尚缺乏直接的跨脑区同步记录或因果干预来证实该因果链条。
思考问题
- 同时记录肌电和力并定义实际下游读出后,倾斜方向与输出零空间有多少重合?
- 在不提供未来会合点、仅输入当前视觉与身体状态的网络中,相同几何能否出现并泛化到新运动规律?