A04 · Neuronal population coding of movement direction
Georgopoulos, A.P., Schwartz, A.B., & Kettner, R.E. (1986). Science, 233, 1416–1419. doi:10.1126/science.3749885
把宽方向调谐细胞的偏好方向按放电变化加权求和,可以重建猴三维伸手的目标方向。224个入选细胞的八方向平均角误差为15.8°;这是一种群体读出结果,不是下游神经回路实际执行该算法的证明。
核对依据:Zotero 条目 · 本地全文。本轮核对原文方法、关键结果、解释边界及所引主图;更新于2026-09-20。图注页码采用本地PDF文件页序,版本与未解决问题见正文及审查记录。
背景
早期的运动方向调谐研究发现,单个运动皮层神经元通常在多个运动方向上均有明显的放电反应,仅在特定的偏好方向(preferred direction)附近达到峰值发放。这种广泛存在的宽调谐现象提出了一个核心问题:若单个神经元缺乏对具体运动方向的排他性表征,运动系统如何从这种弥散的放电活动中产生高度精确且稳定的动作方向?单神经元的瞬时发放率虽然包含方向信息,但同一种发放强度往往对应着两个或多个不同方向,单从个别细胞的角度进行解码必然存在多义性。1986 年 Georgopoulos、Schwartz 与 Kettner 将研究视角从寻找“专属性方向特征检测器”转向“从整个神经群体中汇聚方向信息”,提出基于各细胞的偏好方向与当前放电变异共同计算群体运动方向的假设。
群体向量(population vector)方法将单神经元的调谐模型与三维空间的几何投射建立了数学联系。该方法首先通过方向余弦多元回归拟合各个神经元的平均发放强度,确定其在空间中的偏好方向单位向量;随后以神经元当前发放率相对于拟合平均基线的偏离程度作为代数权重,对所有神经元的方向向量进行矢量加权求和。当手臂运动方向接近某细胞的偏好方向时,该细胞产生正向权重,对其偏好向量形成显著贡献;当放电被抑制低于基线时,负向权重使其实际贡献向量反向指向偏好方向的对侧。通过这种加权方式,运动方向不再依赖少数特异神经元的“赢者通吃”,而是由大量宽调谐神经元的重叠放电共同重构。对该模型的评价标准是重构群体向量与实际目标物理方向的角误差大小,而非将单个神经元二元区分为“具有方向特异性”或“无方向特异性”。
在三维八方向的伸手实验中,利用 224 个符合调谐模型的神经元(通过序列穿刺记录汇聚),计算得到的群体向量方向与实际目标方向高度吻合,平均夹角误差仅为 15.8°。该结果表明宽调谐并不妨碍神经群体编码高度精确的运动方向,并表明群体规模是决定估计稳定性的重要因素。然而,该分析基于不同记录会话中单个细胞顺序采集后的离线整合,并非同时同步记录的大规模在线解码;调谐拟合与模型检验均在有限的 8 个对称空间方向上完成,不能直接等同于在未测试的起始位置、连续空间轨迹或存在动态外力负载条件下的泛化能力。更关键的是,在数学上能够通过矢量加权算法精确读出运动方向,并不等同于下游脊髓或前运动中枢在生理突触层面上直接实现了完全相同的加权机制;该论文证实了一种群体空间表征的存在与有效读出方案,但未提供突触生理层面的解剖连接证明。
研究思路
首先利用三维方向余弦模型拟合单个神经元在不同运动方向上的平均放电响应,确定其空间偏好方向;随后以单细胞放电率相对于基线常数项的差值作为权重,对所有神经元的偏好向量进行矢量求和;最后定量计算重构群体向量与实际目标物理方向之间的夹角误差与置信分布。
方法
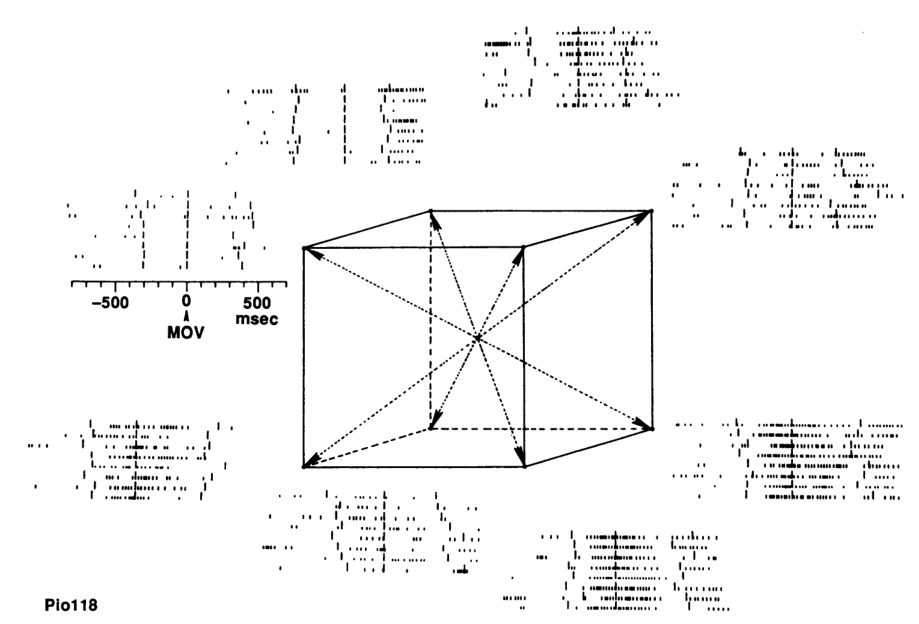
实验动物为猕猴,任务要求动物从肩部高度的中心按钮向距离为 12.5 cm 的八个三维空间目标执行伸手运动,多数细胞在每个方向上记录 8 次重复试次。在主要样本库的 282 个运动皮层细胞中,41 个未检测出统计显著的方向变异,224 个与三维方向余弦回归模型显著吻合,另有 17 个虽存在方向调制但不符合余弦模型。群体表征分析基于这 224 个符合模型的细胞展开,放电统计窗口设定为自视觉目标出现至伸手运动结束;该分析属于顺序记录数据的离线伪群体整合,非多通道同步采集。
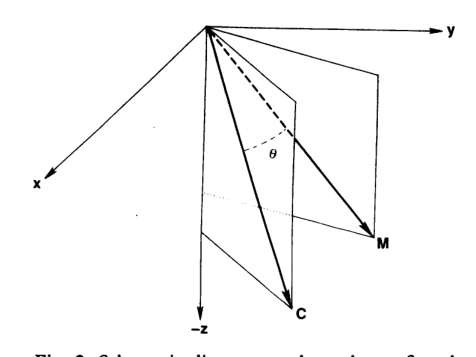
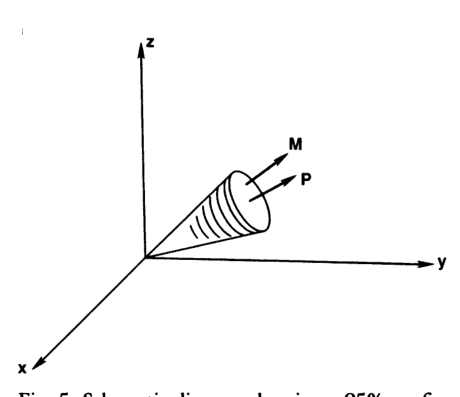
单神经元响应模型表述为:d(M) = b + b_x * m_x + b_y * m_y + b_z * m_z,其中回归系数确立了该细胞的空间偏好方向单位向量 C;该细胞对群体的方向贡献向量定义为 [d(M) - b] * C,放电低于平均基线时产生反向的负加权贡献。研究还采用重抽样(bootstrap)方法评估了不同亚组群体向量的统计稳定性,并计算了围绕群体向量的 95% 方向置信锥(confidence cone)。
主要结果
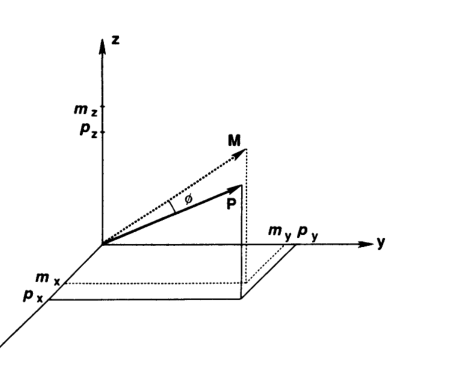
在测试的八个空间方向上,重构的神经群体向量均紧密指向实际运动目标,平均夹角误差为 15.8°,各方向误差范围在 7.2° 至 21.9° 之间(图 3 与图 4 所示示例方向的夹角为 8.3°)。作者报告实际运动方向均落在围绕群体向量构建的 95% 置信锥范围之内。置信锥反映的是基于当前样本重抽样估计的统计发散范围,不能等同于在独立测试集上的泛化预测精度。
在第二只猴中记录的 17 个细胞中有 12 个符合余弦调谐模型,仅用这 12 个细胞构建的群体向量平均夹角误差为 30.4°;而在第一只猴的数据集中随机抽取 12 个细胞时,平均误差同样约为 29.7°。该对比支持群体规模是影响方向读出精度的重要因素,但由于两只动物在记录细节上存在差异,无法将所有组间误差完全归因于神经元数量。
正文简要提及了在改变运动起始位置、引入非对称新方向以及在动作反应期和延迟期计算群体向量的探索性工作。这些描述展现了群体向量框架的拓展潜力,但属于后续研究的线索,应与本文 224 个细胞在标准八方向任务中的主要正式结论明确区分。
逐图解读
 原文 Fig. 1 · PDF 第 2 页 · 原文图像 · 查看来源
图1 · 单细胞在八方向的放电。 栅格对齐运动开始,每方向八次试次;长线依次标出目标出现、运动开始与结束。该细胞在多个方向都有活动,但平均放电明显不同,三维方向模型的示例R²为0.929。
 原文 Fig. 2 · PDF 第 3 页 · 原文图像 · 查看来源
图2 · 偏好方向与运动方向的几何关系。 C和M为单位向量,两者夹角的余弦决定拟合响应相对常数项的变化。它解释模型的几何含义,不是额外的实验条件。
 原文 Fig. 3 · PDF 第 3 页 · 原文图像 · 查看来源
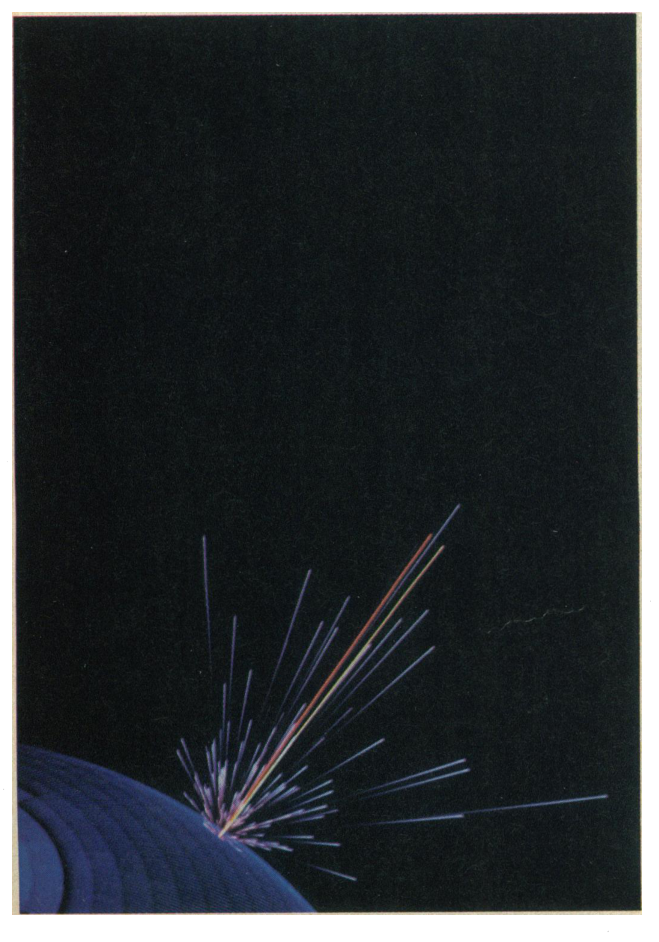
图3 · 224个细胞的向量贡献与群体向量。 原图用浅紫色表示单细胞贡献,黄色表示运动方向,橙色表示群体向量;扫描件中颜色辨识有限,应结合图4阅读。贡献向量由偏好方向和放电变化共同决定,包括负权重带来的反向贡献。
 原文 Fig. 4 · PDF 第 3 页 · 原文图像 · 查看来源
图4 · 群体向量与目标方向。 图中把P与M归一化后比较,示例夹角为8.3°。该图显示方向估计接近目标方向,不是分类正确率,也不表示所有方向没有误差。
 原文 Fig. 5 · PDF 第 4 页 · 原文图像 · 查看来源
图5 · 群体向量的95%置信锥。 重抽样考虑试次间放电变异,M位于示例置信锥内。这支持在该样本及估计方法下方向结果具有一定稳定性;置信锥不检验生物回路是否采用向量求和,也不能替代独立数据验证。
讨论与解读边界
群体向量的提出证明了皮层神经元的宽方向调谐并不阻碍整个群体形成高度准确的空间运动表征。单个细胞的发放同样携带方向信息,只是单一神经元的放电幅度一般不足以排除方向的多义性;不应将群体编码的成功片面解读为单个神经元完全不具备方向信息。
实验分析主要在固定起点且高度对称的 8 个空间目标上进行调谐拟合与读出验证,不能直接外推为该群体表征能够无缝适应未见起始构型、不规则动作路径或外力场干扰等动力学复杂条件。此外,神经发放统计窗口同时涵盖了动作准备期与实际执行期,单凭该整体分析无法证明纯准备期神经活动已完成独立解码。更重要的是,能够通过数学算法从群体放电中解码出物理方向,并不证明大脑内部实际存在执行该矢量加权求和的特定解剖环路。
思考问题
- 若在部分方向拟合调谐,只在未用于拟合的新方向、起点和负载上评估,群体向量的误差会如何变化?
- 怎样区分群体向量作为可用的数学读出,与下游神经回路实际采用这一读出规则?需要什么干预或连接证据?