A05 · Primate motor cortex and free arm movements to visual targets in three-dimensional space. I. Relations between single cell discharge and direction of movement
Schwartz, A.B., Kettner, R.E., & Georgopoulos, A.P. (1988). The Journal of Neuroscience, 8(8), 2913–2927. doi:10.1523/jneurosci.08-08-02913.1988
在三维自由伸手中,568个近端臂相关运动皮层细胞中有475个在总任务期符合所用方向调谐模型。活动变化的潜伏期分布早于另场记录的肌电分布,但这种比较不能给出逐神经元到肌肉的固定传导提前量。
核对版本:Zotero motor_control_interception_64 集合本地全文(PDF 全文提取,图注与正文互相校订,2026-09-18;图注所标页码均为 PDF 文件页序,非期刊印刷页码);Zotero 条目。
背景
二维手柄任务中的方向调谐是否也出现在不受手柄约束的三维伸手中?本文扩展了方向采样,并进一步分析调谐参数、响应起点和肌肉活动,为先前的简报提供较完整的数据。
研究思路
让猴从同一中心按钮伸向八个空间目标,比较不同阶段的单细胞方向响应,并将放电变化时序与肌电变化时序对照。运动方向、终点和姿势变化在这个设计中并未完全分离。
方法
两只雄性恒河猴完成八方向伸手,目标距中心12.5 cm;568个近端臂相关细胞来自四个半球、100条穿刺。运动过程中不握持机械手柄,但起点和终点都需要按按钮。神经、腕部运动学及肌内EMG在不同场次记录。
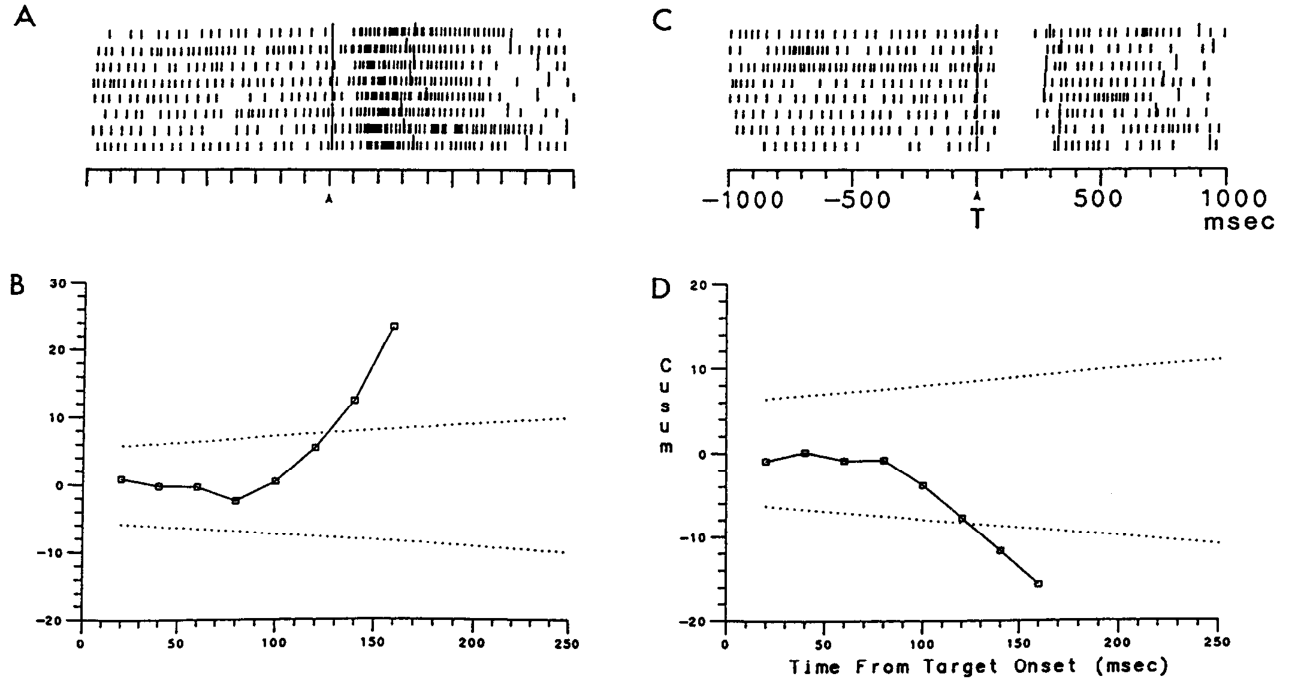
分析区分控制期CT、反应期RT、运动期MT及TET=RT+MT。方向差异用方差分析检验,方向调谐用三维余弦模型拟合。响应起点用20 ms分箱的CUSUM及序贯检验确定。作者明确将有限取样的肌电视为定性观察,不把它当作全肌肉系统的完整定量记录。
主要结果
TET期475/568个细胞(83.6%)通过方向差异及模型拟合检验;31个有方向差异但不符合模型,62个未检出方向差异。RT和MT期的调谐比例分别为61.1%和84.7%。这是不同时段的分类差异,不能仅据此确定每个单元随时间逐渐获得方向信息。
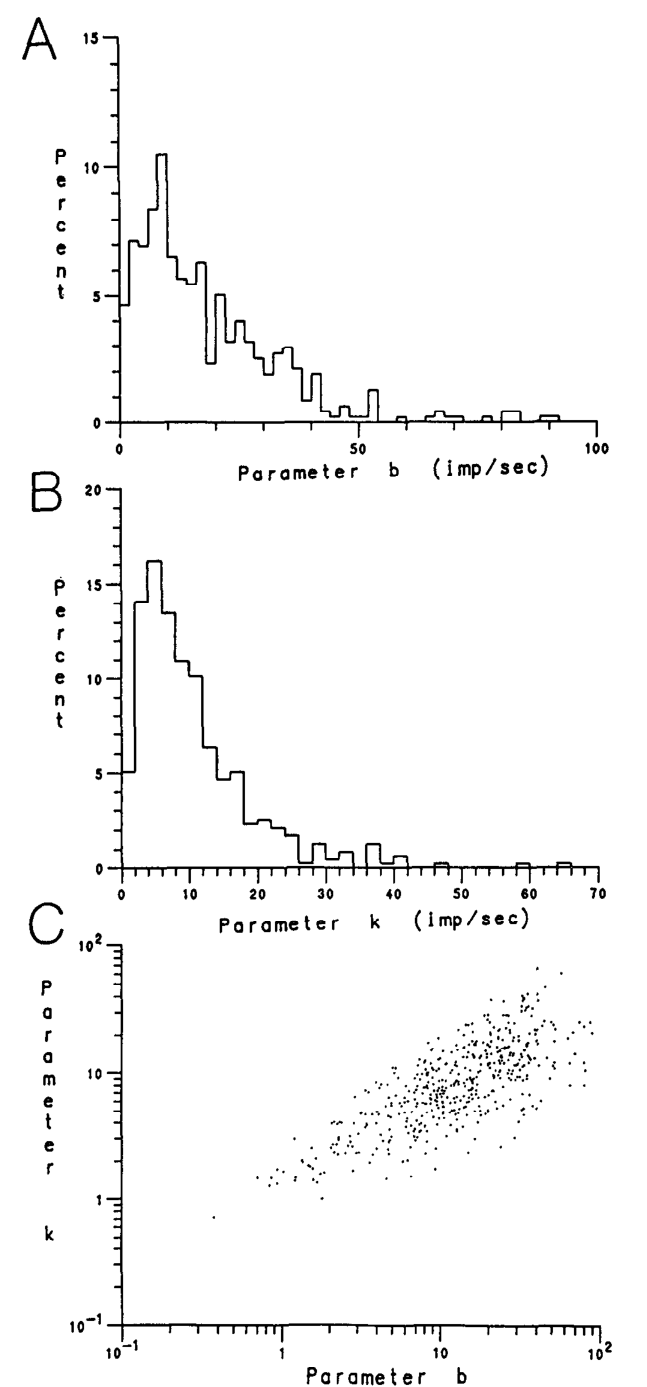
475个偏好方向覆盖三维空间,Rayleigh检验未拒绝均匀性,但作者仍指出局部集中可能反映采样或真实偏斜。跨重复估计的偏好方向球面方差中位数为0.066。调谐参数b与k正相关;b是拟合常数项,不等同于运动前静息放电。部分方向的模型预测为负,表明未截断的余弦模型存在生理下界问题。
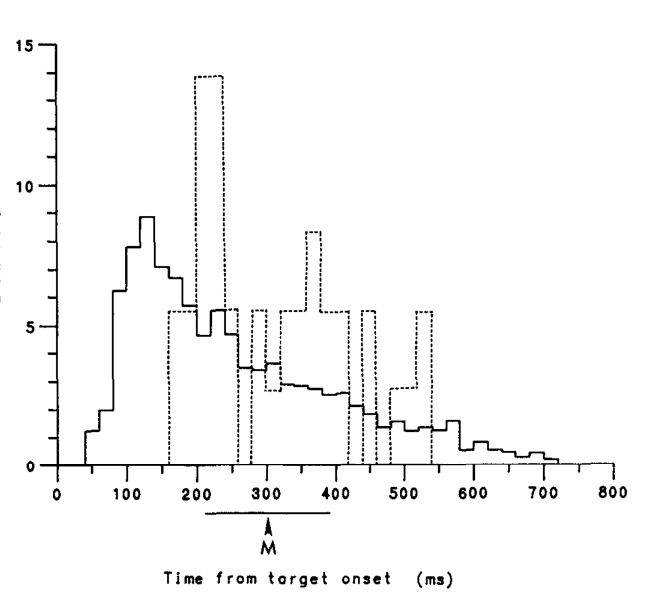
568个细胞×8方向共4544次起点判定中,有2584次首先出现放电增加。最早明显增加出现在目标后60–80 ms,分布峰值在120–140 ms。6块近端肌×8方向的48次判定中有43次首先增加,最早位于160–180 ms。神经潜伏期分布显著早于肌电;两组分开取样,不能把神经分布峰值与肌电最早值相减,报告成共同的40–60 ms传导延迟。
逐图解读
 原文 Fig. 1 · PDF 第 2 页
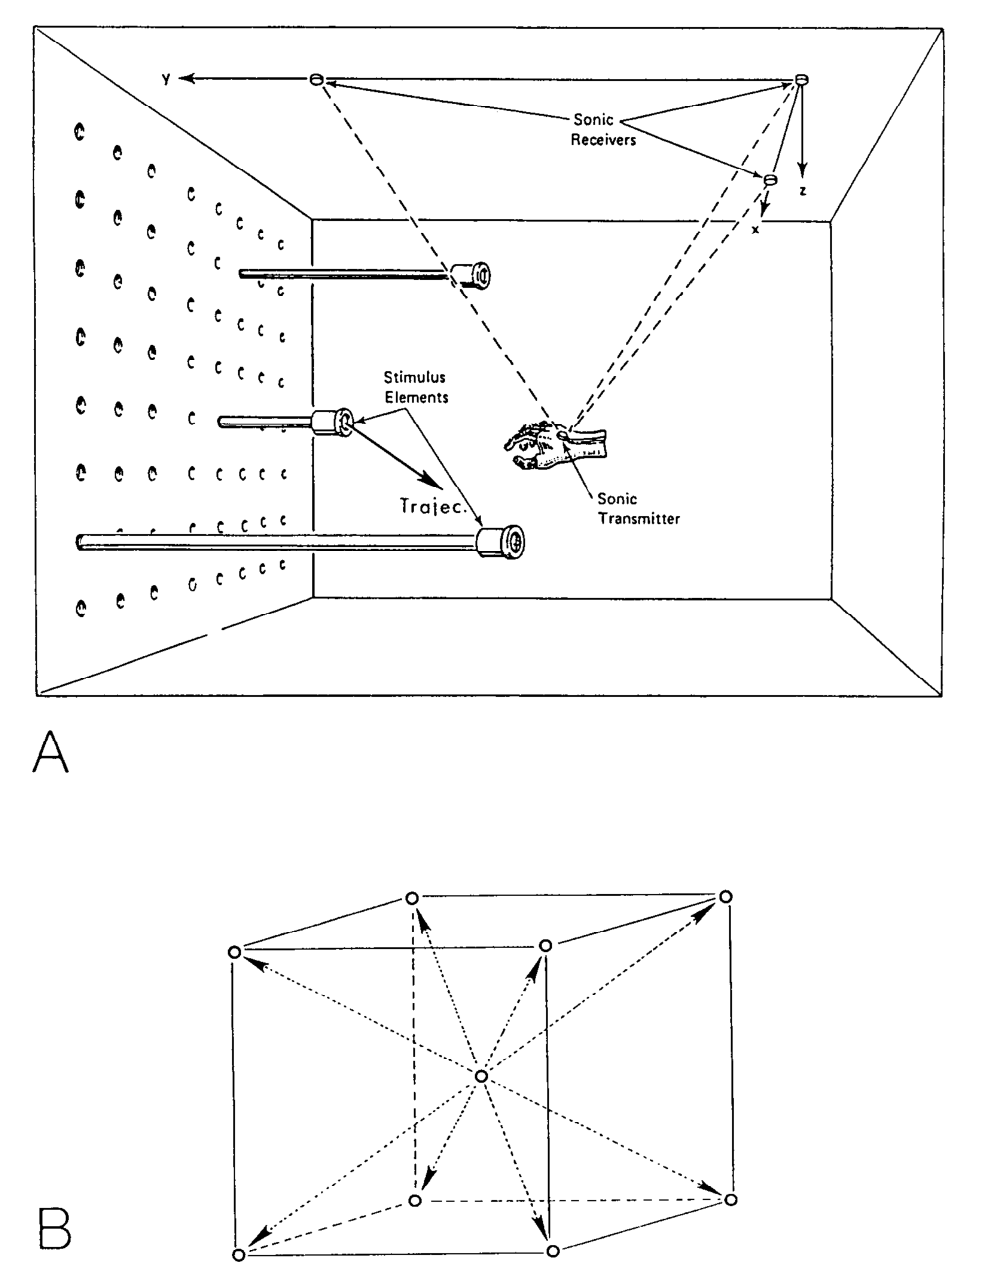
图1 · 装置与三维目标布局。 A显示按钮板及声学追踪装置,B显示中心与八个周围目标。手在运动途中不受手柄约束,但必须从中心按钮移到目标按钮;不能写成完全不接触机械装置。
 原文 Fig. 2 · PDF 第 4 页
图2 · CUSUM判定活动变化。 A/B示例为放电增加,C/D为减少;栅格下方绘出累积和及随检验次数变化的边界。该程序控制特定方案内重复检验的误差,起点仍取决于分箱、基线和阈值设置。
 原文 Fig. 3 · PDF 第 5 页
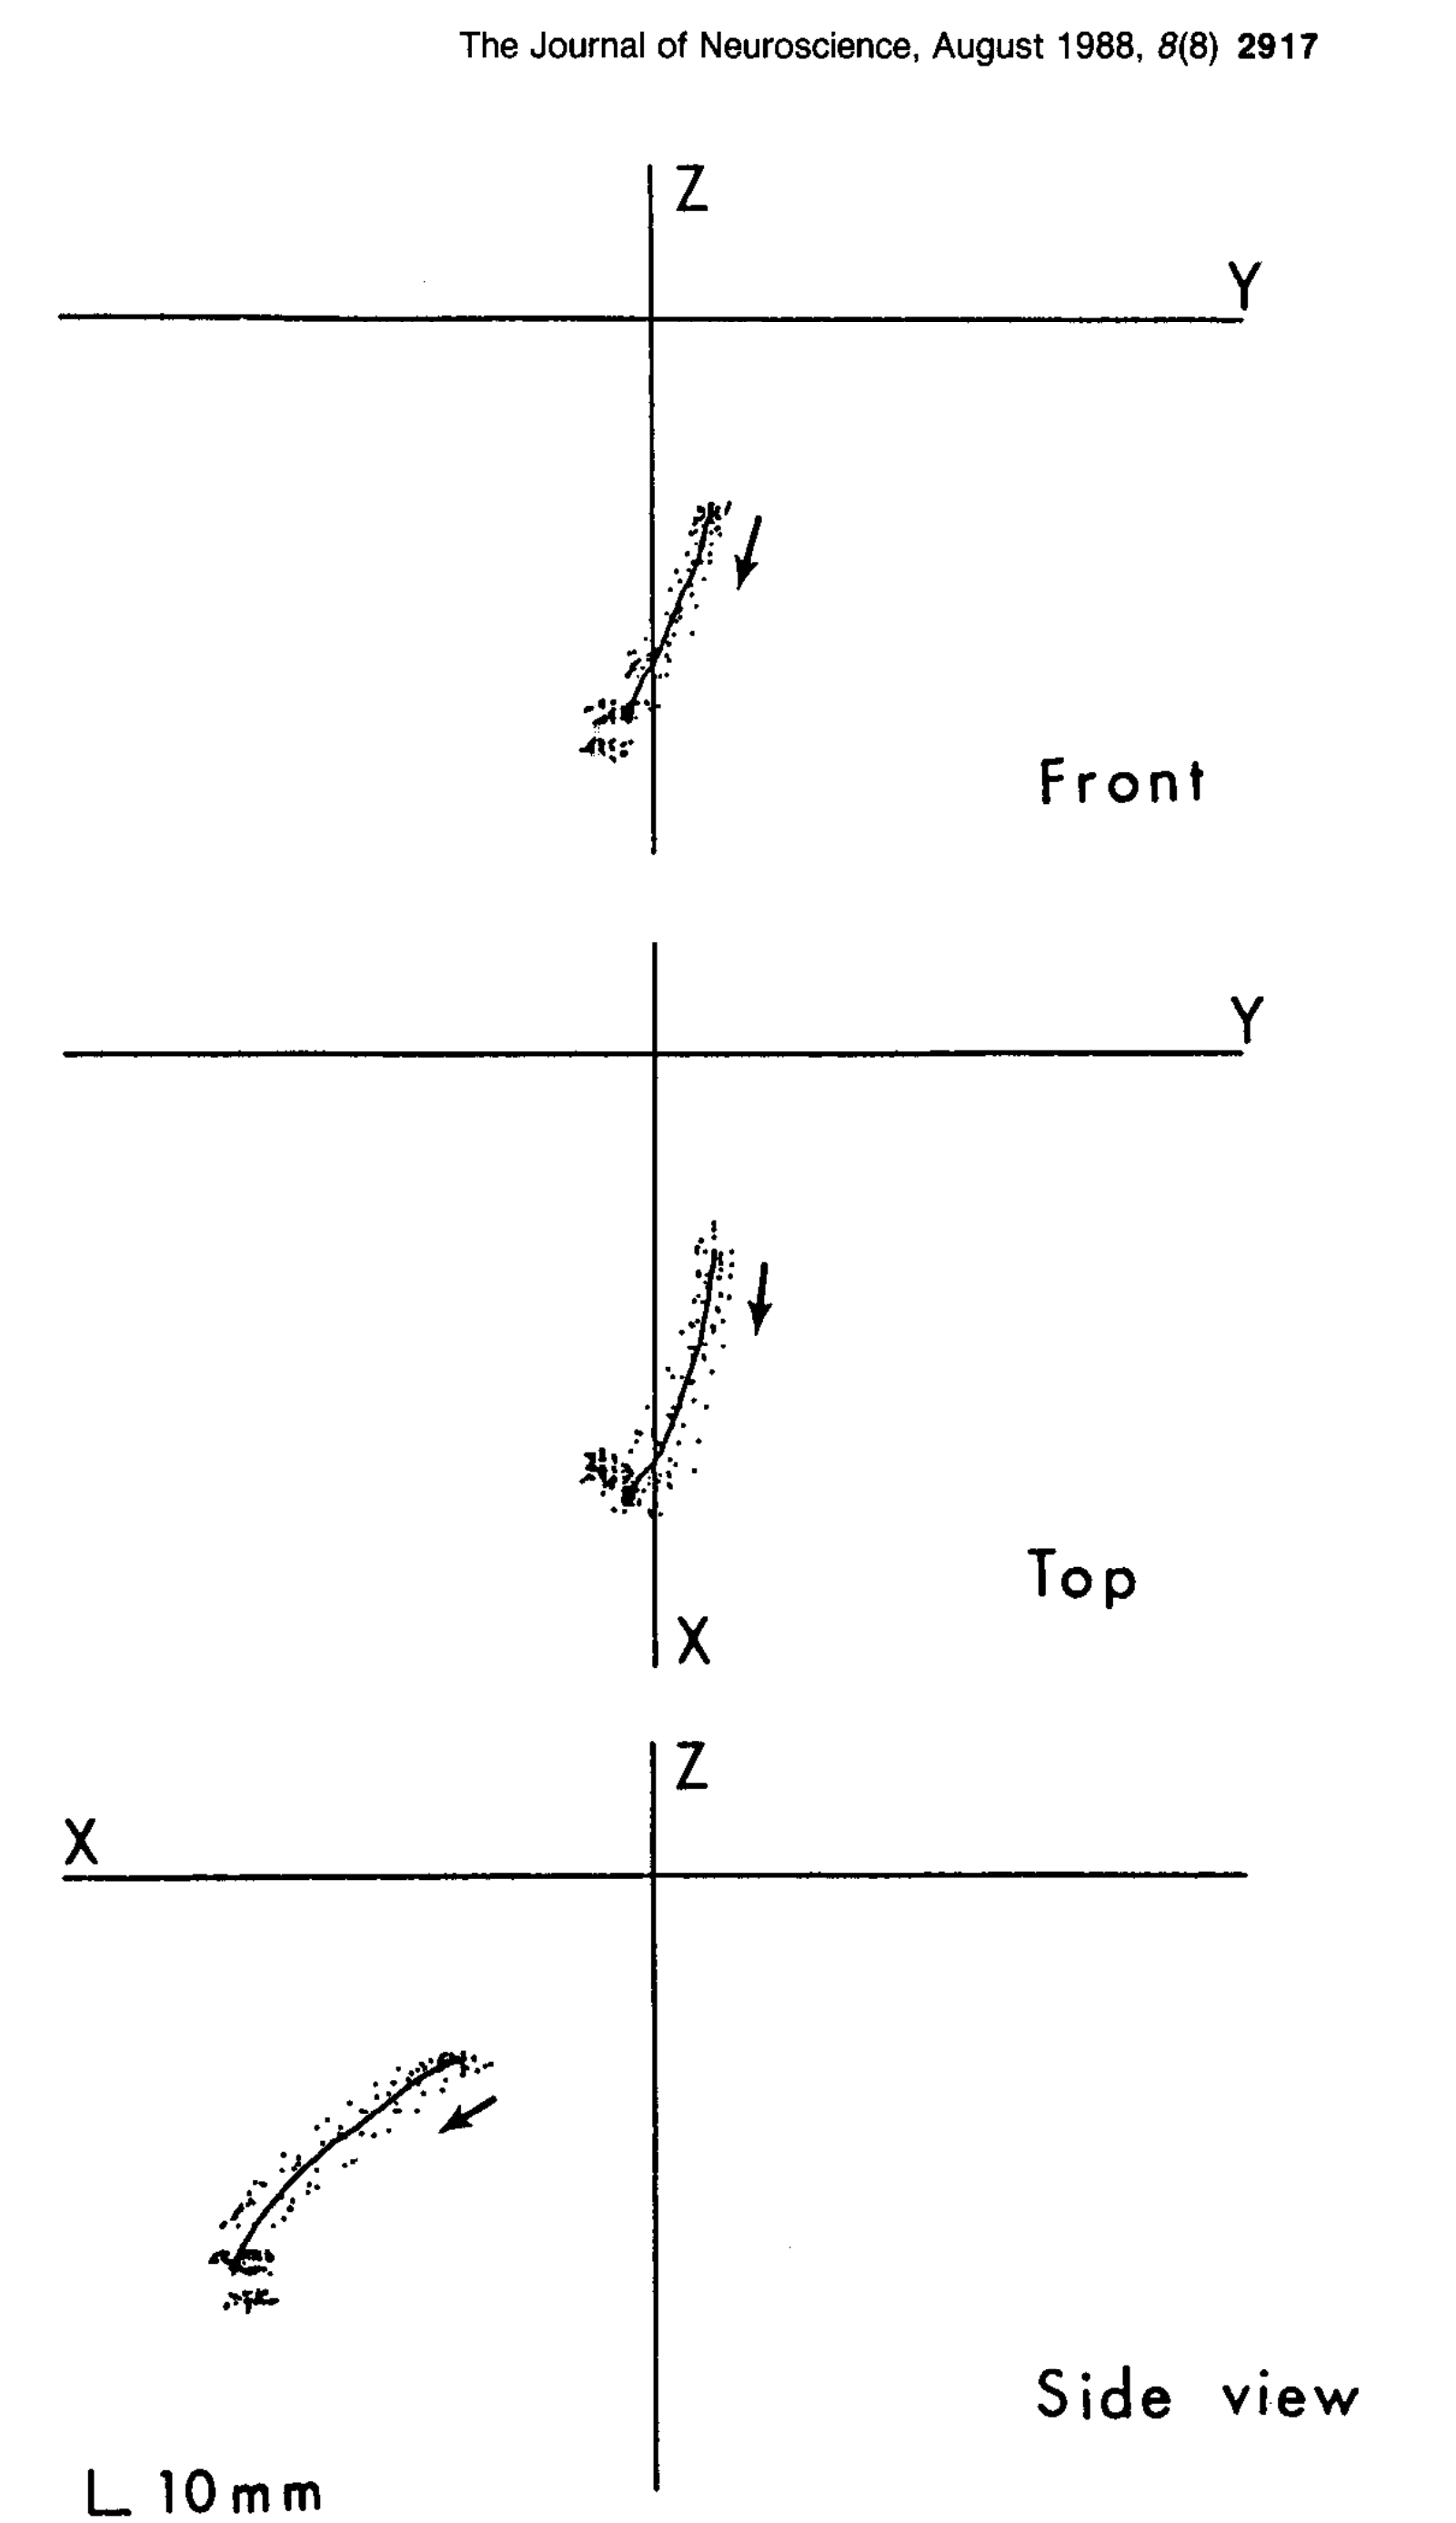
图3 · 同一目标的八次运动轨迹。 正面、俯视和侧面投影显示重复轨迹较一致。点为每20 ms的位置,实线为平均轨迹。这是一个目标的行为示例,不能证明所有方向之间的轨迹和力学因素均已匹配。
 原文 Fig. 4 · PDF 第 6 页
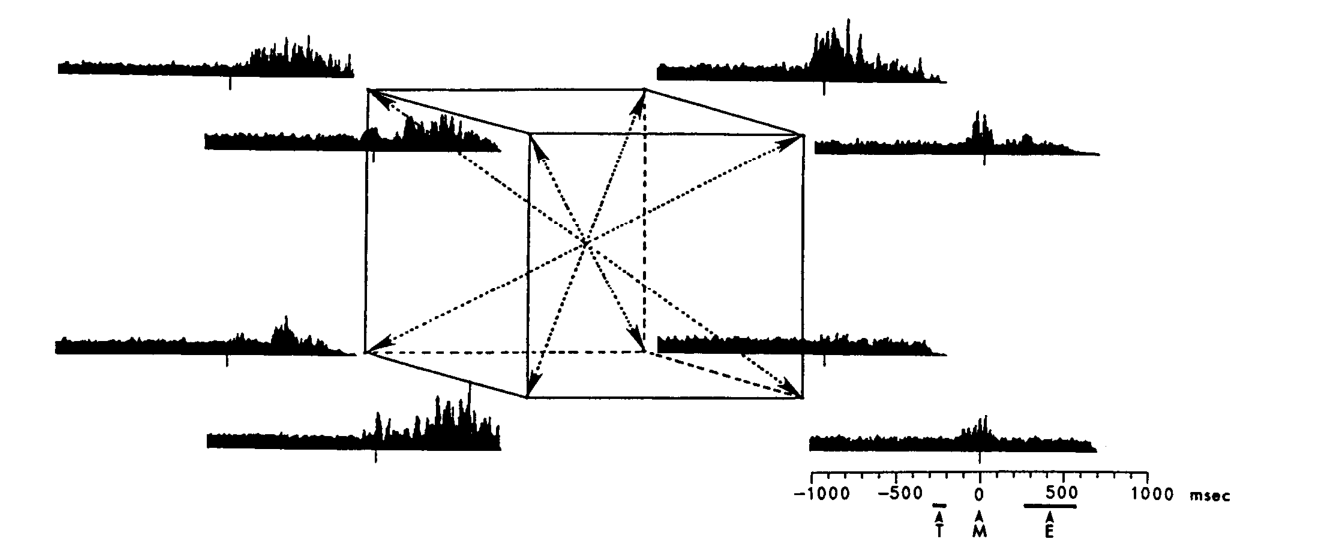
图4 · 肩峰三角肌在八方向的EMG。 各曲线为八次试次的平均,按运动开始对齐。一个肌肉可在多个方向参与,幅度和时程不同;这不足以代表全部肌肉的调谐。
 原文 Fig. 5 · PDF 第 7 页
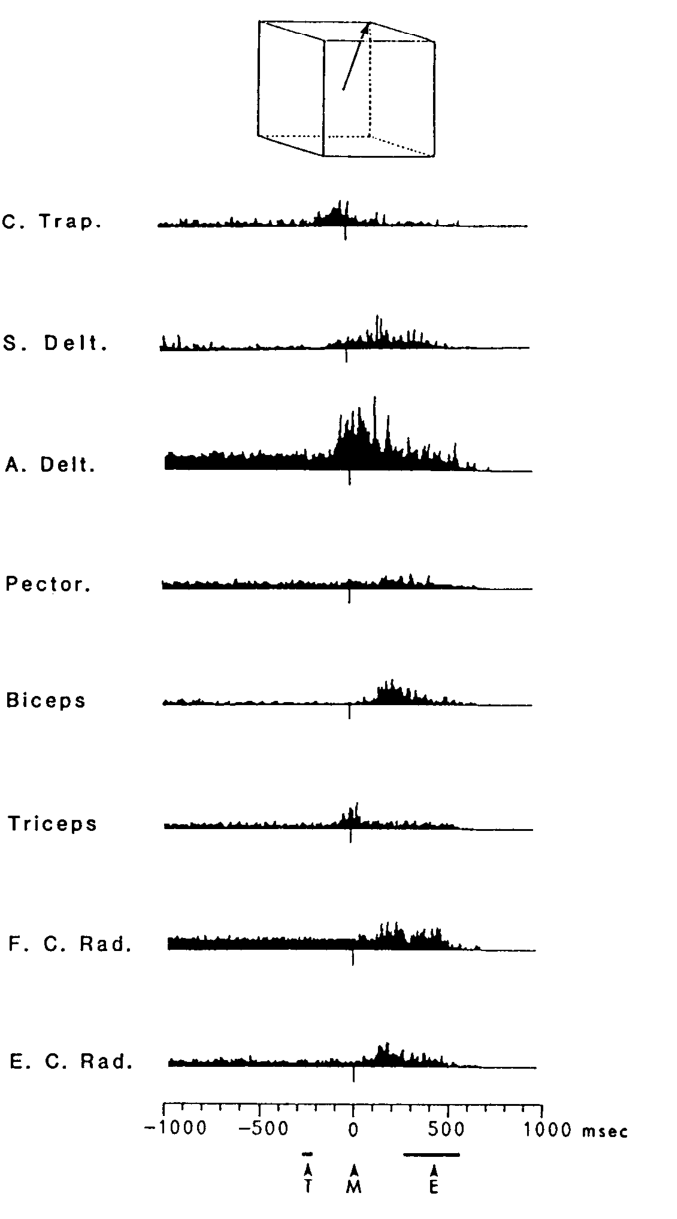
图5 · 同一目标方向的多肌肉活动。 六块近端肌与两块腕部肌的平均EMG显示重叠而不同的活动时程。腕部持续活动可能参与稳定手腕,图本身没有估计皮层到肌肉的加权连接。
 原文 Fig. 6 · PDF 第 8 页
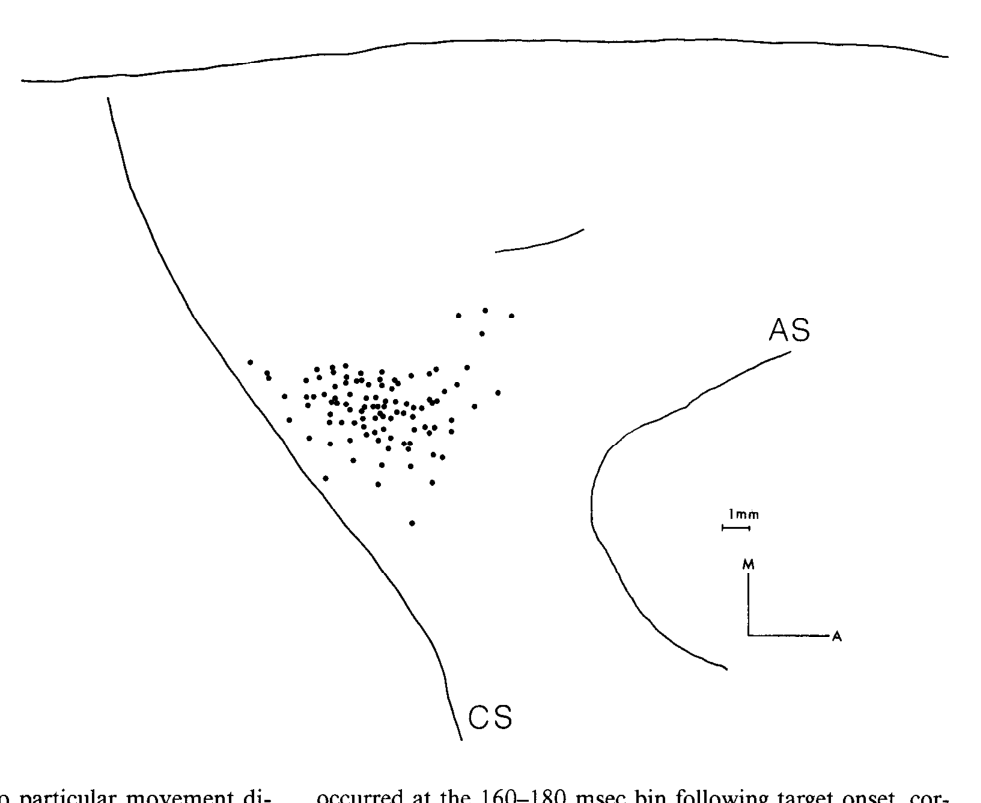
图6 · 记录区域。 四个半球的100条穿刺叠加到一个右半球轮廓上,显示近端臂相关区域的取样范围。它不能作为所有运动皮层区域都具有相同比例方向调谐的依据。
 原文 Fig. 7 · PDF 第 8 页
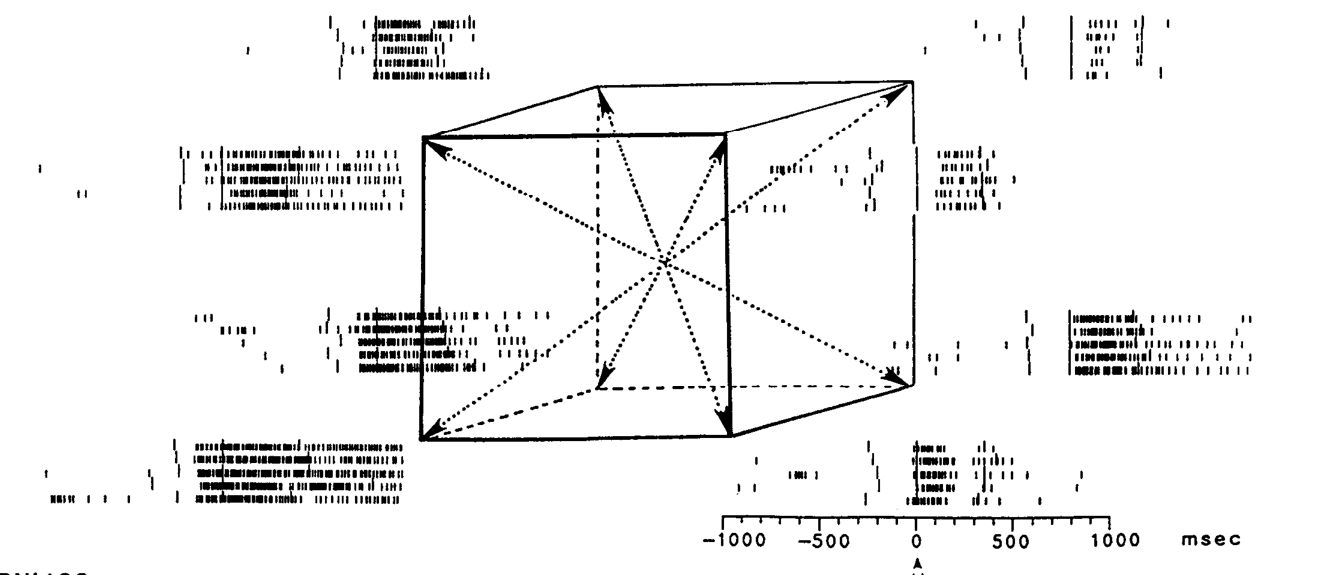
图7 · 方向调谐示例。 八方向栅格按运动开始对齐,单元在向左下方运动时较活跃,其他方向响应逐渐降低。部分差异在动作前已经出现。
 原文 Fig. 8 · PDF 第 9 页
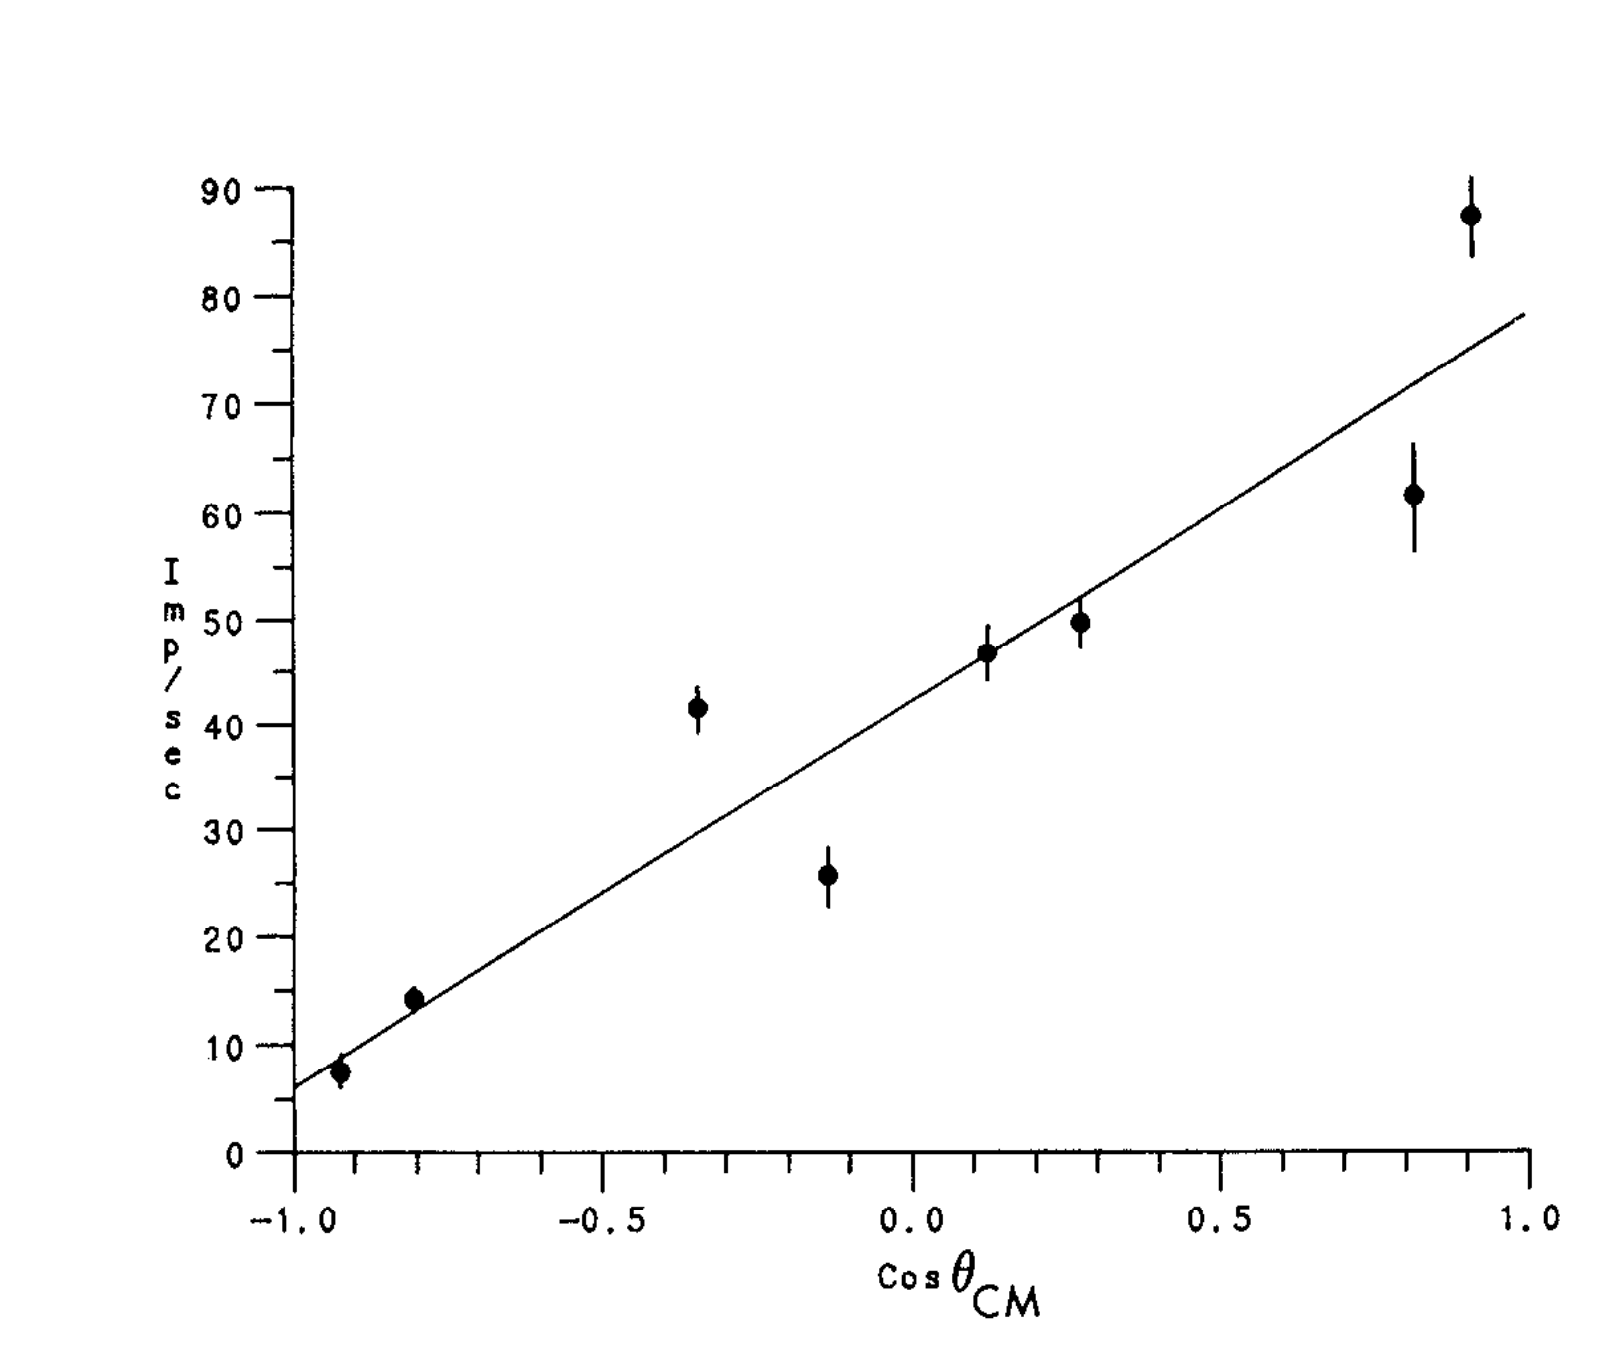
图8 · 放电率与方向夹角余弦。 图7细胞的均值及标准差与拟合直线比较,模型为d=41.90+36.55cosθ。它说明该模型能描述此示例,但仍需通过残差和独立条件判断拟合范围。
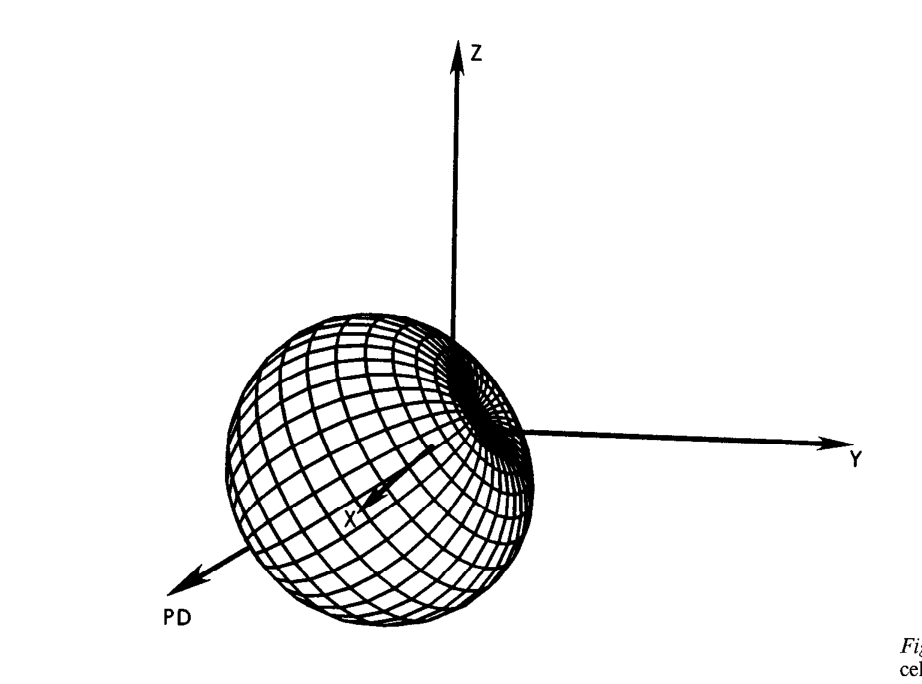 原文 Fig. 9 · PDF 第 9 页
图9 · 拟合调谐体积。 从原点到表面的长度表示模型对该方向的预测放电率。连续表面由模型产生,不是所有空间方向都实际测量过。
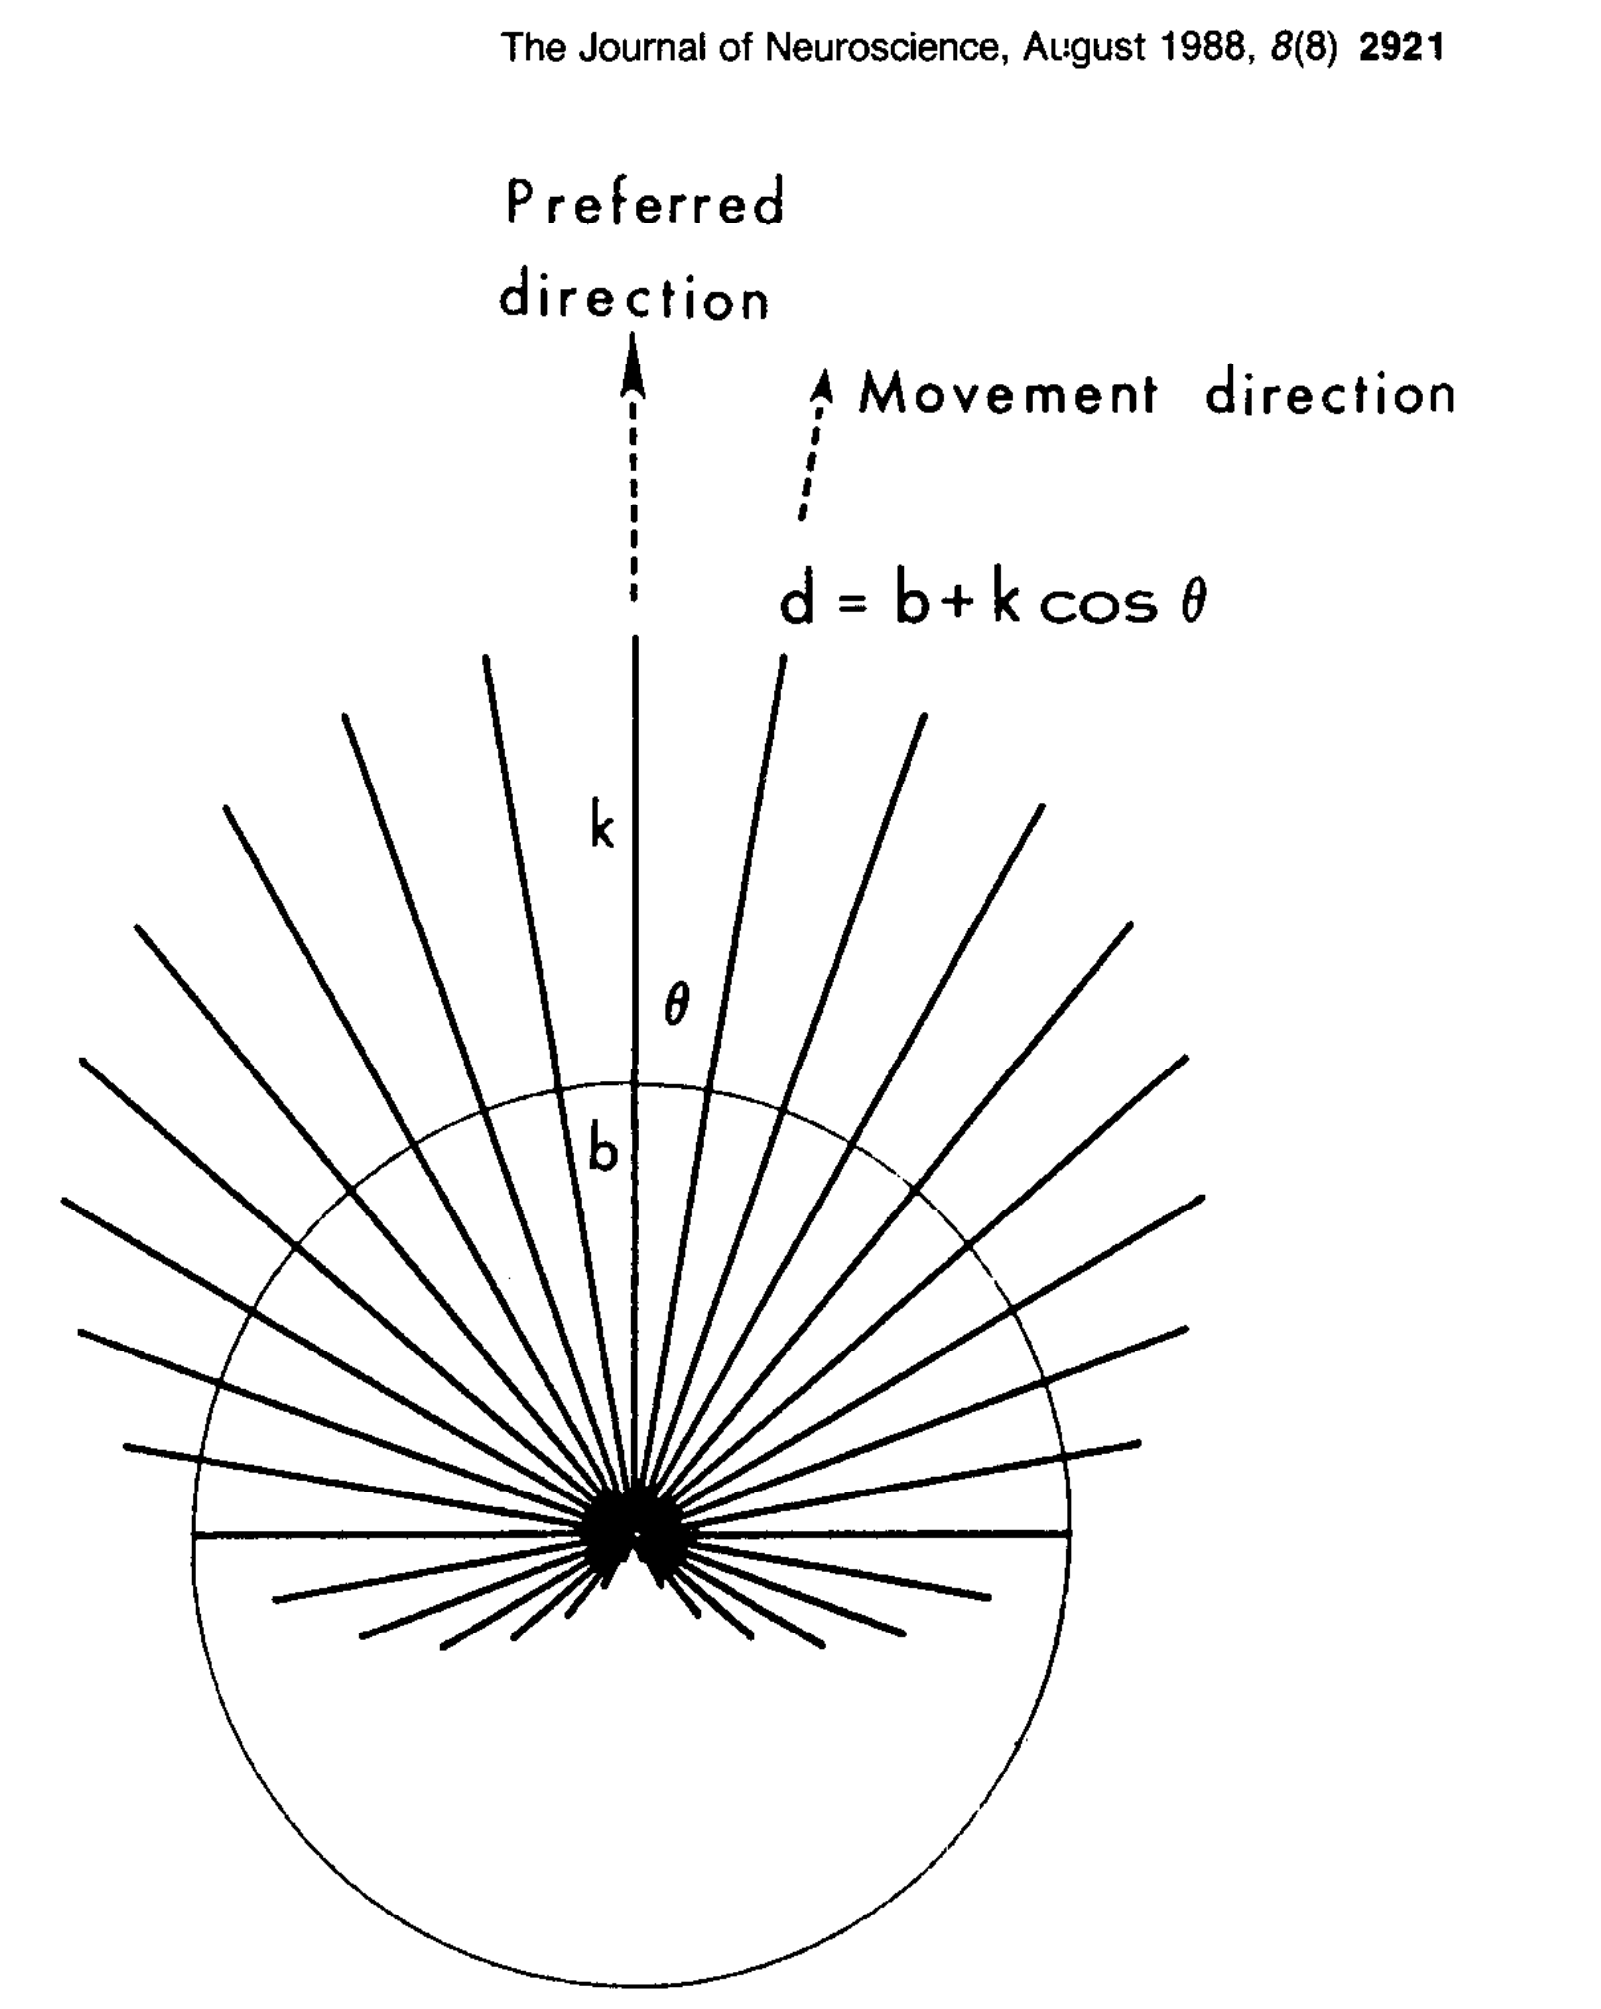 原文 Fig. 10 · PDF 第 9 页
图10 · 调谐体积的截面。 图示b和k怎样决定方向响应,绕偏好方向轴旋转可得到所用模型的三维形状。轴对称来自模型形式,不能当作额外独立验证的实验发现。
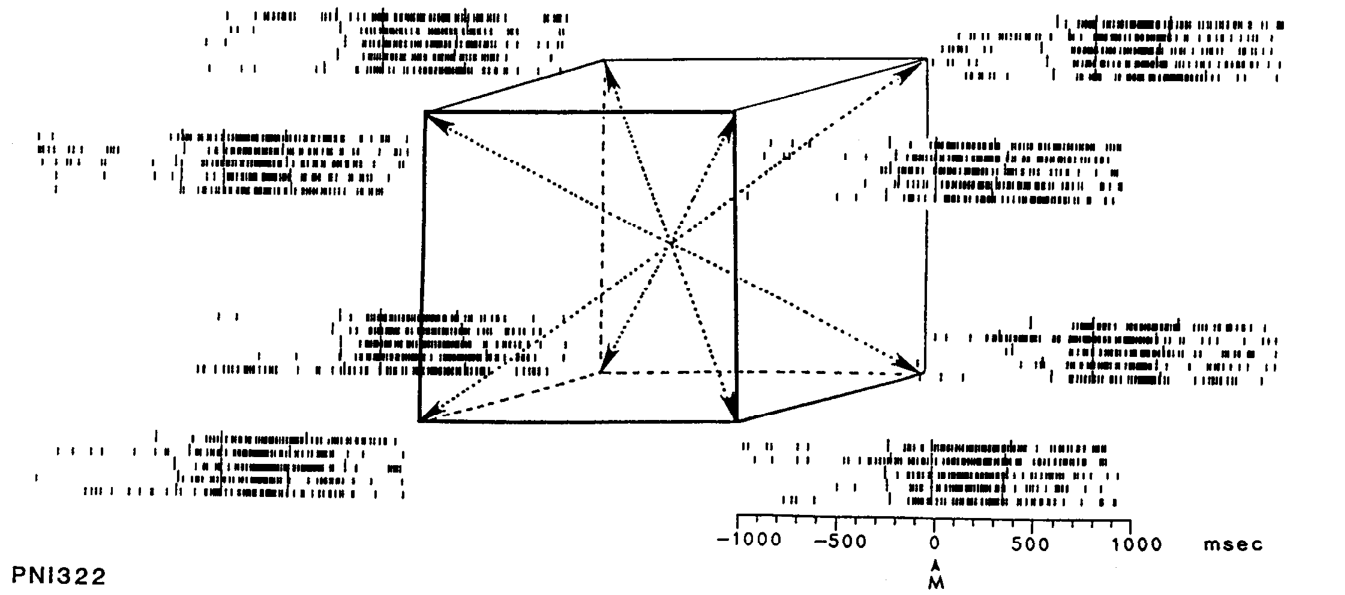 原文 Fig. 11 · PDF 第 10 页
图11 · 未检出方向差异的单元。 单元在任务中活动变化明显,但八方向间未达到作者使用的显著性标准。未检出差异不等于完全没有方向信息;其其他可能功能未由本文确定。
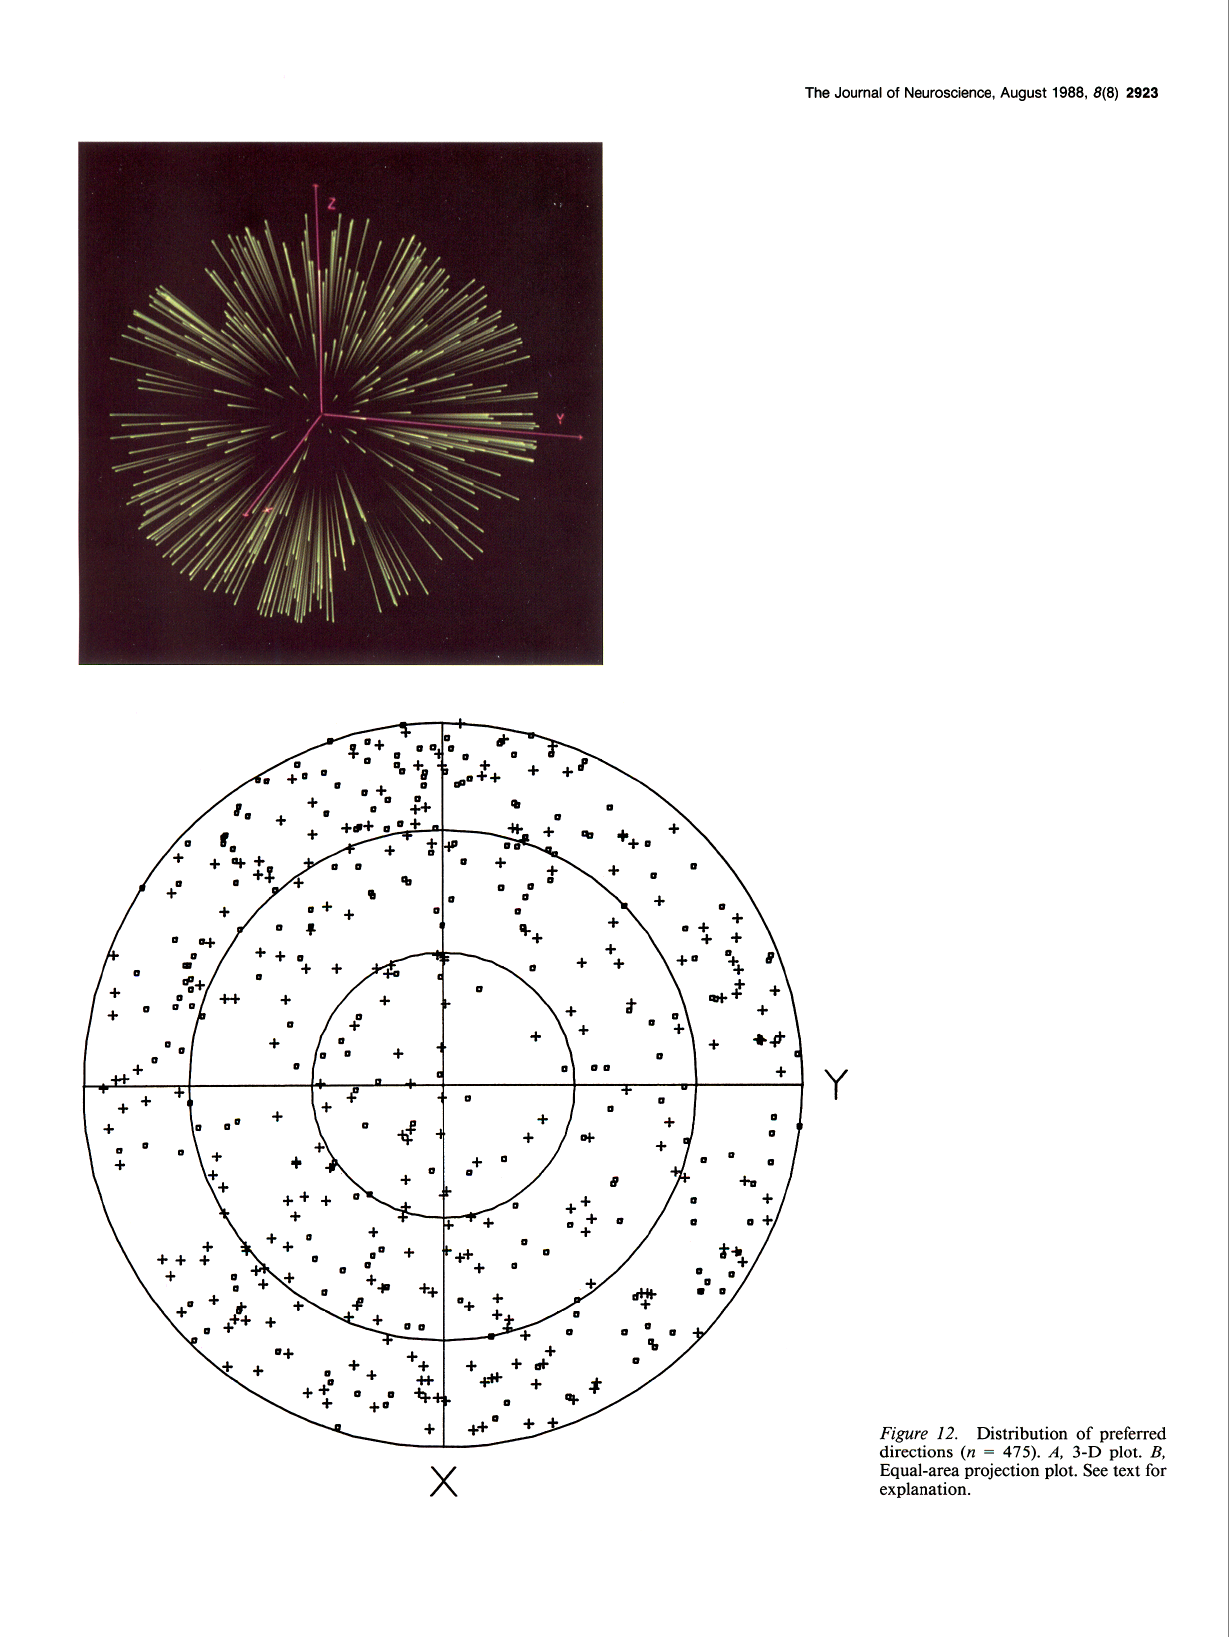 原文 Fig. 12 · PDF 第 11 页
图12 · 偏好方向分布。 A为三维向量,B为等面积投影。偏好方向覆盖空间,所用均匀性检验未显著;不能据此证明严格均匀,或认为均匀分布是任何群体读出都不可缺少的条件。
 原文 Fig. 13 · PDF 第 12 页
图13 · 调谐参数分布。 A、B分别为b、k,C为双对数坐标下的关联(R=0.859,n=475)。b是拟合常数项;把它称为静息基线会混淆模型参数与独立测量的控制期放电。
 原文 Fig. 14 · PDF 第 12 页
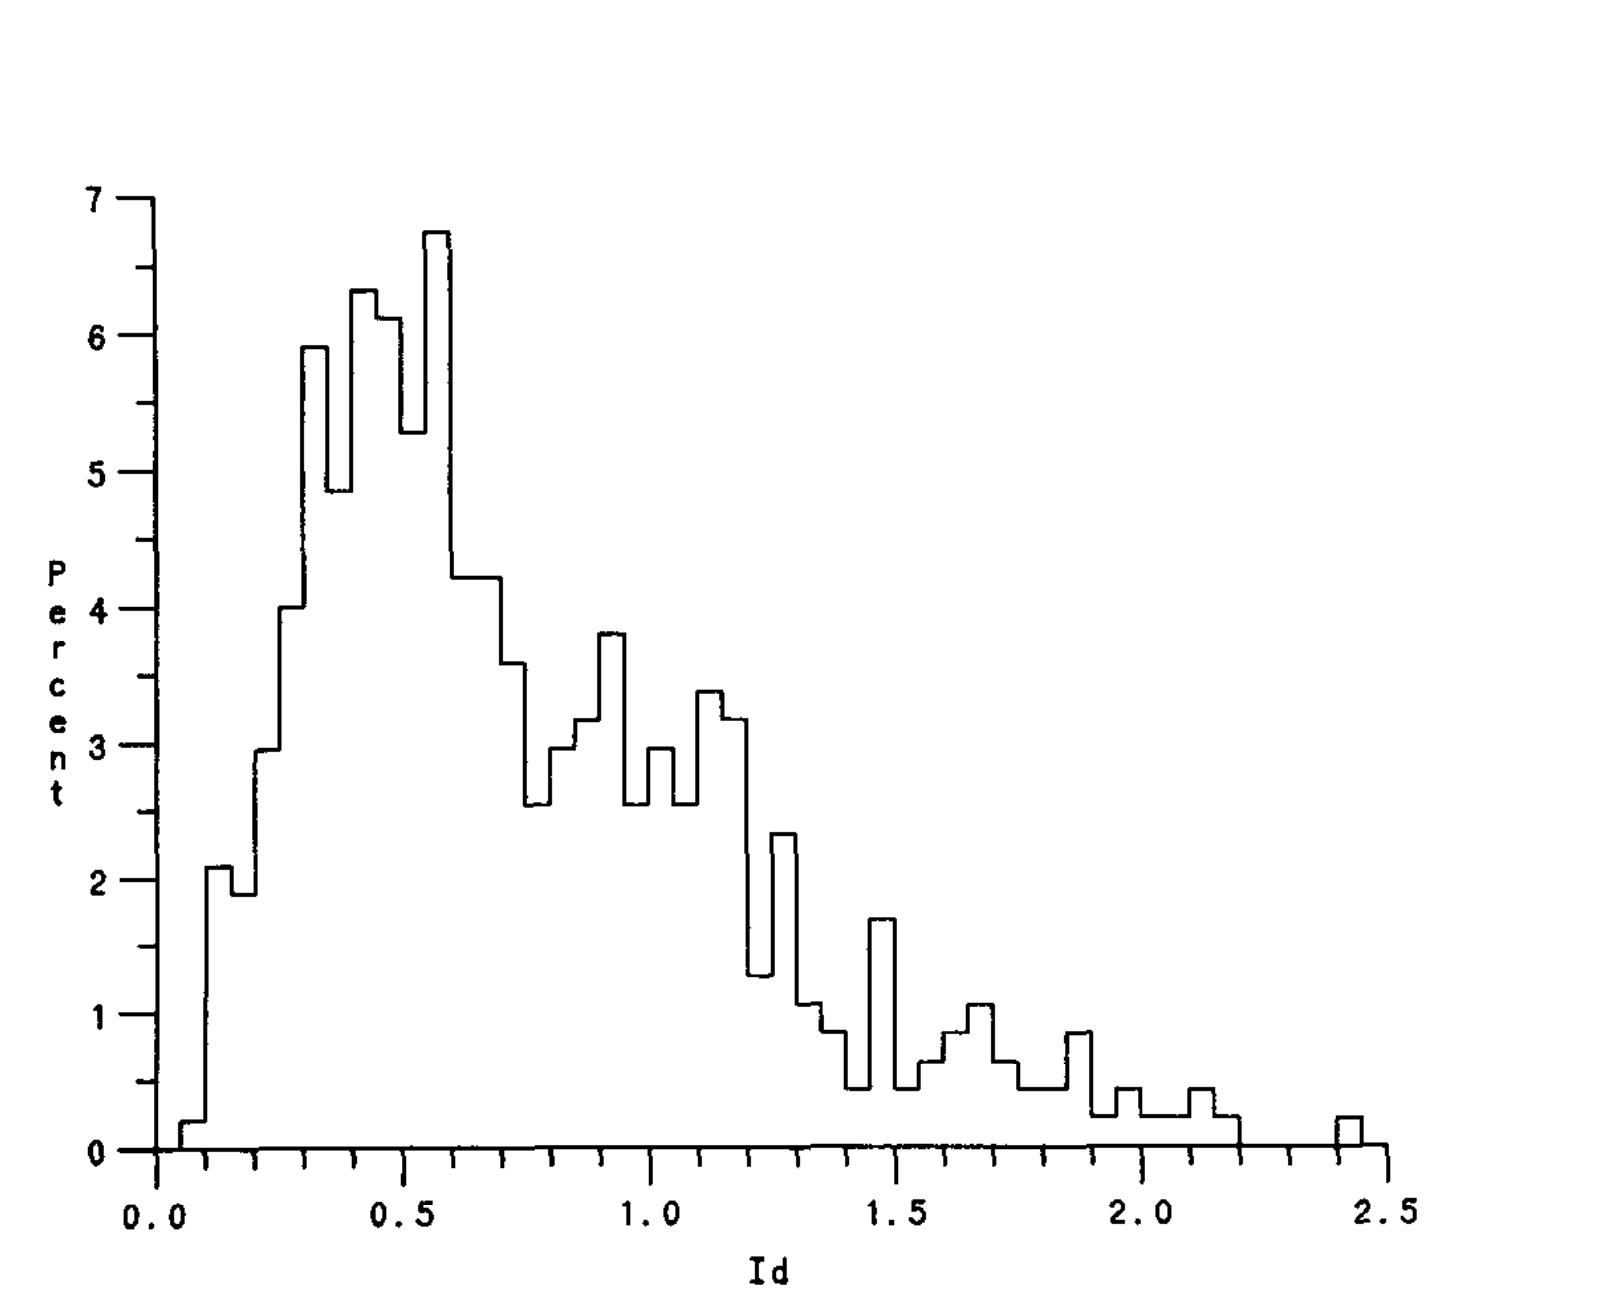
图14 · 相对调谐深度。 指数I_d=k/b在入选调谐细胞中的分布以约0.6附近为众数。比值描述相对调制,不直接揭示细胞类型或下游连接强弱。
 原文 Fig. 15 · PDF 第 12 页
图15 · 神经与肌电潜伏期分布。 实线为2584次首先增加的神经判定,虚线为43次EMG判定;分母是细胞—方向或肌肉—方向组合。神经分布较早,但两个分布的峰值、最早起点和逐试次传导时差不可混用。
讨论与解读边界
结果将宽方向调谐推广到三维自由伸手,并表明许多运动皮层响应在肌肉变化之前已出现。它并未证明全部运动相关细胞都编码同一变量,也未证明方向调谐只来自外部空间而与关节和肌肉无关。
作者讨论了皮层输出通过加权肌肉组合产生运动的可能性;本文没有直接测量该映射的突触连接或证明其线性形式。方向与终点混淆、单元顺序记录及跨场次EMG比较是主要限制。负放电预测与群体向量的负权重也不同:后者可以由真实放电低于拟合常数项产生,不要求存在负的脉冲频率。
思考问题
- 同时记录神经、运动学和多肌群EMG,并区分相同方向的不同终点后,哪些方向调谐和时间领先关系仍然成立?
- 若用带非负约束的模型及更密集的三维方向采样,偏好方向和调谐深度的估计会变化多少?