F08 · Rotational dynamics in motor cortex are consistent with a feedback controller
Hari Teja Kalidindi, Kevin P Cross, Timothy P Lillicrap, Mohsen Omrani, Egidio Falotico, Philip N Sabes & Stephen H Scott (2021) eLife, 10, e67256. doi:10.7554/eLife.67256
带感觉反馈的手臂控制网络即使删除层内循环连接,也可出现旋转群体轨迹。旋转与闭环控制相容,因此单靠jPCA旋转不能确定动力学来自局部递归还是系统输入。
核对版本:Zotero motor_control_interception_64 集合本地全文(PDF 全文提取,图注与正文互相校订,2026-09-18;图注所标页码均为 PDF 文件页序,非期刊印刷页码);Zotero 条目。
背景
运动皮层的旋转结构常被解释为内部模式生成,本文检验有肢体和感觉反馈的控制系统能否产生类似结构。
研究思路
训练有、无层内循环连接的网络完成姿势和伸手,再比较神经、肌肉和运动学信号,并以猴记录作参照。
方法
两连杆、六肌肉的手臂模型由两层各500个漏积分单元控制,接收目标、延迟关节状态及肌肉反馈。NO-REC删除层内循环权重,仍保留单元时间常数、层间传播及身体—感觉闭环,不能写成无任何内部动态或无任何循环。
jPCA比较反对称与无约束线性拟合,TME代理用于检验结构;猴数据包括运动皮层及体感/顶叶记录。多个区域和动物的池化群体不等于同时记录的完整回路。
主要结果
REC姿势网络的神经及部分感觉输入呈旋转结构,肌电的旋转拟合较弱;猴运动皮层以及体感/顶叶数据也出现旋转。这不意味着肌肉在数学上绝无旋转成分。
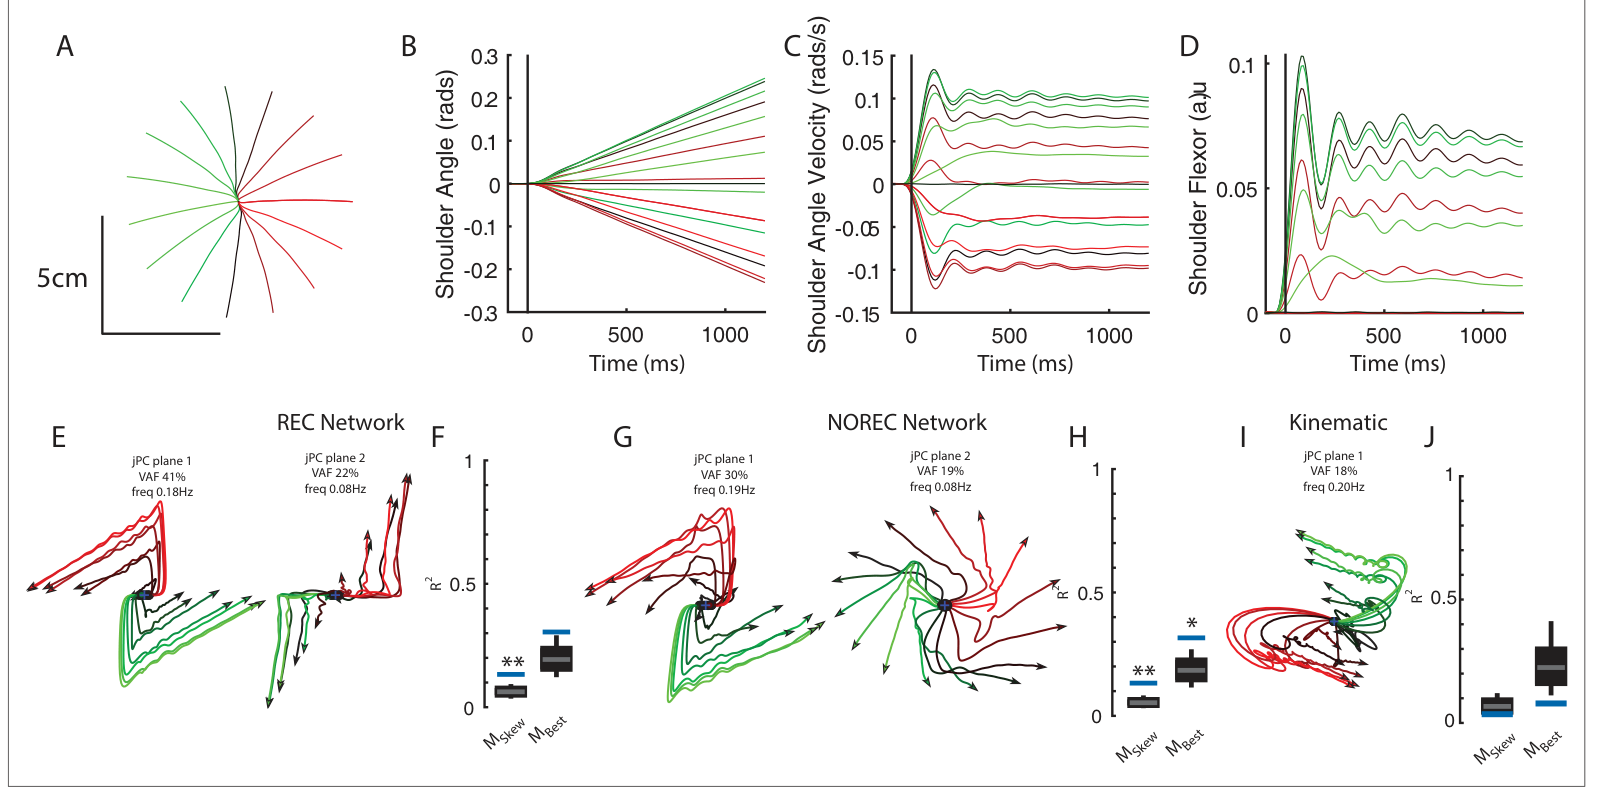
NO-REC仍可完成任务并显示旋转,构成“旋转必须由层内循环连接产生”的反例。正文报告姿势旋转拟合R²约0.43、伸手约0.46;无约束拟合分别约0.54/0.56,但相对TME未显著,不能把拟合优度大小与统计显著混为一谈。
本地版本图8与正文有数字不一致:伸手图内为1.7/0.88 Hz、36%+19%方差,正文为1.4/0.85 Hz、82%。保留这项原文差异,不把其中一组伪装成已消解的统一结果。反馈延迟、坐标和追踪任务会改变旋转结构。
逐图解读
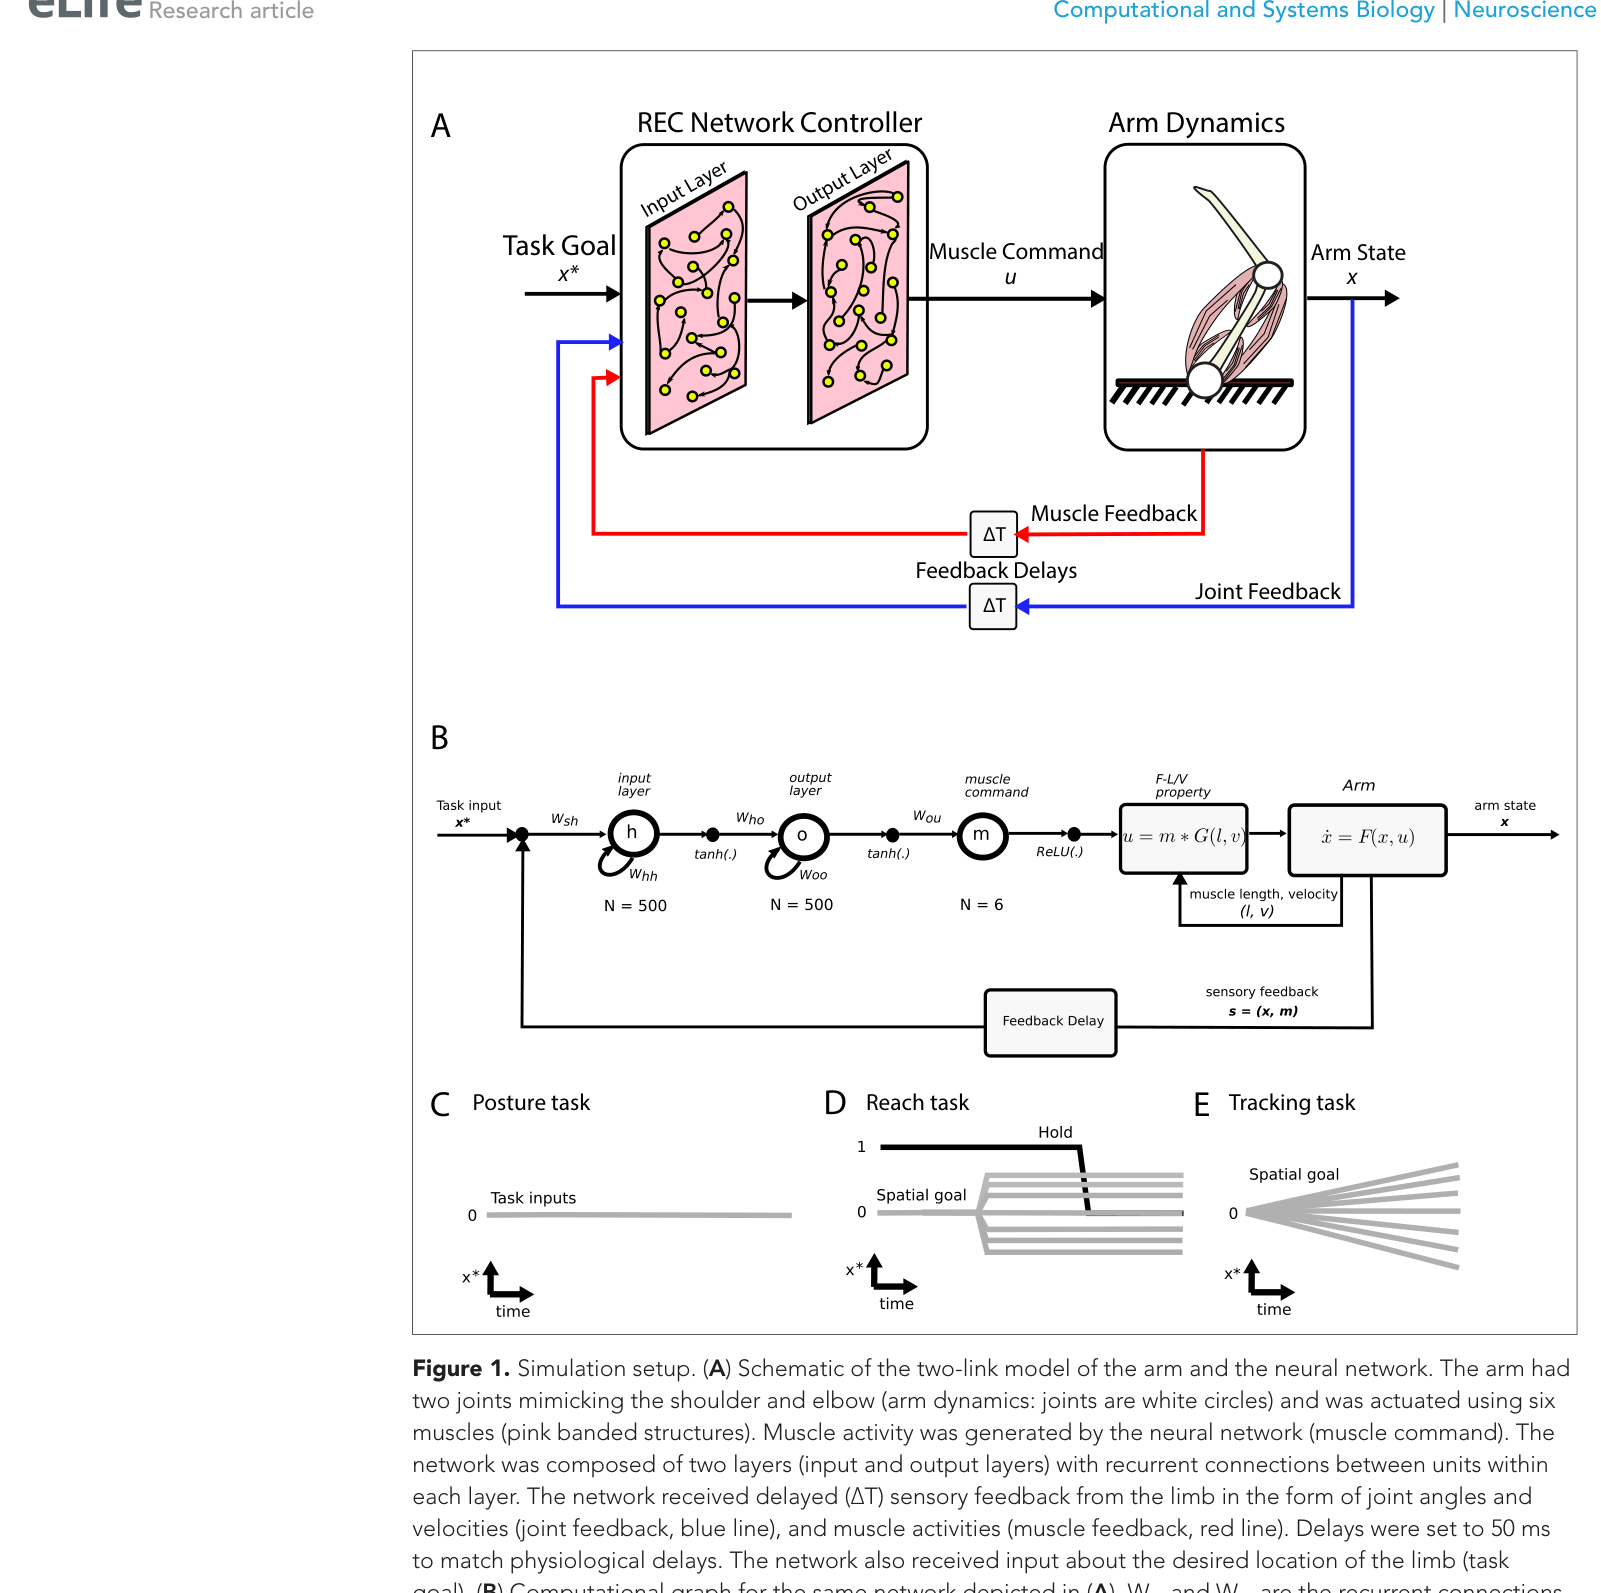 原文 Fig. 1 · PDF 第 4 页
图1 · 完整闭环模型。 包含网络、手臂及延迟反馈;NO-REC不等于整个系统开环。
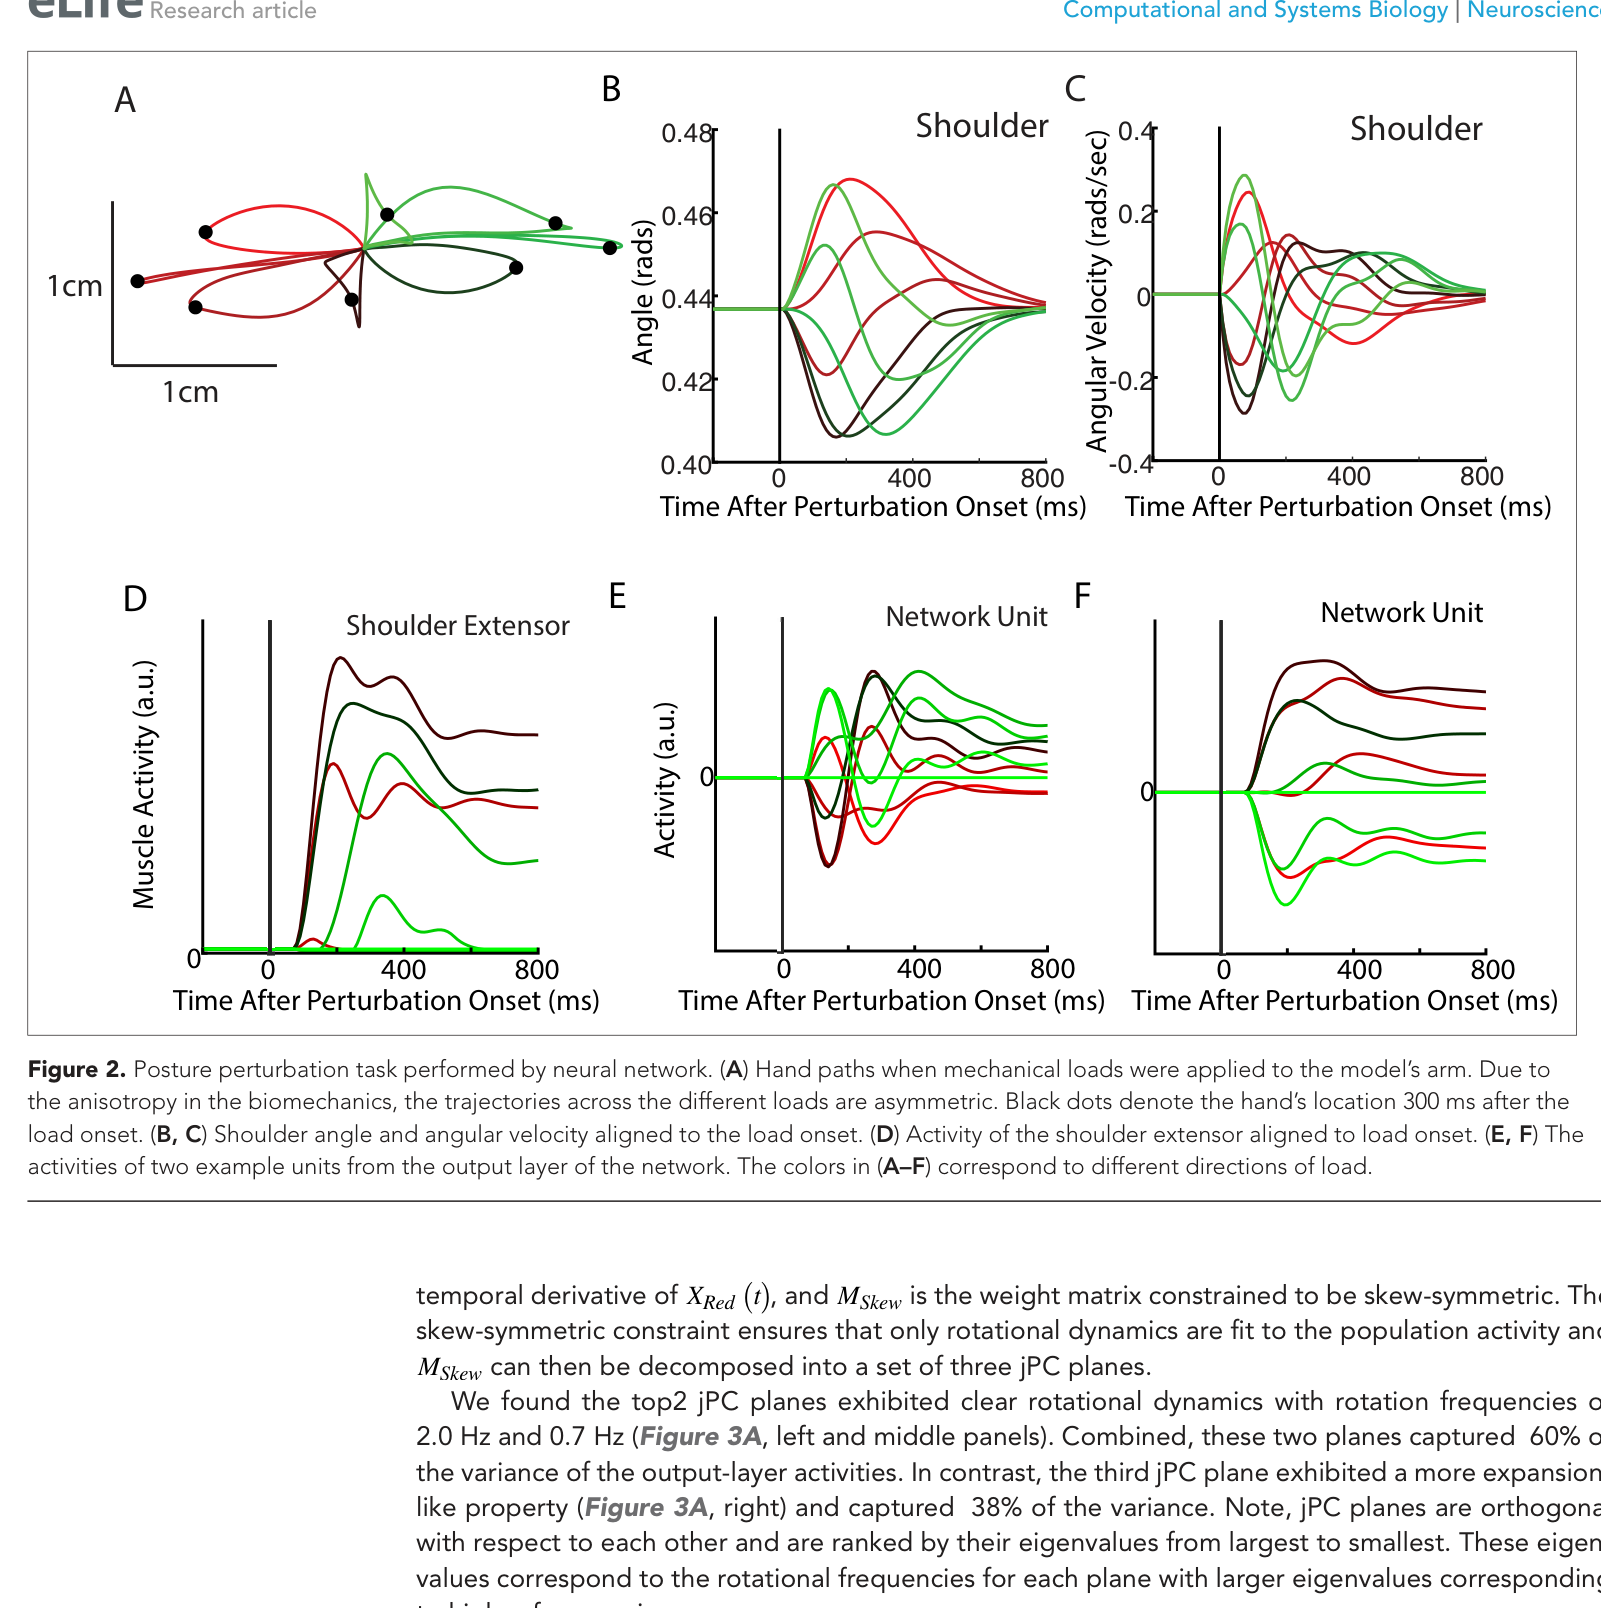 原文 Fig. 2 · PDF 第 5 页
图2 · 模型姿势纠正。 关节、肌肉和网络时程用于检查行为与控制。
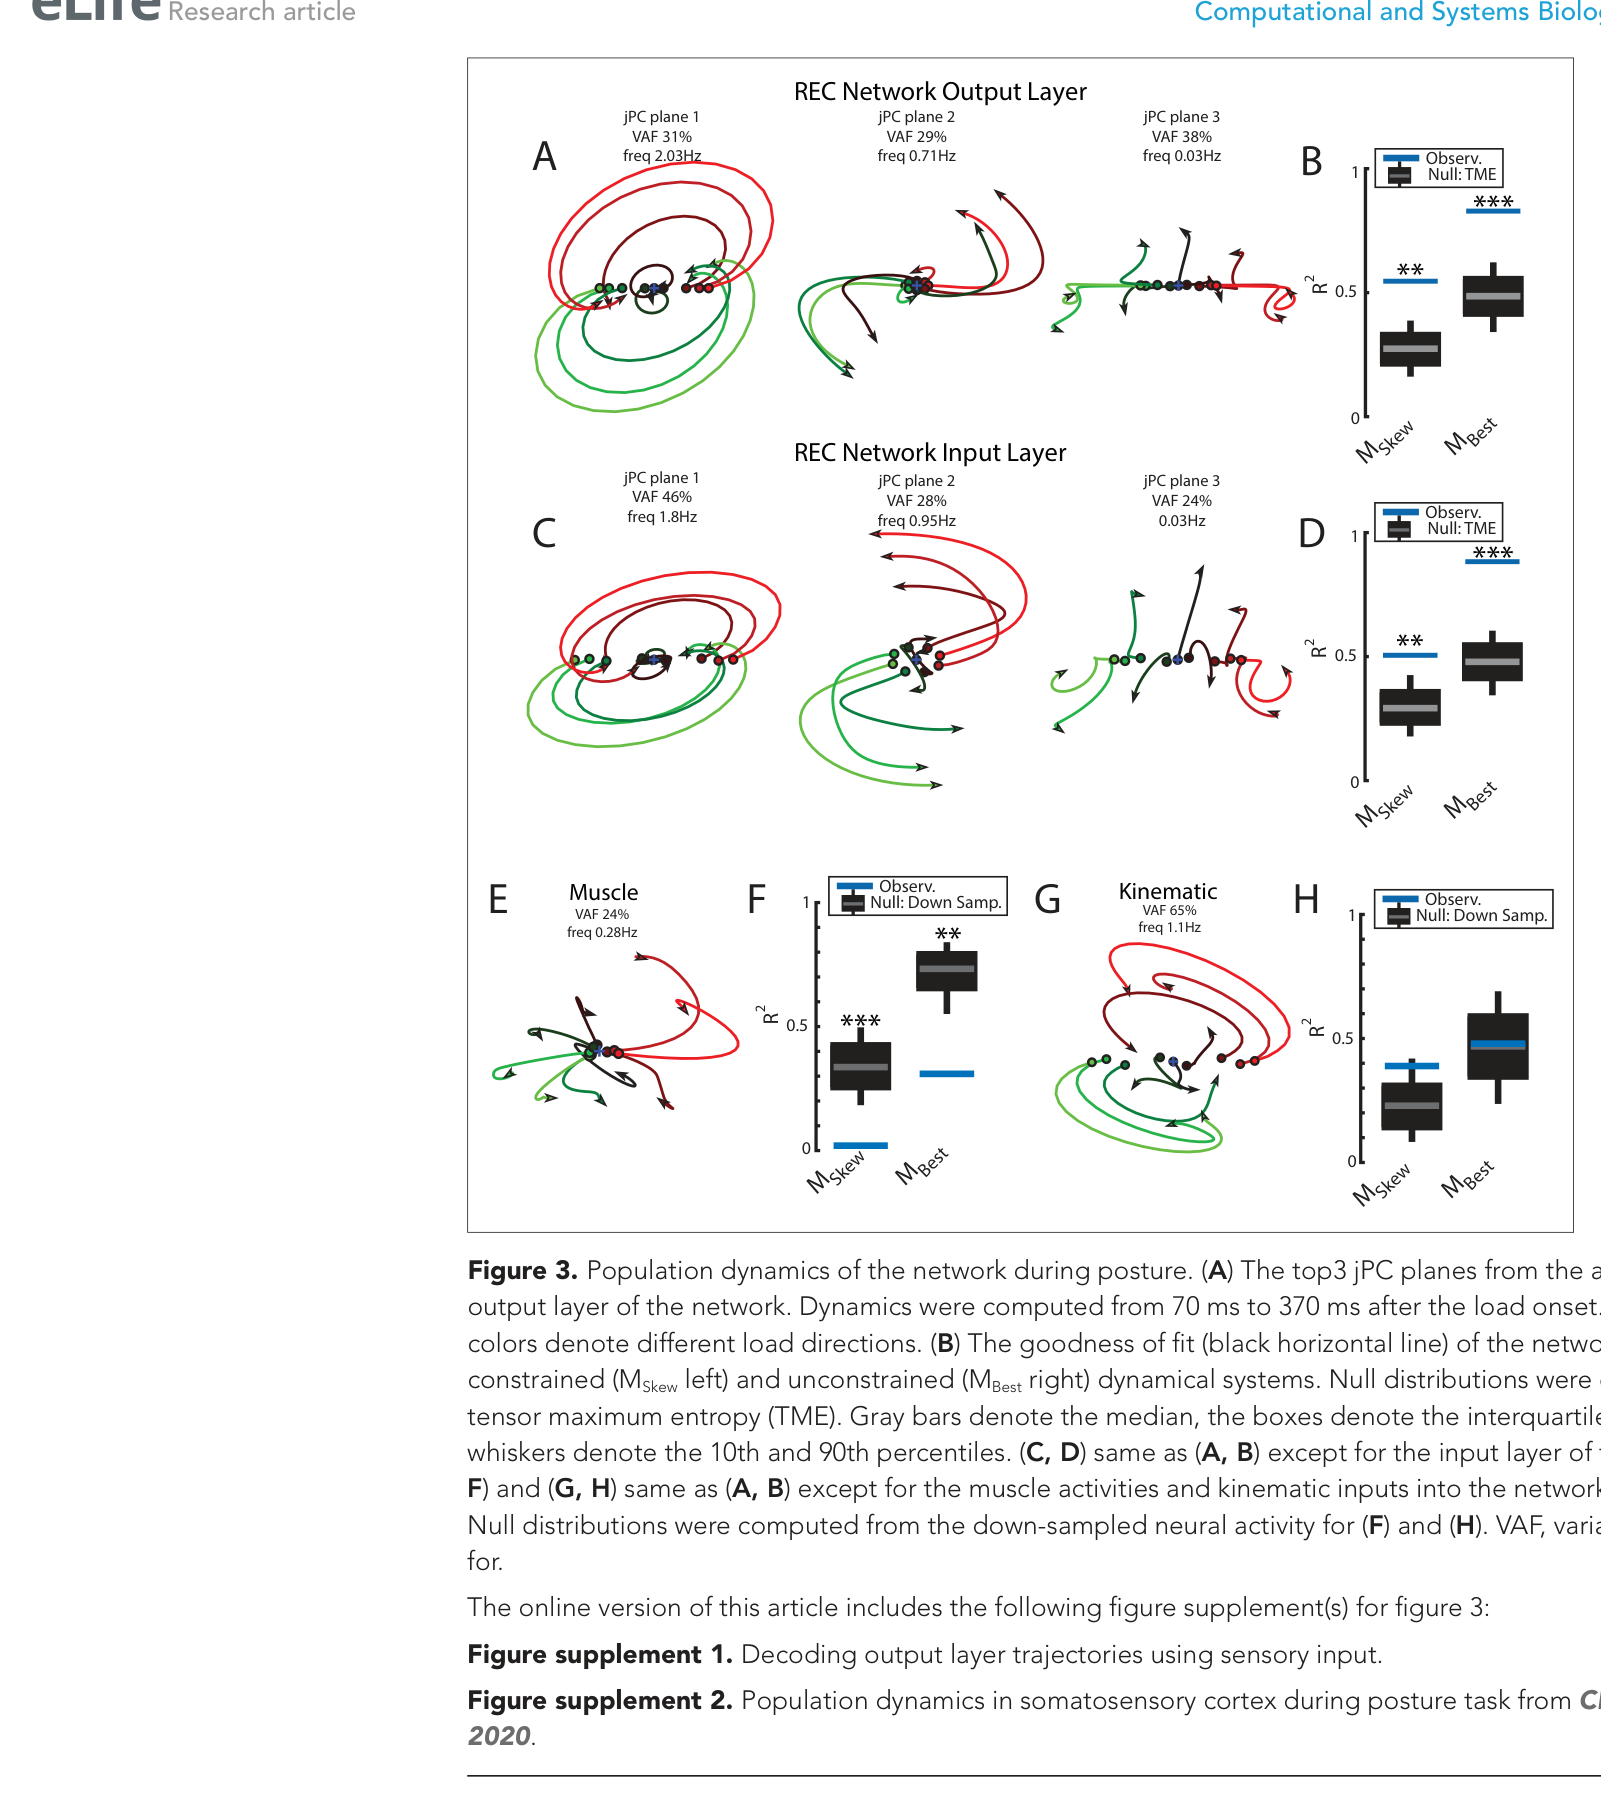 原文 Fig. 3 · PDF 第 6 页
图3 · 模型旋转分析。 神经、肌肉和运动学的维数及对照不同,比较时不能只看圆形外观。
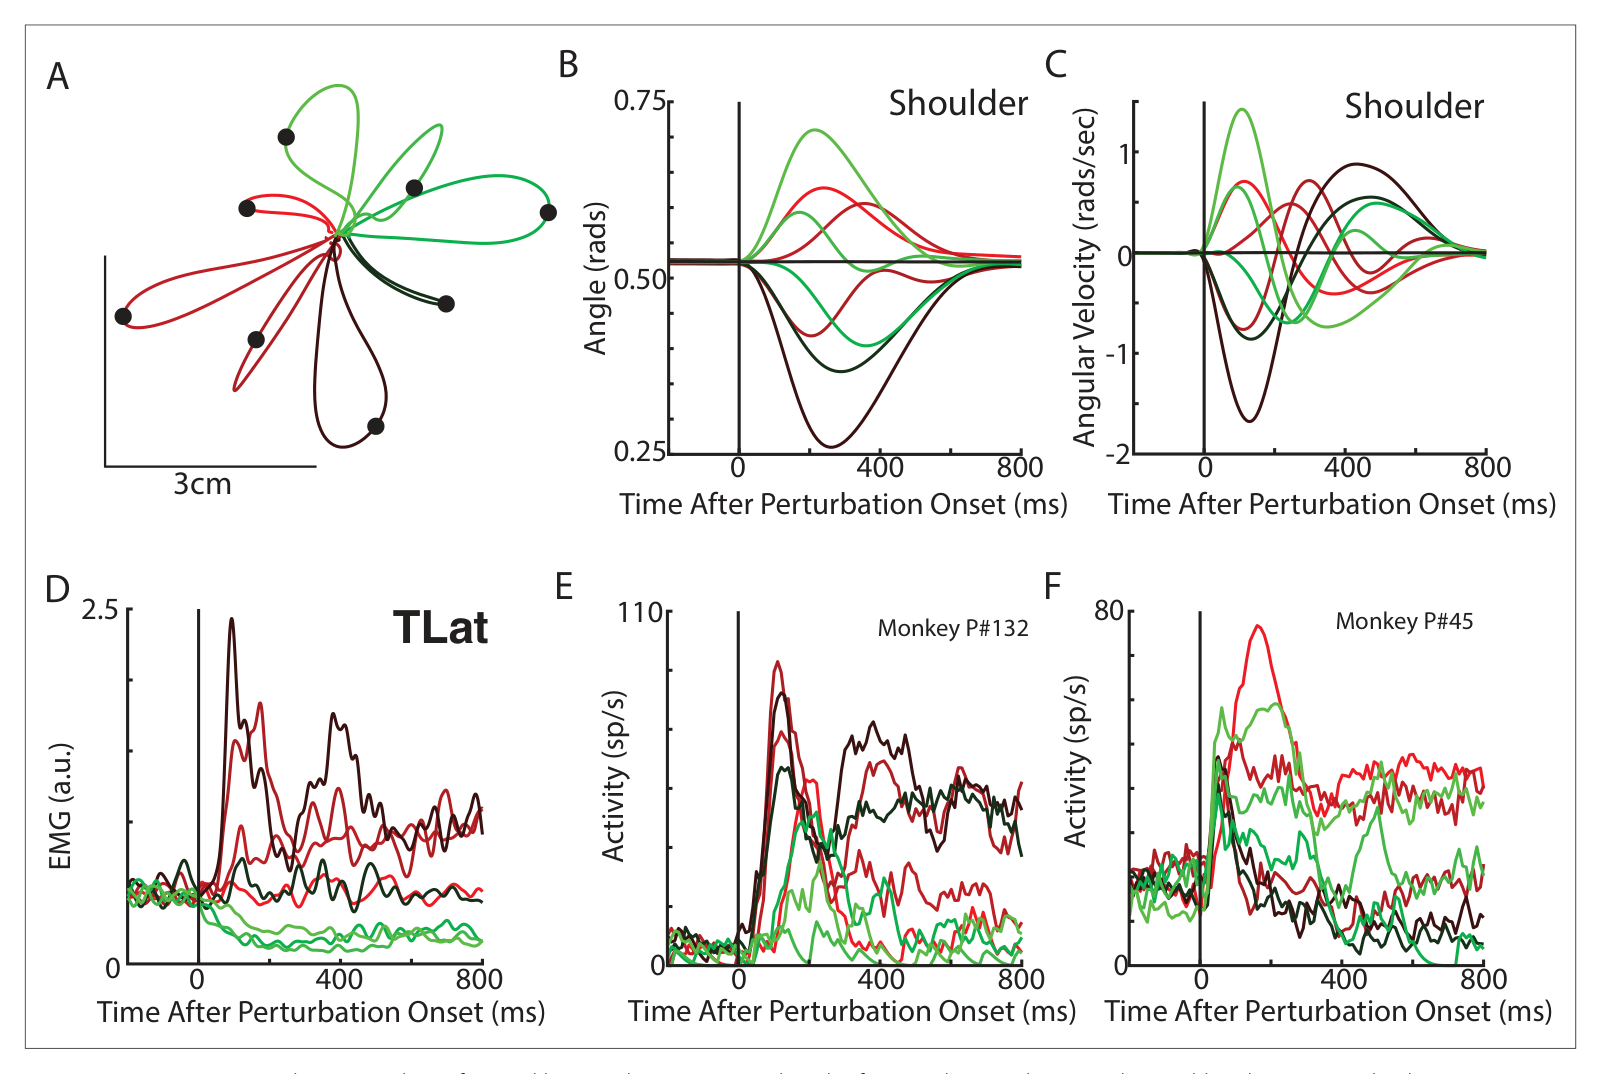 原文 Fig. 4 · PDF 第 7 页
图4 · 猴姿势扰动数据。 手轨迹、关节、肌电与示例细胞为后续群体分析提供背景。
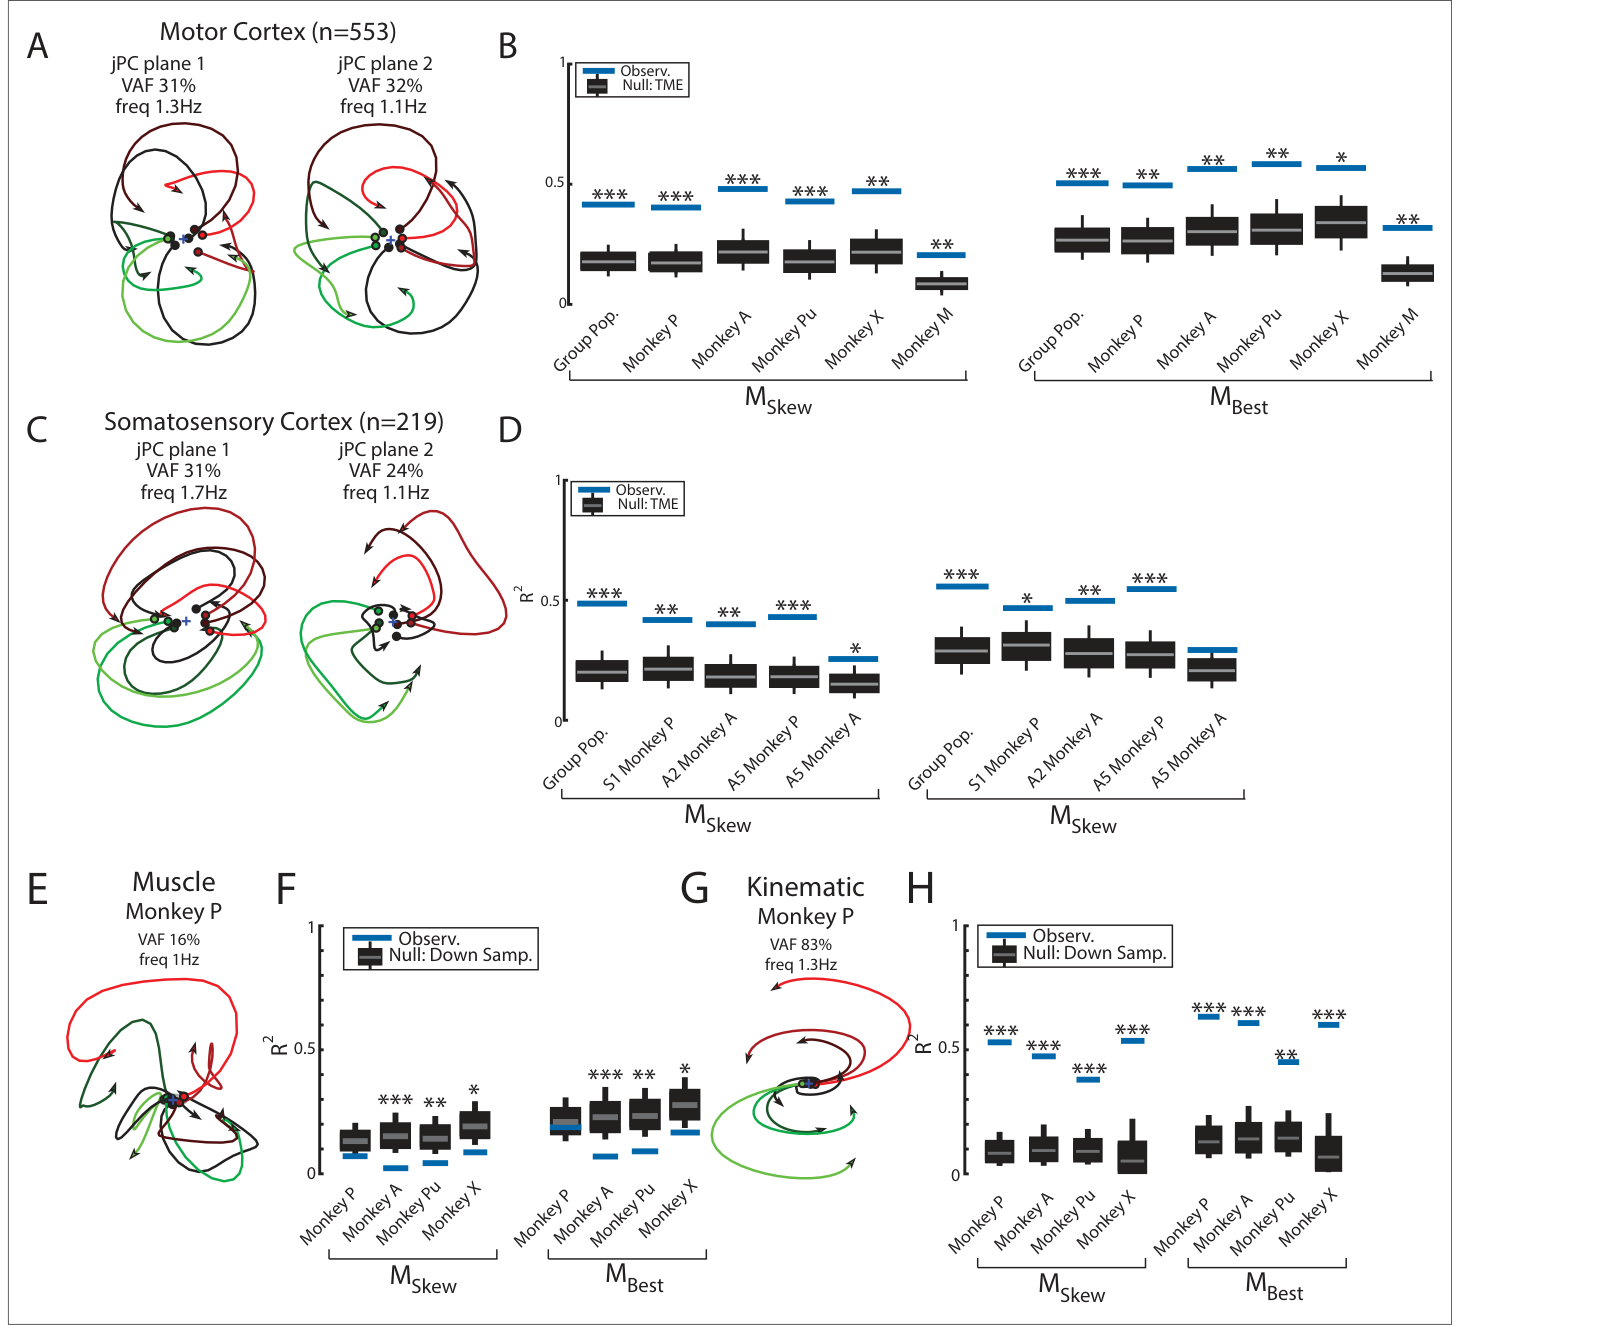 原文 Fig. 5 · PDF 第 9 页
图5 · 猴群体比较。 MC及体感/顶叶群体显示旋转;池化样本与单猴结果应区分。
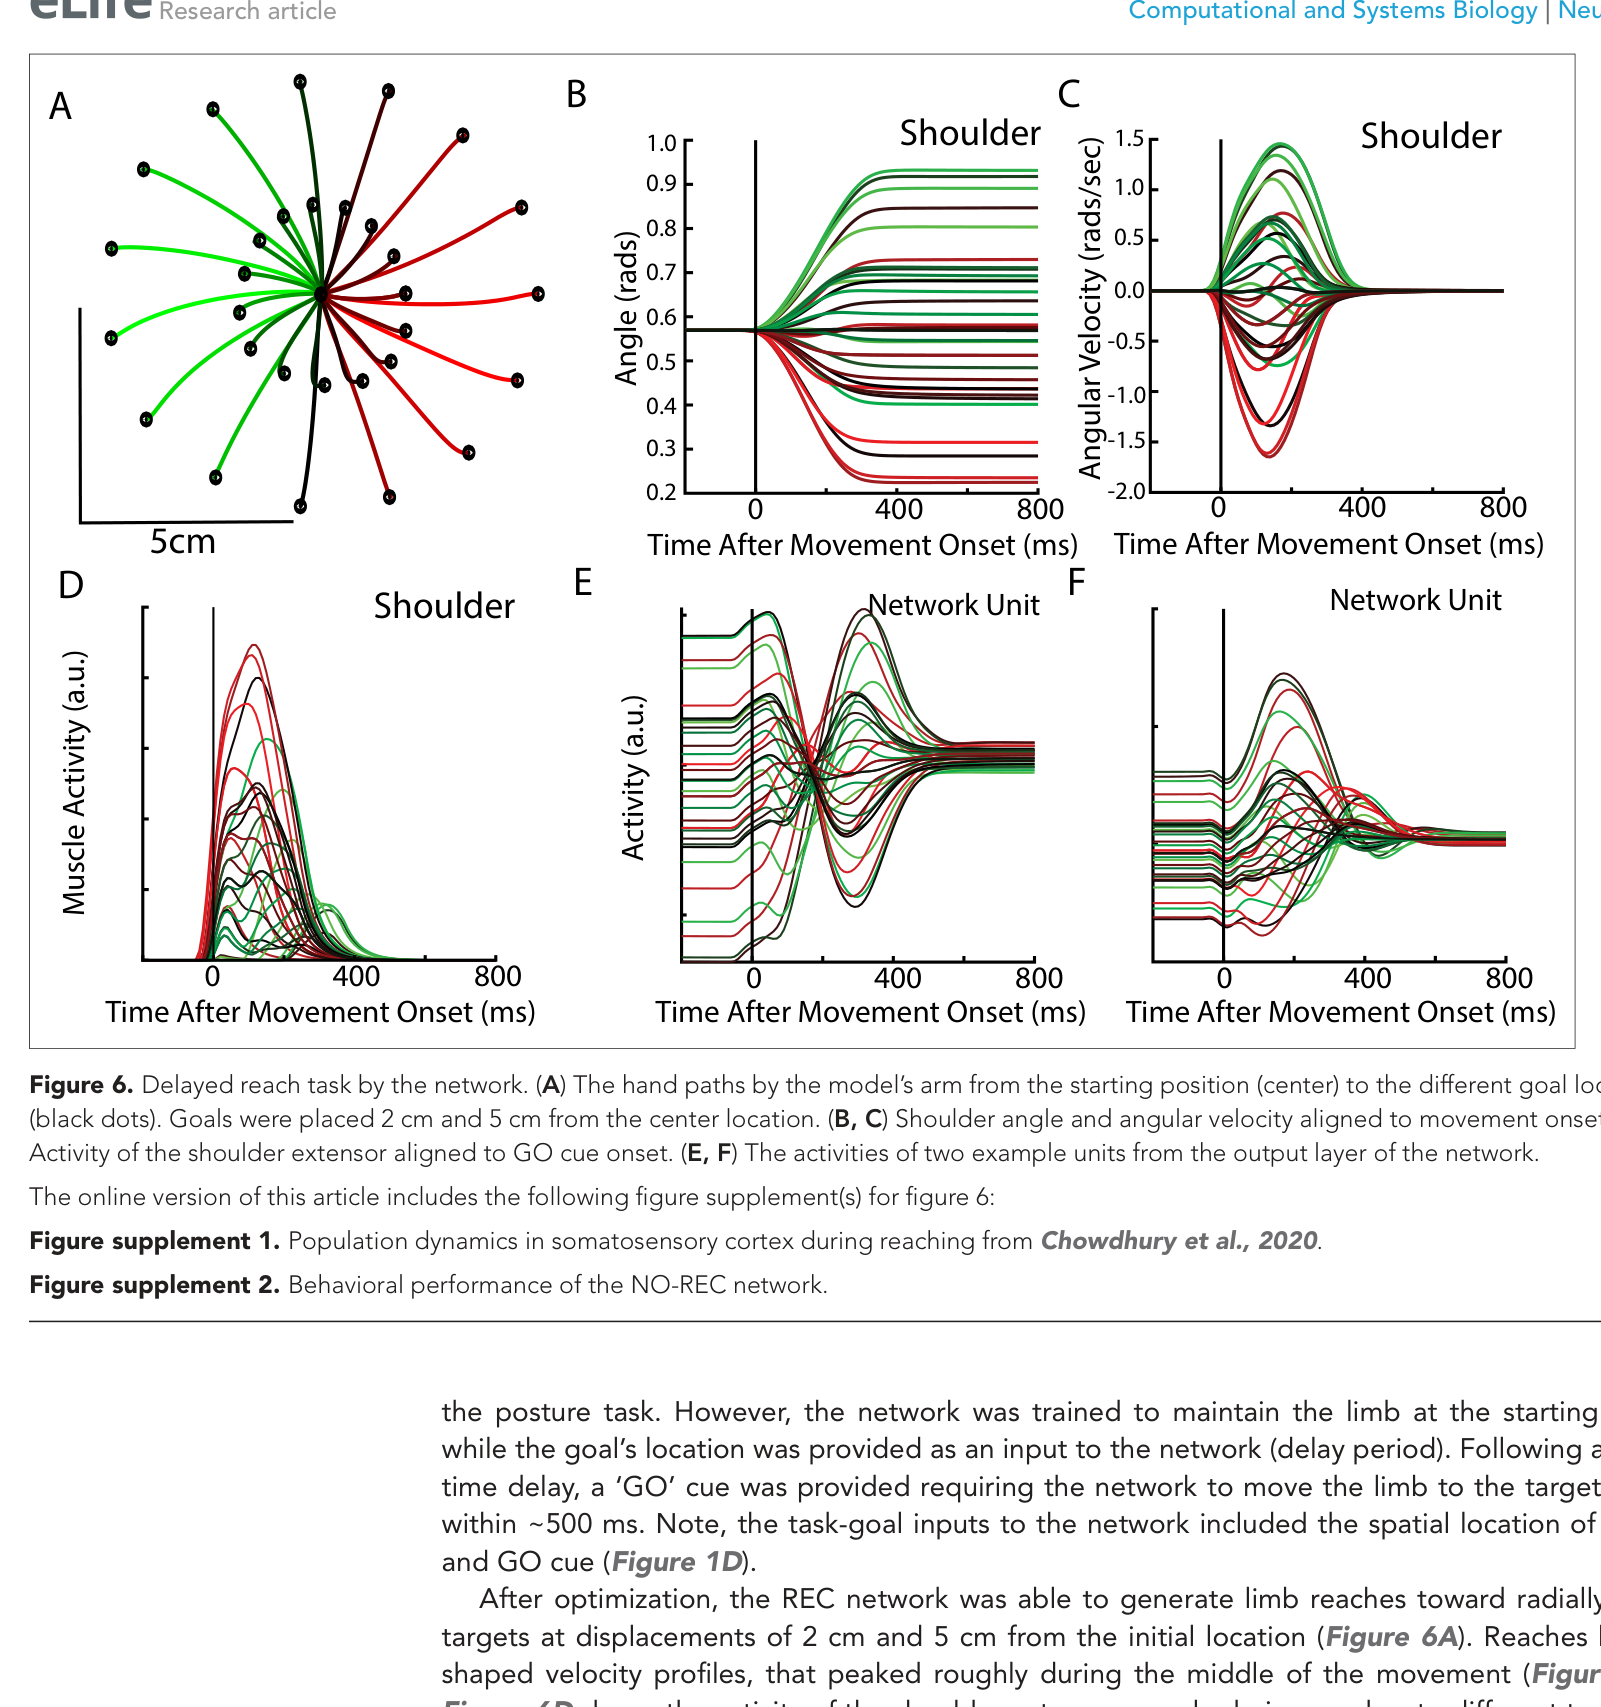 原文 Fig. 6 · PDF 第 10 页
图6 · 模型伸手。 行为和神经时程展示任务实现,并非新猴实验。
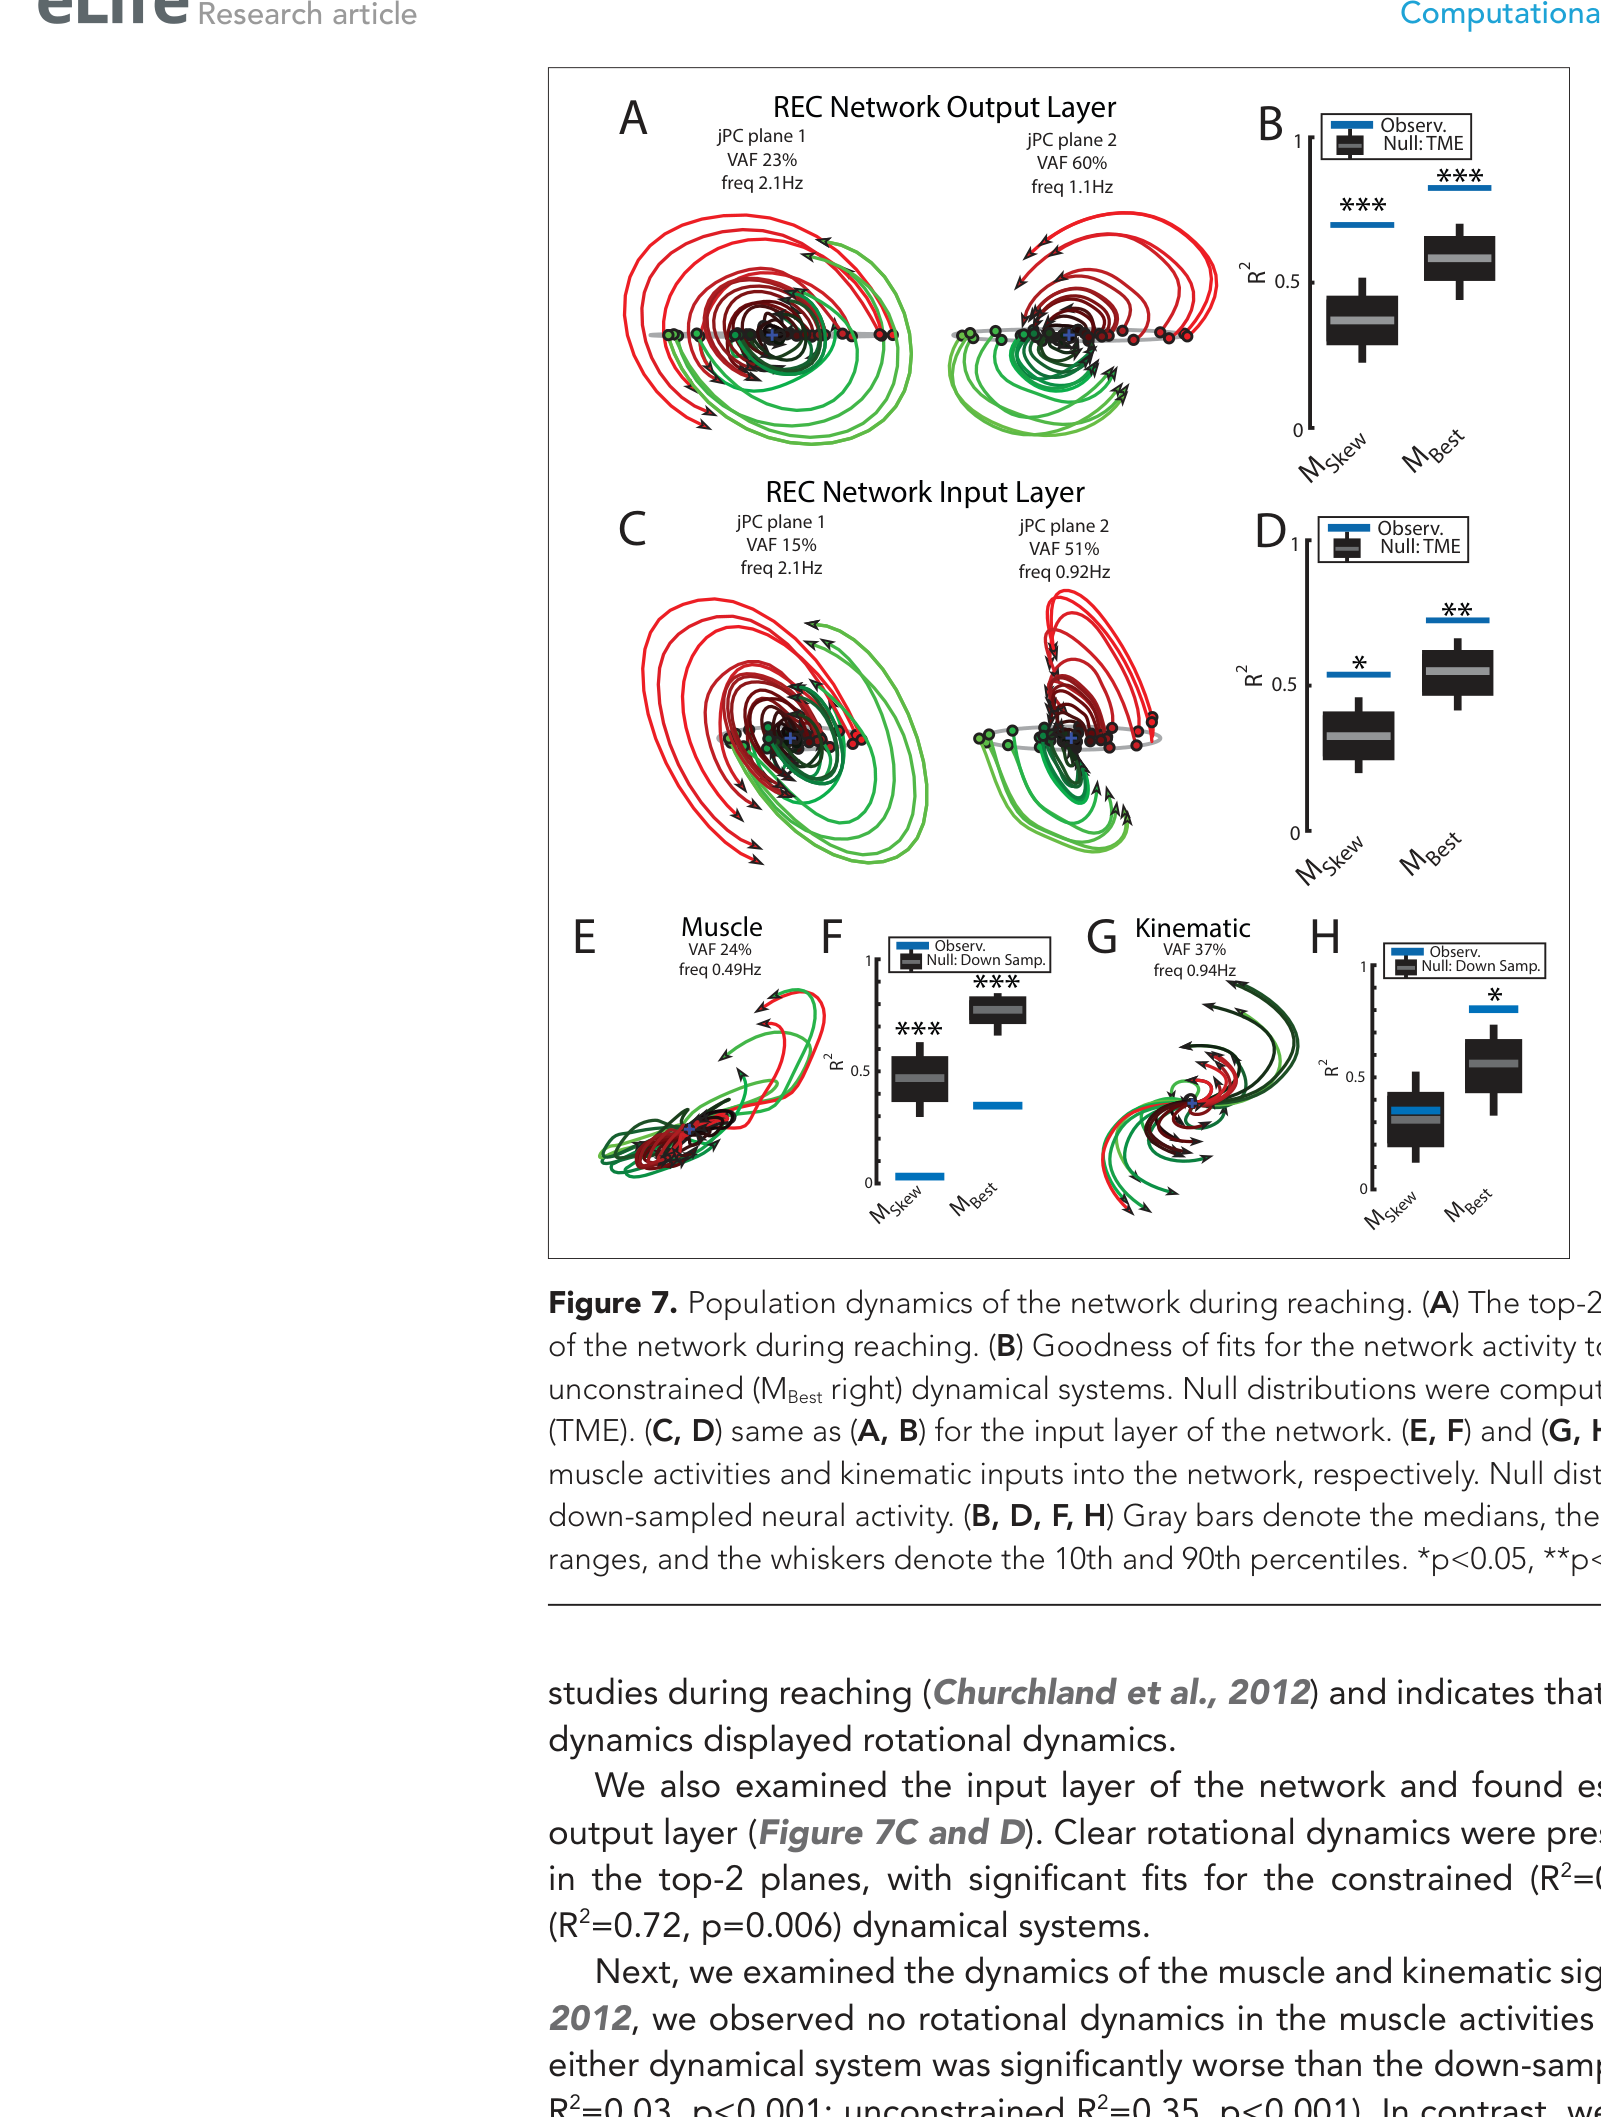 原文 Fig. 7 · PDF 第 11 页
图7 · REC伸手旋转。 比较两层、肌肉及运动学的投影与拟合。
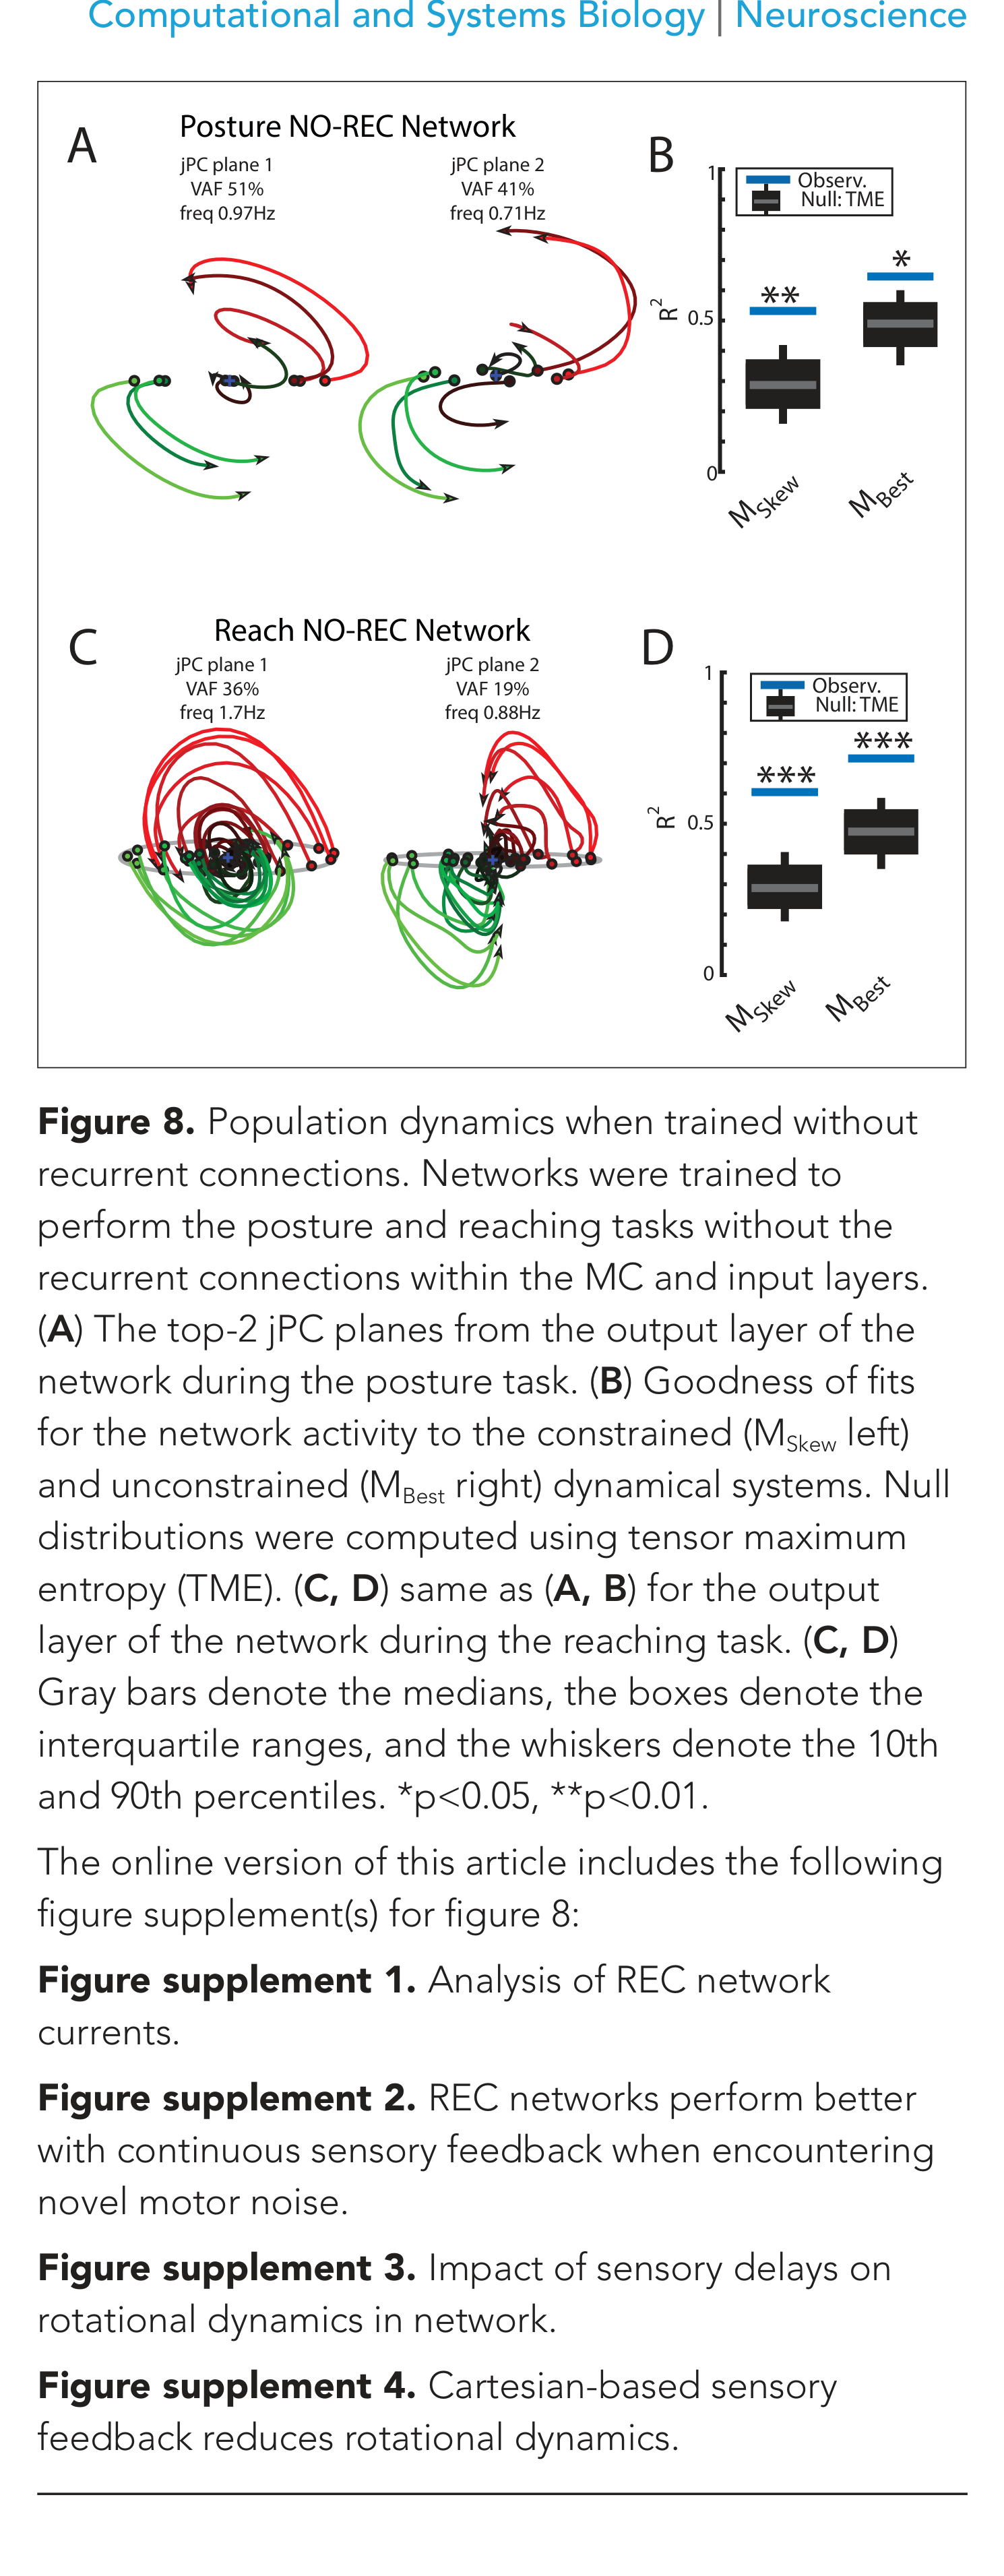 原文 Fig. 8 · PDF 第 12 页
图8 · 删除层内循环后的结果。 姿势与伸手均显示旋转;图内和正文数字差异见主要结果,不能从正文数字覆盖图中标签。
 原文 Fig. 9 · PDF 第 15 页
图9 · 匀速追踪。 该任务旋转较弱,说明其依赖任务和输入结构,而非所有控制器都必然旋转。
讨论与解读边界
模型证明一种可能来源,不能估计真实皮层中局部与外部动力学的比例。模型内感觉电流较大是特定训练解的性质;准备期变化也不能由尚未发生的运动反馈充分解释。输入驱动和局部递归可共同作用,旋转既不是自主振荡器的充分证据,也不是所有反馈控制必有的标志。
思考问题
- 匹配轨迹与输出后,改变反馈延迟能否产生可区分局部递归和闭环输入的相位响应?
- 在等长、伸手和追踪任务中,哪些旋转差异可由运动学及分析窗口解释,哪些仍需神经机制?