H03 · Neural responses during interception of real and apparent circularly moving stimuli in motor cortex and area 7a
Hugo Merchant, Alexa Battaglia-Mayer & Apostolos P. Georgopoulos (2004) Cerebral Cortex, 14(3), 314–331. doi:10.1093/cercor/bhg130
圆周拦截中,M1和7a的活动与目标、力及剩余时间的关联随连续显示和离散闪现而变化。结果支持情境依赖的感觉运动处理,但不构成两条专属通路的因果双重分离。
核对版本:Zotero motor_control_interception_64 集合本地全文(PDF 全文提取,图注与正文互相校订,2026-09-18;图注所标页码均为 PDF 文件页序,非期刊印刷页码);Zotero 条目。
背景
连续运动和离散闪现都能支持拦截,却提供不同空间、时间线索。本文检验这种差别如何反映在顶叶与运动皮层。
研究思路
在拦截、NOGO与静态目标任务间比较,再用含自回归误差的时变回归分析目标角度、tau和手力,检查固视与肌电对照。
方法
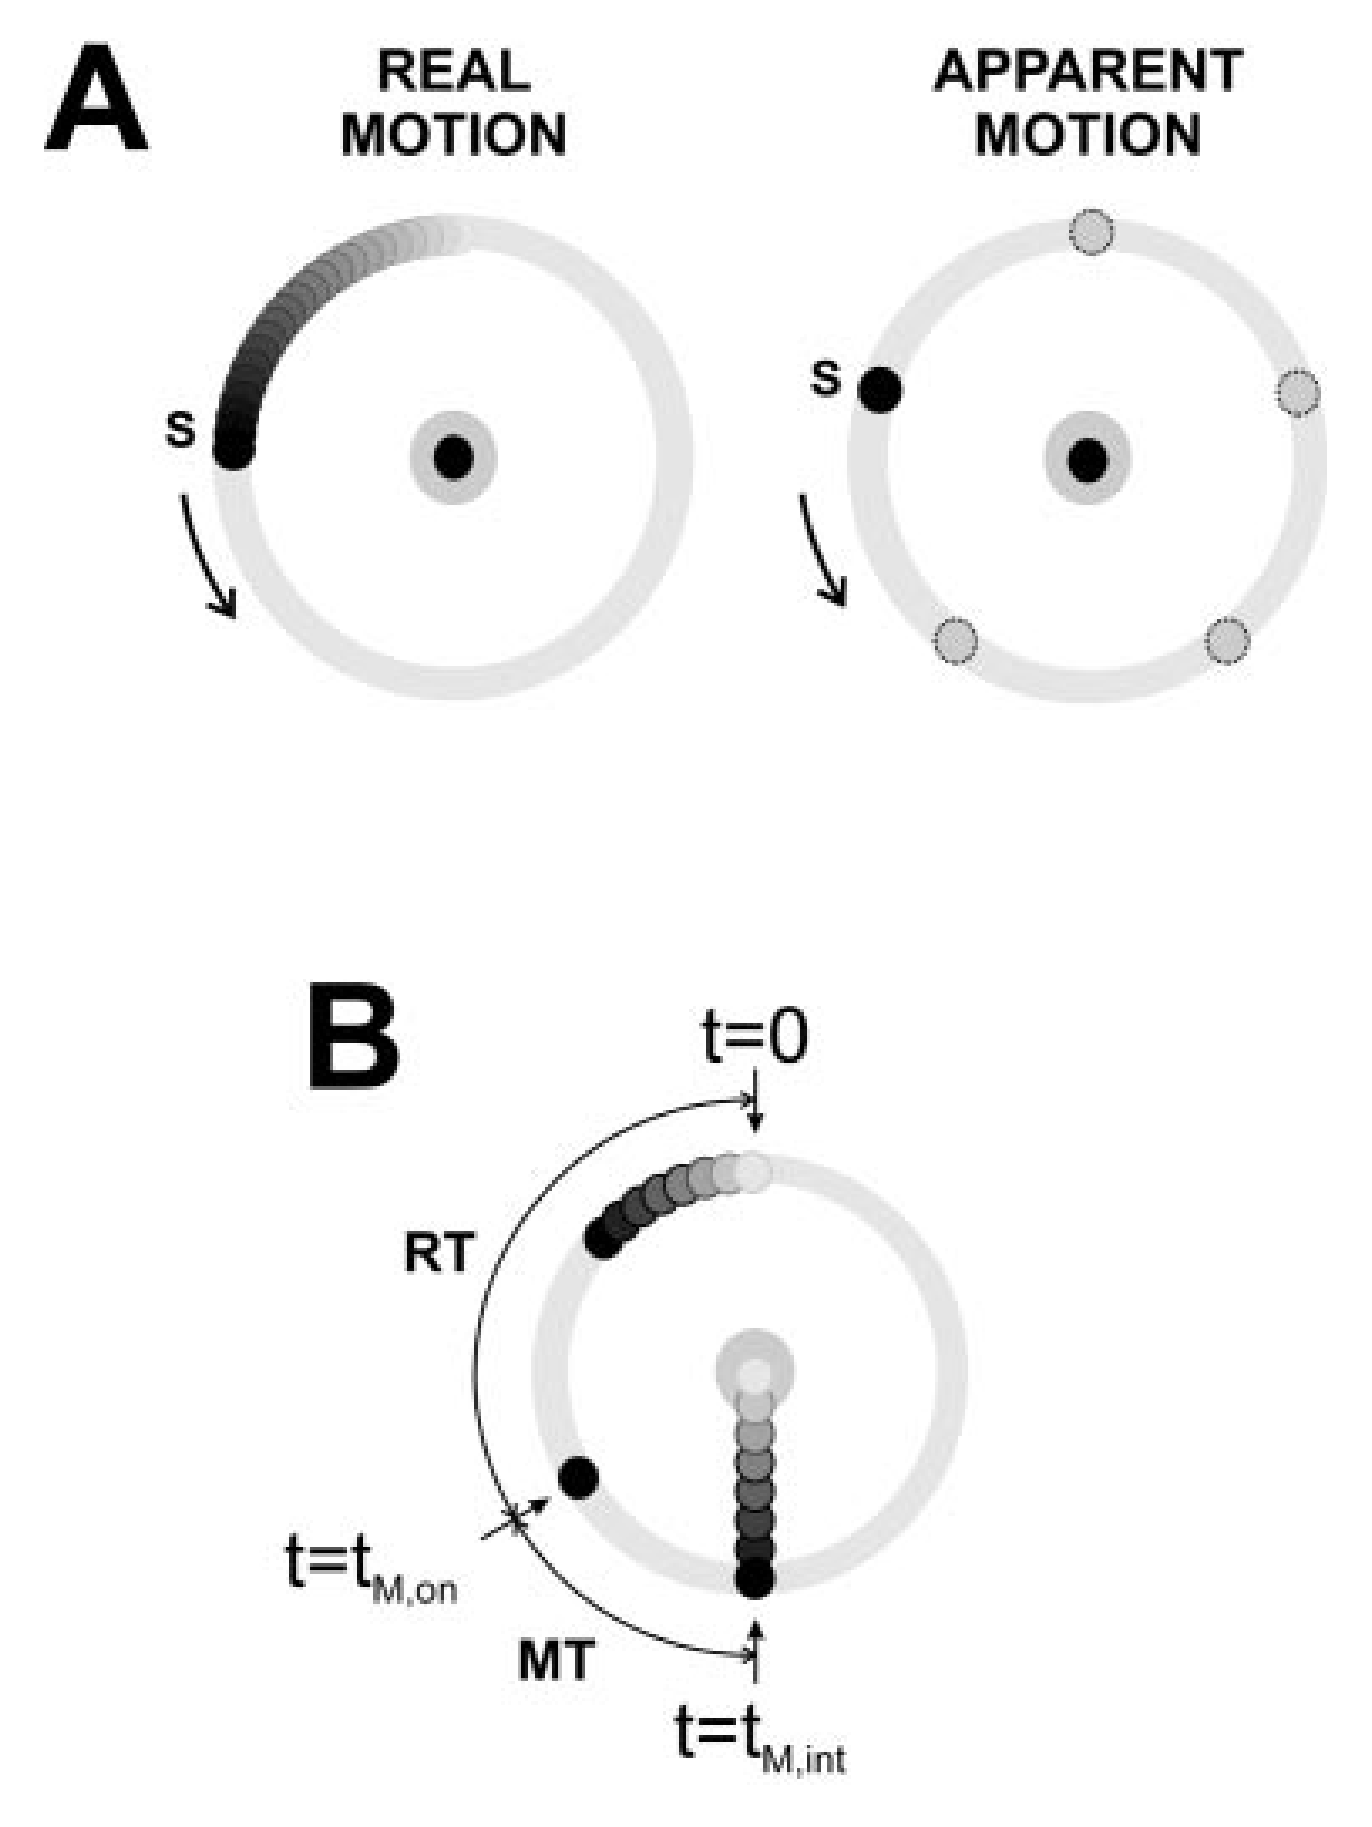
两只恒河猴以半等距操纵杆产生力脉冲,在圆环6点钟方向拦截目标。real指屏幕上平滑显示,apparent指五个位置依次闪现,均非真实物体。分析M1的776和7a的766个细胞;肌电在独立时段记录。
回归先处理眼位相关项,再拟合角度正余弦、目标到会合点的tau、竖直力及其变化率。每个运动条件搜索405个时移组合并取最大R²,不是留出数据预测。方法中角度和tau时移为−160至160 ms,力的共同移位为0至160 ms,步长40 ms;结果段概述范围不够准确,解释力领先效应必须注意搜索边界。
主要结果
拦截中有任务效应的M1细胞为502/776,7a为450/766;NOGO分别为347/776和436/766。不同统计窗口、检验与筛选产生不同分母,不能交叉混用。
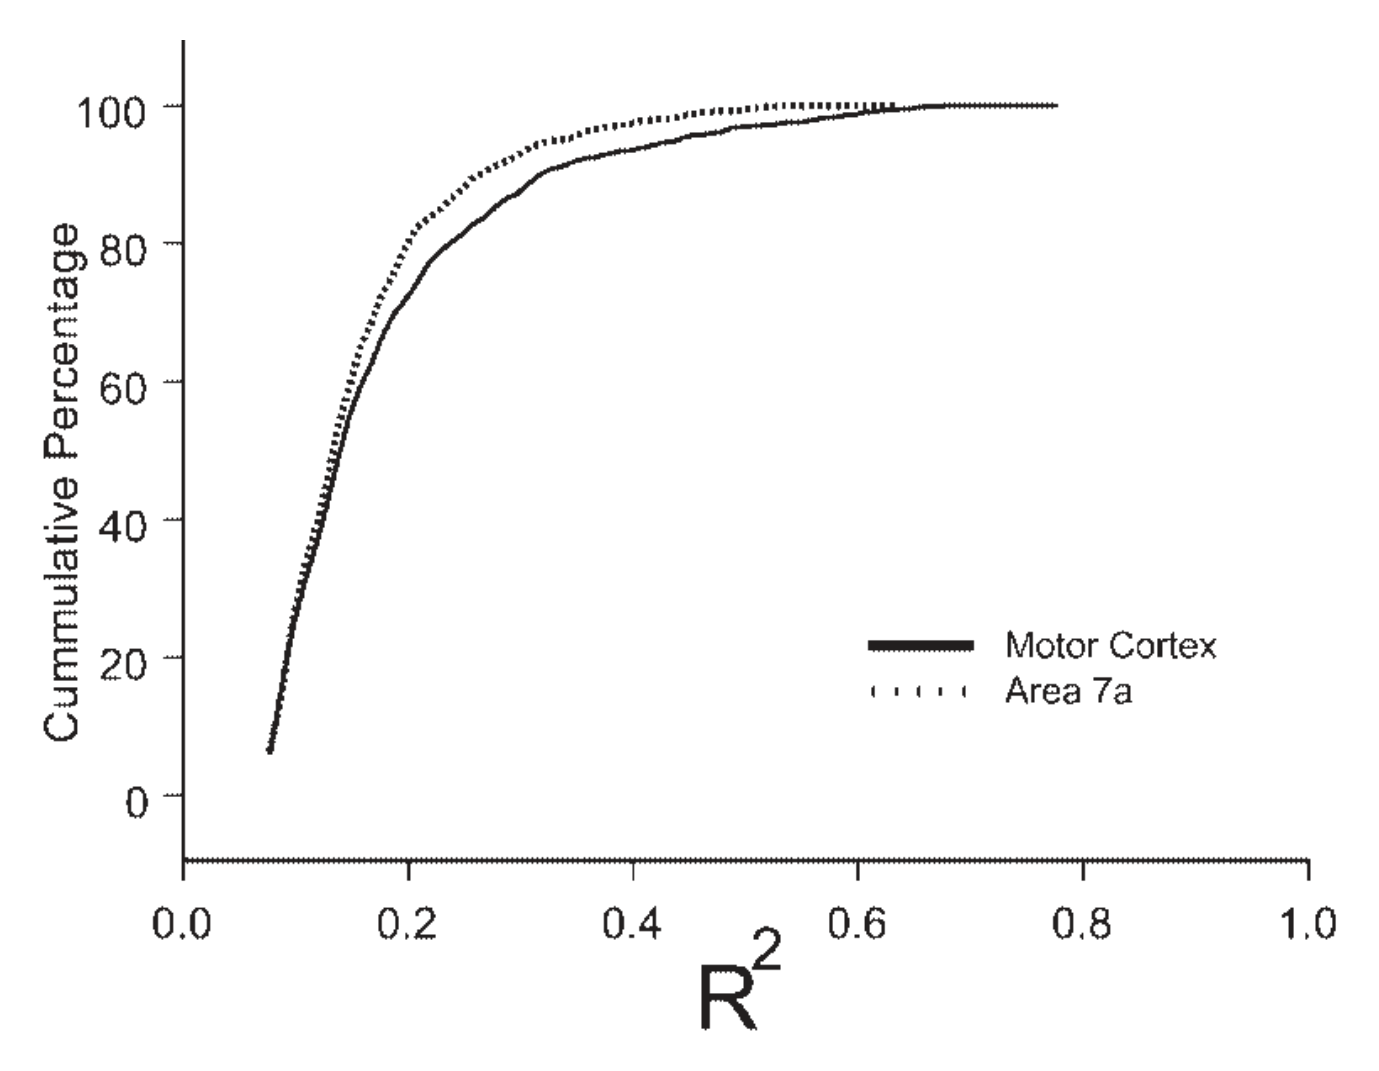
显著时变模型对应M1的515个细胞、7a的356个,显著模型R²中位数约0.138和0.125。real时M1首要项较常为力,7a为角度;apparent时M1的tau重要性增加。表2中38/459=8.3%和270/868=31.1%是各条件显著参数项总计中的构成比例:459与868是该列四项计数之和,后者甚至超过M1细胞总数,不能称为8.3%和31.1%的全部M1神经元。
图8显著关联的phi均为负,意味着两个显著效应倾向分属不同细胞,不能写成超机会地在同一细胞共现。某些细胞仍有多项效应,这与负关联不矛盾。
最优时移显示M1力项较常领先、7a刺激项较常滞后;这些是受搜索范围、时序相关和模型选择影响的统计结果,不能当作传导时间或7a到M1的因果路径。固视对照保留主要模式,但部分细胞仍受固视条件影响。
逐图解读
 原文 Fig. 1 · PDF 第 2 页
图1 · 两种显示与力脉冲任务。 real仍是屏幕显示,光标由力控制。
 原文 Fig. 2 · PDF 第 4 页
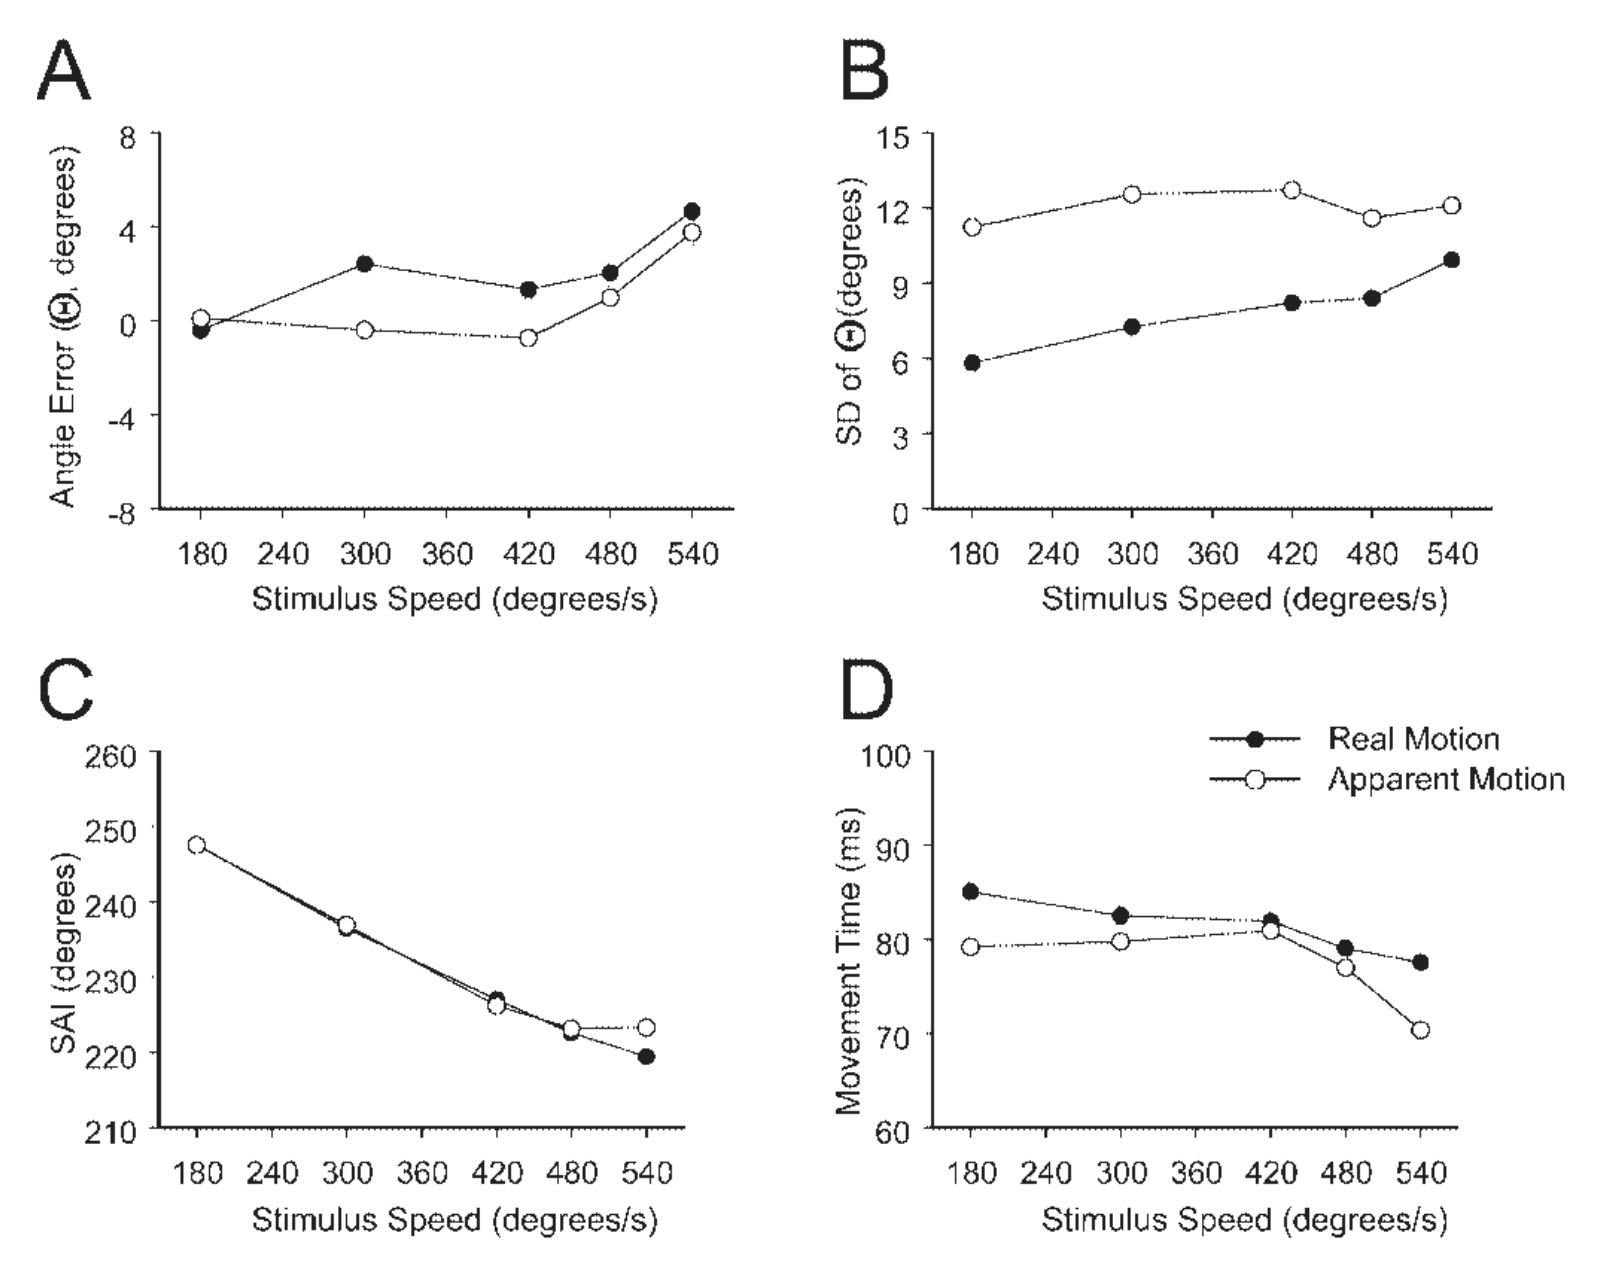
图2 · 行为误差与时程。 apparent的变异较大;不能只凭启动角和运动时长确定唯一策略。
 原文 Fig. 3 · PDF 第 5 页
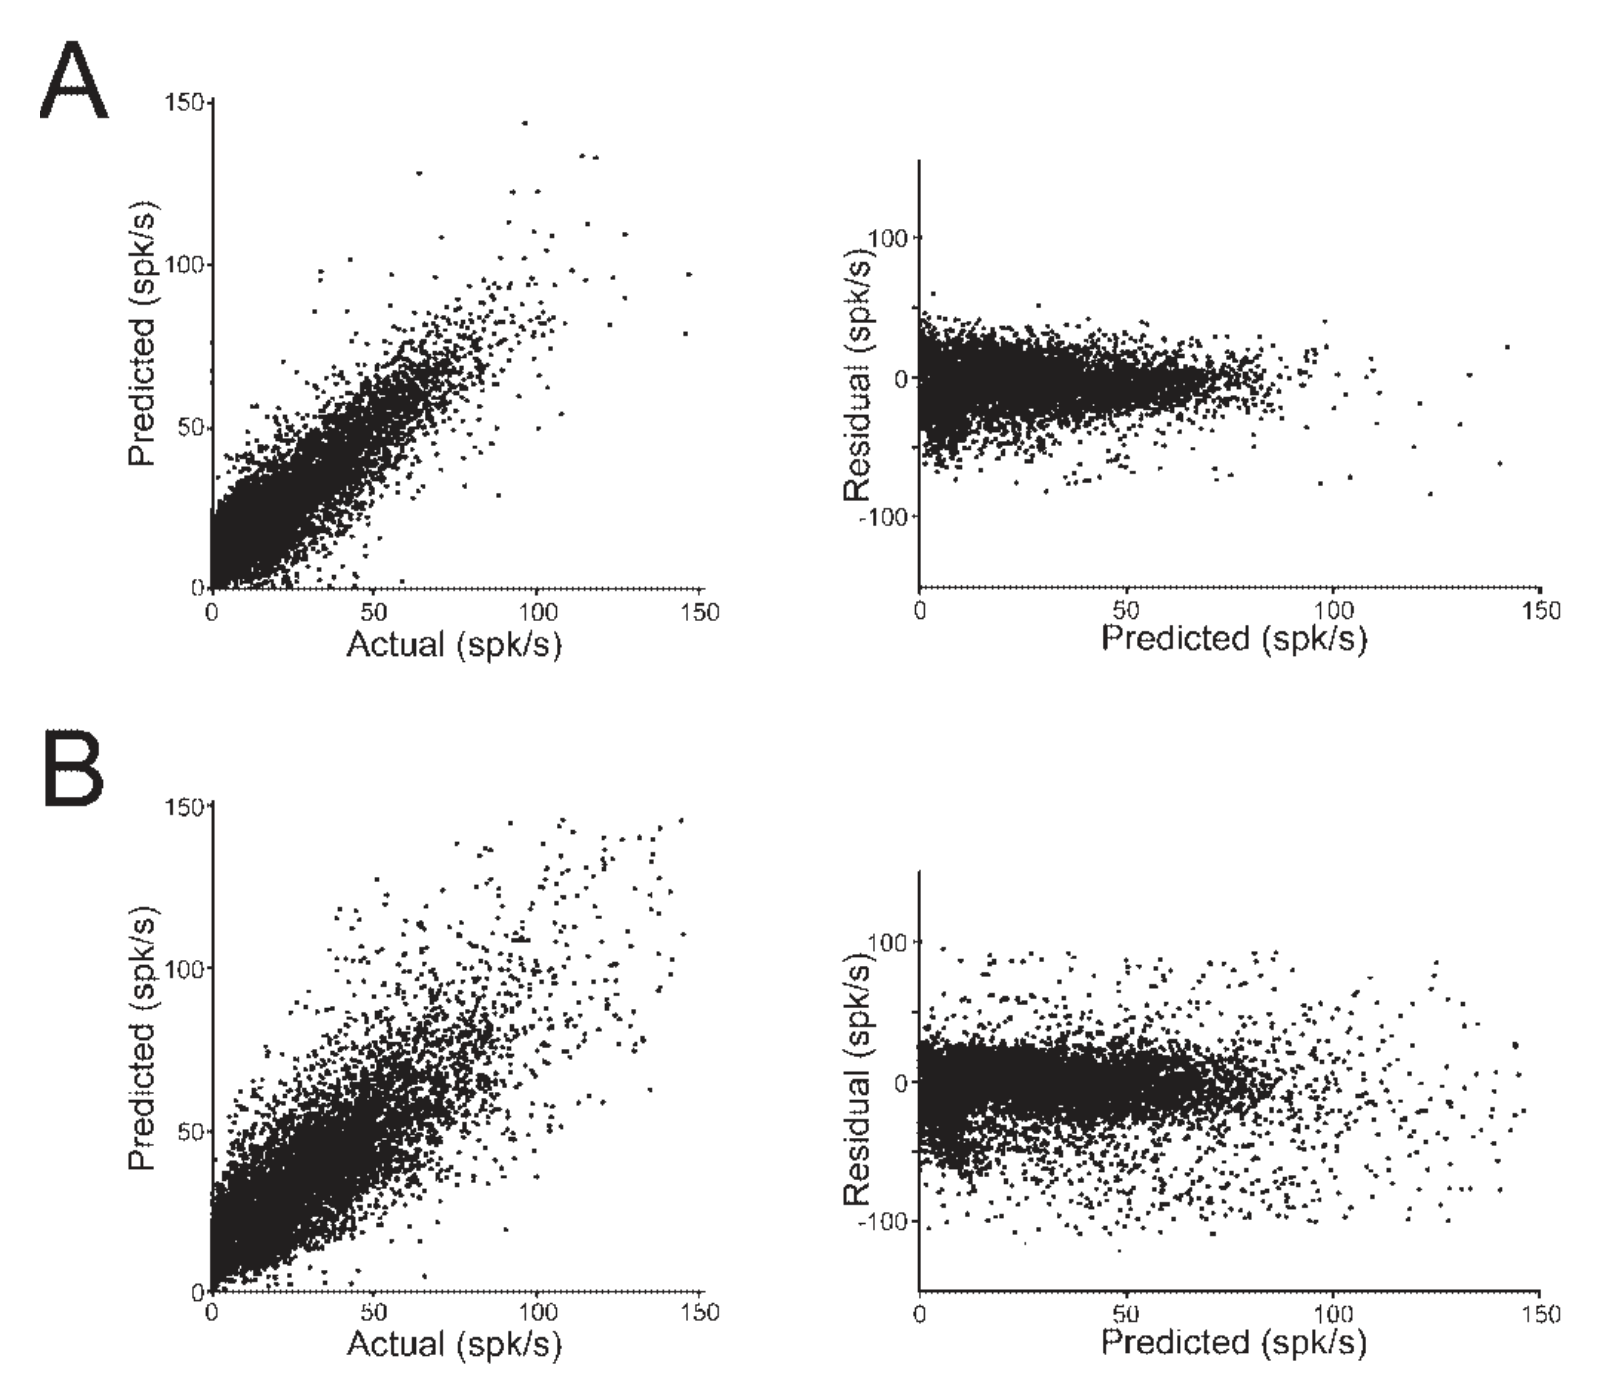
图3 · 拟合与残差。 左为实际与预测,右为预测与残差,以坐标轴为准,原图注左右有误。
 原文 Fig. 4 · PDF 第 5 页
图4 · R²分布。 显著模型不等于高解释率或泛化预测。
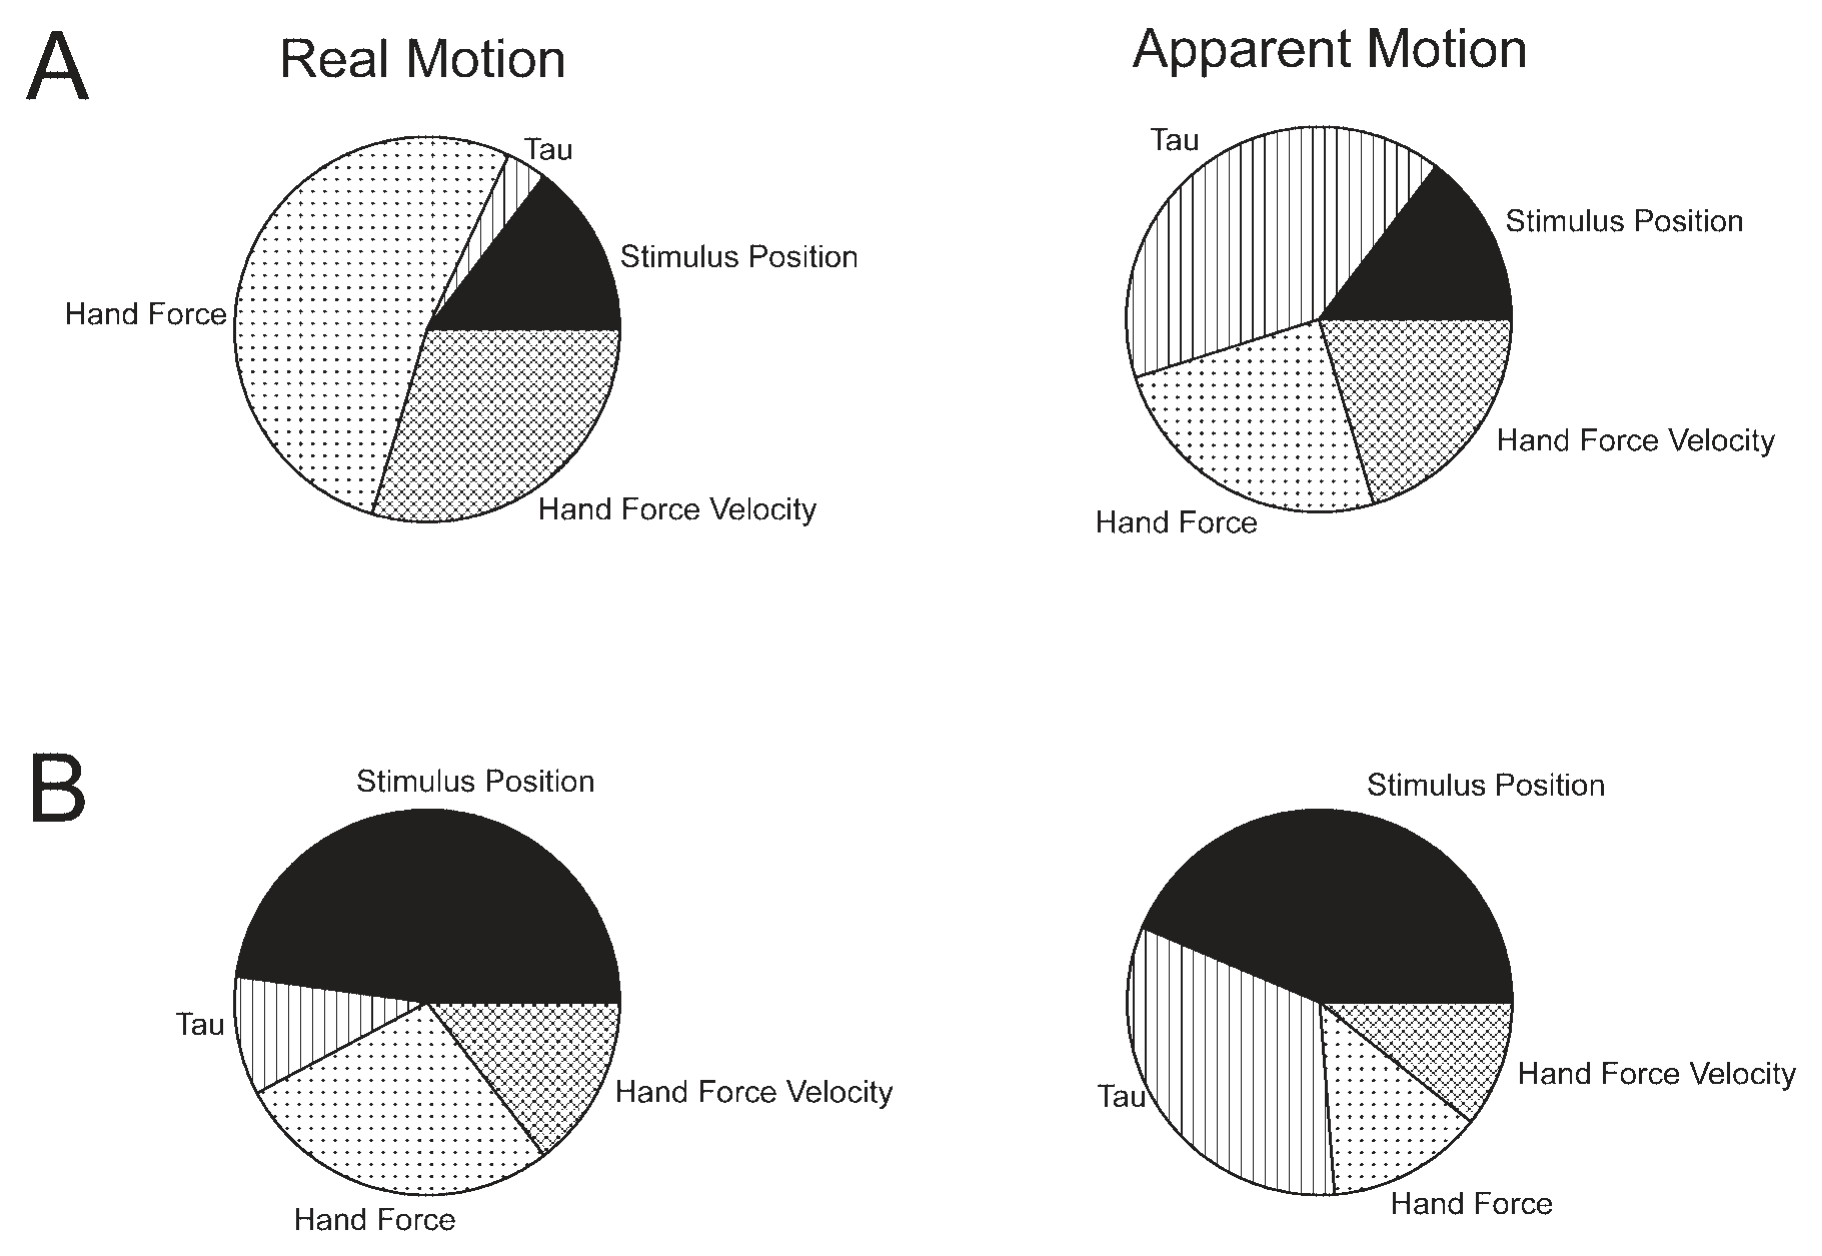 原文 Fig. 5 · PDF 第 6 页
图5 · 无固视时的首要回归项。 是标准化系数排名,区别于表2各显著项计数。
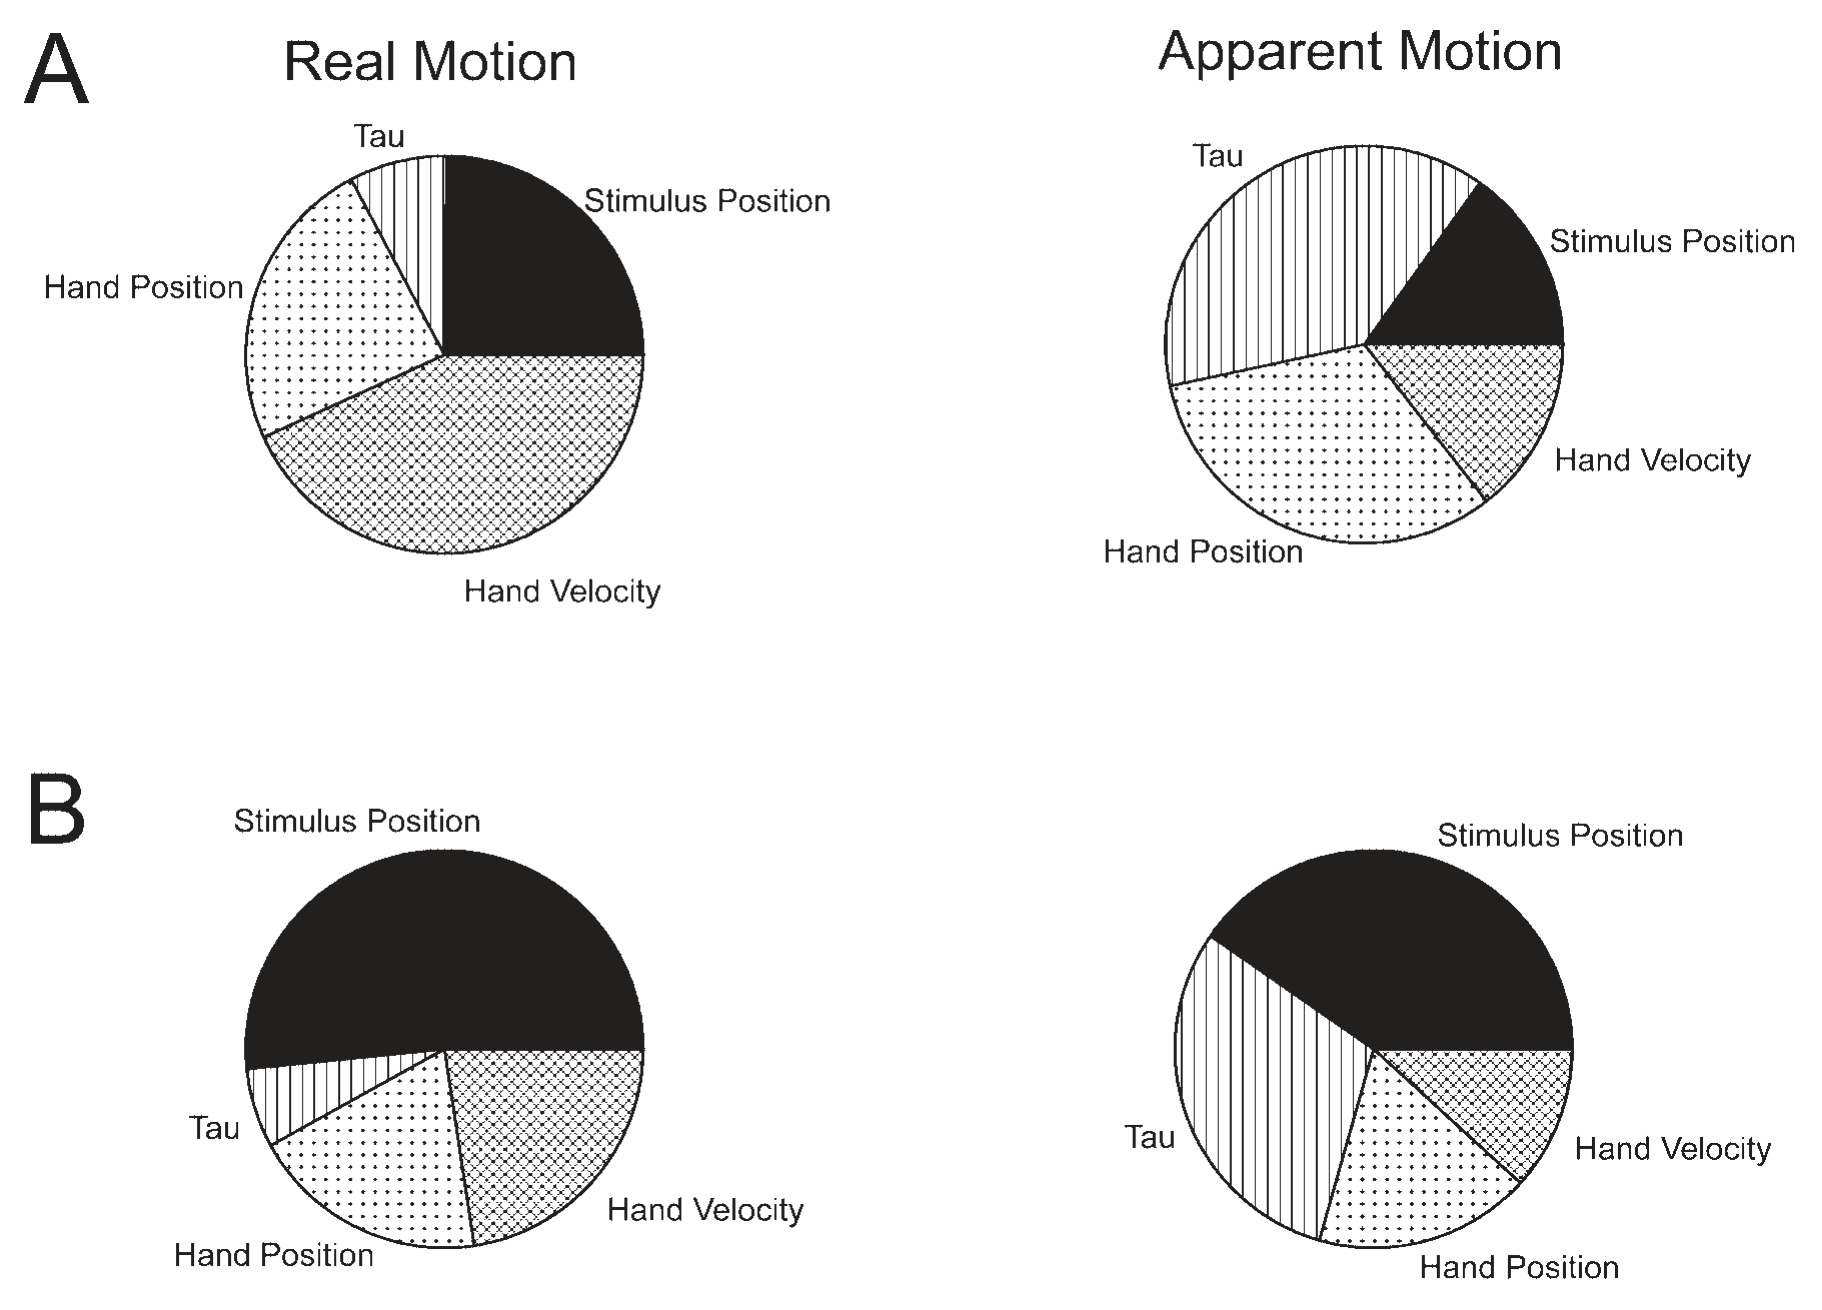 原文 Fig. 6 · PDF 第 7 页
图6 · 固视时的首要项。 主要模式相近,不能据此完全排除眼动或注意影响。
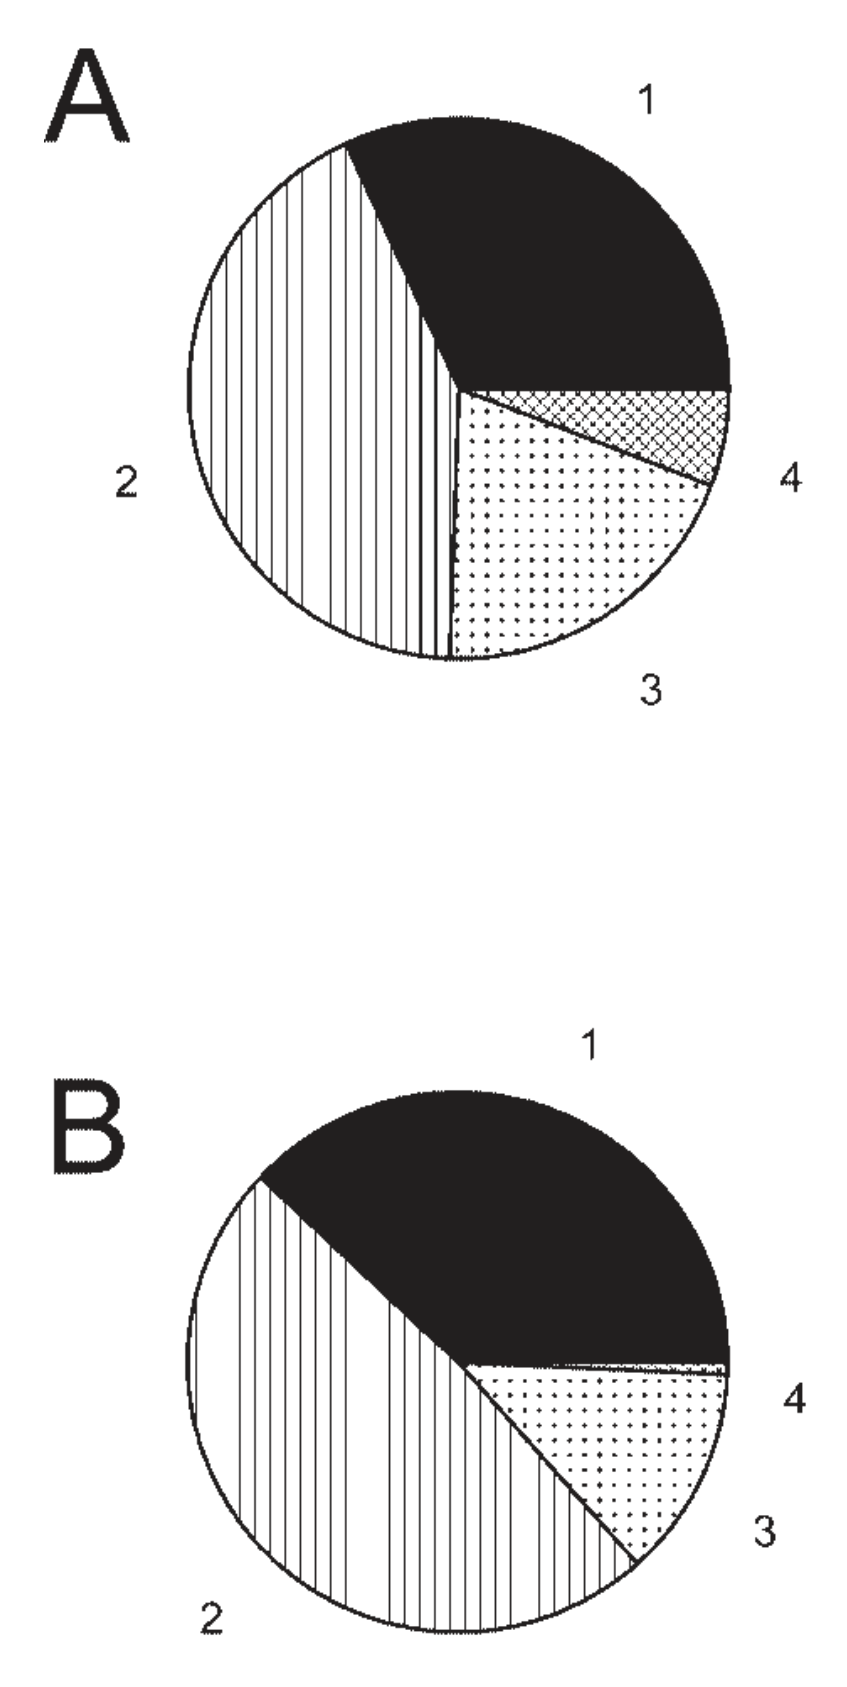 原文 Fig. 7 · PDF 第 8 页
图7 · 显著项数。 多项效应支持混合关联,不定义独立功能细胞类型。
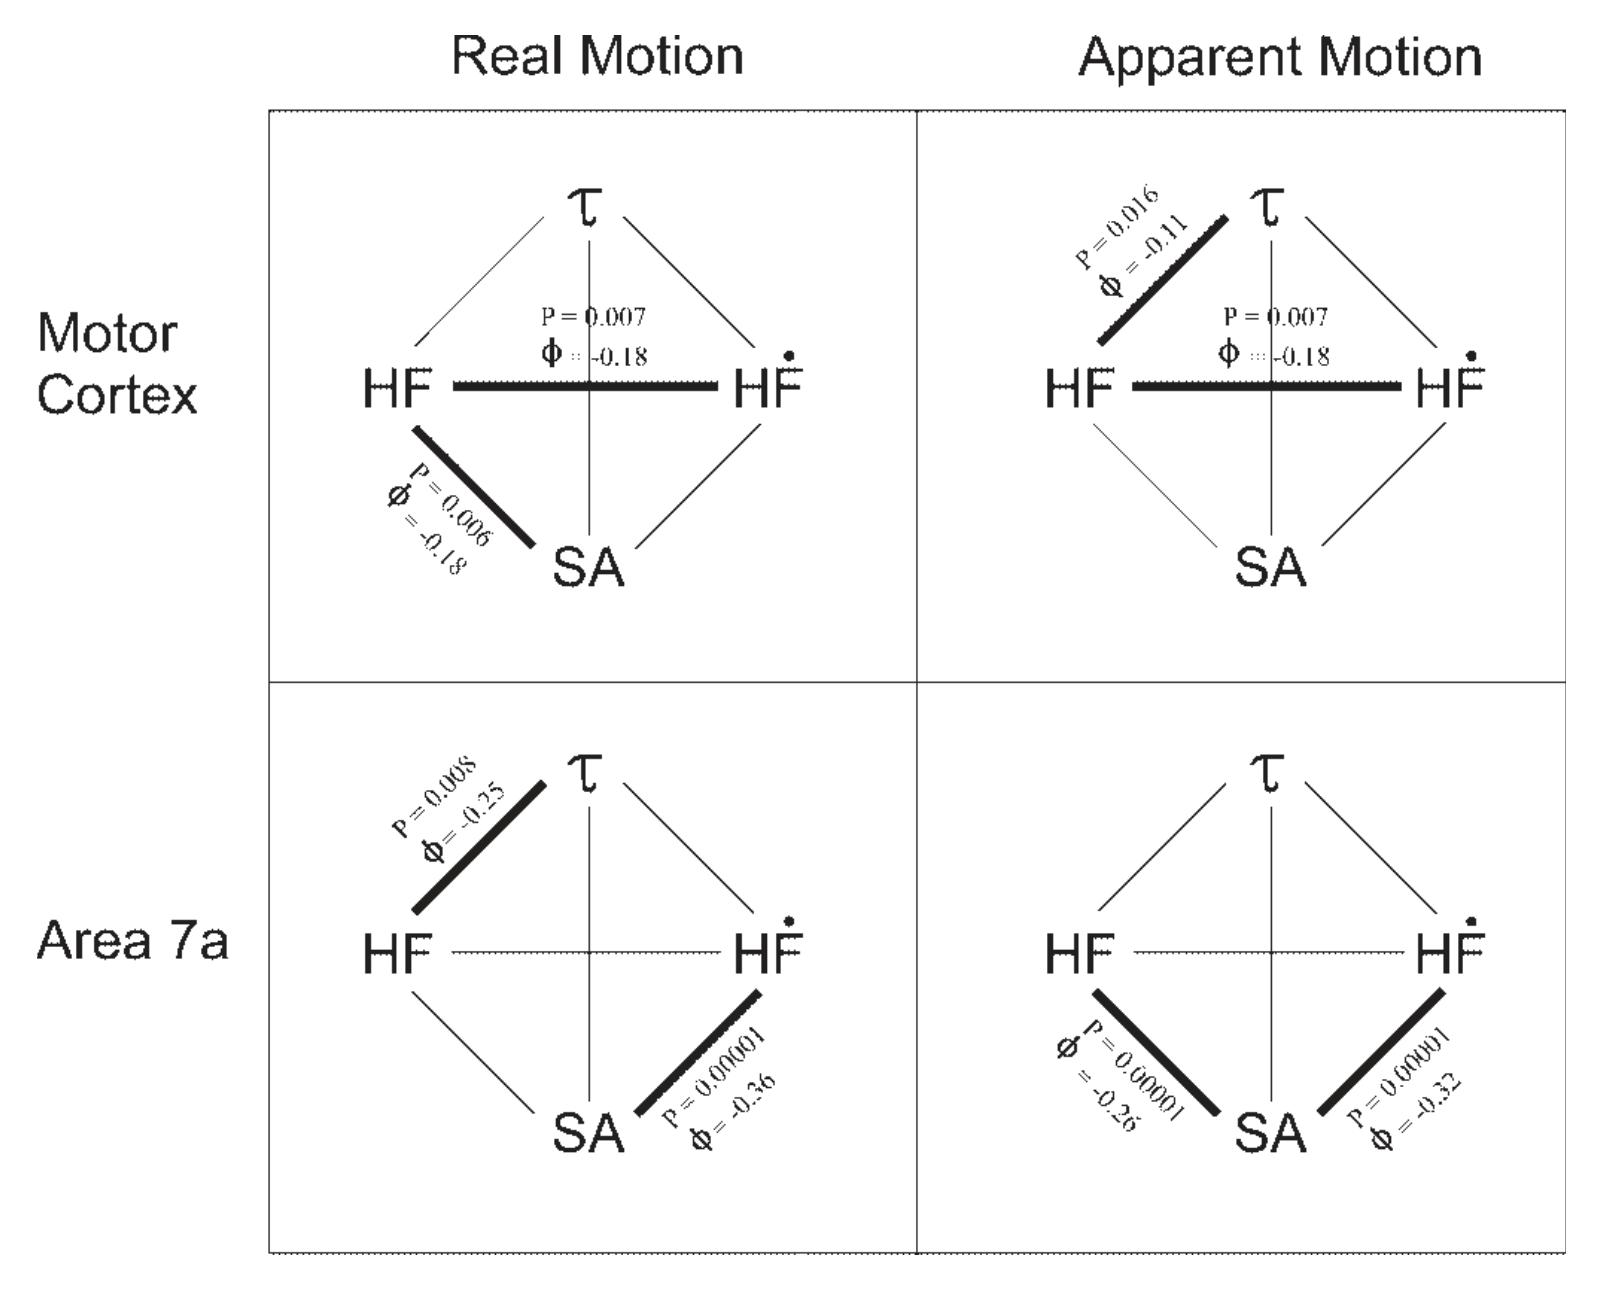 原文 Fig. 8 · PDF 第 8 页
图8 · 参数效应关联。 粗线表示显著,负phi表示倾向分离,不能解作正共现。
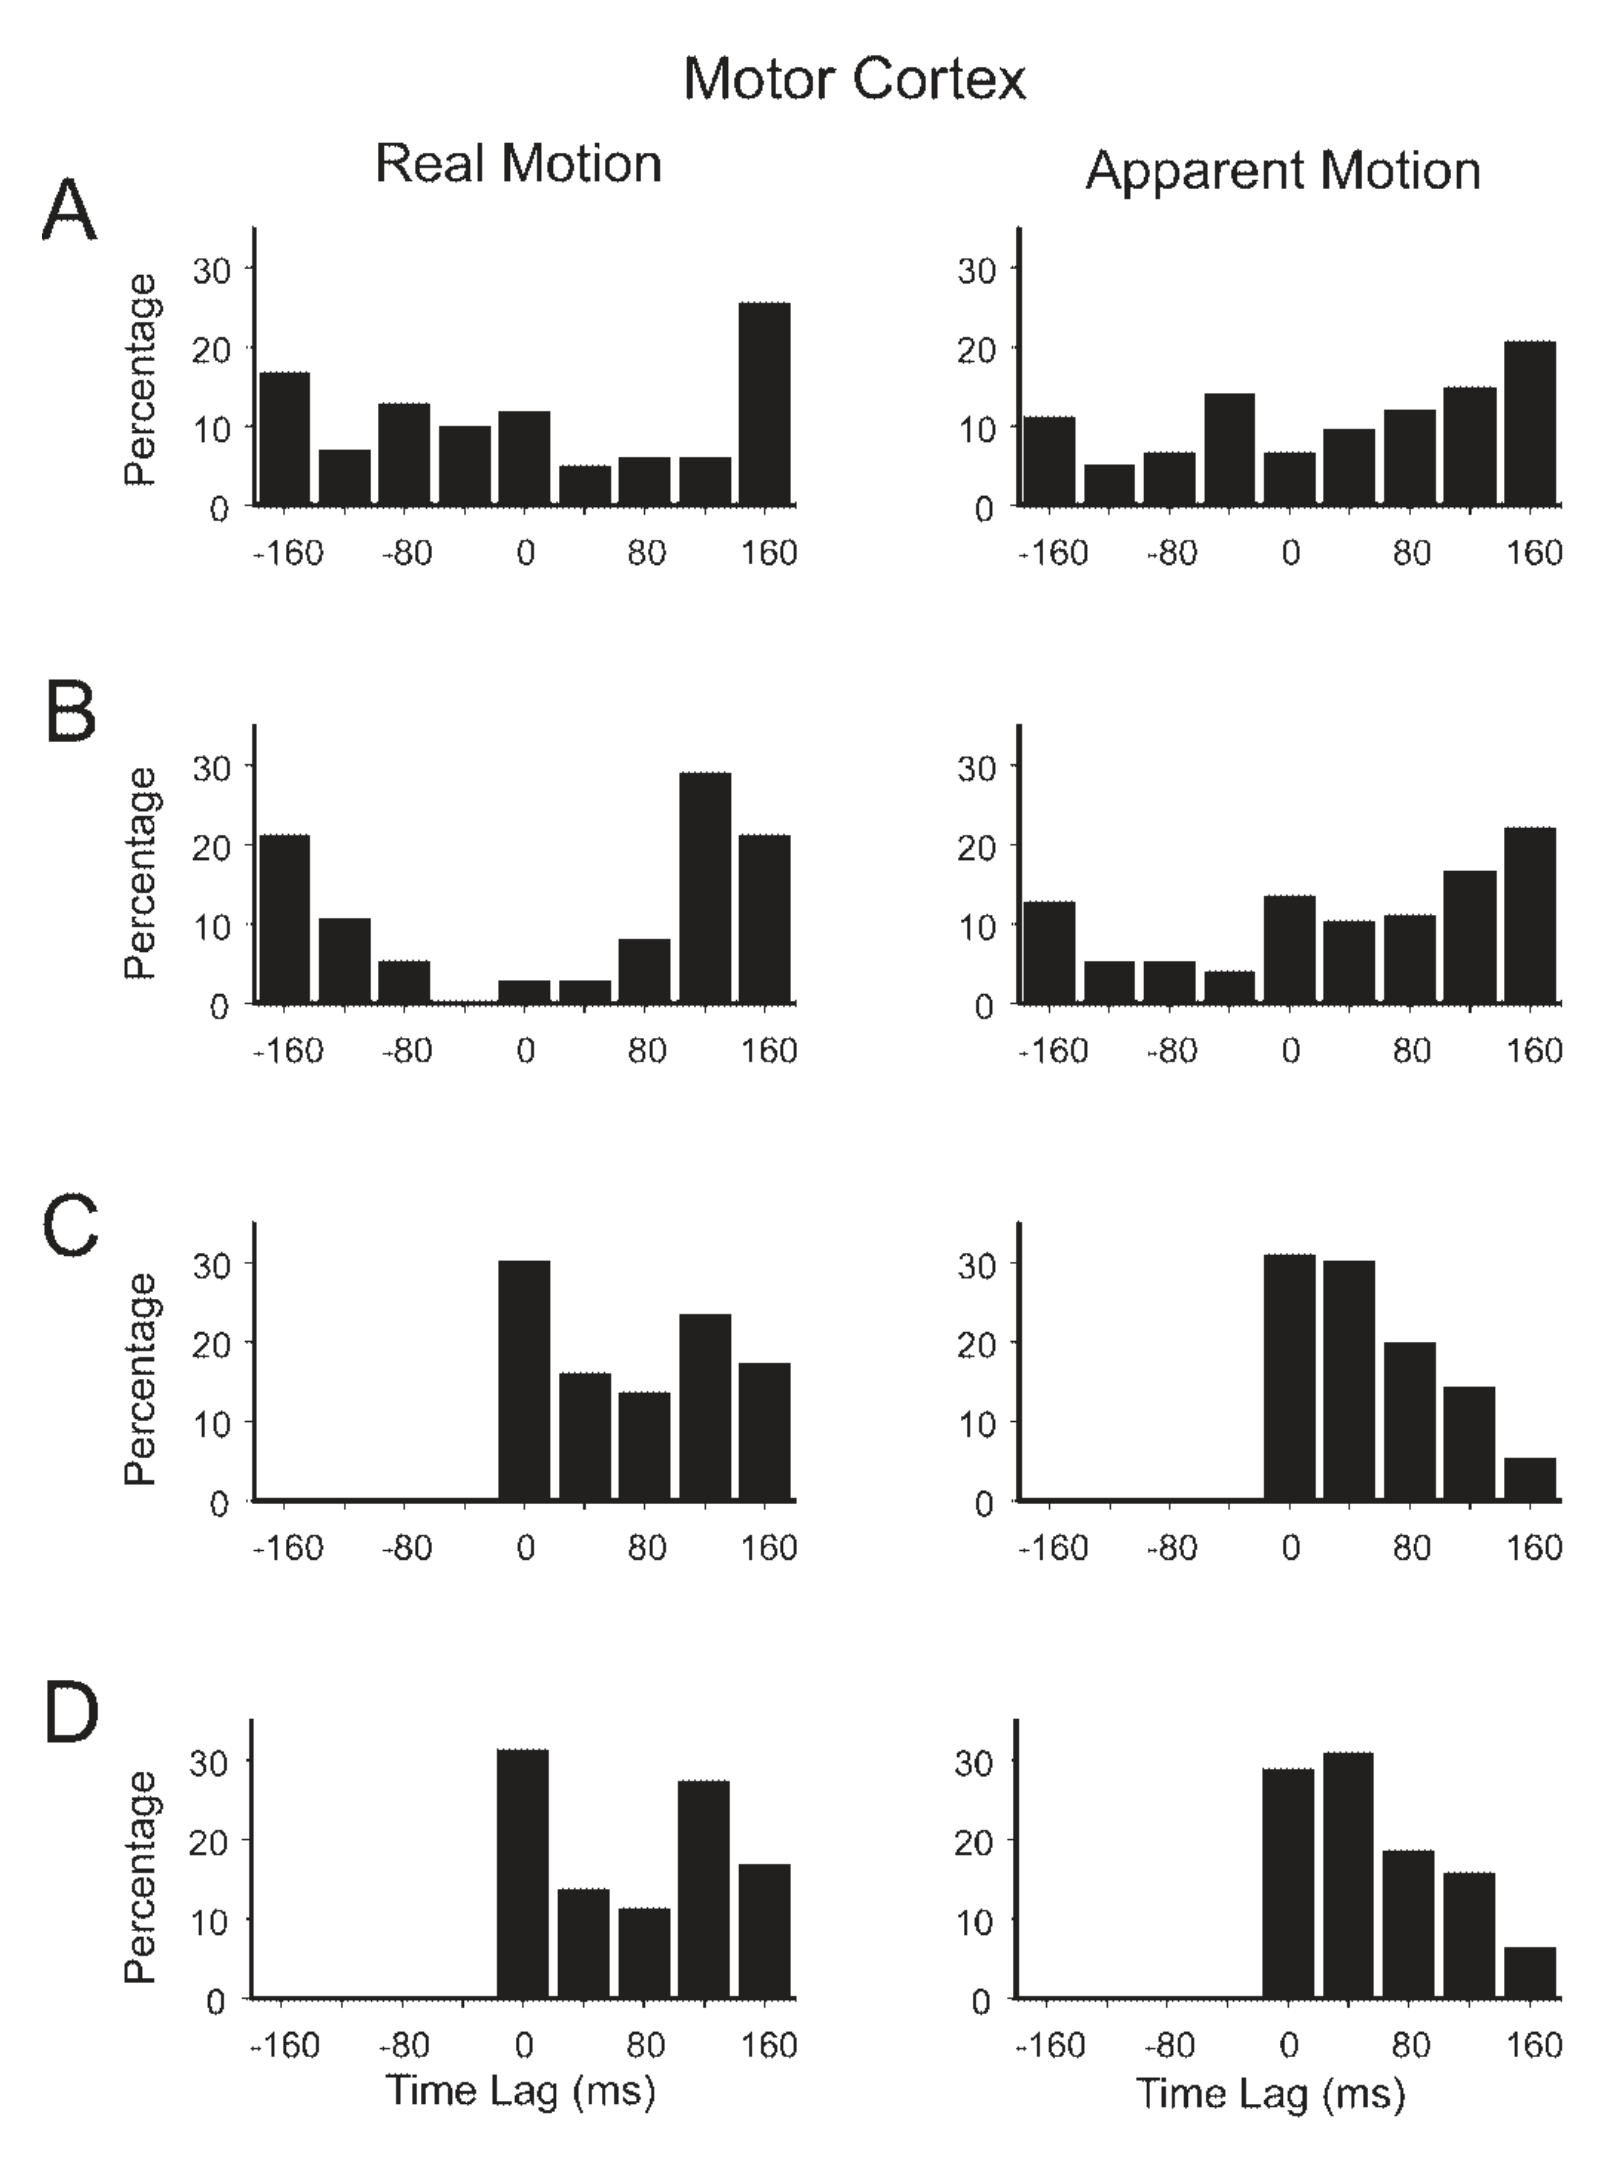 原文 Fig. 9 · PDF 第 8 页
图9 · M1最优时移。 力项搜索范围受限,领先不直接证明预测计算。
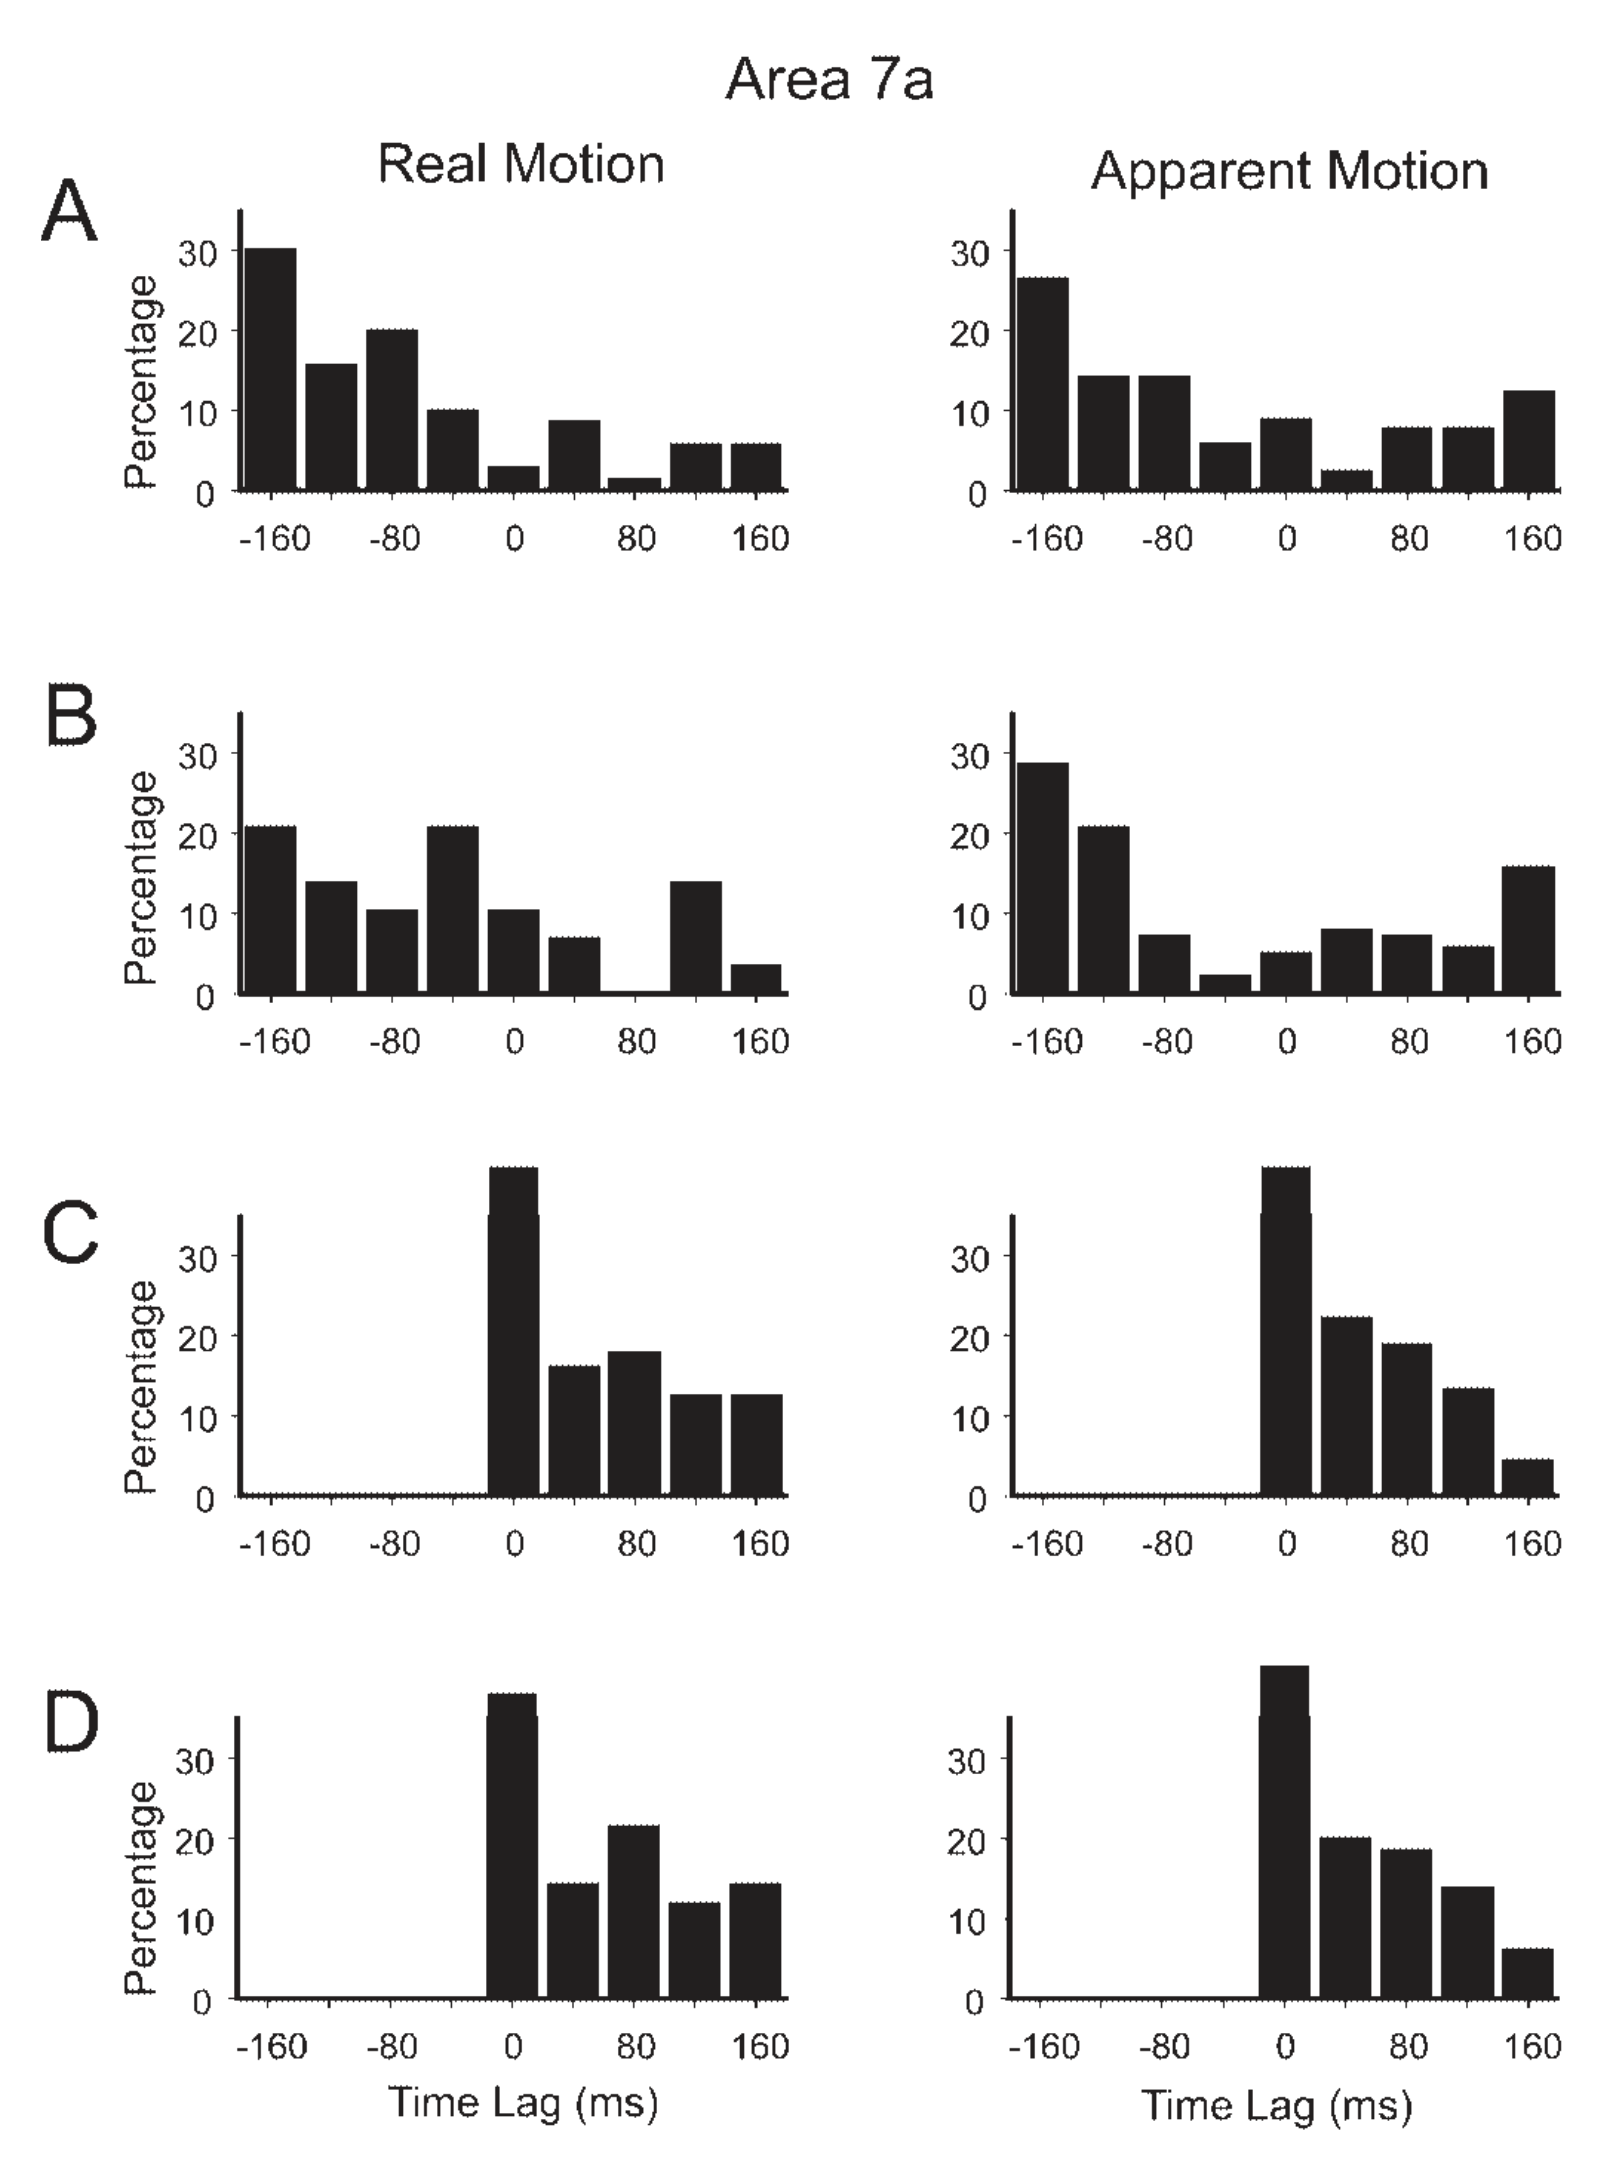 原文 Fig. 10 · PDF 第 9 页
图10 · 7a最优时移。 刺激项整体偏滞后,是统计时序关系。
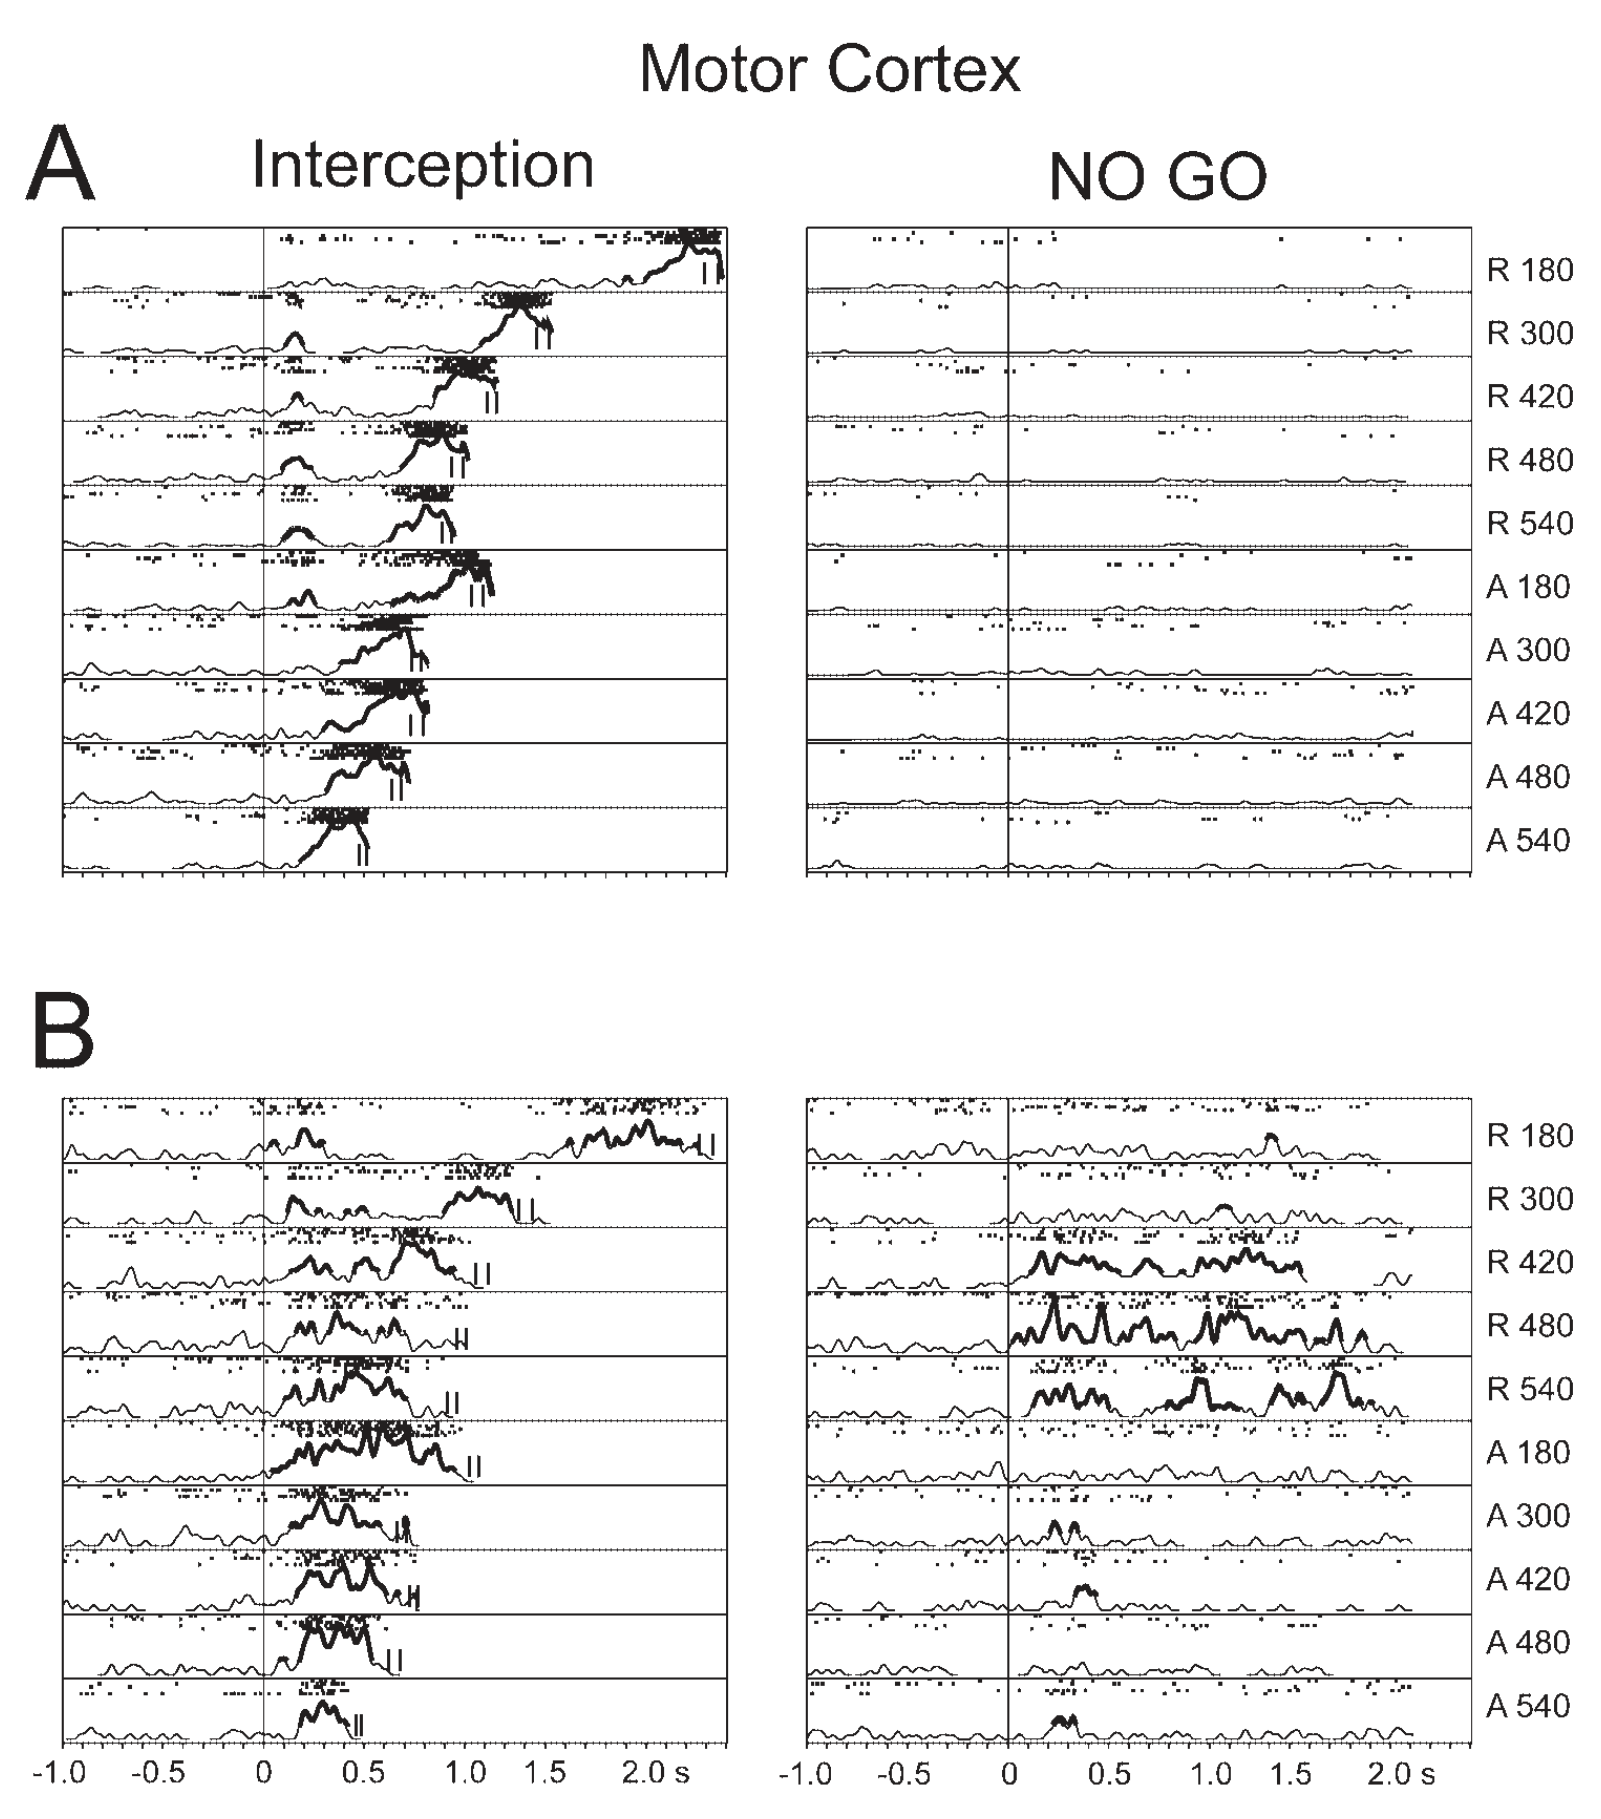 原文 Fig. 11 · PDF 第 10 页
图11 · M1双任务示例。 分别展示拦截特异和兼有NOGO响应的细胞。
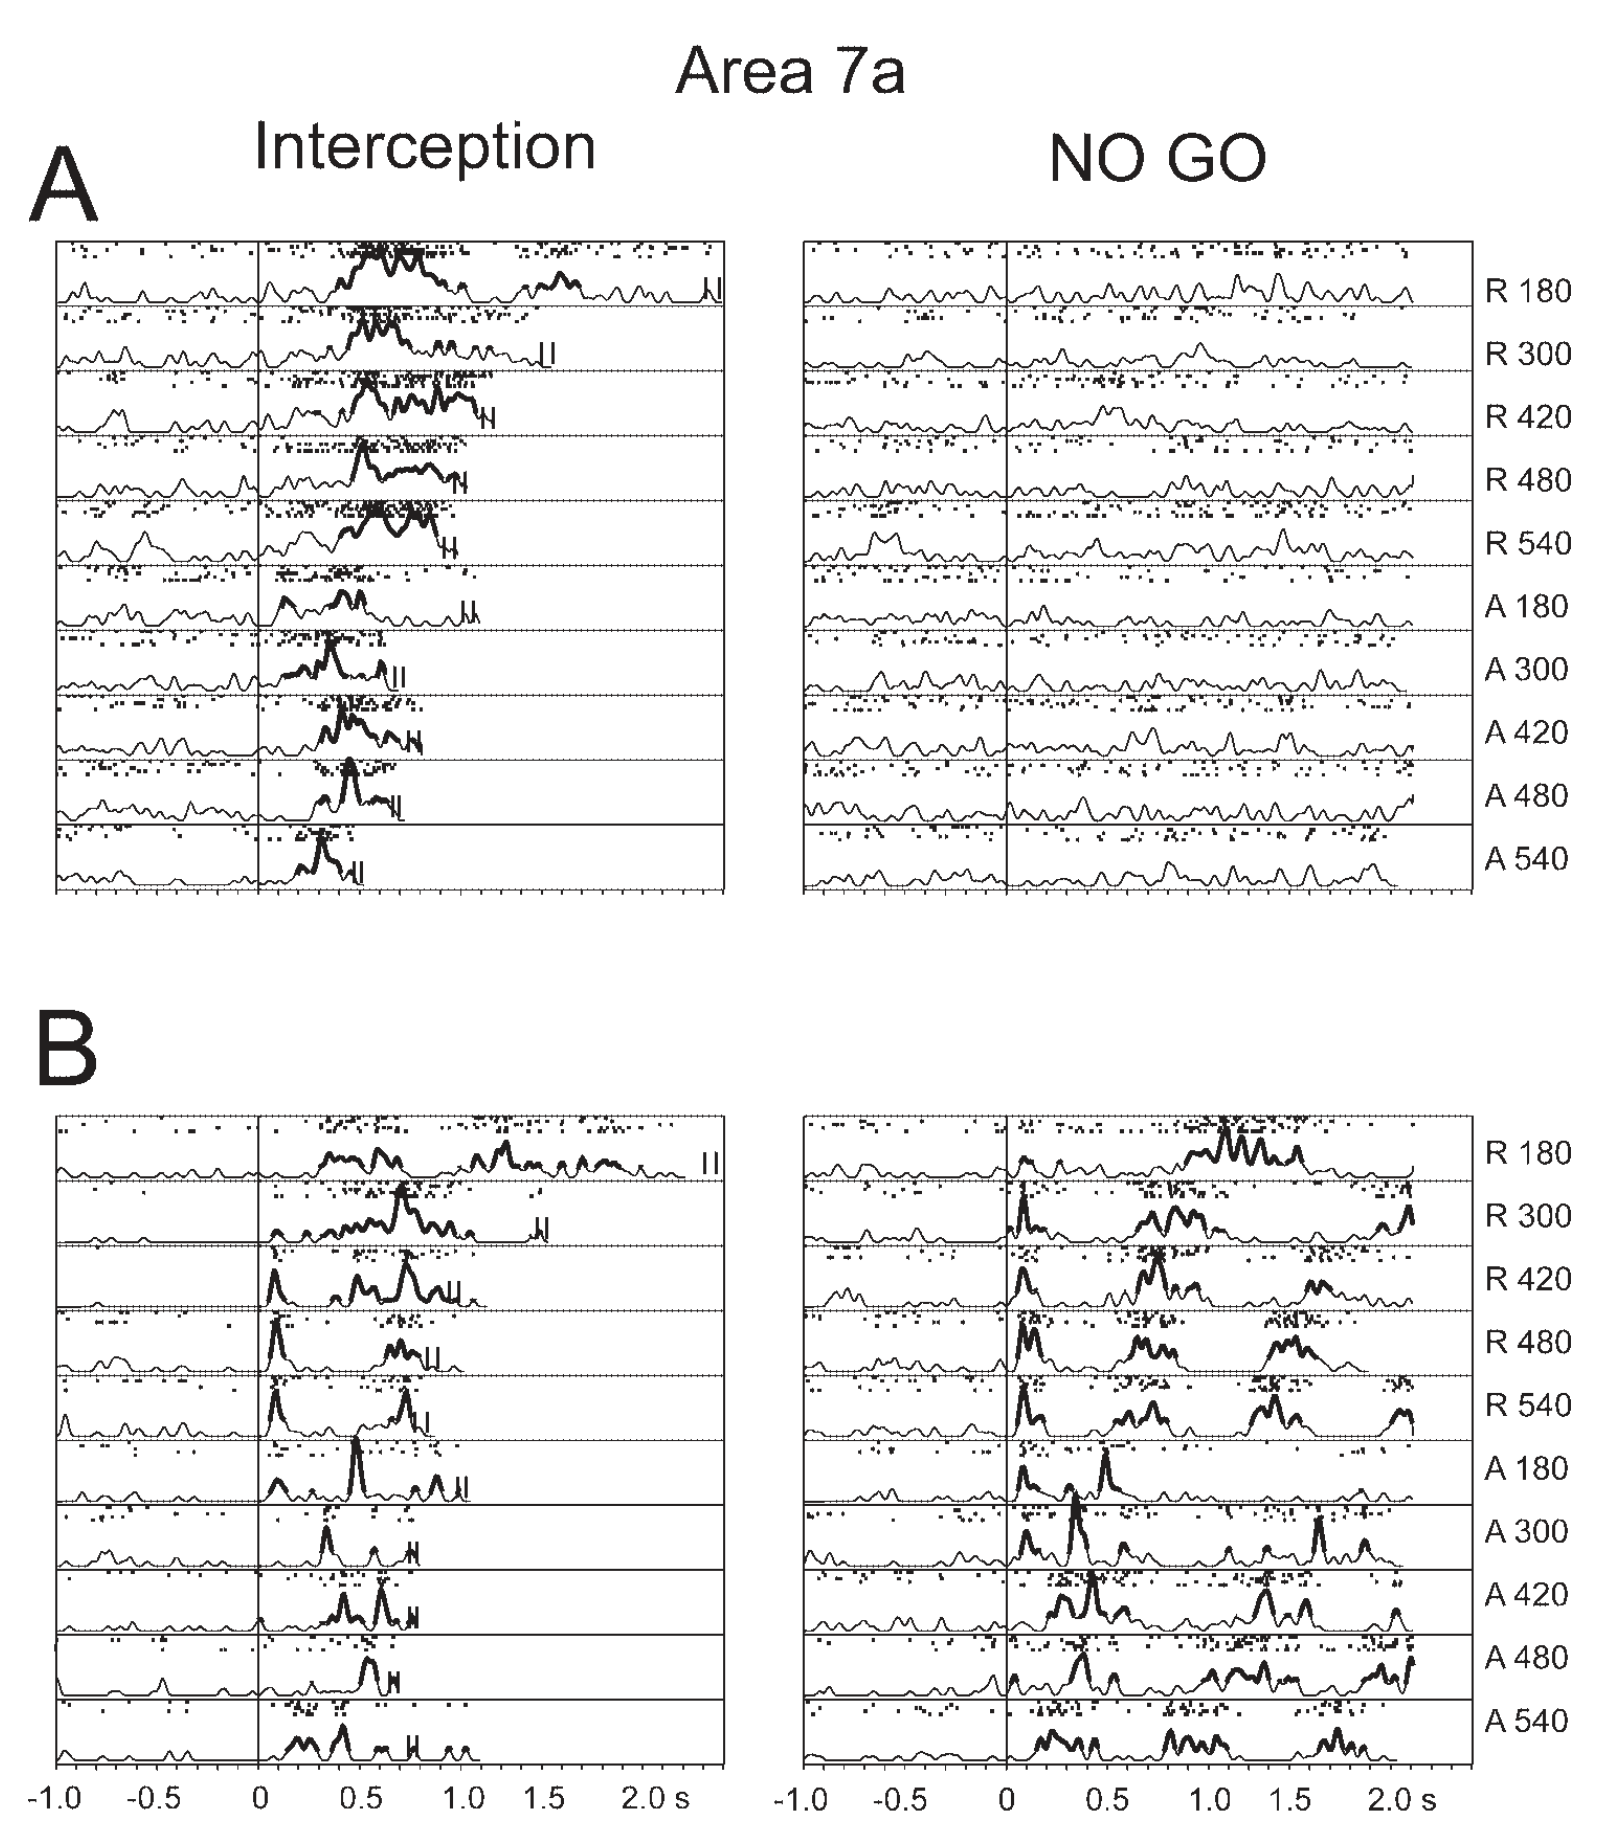 原文 Fig. 12 · PDF 第 11 页
图12 · 7a双任务示例。 展示任务依赖性,不能直接划成纯感觉与纯运动通路。
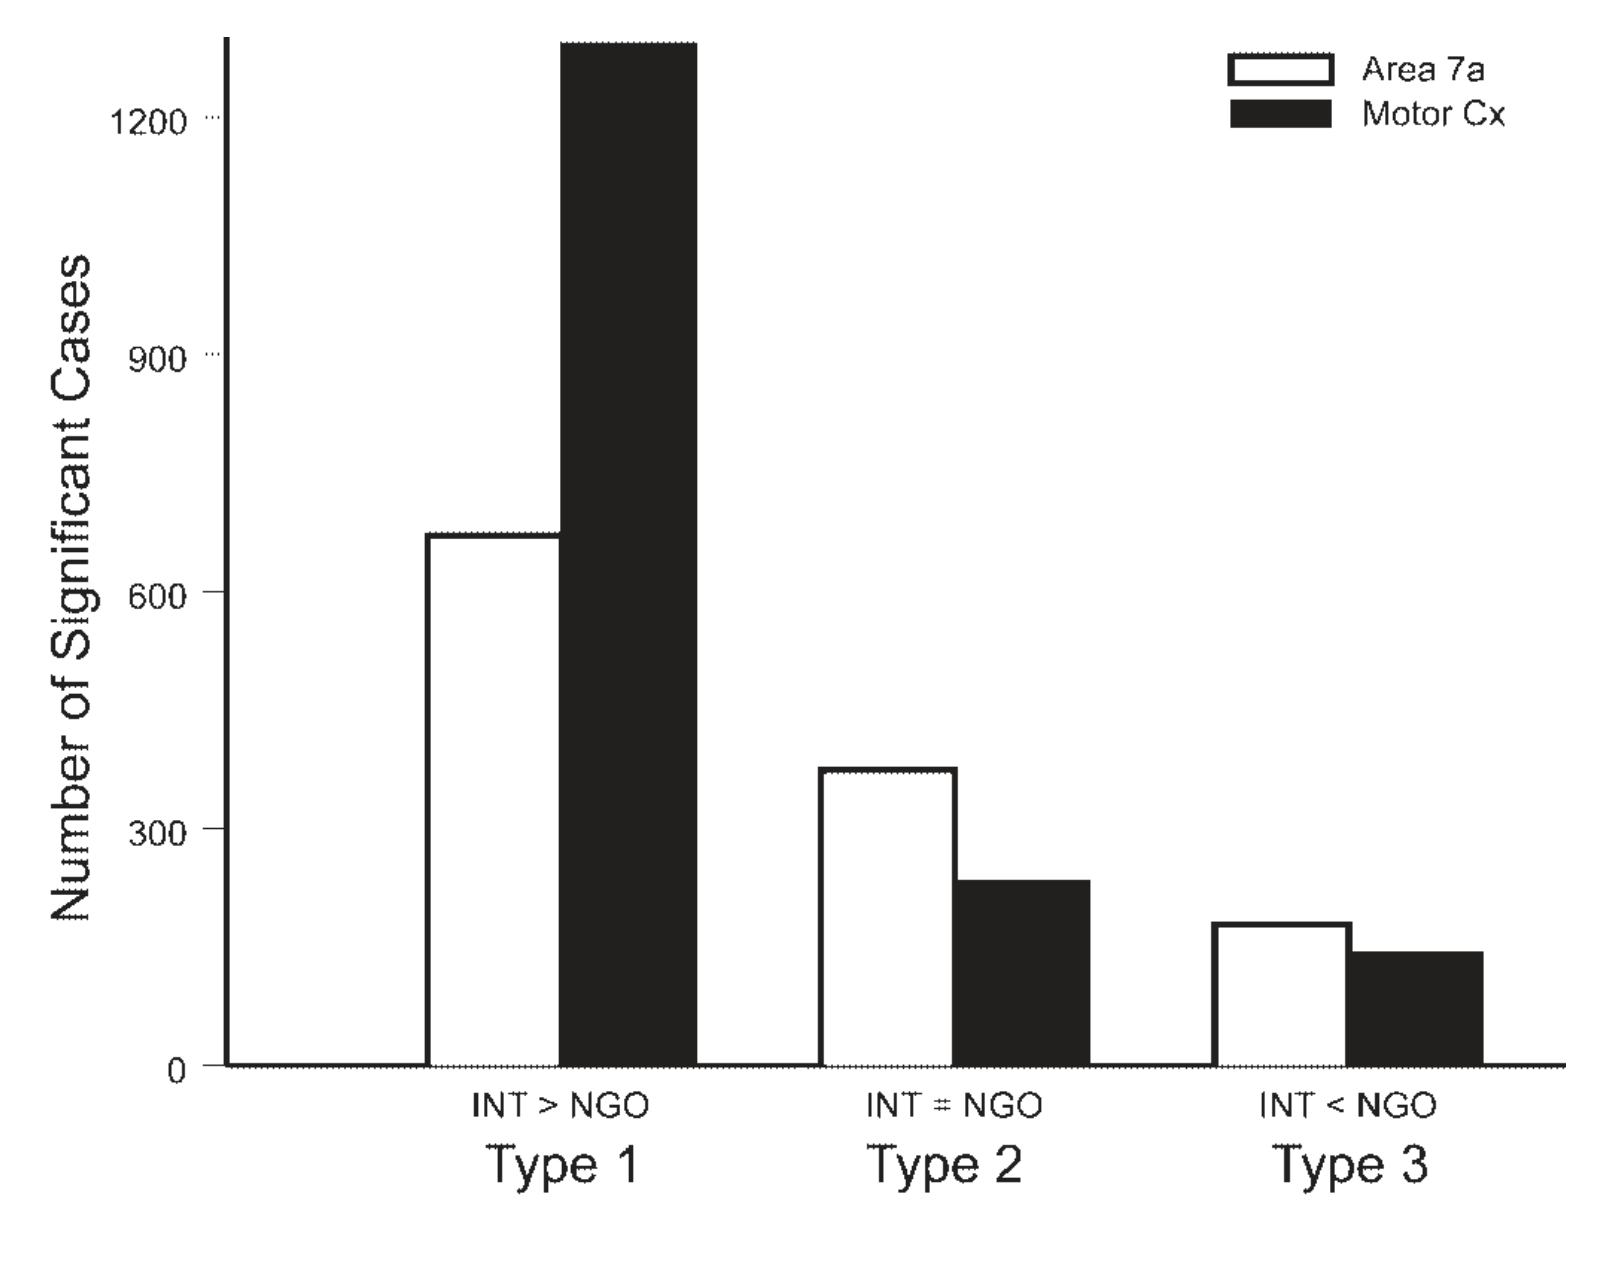 原文 Fig. 13 · PDF 第 12 页
图13 · 激活期比较。 计数单位为细胞×条件的case,每个细胞可贡献多项。
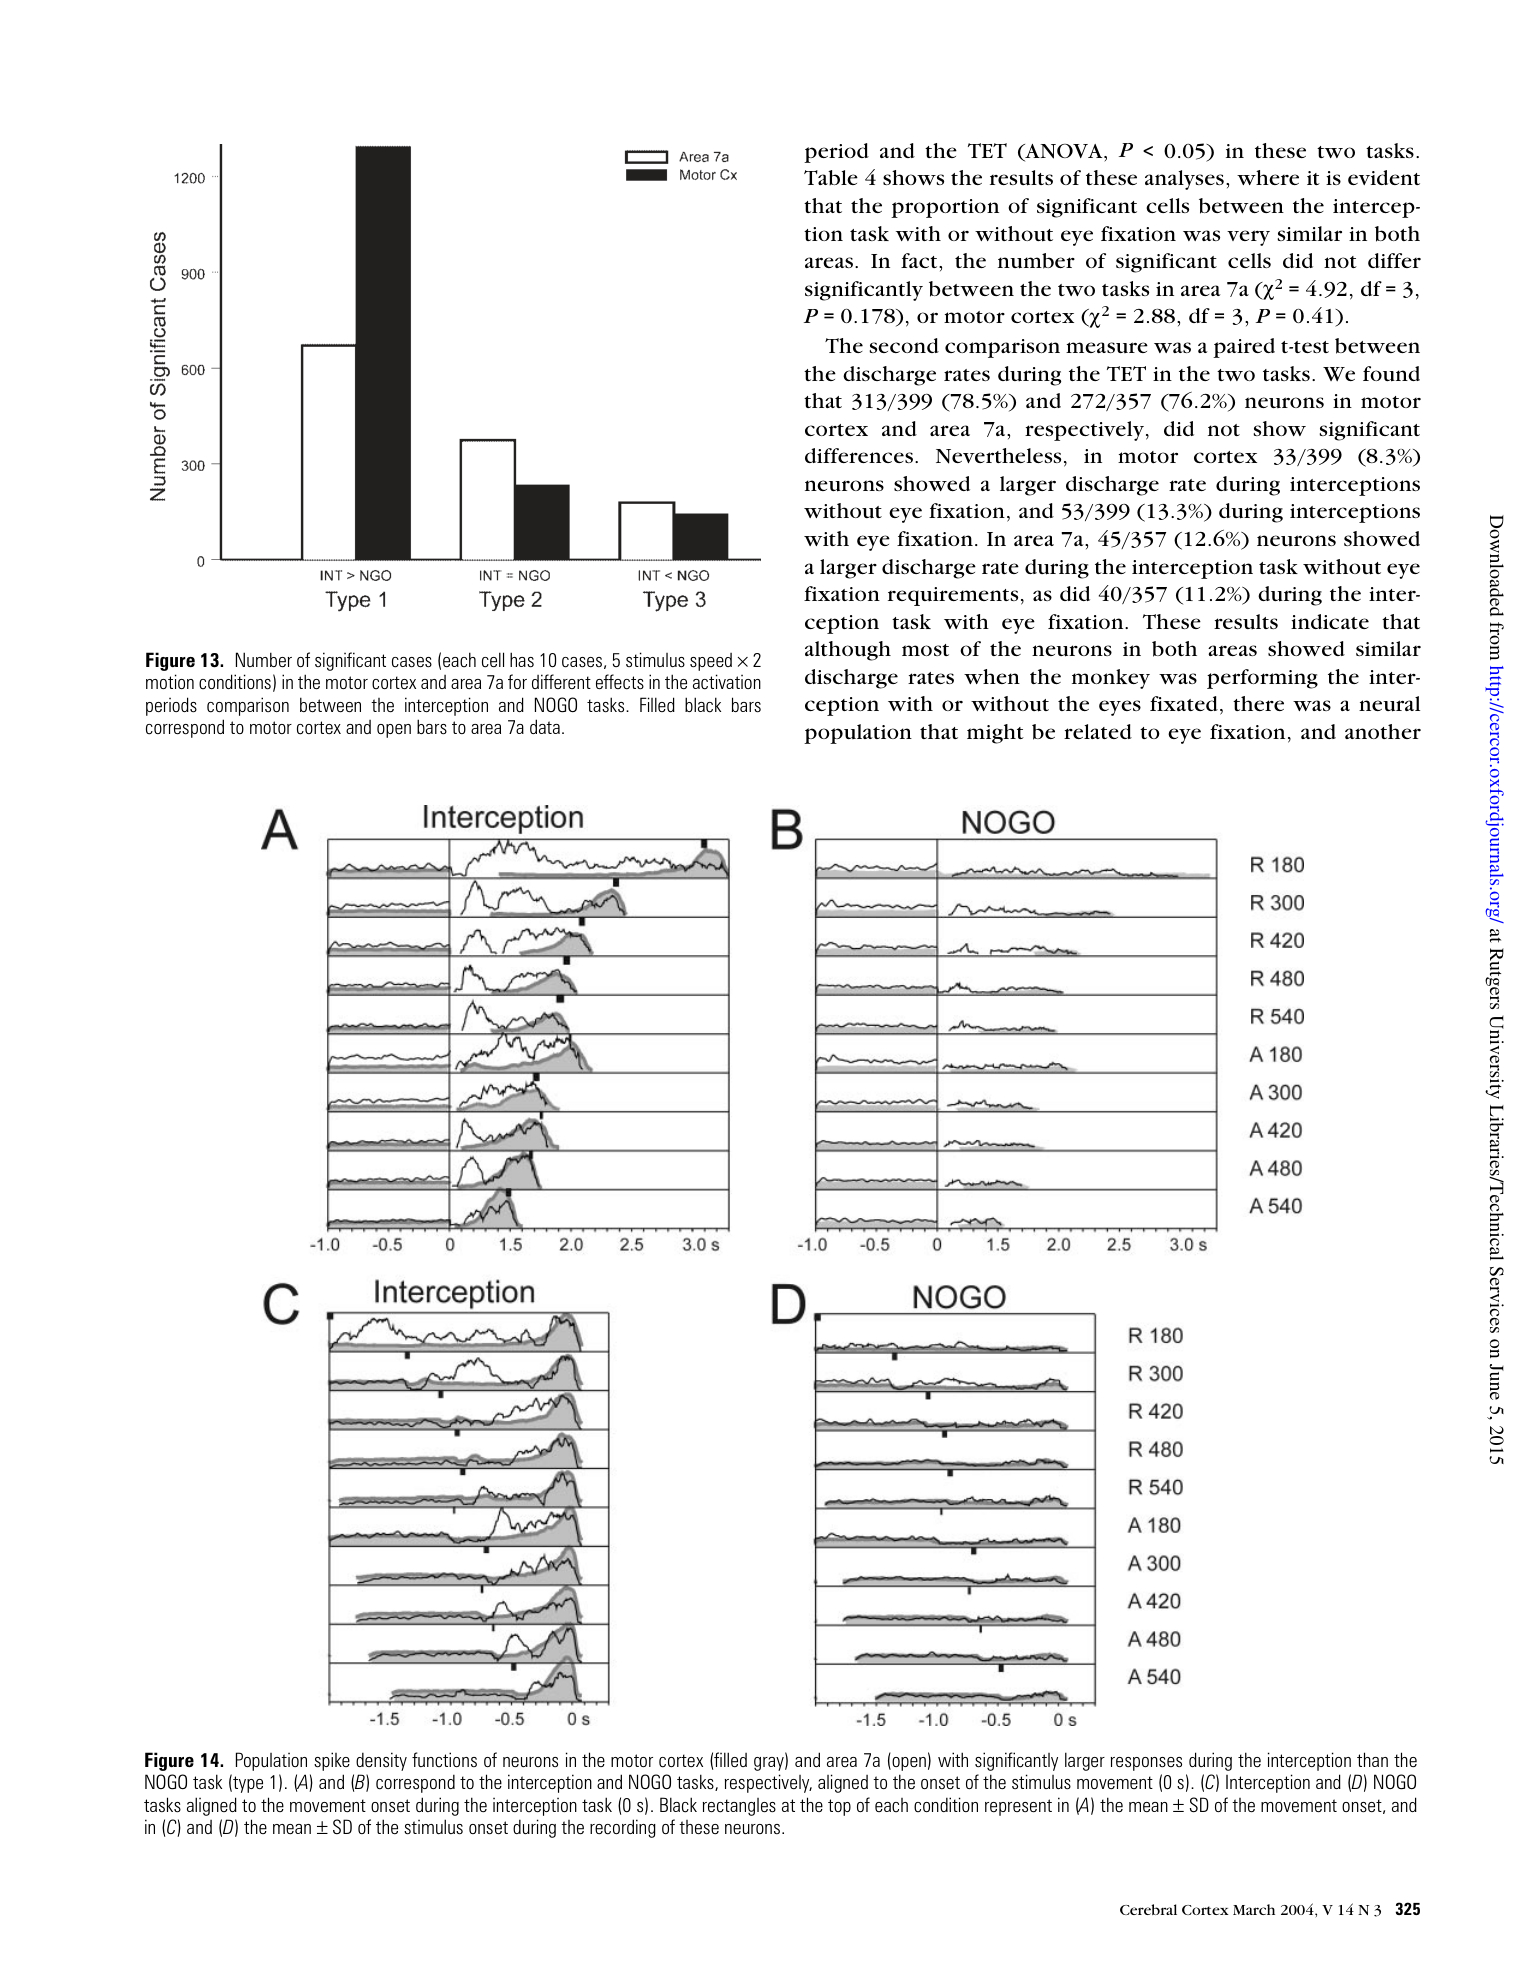 原文 Fig. 14 · PDF 第 12 页
图14 · 拦截较强群体的时程。 按刺激或动作对齐比较;原图片部分面板倒置,已重新渲染。
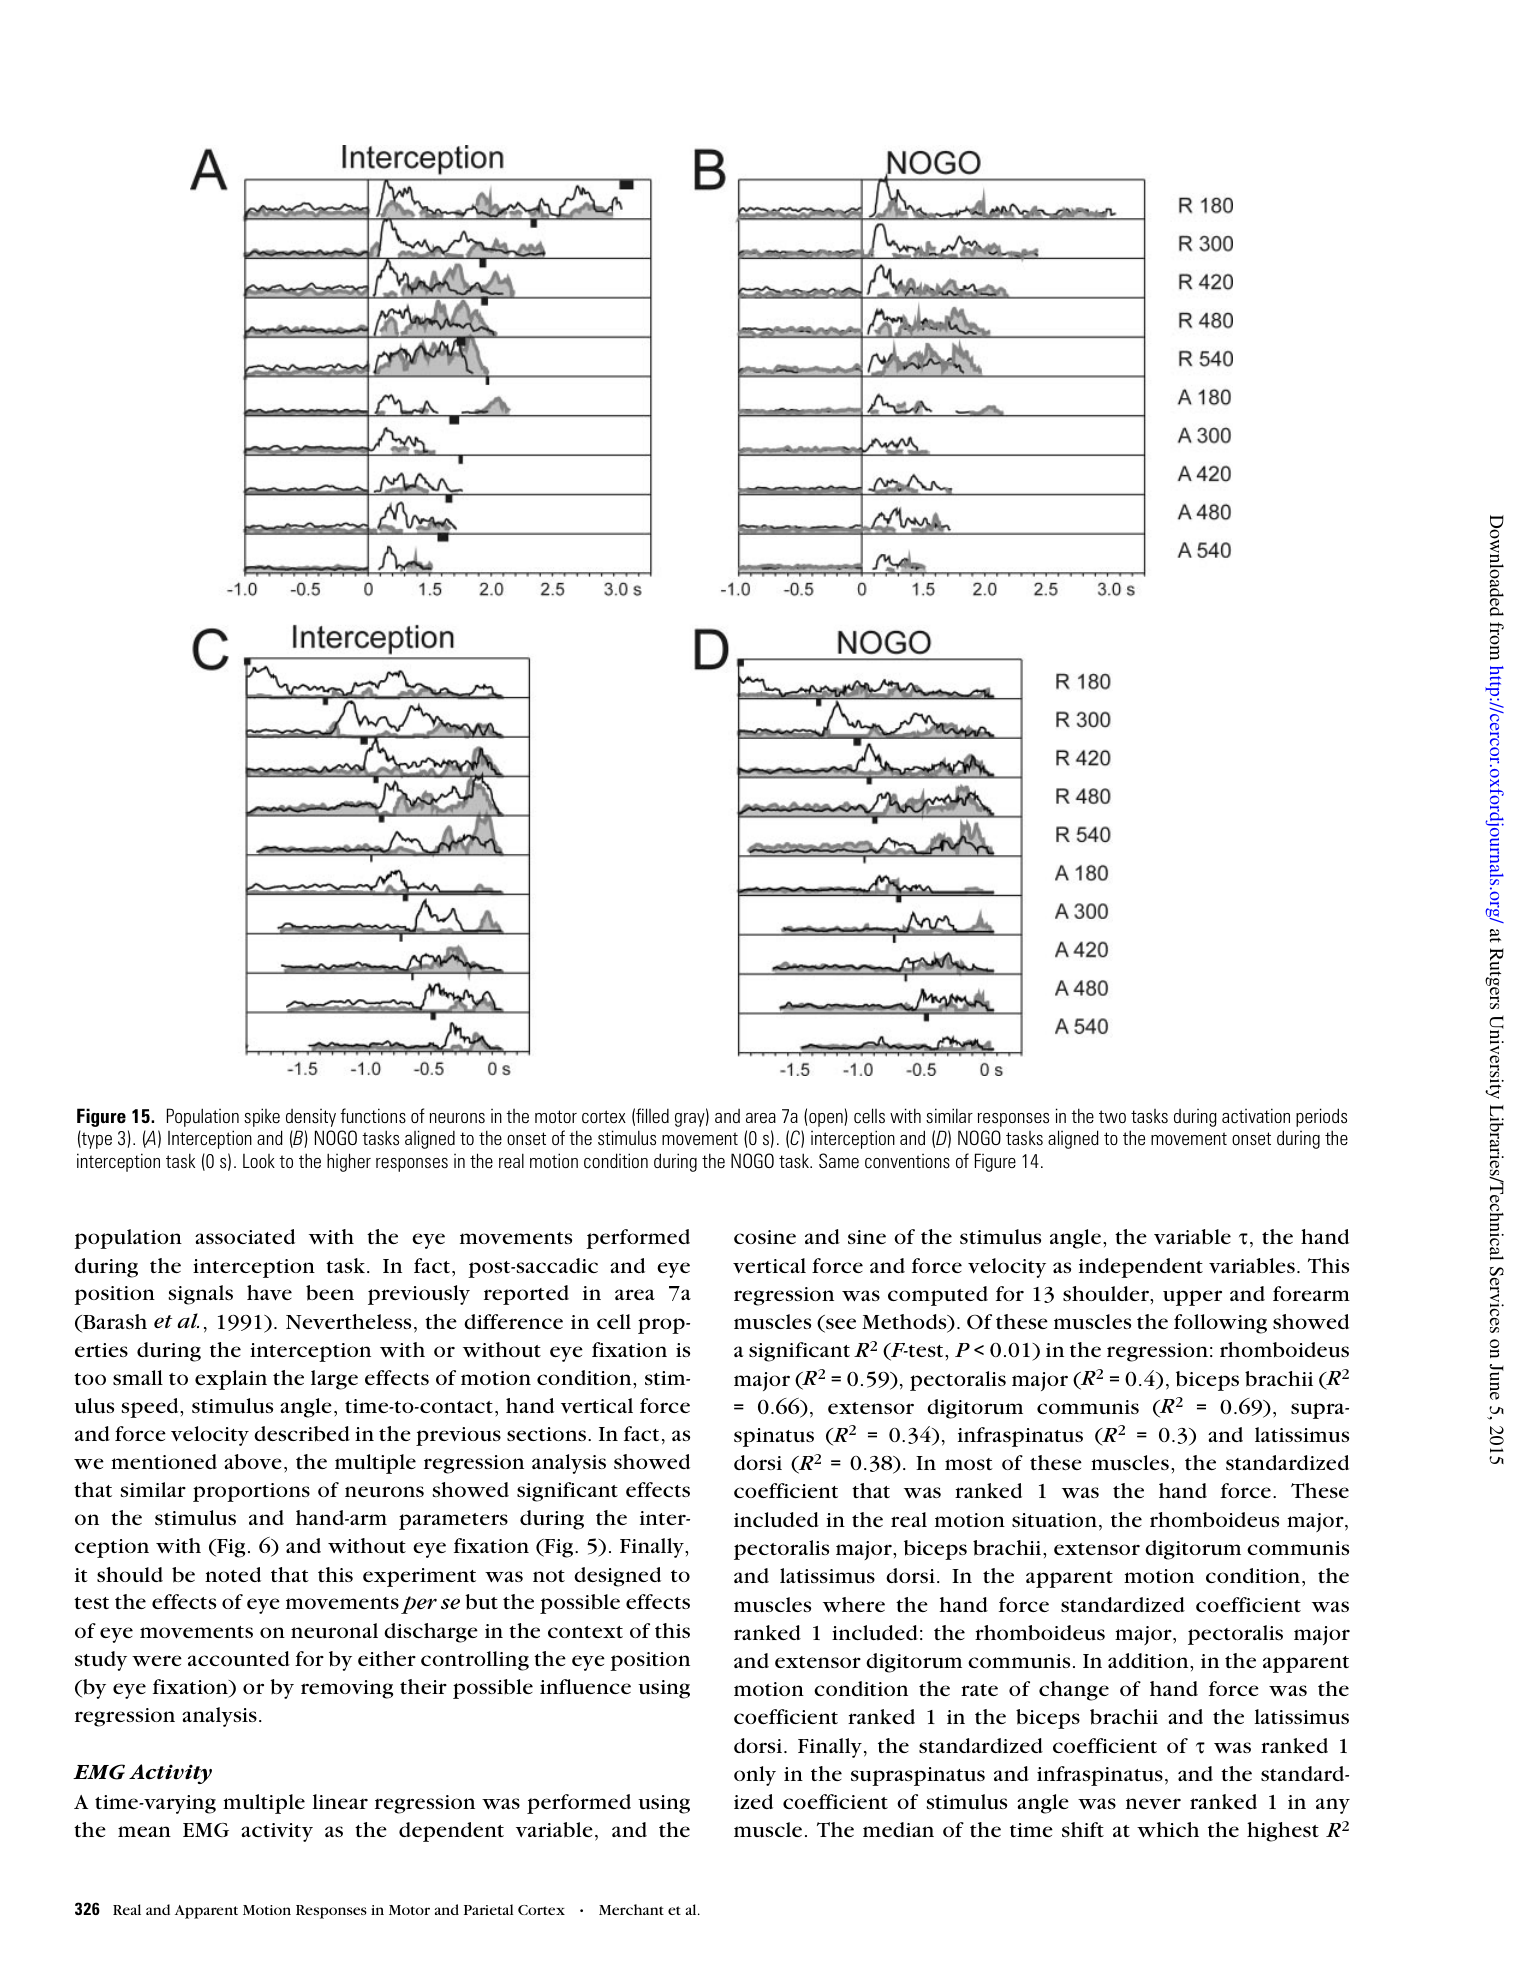 原文 Fig. 15 · PDF 第 13 页
图15 · 双任务响应相近群体。 原图倒置已修复,保留全部条件与坐标。
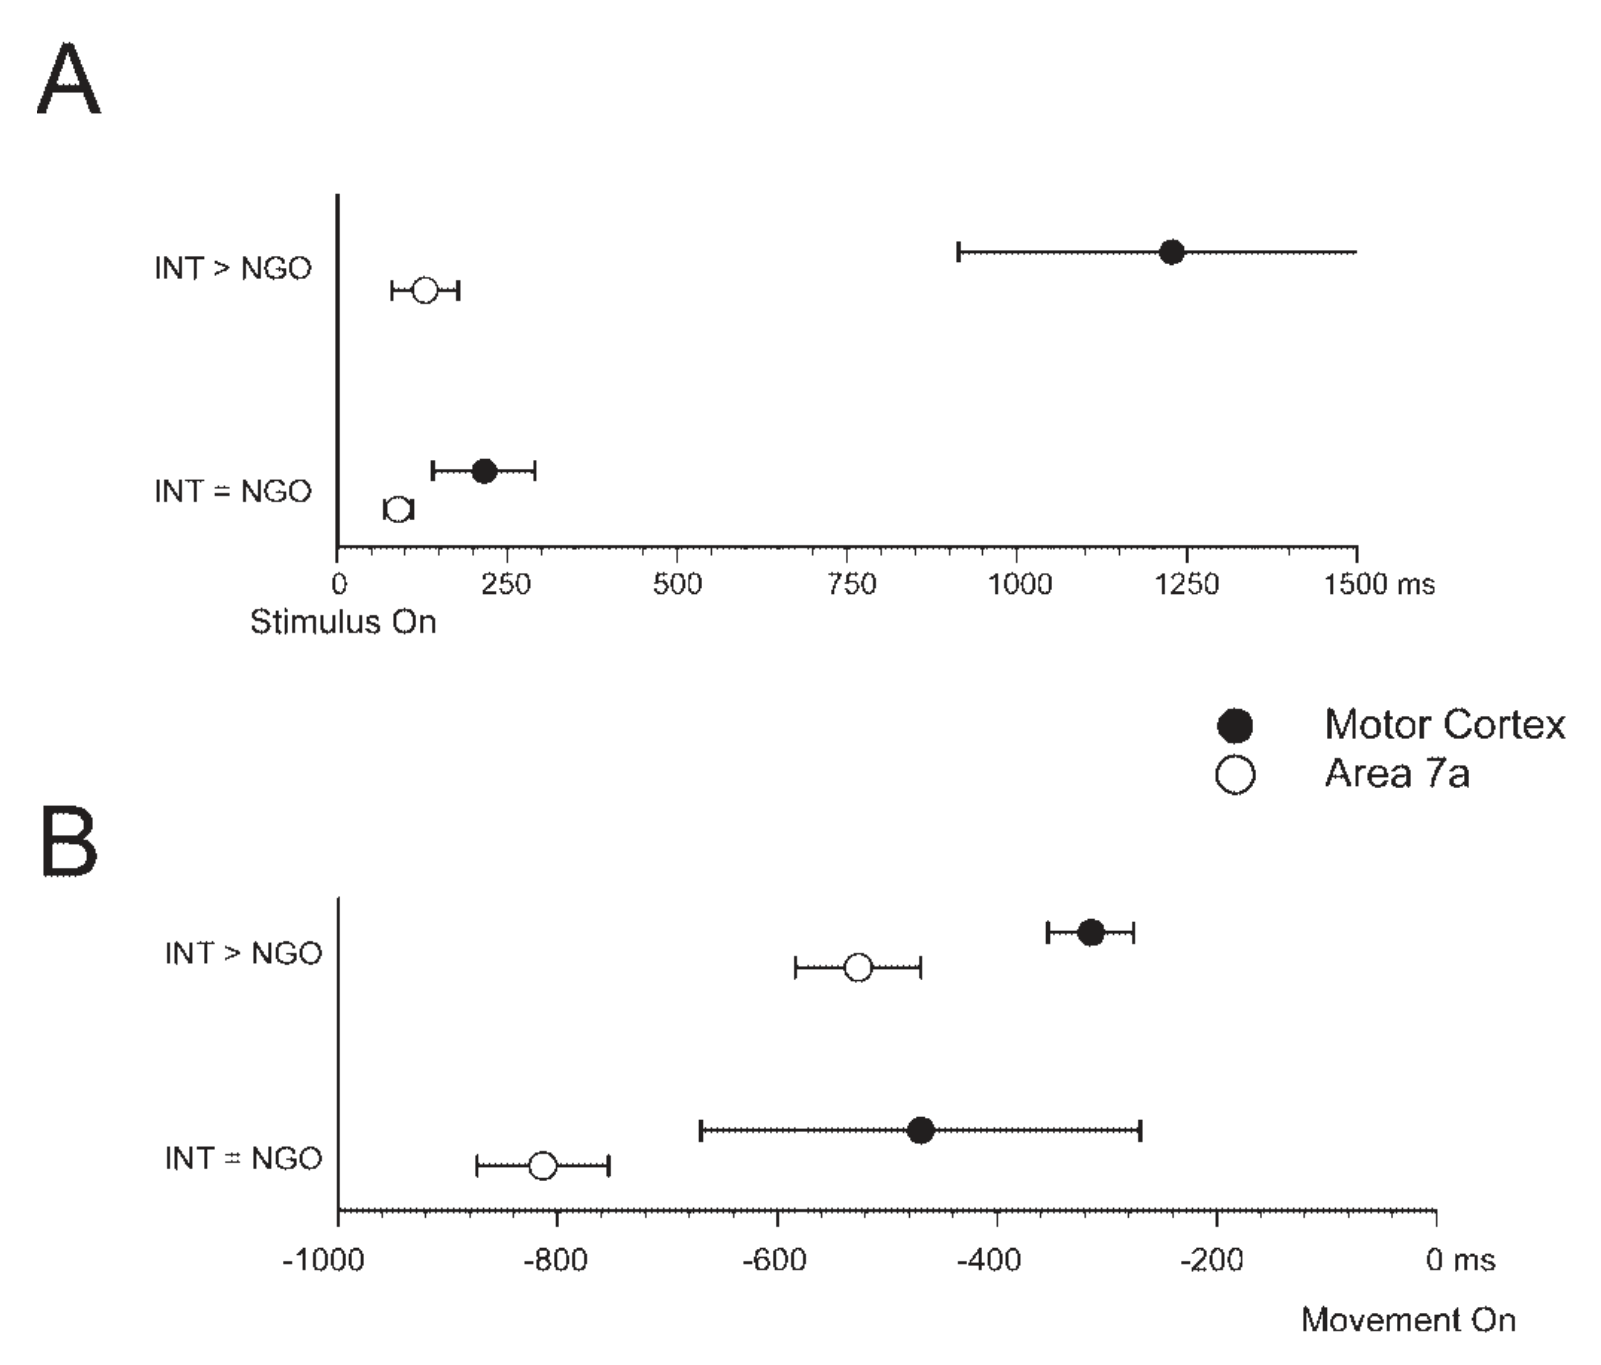 原文 Fig. 16 · PDF 第 14 页
图16 · 起始时刻汇总。 对齐方式、筛选和变异影响脑区差异,不能直接推断单向传递。
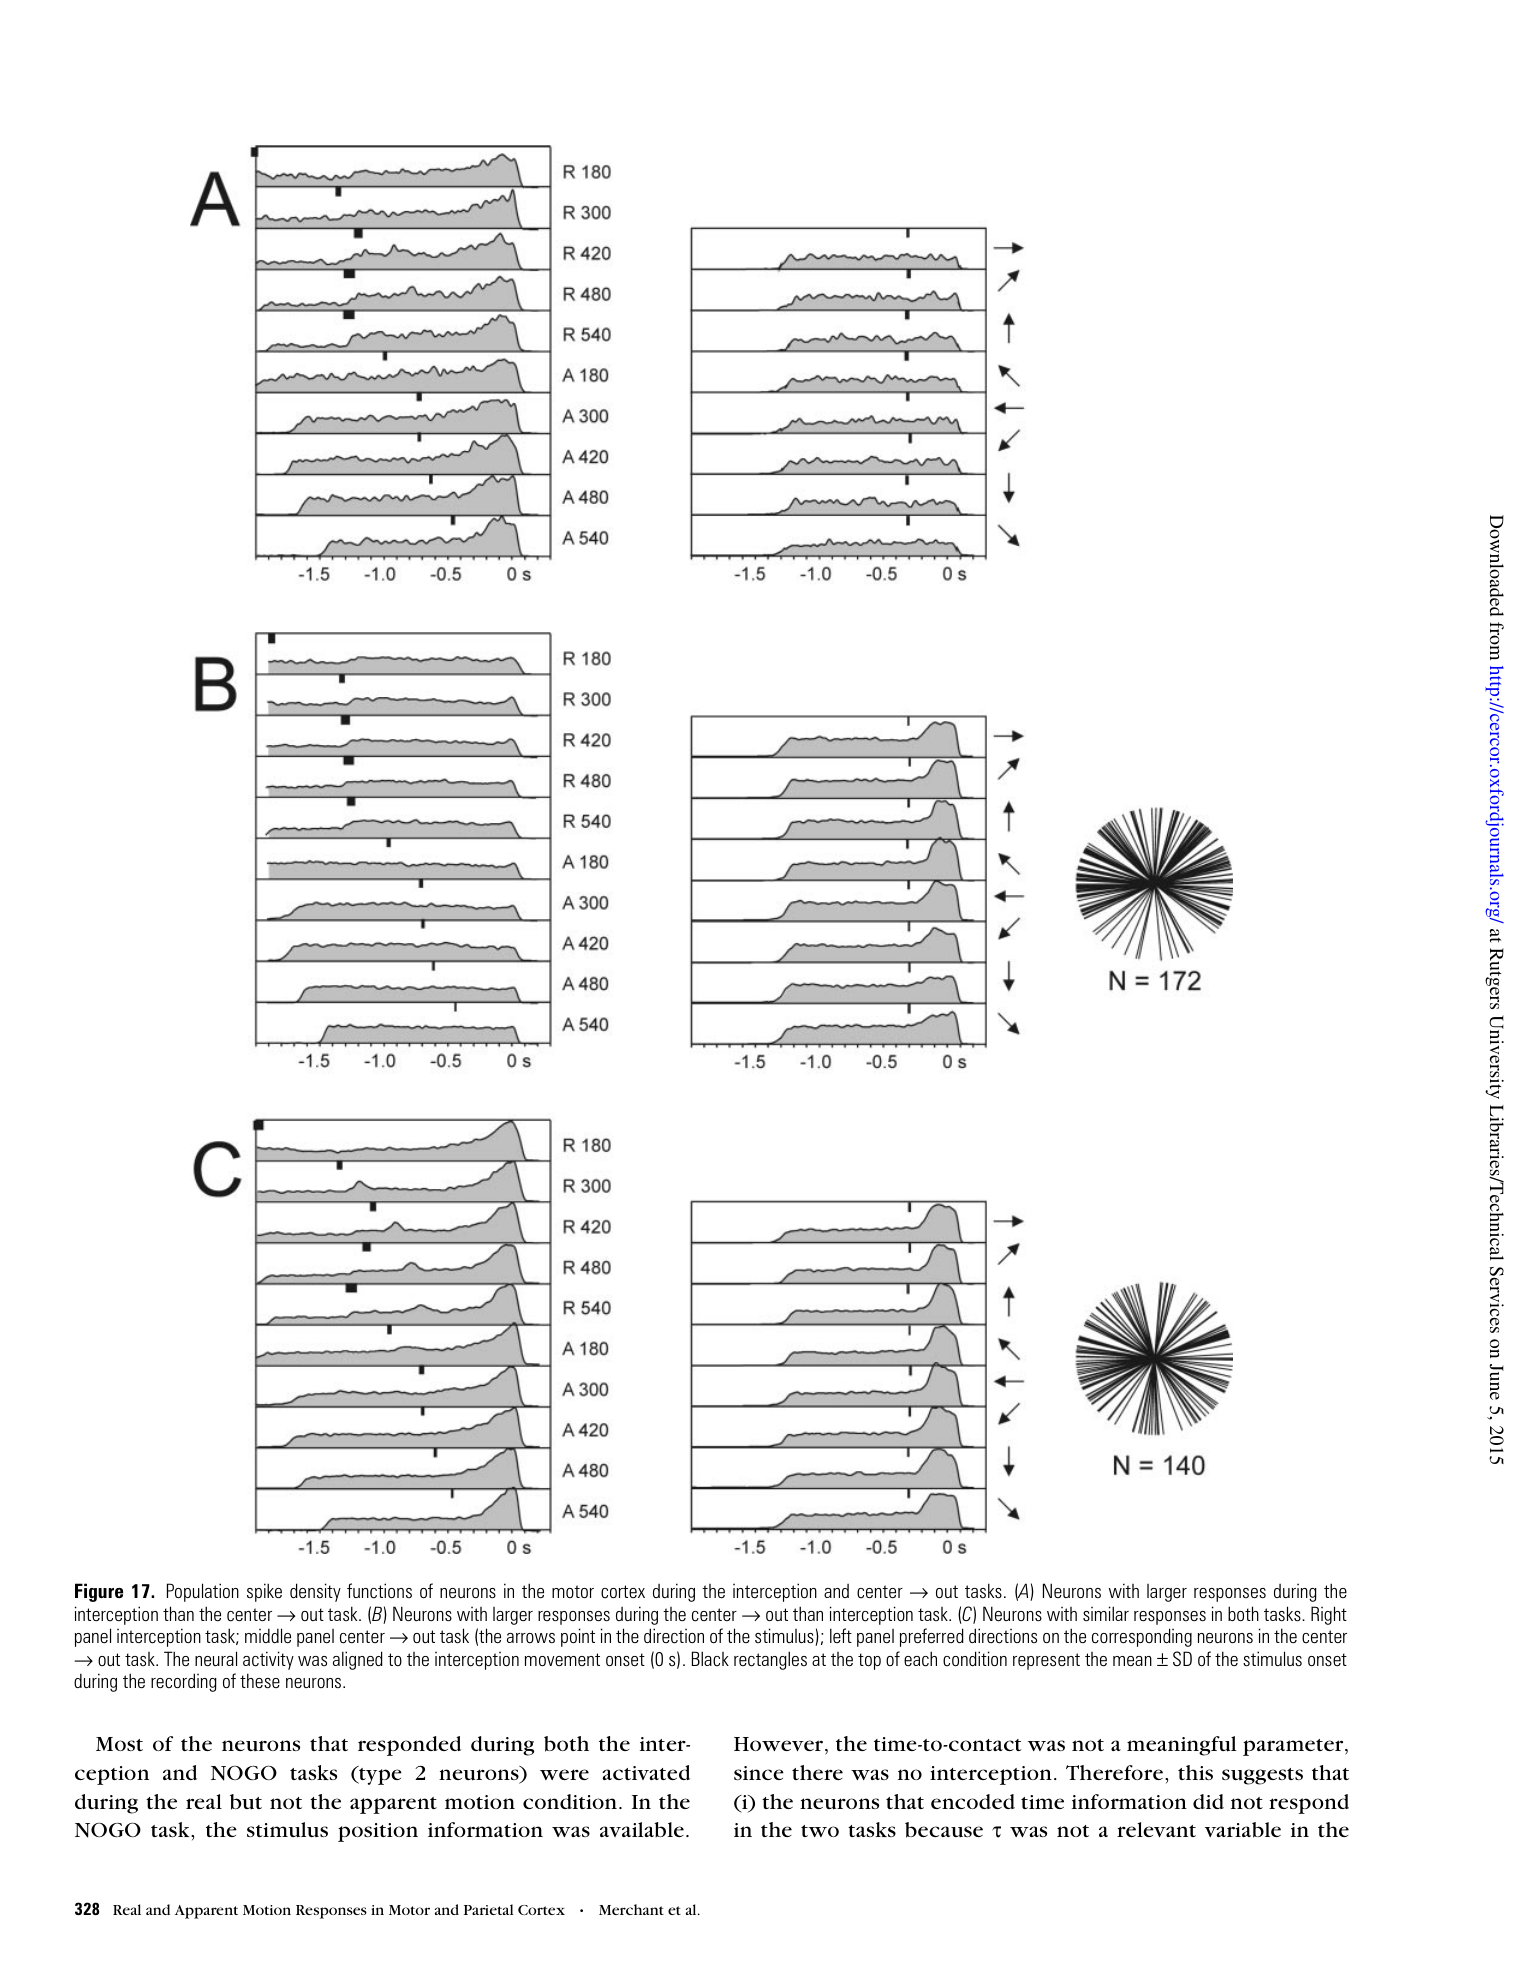 原文 Fig. 17 · PDF 第 15 页
图17 · 静态与拦截对照。 方向分布帮助解释任务差别,未排除全部运动学或准备混淆;原图倒置已修复。
讨论与解读边界
行为没有清楚支持单一固定阈值模型,神经相关也不能替行为“裁决”策略。apparent条件可使用闪现间隔,猴是否具有与人相同的运动知觉未直接测量。H01的tau基于手运动,本篇tau基于目标到达,不能把两文百分比当作同一编码的增强。原文图3图注把左右写反,应按轴标签读;图6的手位置/速度标签也应结合方法中的力变量理解。
思考问题
- 打乱闪现节律并独立改变目标到达时间,能否区分运动重建与间隔计时?
- 在对称时移范围和留出试次检验下,参数重要性、领先关系与负关联是否仍成立?