F10 · Neural manifolds for the control of movement
Gallego, J.A., Perich, M.G., Miller, L.E., & Solla, S.A. (2017). Neuron, 94, 978–984. doi:10.1016/j.neuron.2017.05.025
这篇2017年Perspective用低维流形组织运动准备、执行与学习的证据。它区分群体模式和模式随时间的活动,并讨论连接可能施加的约束;流形的几何描述尚不是唯一机制。
核对依据:Zotero 条目 · 本地全文。本轮核对原文方法、关键结果、解释边界及所引主图;更新于2026-09-20。图注页码采用本地PDF文件页序,版本与未解决问题见正文及审查记录。
背景
高通量神经记录技术展现出一个鲜明的实验对比:单个运动皮层神经元的放电曲线高度异质且难以捉摸,而整个神经群体的协同活动却往往能被少数共同协变模式紧凑概括。假若每个神经元均拥有独立的自由度,群体状态本应充斥极高维的解剖空间;实际记录中表现出的强协动性表明,回路在具体任务中能够访问的状态空间受到物理与功能的严格约束。神经流形(neural manifold)由此成为连接微观单细胞放电与宏观群体计算的数学桥梁。然而,仅在统计上分离出少数主成分,并未自发阐明这些几何约束源自何种突触架构,亦未厘清相同的流形结构能否在准备、执行以及运动技能习得过程中保持跨情境的稳定性。本文发表的核心目的,正在于推动低维现象由单纯的数据压缩手段,演进为探索运动控制底层组织逻辑的理论架构。
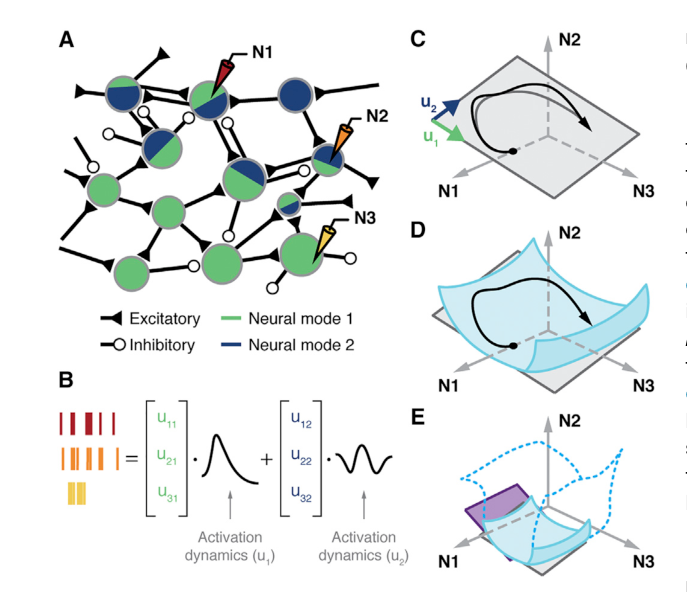
理解该框架首先需要严格区分神经模式(neural modes)与潜在动态(latent dynamics):前者定义了不同神经元以何种代数权重参与共同协变(即状态空间中的几何基底向量),后者刻画了这些模式随物理时间演进的即时激活强度。同一组静态流形基底可以容纳千变万化的动态轨迹,因而神经时程的重塑并不等价于流形结构自身的瓦解。其次,神经流形与外周输出空间属于两个截然不同的物理概念;即便神经状态完全局限在低维流形内部,该轨迹在投影到下游特定肌群或解码器权重时,仍可能绝大部分落入不引起物理动作的输出零空间。脑机接口学习实验赋予了这一几何区分明确的行为意义:在既有流形内部重新组合模式的激活时序相对容易,而迫使神经群体生成全新的协变模式则面临巨大的学习阻力。由此,研究的核心缺口不再局限于测算流形究竟包含多少维度,而在于阐明这种群体几何约束如何界定动作准备、运动执行以及运动技能重构的学习边界。
这篇Perspective文章以猕猴等长手腕测力任务中的多通道记录为实证切入点,剖析了协变模式的提取逻辑,并将准备期与运动期的正交子空间划分、脑机接口流形学习约束以及任务训练循环网络模型熔铸于统一概念体系中。文章旨在阐明低维流形如何系统串联原本碎片化的神经现象,并提出了突触连接约束、跨任务流形复用以及非线性曲面流形等未来课题。该文属于观点综述而非单一新实验报告,图示的三维流形仅用于定性说明,不可视作已完全无损重构了68个记录单元的全部生物信号。短期脑机接口实验中流形外模式学习受阻的事实,并不意味着神经系统在长期训练下绝对无法突破既有流形;几何表征的重构亦不能草率外推为突触物理连接的永久改变。共同外部传入、严格受限的任务几何以及跨试次平均均能人工降低测算维度,因此流形的唯象描述效用必须与其真实的神经生物学机制严格剥离。文中的各项立论应严格锚定在2017年的证据语境下,尤其不可将当时尚处于初期的运动学习数据拔高为普遍适用的刚性法则。
研究思路
以等长手腕测力任务的多通道记录为例阐释流形分解原理,进而贯通准备期子空间重组、脑机接口流形学习约束及循环网络模型,并前瞻跨任务共享流形与非线性流形拓展方向。
方法
本文为观点与前瞻性综述(Perspective),包含教学性示例分析与既有文献综述,未设置统一的大样本新增实验队列。文中的PCA分解范例取自68个同步记录的运动皮层神经元;神经模式对应高维神经空间中的正交向量基底,潜在动态对应沿各基底展开的时变投影系数。
文中各图分别索引自不同课题组的代表性成果,输出空间投影、流形内与流形外扰动范式以及循环网络架构的数学定义各异,不可直接混淆替代。关于跨天长期适应与新流形生成的讨论部分引用了当时的会议摘要,文本严格保留2017年发表时的特定历史证据语境。
主要结果
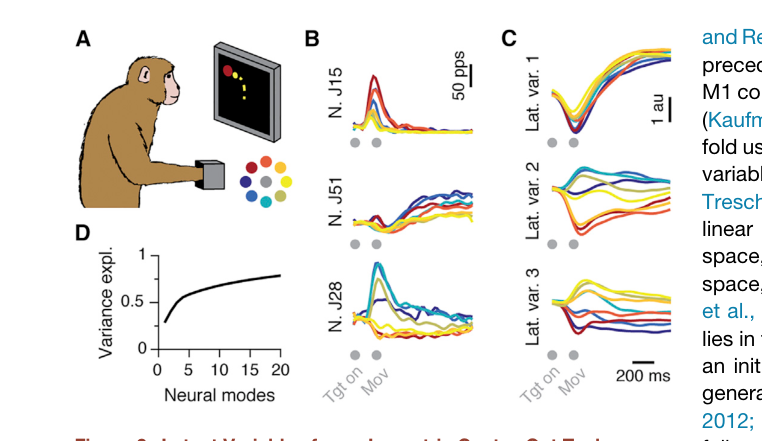
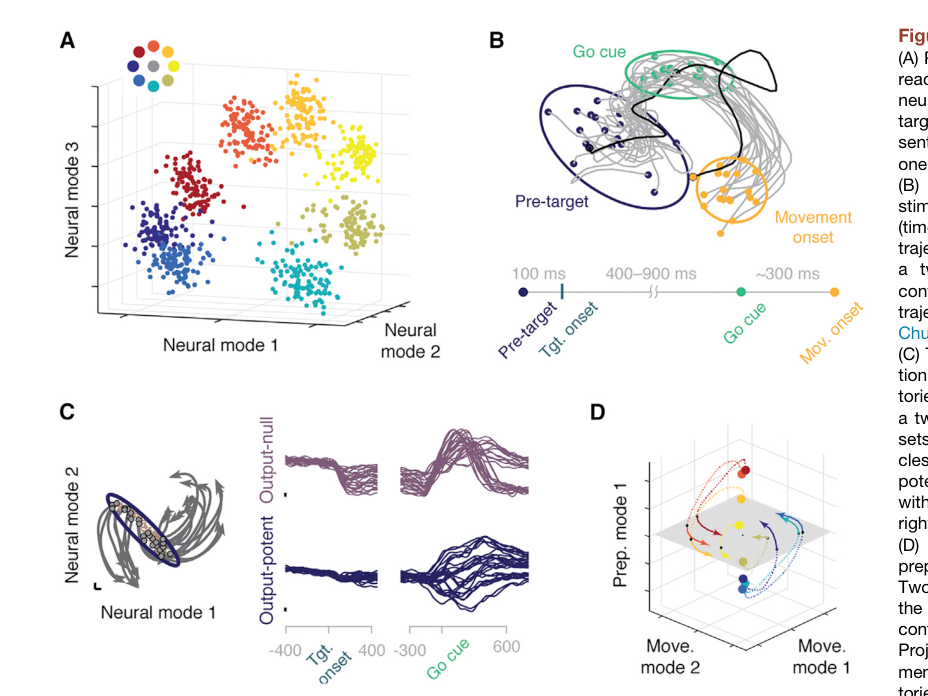
少数主导神经模式足以捕获示例群体的主要方差,但三维可视化展示仅为几何示意,不可等同于完全无损恢复了68个神经元的高维信息。准备期神经活动在对应下游输出矩阵的零空间(null)中占据主要方差比重,有力佐证了运动准备与肌肉输出在几何层面的解离。
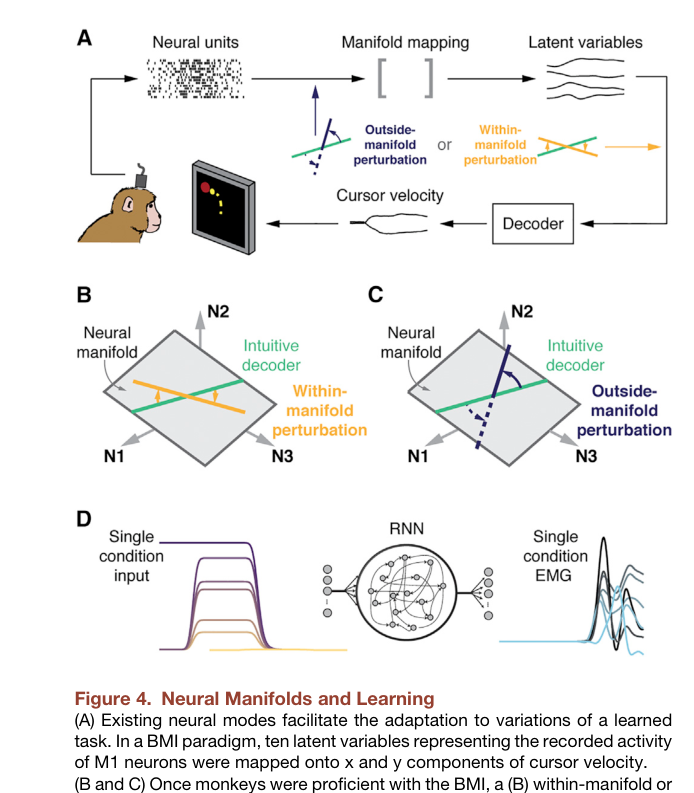
脑机接口实验表明,受试动物在数小时的短期会话中能够快速习得流形内的重组合映射,而难以掌握要求生成全新神经模式的流形外映射;但这体现的是短期适应的学习阻力,而非永久性的生理极限。循环网络建模表明,解剖连接稀疏性与任务优化目标共同塑造了低维流形拓扑,但不意味着每次行为模式的改变都必须依赖突触物理权重的结构性重塑。
综述进一步将流形概念拓展至其他脑区及低等生物模型(如海兔Aplysia足神经节的节律运动)。在无约束自然动作中是否必须采用非线性流形表征、不同运动任务之间如何动态复用或拼接共享流形,在本文中均作为开放性科学问题保留。
逐图解读
 原文 Fig. 1 · PDF 第 2 页 · 原文图像 · 查看来源
图1 · 模式、权重和流形。 B为概念分解示意,不是三细胞新实验;C–E区分线性近似、曲面及跨任务关系。
 原文 Fig. 2 · PDF 第 3 页 · 原文图像 · 查看来源
图2 · 等长腕任务示例。 单细胞、三个潜变量和累计方差曲线互相参照,不能把前三模式写成全部响应。
 原文 Fig. 3 · PDF 第 4 页 · 原文图像 · 查看来源
图3 · 准备与执行的不同证据。 四面板来自不同研究,支持相互联系的解释,但并非一条已完整验证的因果链。
 原文 Fig. 4 · PDF 第 5 页 · 原文图像 · 查看来源
图4 · 学习与模型约束。 流形内外BMI扰动和RNN比较说明可学习性及结构约束,不证明最少连接或永久不可改变。
讨论与解读边界
神经流形几何、潜在演化轨迹与外周输出读出属于三个不同抽象层次。低维性绝不意味着单个神经元的特异性放电缺乏计算价值,亦不意味大脑仅存在一个僵死固定的全能流形。广泛的共同输入、人工简化的实验范式以及跨试次统计平滑均可能在数据层面诱导出表观低维性,在机制归因时必须将其与突触解剖层面的内生约束审慎区分。
思考问题
- 扩展到自然抓握及多任务后,原线性子空间能覆盖多少活动和行为?
- 控制共同输入与行为后,怎样用干预检验连接变化对流形的具体预测?