C07 · Inconvenient truths about neural processing in primary motor cortex
Stephen H. Scott(2008) The Journal of Physiology, 586(5), 1217–1224. doi:10.1113/jphysiol.2007.146068
这篇观点文章建议把M1研究从寻找单一编码变量,转向检验神经活动如何参与反馈控制。它提出研究纲领,没有以新实验裁决所有编码理论。
核对依据:Zotero 条目 · 本地全文。本轮核对原文方法、关键结果、解释边界及所引主图;更新于2026-09-20。图注页码采用本地PDF文件页序,版本与未解决问题见正文及审查记录。
背景
初级运动皮层(M1)如何将中枢意图转化为外周肌肉活动,长期以来在运动神经生理学界被经典地表述为“皮层神经元究竟编码什么参数”的争论。实验证实,运动方向、运动速度、关节角加速度、力矩以及肌肉激活等多种运动学与动力学变量,均能与 M1 神经元的放电率建立统计学相关,由此衍生出截然不同的理论解释流派。一类传统视角将运动控制看作从高阶外在空间坐标(如笛卡尔手部目标)向低阶内隐坐标(如关节角度、肌肉力矩)逐级映射的纯前馈串行坐标变换过程;另一类视角则借鉴经典的经典工程伺服控制,将每个关节视作由期望角度与实测角度之差驱动的局部负反馈纠错装置。这两类经典框架各自抓住了运动控制的局部特征,却共同陷入了深刻的理论困境:真实的人体多关节肢体具有极强的跨关节生物力学几何耦合与速度依赖性相互作用力,神经传导与中枢处理存在显著的感觉延迟,且单个 M1 神经元与某一特定运动变量的统计相关性往往随着动作距离、速度或姿势情境的改变而发生剧烈变动。单纯在受限任务中寻找神经放电与孤立物理量的相关性,无法从根本上澄清该皮层活动在闭环控制链条中究竟承担了何种动力学运算。
Scott 在这篇研讨会观点文章中提出的核心质疑,正是针对传统“固定单一参数编码”假设在跨任务、跨动力学条件下的鲁棒性边界。若一个 M1 神经元的功能本质是稳定表征某种内在或外在物理参量,那么当运动距离、峰值速度或肢体静态姿势发生系统改变时,其调谐剖面理应展现出具有确定数学规则的线性缩放;然而,已有的单细胞记录证据表明,皮层神经元的增益调制呈现高度复杂的非线性特性,且其对负荷力矩的敏感性在维持静态姿势与主动伸手之间可发生本质性反转。同样地,将每个关节视作高增益独立纠错器的伺服假设,在面对数十毫秒的感觉延迟与跨关节动态交互时,极易诱发控制发散与机械失稳。因此,当前神经科学的核心理论缺口不再是“还需要继续寻找哪一个未被发现的编码变量”,而是缺少一个能够将神经元群体活动、非线性肢体生物力学与即时行为目标统一起来,并对感觉扰动后的动态响应作出定量预测的闭环控制框架。基于内部前向预测的状态估计与最优反馈控制理论,为重新组织这些看似矛盾的实证事实提供了关键切入点。
文章据此倡导将 M1 置于感觉与运动持续双向交互的闭环控制系统中进行理解,借助最优反馈控制理论系统阐明外发运动指令副本、滞后的外周感觉反馈以及行为任务代价如何共同塑造皮层下达的运动纠正动作。若快速感觉反馈响应与高阶随意运动控制共享关键的皮层计算基质,那么长潜伏期反射响应就理应表现出清晰的任务目标依赖性、多关节生物力学整合能力以及跨试次的可学习性;这些基于控制理论的明确假说相比于单纯在相关性层面争论编码变量,具有远为强大的实验可证伪性。需要明确的是,本文是一篇观点性研讨会评述,并未报告新完成的实验队列来终局性地裁决相互竞争的编码理论,文中部分关键预测在发表当时仍主要依赖于初步的会议摘要与理论外推。文章的核心定位在于确立面向未来的研究纲领,既未在突触微回路层面证实各项最优计算的具体生物物理实现,亦未排他性地证明最优反馈控制是唯一可能的理论解释,更不能简单粗暴地全盘否定经典表征分析方法的科学价值。
研究思路
作者回顾单关节伺服控制和坐标变换两种框架的局限,再讨论最优反馈控制如何产生新的扰动实验预测。
方法
本文是研讨会报告,没有新受试者或新记录数据。图1、2、5是理论框架,图3、4转载既有神经记录结果。有关反馈延迟、跨关节动力学和任务依赖的论证来自不同研究,不能视为同一实验中的完整证据链。
主要结果
经典的逐关节独立高增益伺服控制假说在面对真实的神经传输延迟与多关节动力学耦合时存在致命的稳定性局限;但这并不意味着所有的负反馈控制机制都会在生物力学系统中失去稳定。通过结合外发运动指令副本与滞后外周感觉输入的内部状态估计机制,为中枢在显著时延条件下维持闭环控制稳定性提供了连贯的计算解决方案。
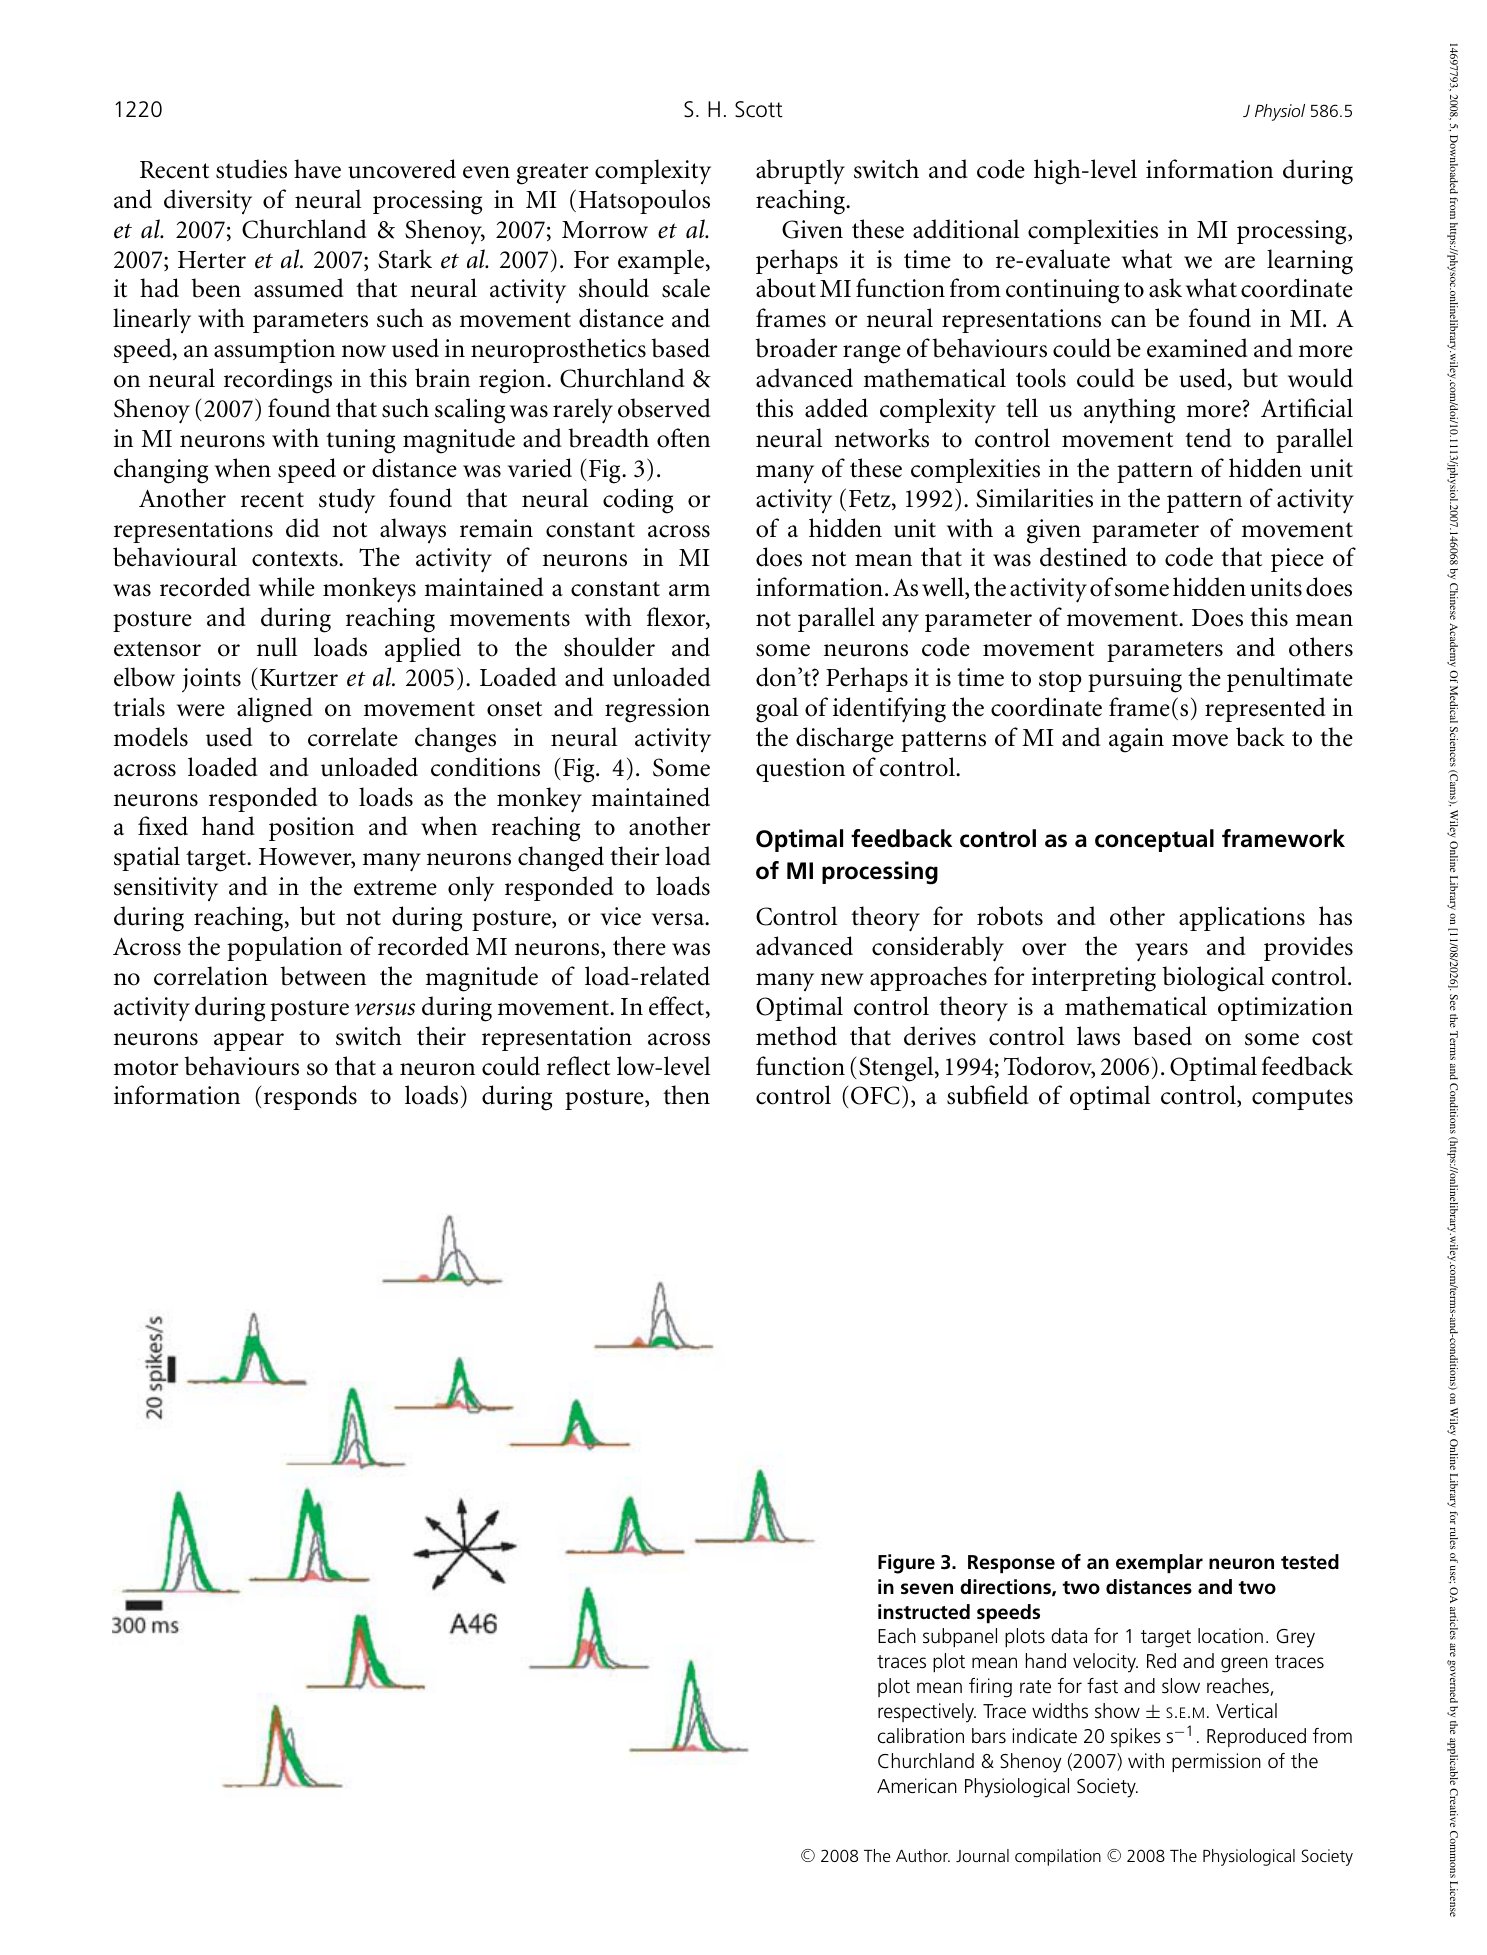
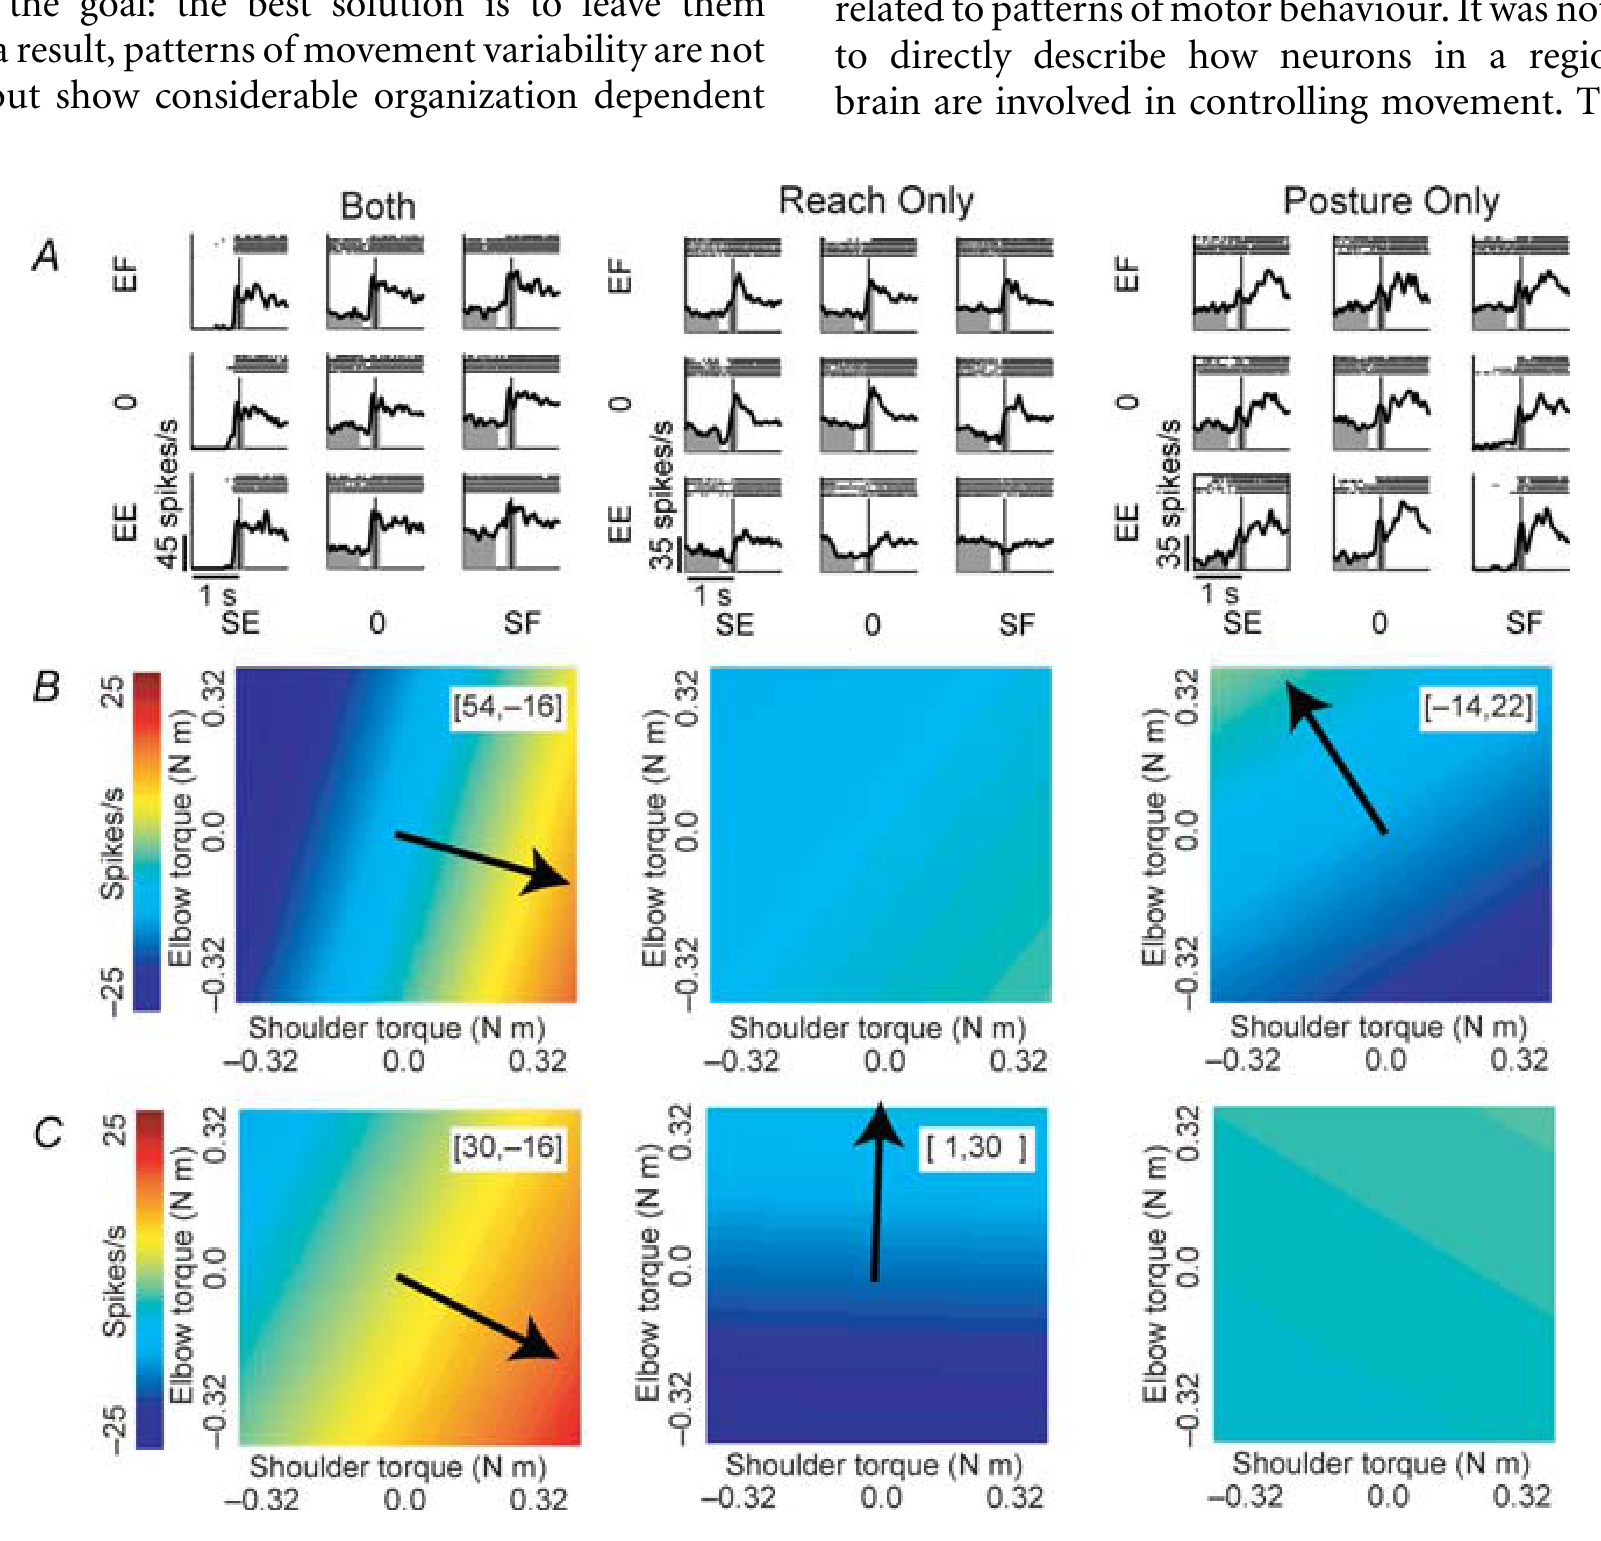
已有的电生理记录数据显示,相当一部分 M1 神经元的方向调谐剖面并不会随运动距离与执行速度的改变而发生简单的线性等比缩放,且细胞对外部机械负荷的敏感性在维持静态姿势与执行主动伸手动作之间可能发生显著反转。这些实验事实显著削弱了单一、固定坐标系下的刚性参数编码假说,但这并不意味着表征分析方法本身彻底丧失了科研价值。
作者据此提出核心理论预测:若长潜伏期快速反馈与经典随意控制在皮层网络中深度共享核心计算环节,长潜伏期肌电响应就理应展现出随任务目标自适应调整的灵活性、对多关节复杂动力学耦合的快速代偿整合能力,以及随环境经验发生重塑的可学习性。在论文发表时,部分预测的经验支撑仍来源于前期的会议初步报告,因而这些能力在本文中主要作为前瞻性的理论预测提出。
逐图解读
 原文 Fig. 1 · PDF 第 2 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
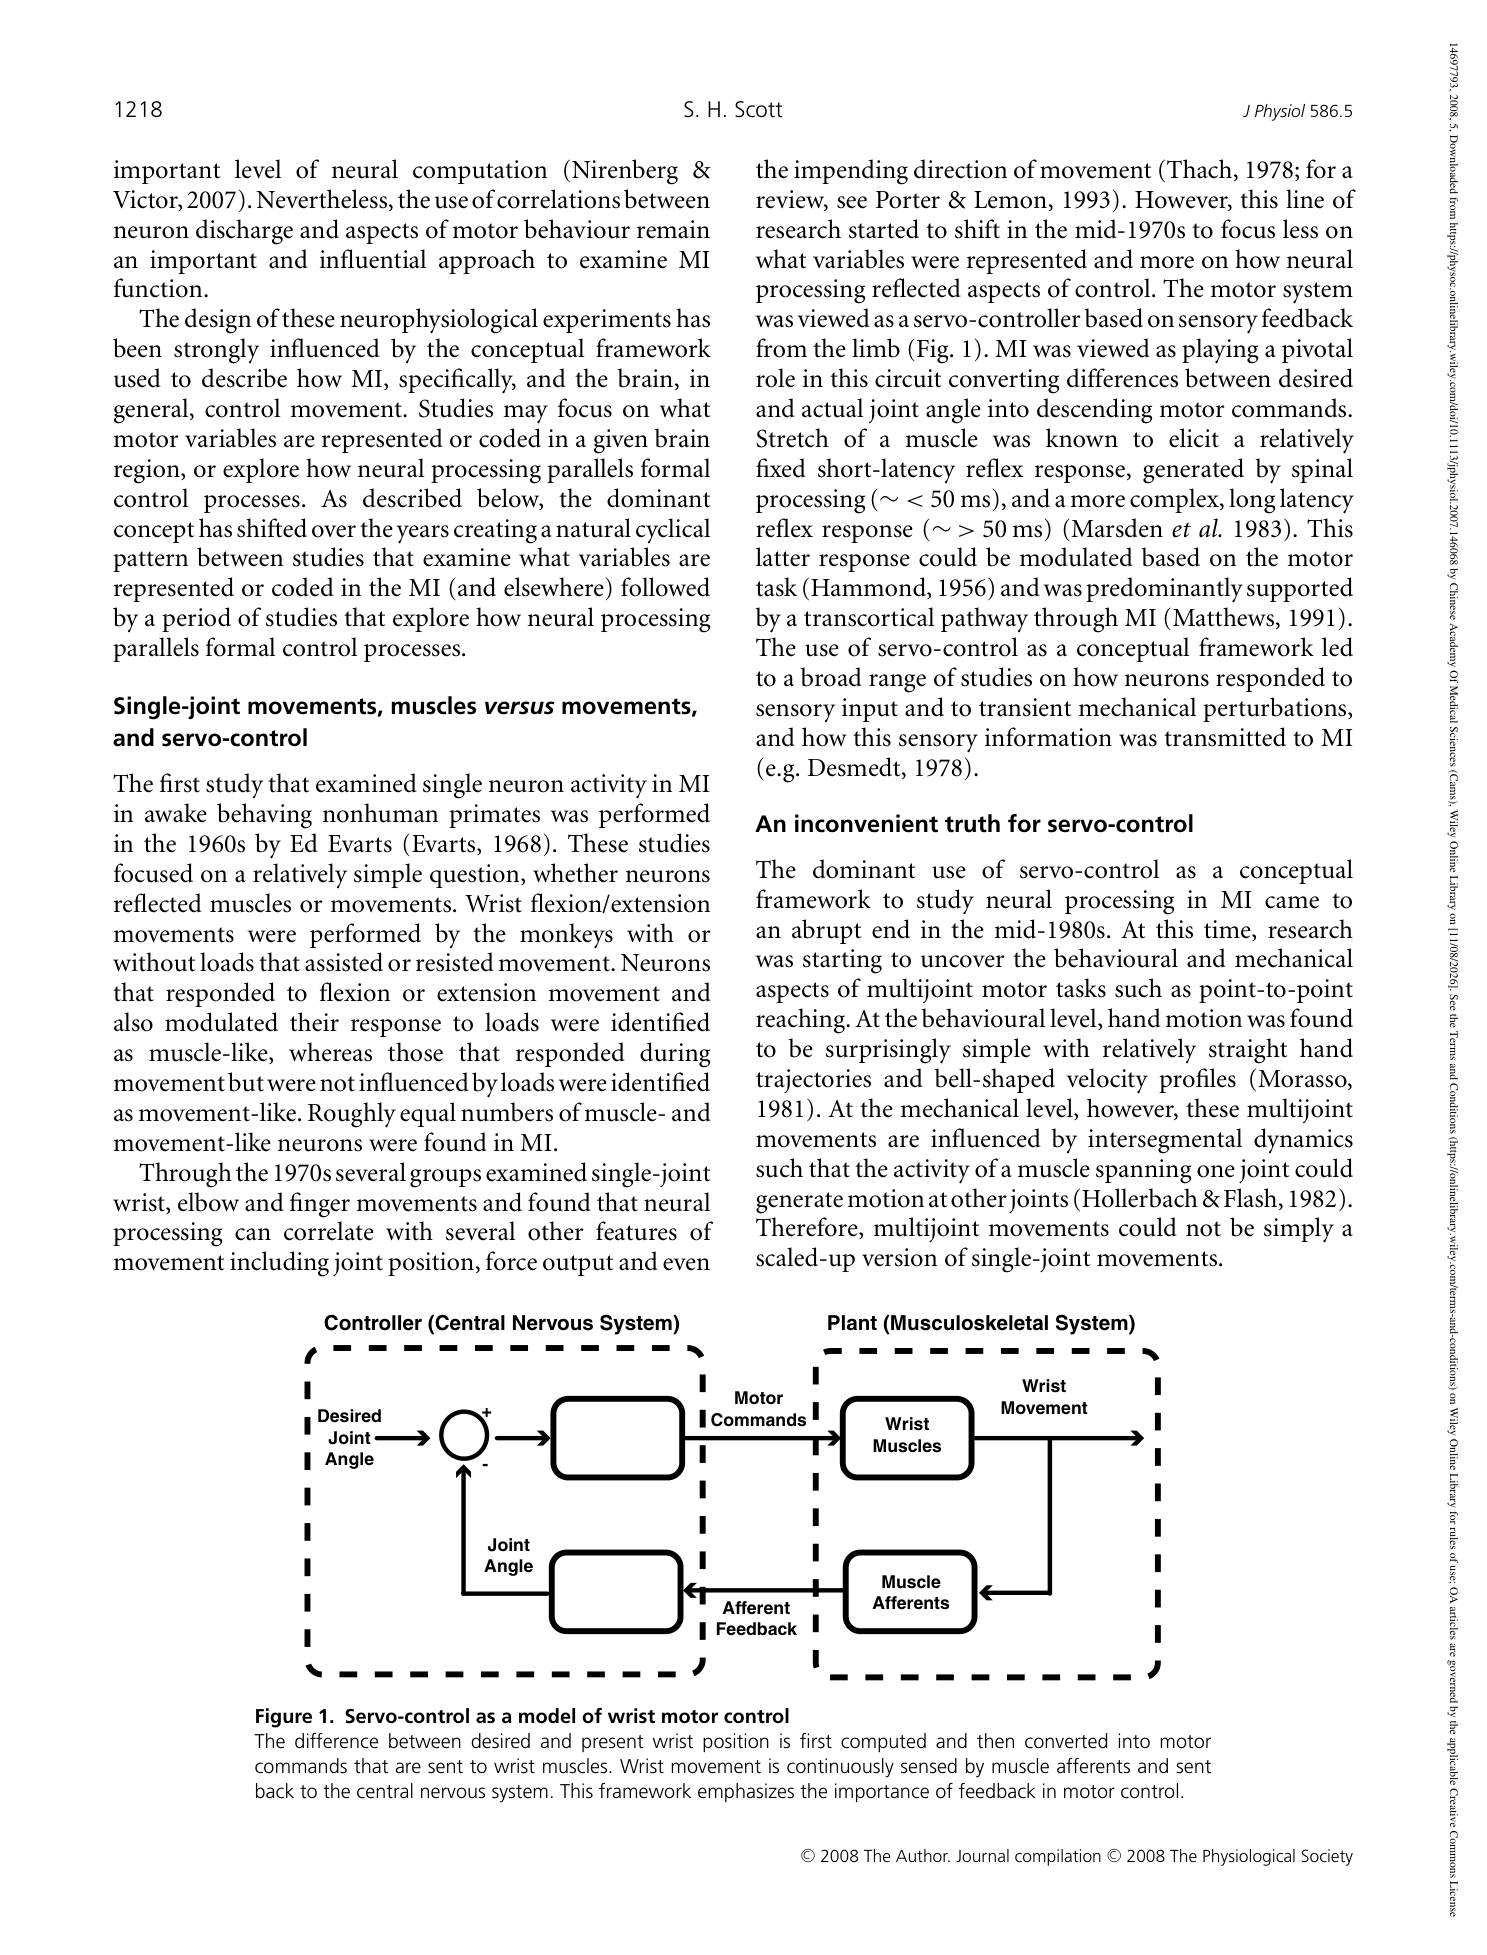
图1 · 单关节伺服控制。 期望角度与反馈角度形成误差信号,驱动肌肉和关节。这是待讨论的简化框架。
 原文 Fig. 2 · PDF 第 3 页 · 原文图像 · 查看来源
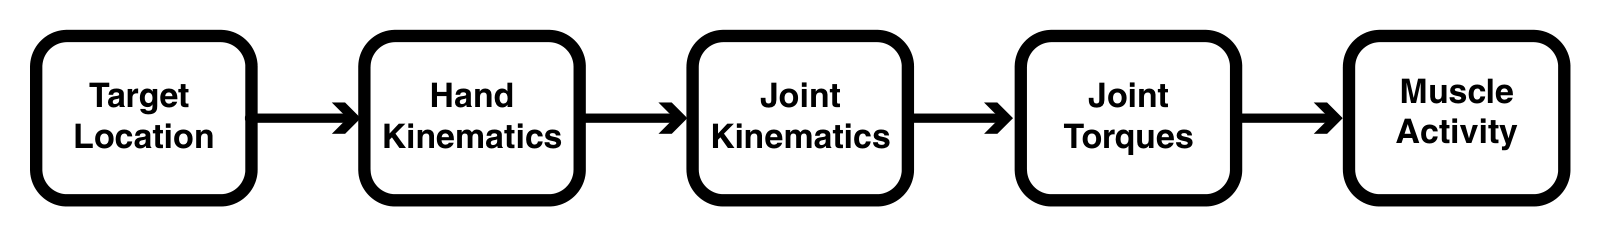
图2 · 假设的串行坐标变换。 从目标到手、关节、力矩和肌肉的箭头表示概念性处理顺序,不是本文测出的解剖连接。
 原文 Fig. 3 · PDF 第 4 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图3 · 速度和距离改变调谐。 同一示例神经元在七个方向、两个距离和两种指示速度下的活动,显示简单比例缩放不足以概括该例。
 原文 Fig. 4 · PDF 第 5 页 · 原文图像 · 查看来源
图4 · 姿势与伸手的负荷敏感性。 三列为两阶段都有、仅伸手、仅姿势时负荷相关的示例细胞;B/C分别为姿势和伸手的平面拟合。
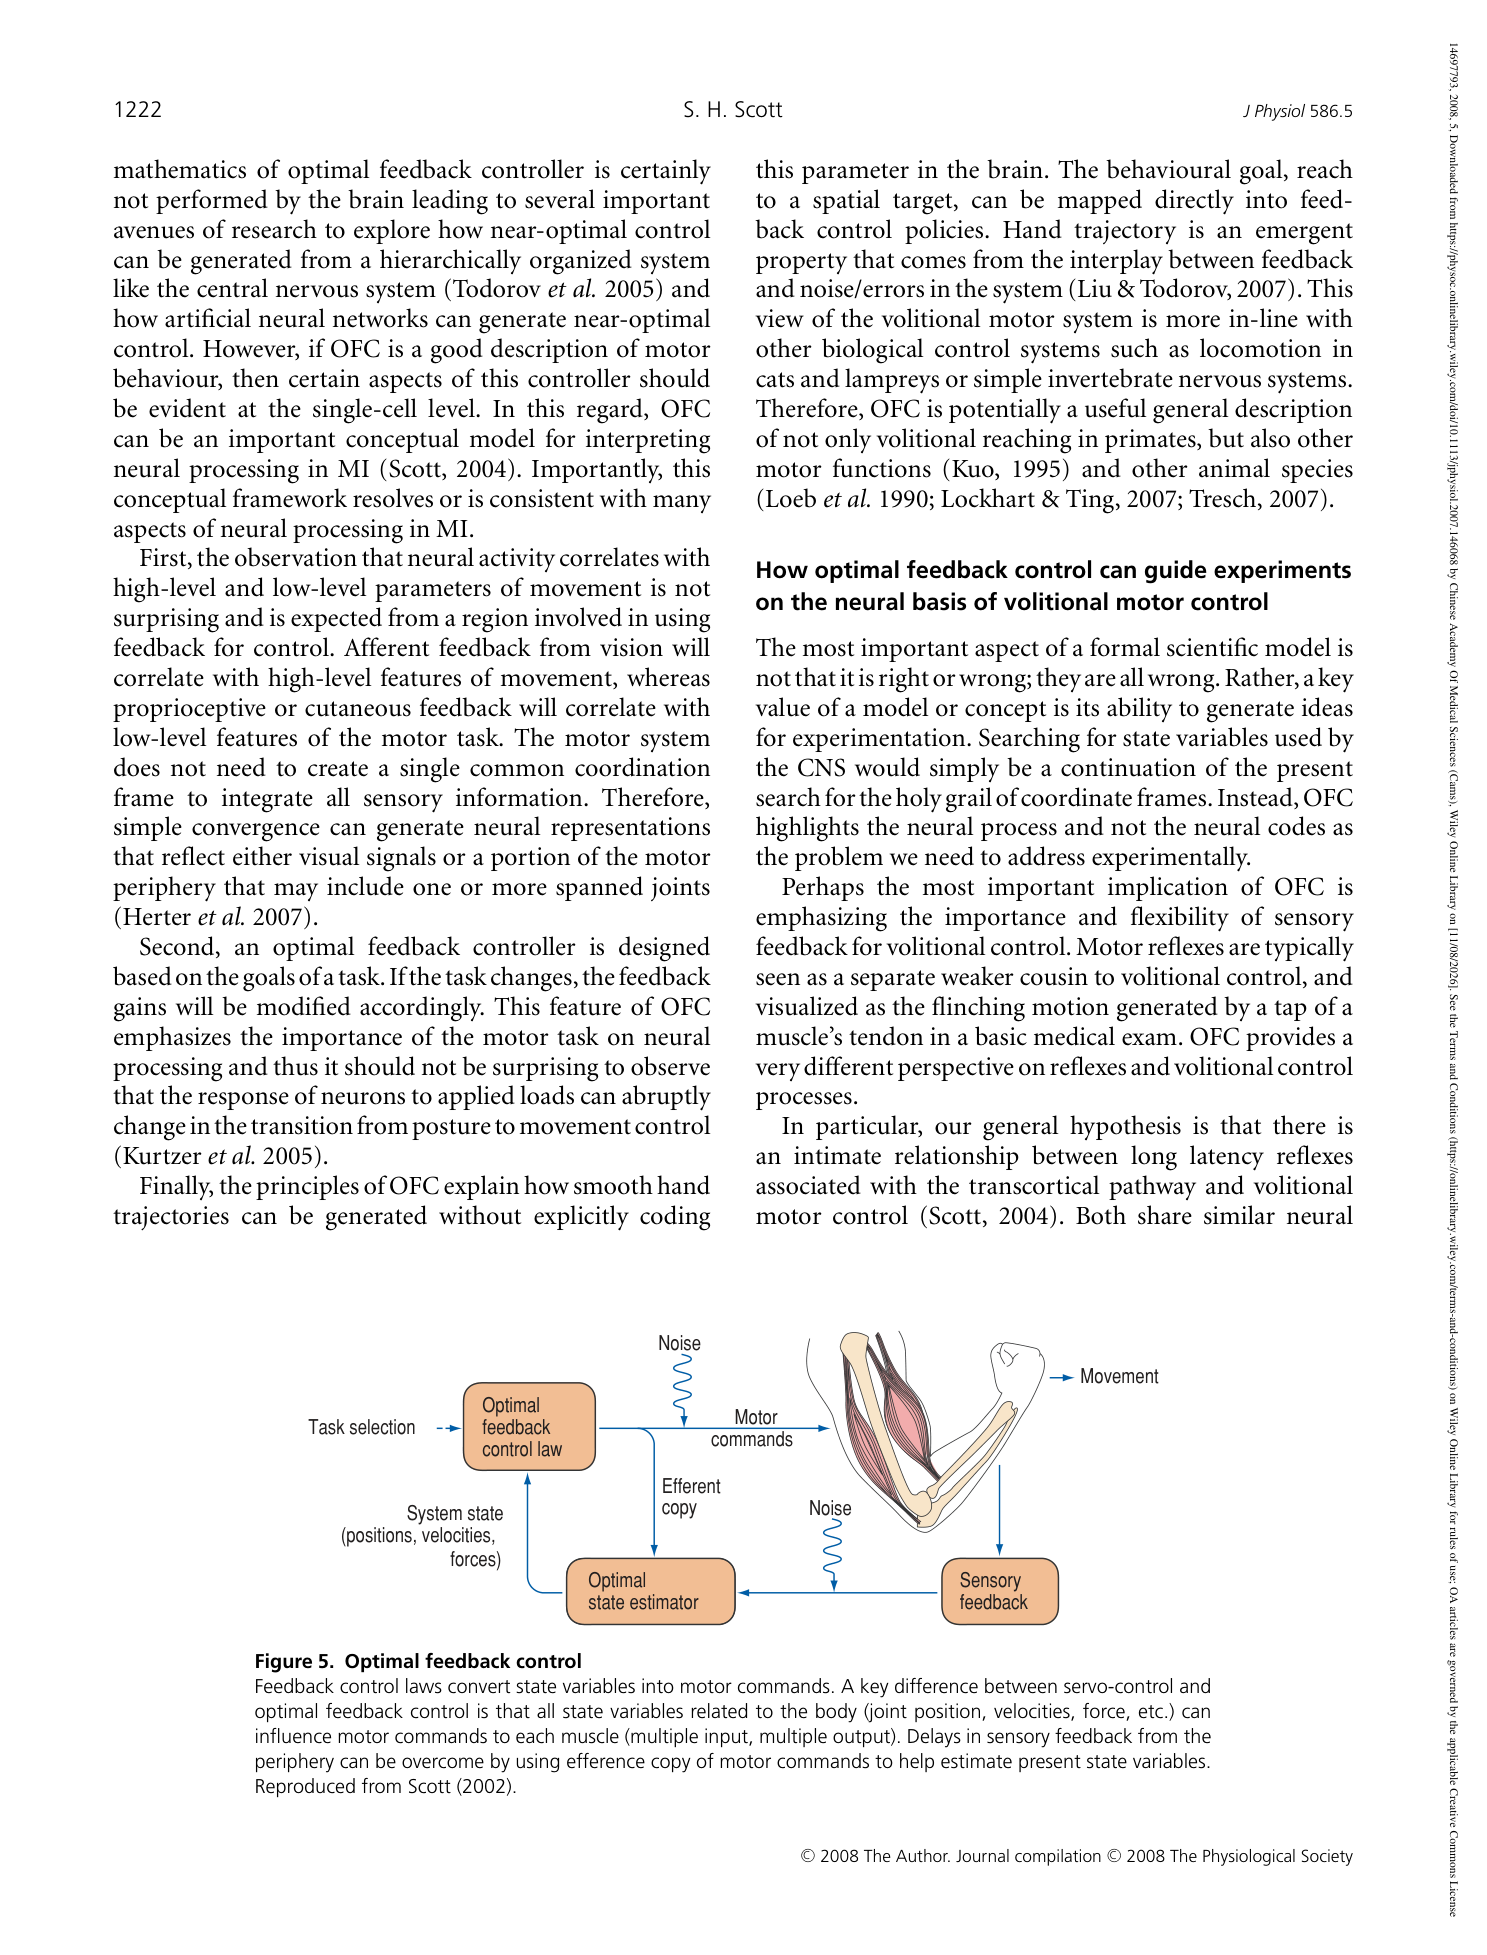 原文 Fig. 5 · PDF 第 6 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图5 · 最优反馈控制框架。 状态估计、反馈律、感觉输入及指令副本共同构成闭环;图示没有指定这些计算各由哪个脑区独立实现。
讨论与解读边界
最优反馈控制首先是一个建立在系统行为与计算层面的控制科学理论,并不能在缺乏生理实证的情况下直接将特定的数学算法映射为 M1 内特定的神经元亚型、突触连接或局部微回路。实验结果与该控制框架在统计上的相容性,亦不能排他性地排除其他具有高灵活性的神经动力学模型同样能够解释此类数据的可能。
后续发表的实证研究固然可以系统检验本文提出的各项假说,但绝不能在文献解读中本末倒置,将后人做出的实验验证倒写为 2008 年这篇观点报告已经完成的机制确证。在对神经元放电的任务依赖性进行评估时,必须将中枢反馈增益的计算调节与注意力焦点转移、准备电位变化以及外周感受器状态的波动严格区分开来。
思考问题
- 哪些新任务能让固定编码、情境依赖读出和反馈控制模型产生不同的跨条件预测?
- 在匹配姿势、负荷和背景肌电后,改变任务代价会怎样影响快速反馈及M1活动?