C02 · Optimal feedback control and the neural basis of volitional motor control
Stephen H. Scott (2004) Nature Reviews Neuroscience, 5, 534–544. doi:10.1038/nrn1427
综述提出把M1放在任务可调的感觉—运动反馈系统中理解。方向调谐、力学敏感性和快速扰动响应可以共同服务于控制,但这些现象尚不足以证明M1实现唯一的最优控制算法。
核对版本:Zotero motor_control_interception_64 集合本地全文(PDF 全文提取,图注与正文互相校订,2026-09-18;图注所标页码均为 PDF 文件页序,非期刊印刷页码);Zotero 条目。
背景
M1活动既与手运动相关,也受肌肉、负载和肢体姿势影响。本文认为,单问神经元“编码肌肉还是运动”不足以解释这些关联,应结合多关节力学和行为目标考察。
研究思路
先比较力学、运动行为和神经相关,再介绍最优反馈控制及M1可能承担的计算,最后提出利用任务变化和瞬态扰动检验反馈策略。
方法
这是单作者叙述性综述,综合人体与动物的行为、单细胞、机械扰动和小脑冷却研究。图中样本来自各原始研究,并非本文新记录的统一队列。
论证区分状态估计、行为目标和将状态转成命令的控制律。状态变量可混合多种感觉信息,因此单一运动变量的相关或可解码性不足以确定神经元的唯一功能。
主要结果
多关节动力学使相同端点运动与不同肌肉、关节负荷相联系。部分任务中群体向量系统偏离手方向,说明方向调谐并不自动使该读出成为普遍准确的手运动指令。
M1接收丰富感觉信息,部分细胞可在机械扰动后约20 ms响应,且响应受维持姿势或运动情境影响。这与灵活反馈相容;作者明确指出,这些改变是否以及如何反映最优策略仍需验证。
齿状核冷却可改变M1扰动响应的较晚部分,支持小脑参与相关反馈处理。综述正文将约60 ms后的响应与小脑影响联系,图4图注却写约20 ms后的较晚响应,二者表述并不一致,不能合成一个精确通用的双阶段时间表。
作者建议比较相同反馈在不同目标下如何改变神经和肌肉响应,并把小脑、顶叶、前运动区、脑干与脊髓纳入回路。规划和执行的分工是相对的,不是绝对分区。
逐图解读
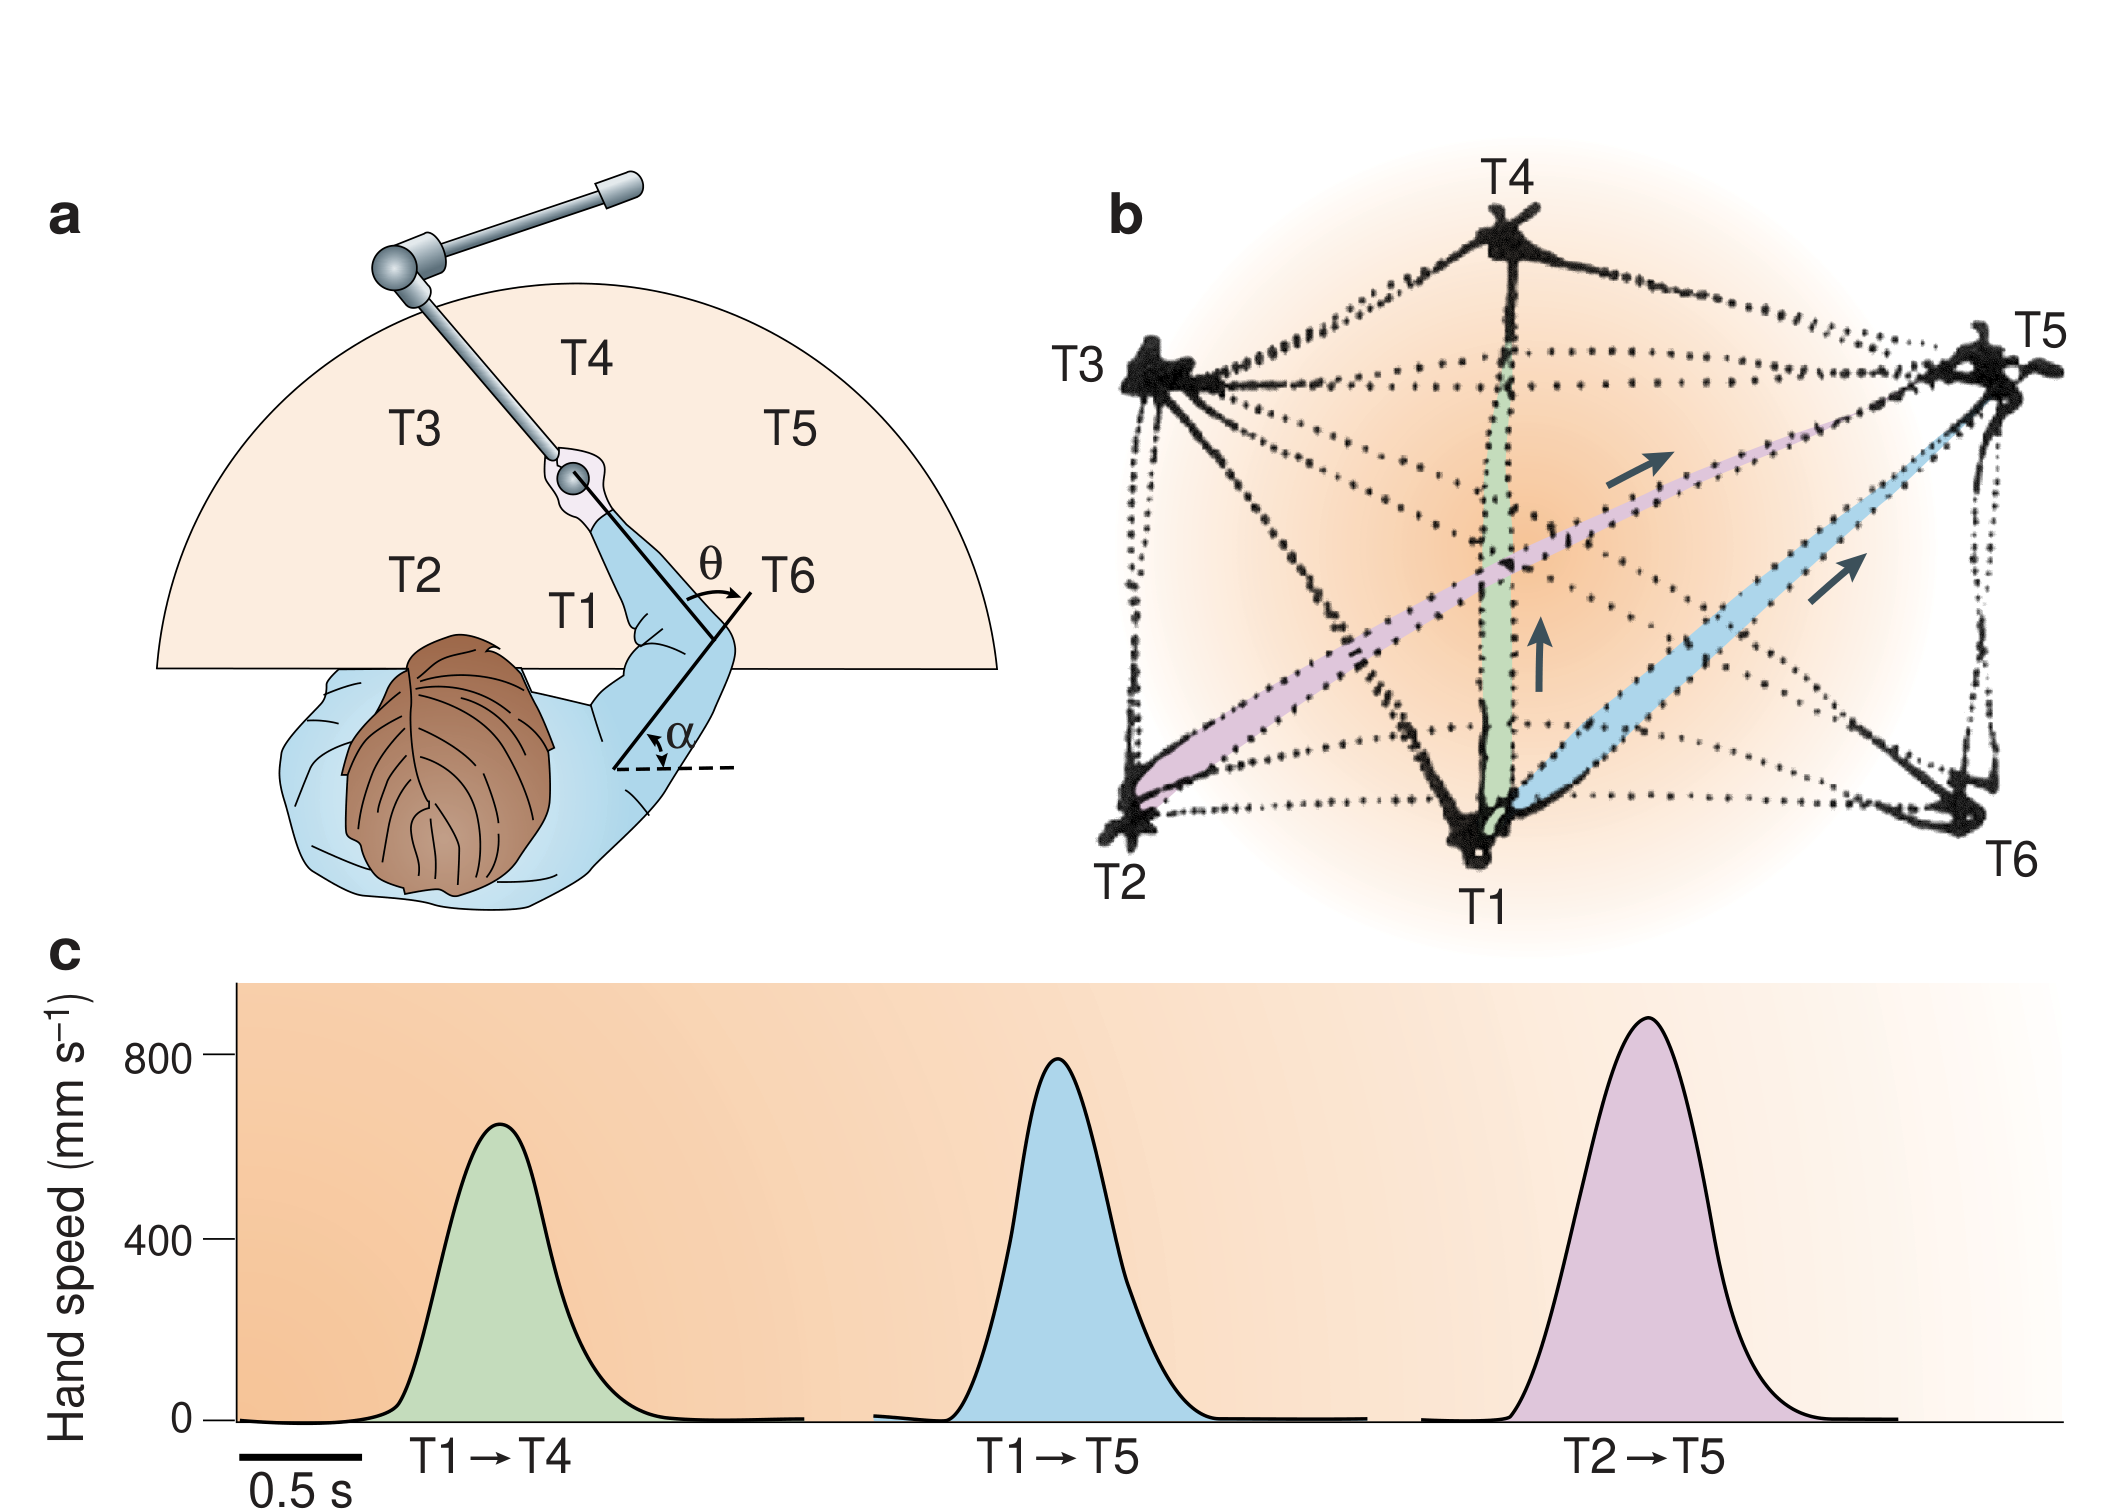 原文 Fig. 1 · PDF 第 5 页
图1 · 伸手的行为规律。 装置、路径和速度轮廓展示相对平直及平滑运动。规律性约束控制模型,但不能单独定位脑内的显式轨迹表示。
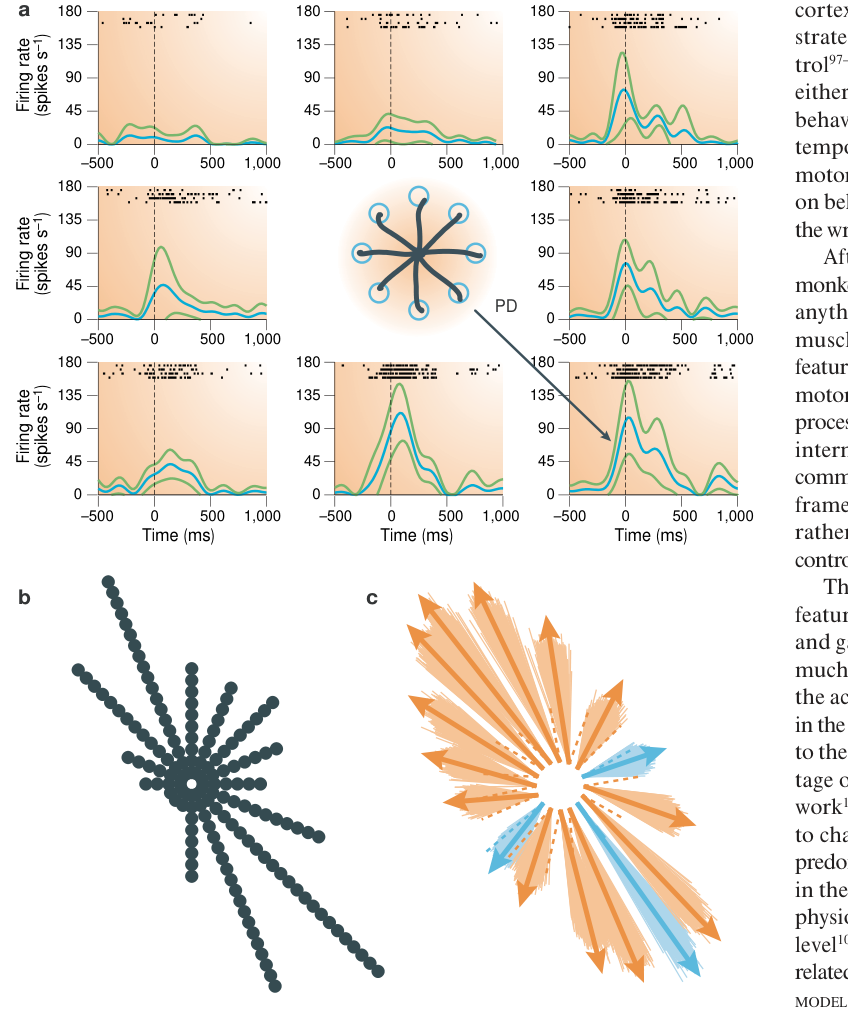 原文 Fig. 2 · PDF 第 6 页
图2 · 方向调谐与群体读出。 A为单细胞示例,B为154个细胞偏好方向分布,C为群体向量及重采样。原图中B/C在下排,并非沿单一横排排列;群体偏差说明读出依赖任务和样本结构。
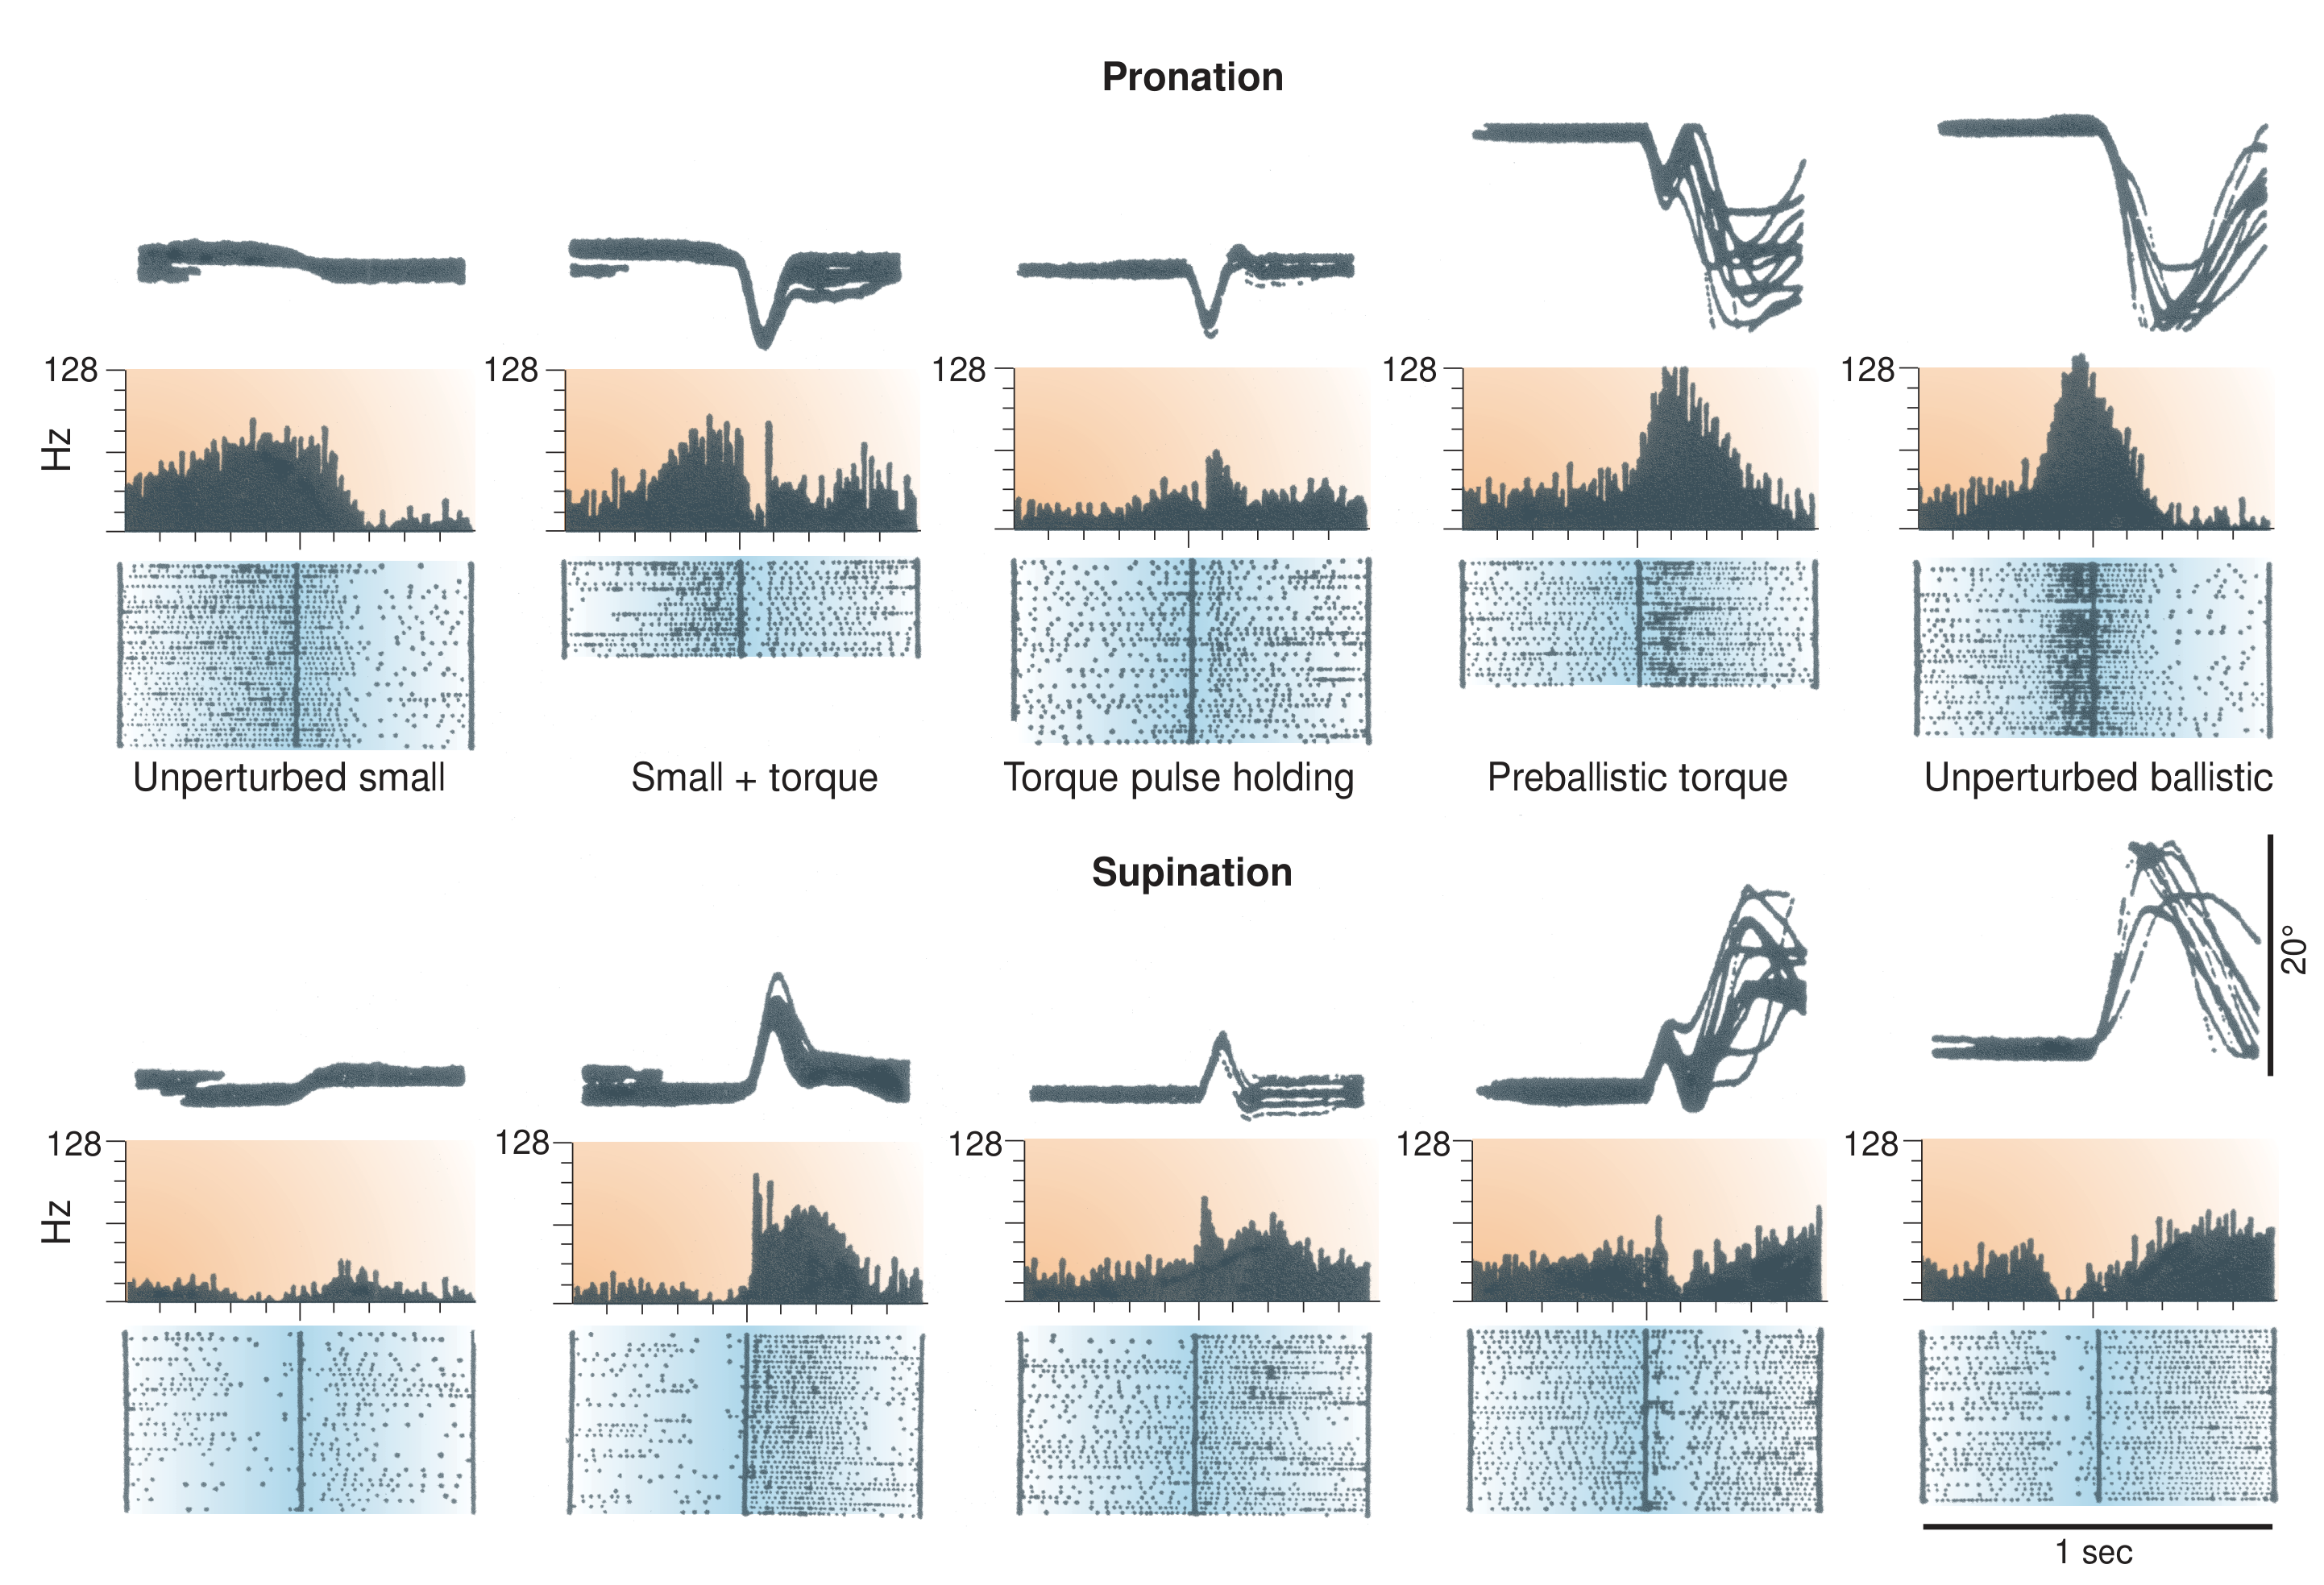 原文 Fig. 3 · PDF 第 7 页
图3 · 情境改变扰动响应。 列依次为无扰动小运动、小运动加负载、姿势中的脉冲、大运动前脉冲及无扰动大运动。相同细胞在不同背景下响应不同,支持任务调节,并未直接验证最优程度。
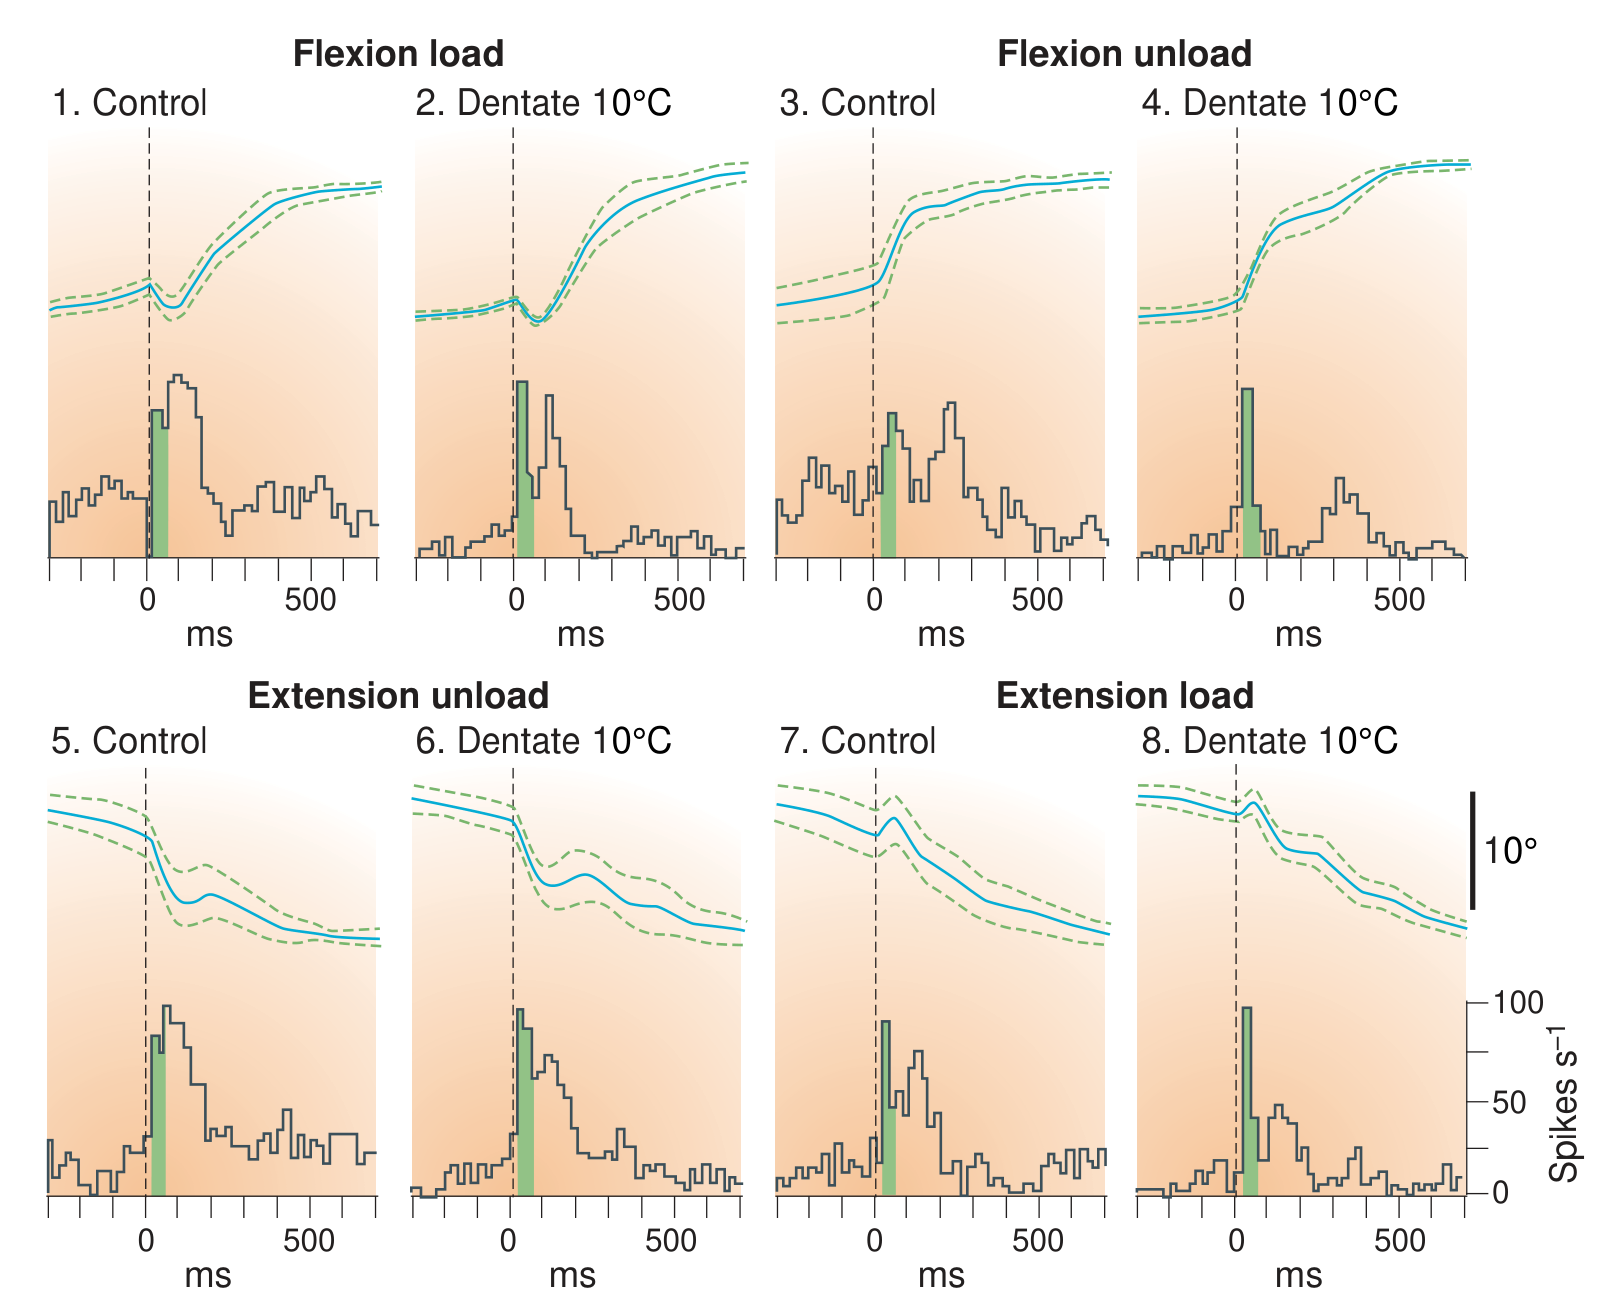 原文 Fig. 4 · PDF 第 8 页
图4 · 齿状核冷却。 对照与冷却条件比较肘运动和M1放电,较早与较晚响应受影响不同。图注20 ms与正文约60 ms的时间描述存在差异;此处保留来源差异,不据此指定唯一传导路径。
讨论与解读边界
本文的贡献是给出可检验的控制问题:哪些反馈应被纠正、怎样随目标改变、不同通路何时参与。它没有证明M1等于一张反馈增益表,也没有用现有数据排除所有轨迹、平衡点或表征模型。
后续研究可与这些预测比较,但不能反过来把后来的发现写成2004年综述已经完成的验证。神经响应的任务依赖性还需与注意、运动准备及力学状态变化区分。
思考问题
- 在扰动前姿势、肌电和运动学匹配时,仅改变任务目标,M1与肌肉的反馈响应会如何变化?
- 比较灵活反馈模型与固定增益、状态表征模型时,哪些未参与拟合的扰动最能区分它们?