A06 · A comparison of movement direction-related versus load direction-related activity in primate motor cortex, using a two-dimensional reaching task
Kalaska, J.F., Cohen, D.A.D., Hyde, M.L., & Prud'homme, M. (1989). The Journal of Neuroscience, 9(6), 2080–2102. doi:10.1523/jneurosci.09-06-02080.1989
运动方向与外部负载方向交叉变化时,肩相关运动皮层单元同时表现出两类调制。群体平均响应可被运动相关响应与负载引起的运动前活动变化近似相加描述,但单细胞存在明显交互,结果没有确定唯一坐标系或逆动力学算法。
核对依据:Zotero 条目 · 本地全文。本轮核对原文方法、关键结果、解释边界及所引主图;更新于2026-09-20。图注页码采用本地PDF文件页序,版本与未解决问题见正文及审查记录。
背景
在伸手运动任务中,仅改变手部的移动方向,往往会同时改变维持肢体运动所需的关节力矩、肌肉协同组合以及对抗重力的静态平衡需求。因此,一个在特定空间方向上表现出放电调制的运动皮层神经元,其活动可能主要表征外在空间中的运动学轨迹方向,也可能本质上反映驱动该动作所需克服的动力学负荷。早期研究(如 Evarts 等人的经典工作)通过在简单屈伸动作中施加外加负载,证明了运动皮层神经元对输出肌肉力的敏感性;然而,简单的“有负荷对无负荷”二元对比无法系统区分外加负载的方向、大小,以及外力方向与动作物理方向之间的空间交互关系。Kalaska 等在 1989 年通过实验装置创新,在二维平面上将 8 个伸手运动方向与 8 个恒定外拉力方向进行正交交叉组合,使同一物理方向的伸手动作可以在受压、受拉或横向剪切等完全不同的机械力学环境下完成,直接考察运动学与动力学调制在初级运动皮层(M1)中的表征形式。
该正交实验设计为解析运动皮层的神经坐标系提供了经验基础。如果神经元严格表征外在笛卡尔坐标系中的手部运动方向,其空间偏好方向在施加不同方向的外部静态负荷时应保持稳定不变;如果神经元严格表征肢体动力学或特定肌群的输出力,其神经活动应主要受外加负载方向的主导,其放电峰值将随抵消外力的需要而发生旋转。实际生理记录往往呈现混合表征形态,若要检验群体水平上神经活动是否可近似拆分为“无负载运动基准响应加上外加负载引起的背景状态偏移”,必须分别在每个神经元的固有运动偏好方向和最大负载敏感轴上对齐后进行统计测试。此外,动作准备期、运动执行期与终点维持期的神经活动应当分别计算,因为外加负载可能首先调整准备期的姿态张力基线,随后进一步调节运动执行期的动态调谐幅度,不能仅依赖全程时段的粗略平均。
实验表明,初级运动皮层中绝大多数与肩关节相关的神经元同时受到运动方向与负载方向的连续显著调制,神经元的最大负载敏感轴通常指向其运动偏好方向的对侧(即朝向需要发力以克服外拉力的方向)。在群体水平上对齐后,单神经元活动的平均形态可近似用“运动学分量与外加负载调制分量的线性叠加”来描述;但在高阻抗、大助力等非对称条件下,单细胞表现出明显的非线性交互与饱和效应。因此,该研究证明了运动学与动力学信息在初级运动皮层中的联合共存,但并未确立排他性的单一内在或外在参考坐标系,亦未提供神经环路执行特定逆动力学算法的直接生理证据。群体向量在本质上是研究人员构建的解码算法,记录位点的微刺激阈值与负载敏感性之间的相关性,也不能替代单突触投射至脊髓运动神经元的解剖证据。
研究思路
对同一记录单元在无负载及 8 个不同空间方向的外加负载条件下,系统测量其在 8 个方向伸手运动中的放电响应,分别确定其空间运动偏好方向与最大负载敏感轴,进而在单神经元分类、时段演化及群体对齐平均等不同层面上,定量检验运动学与动力学调制的组合模式与交互规律。
方法
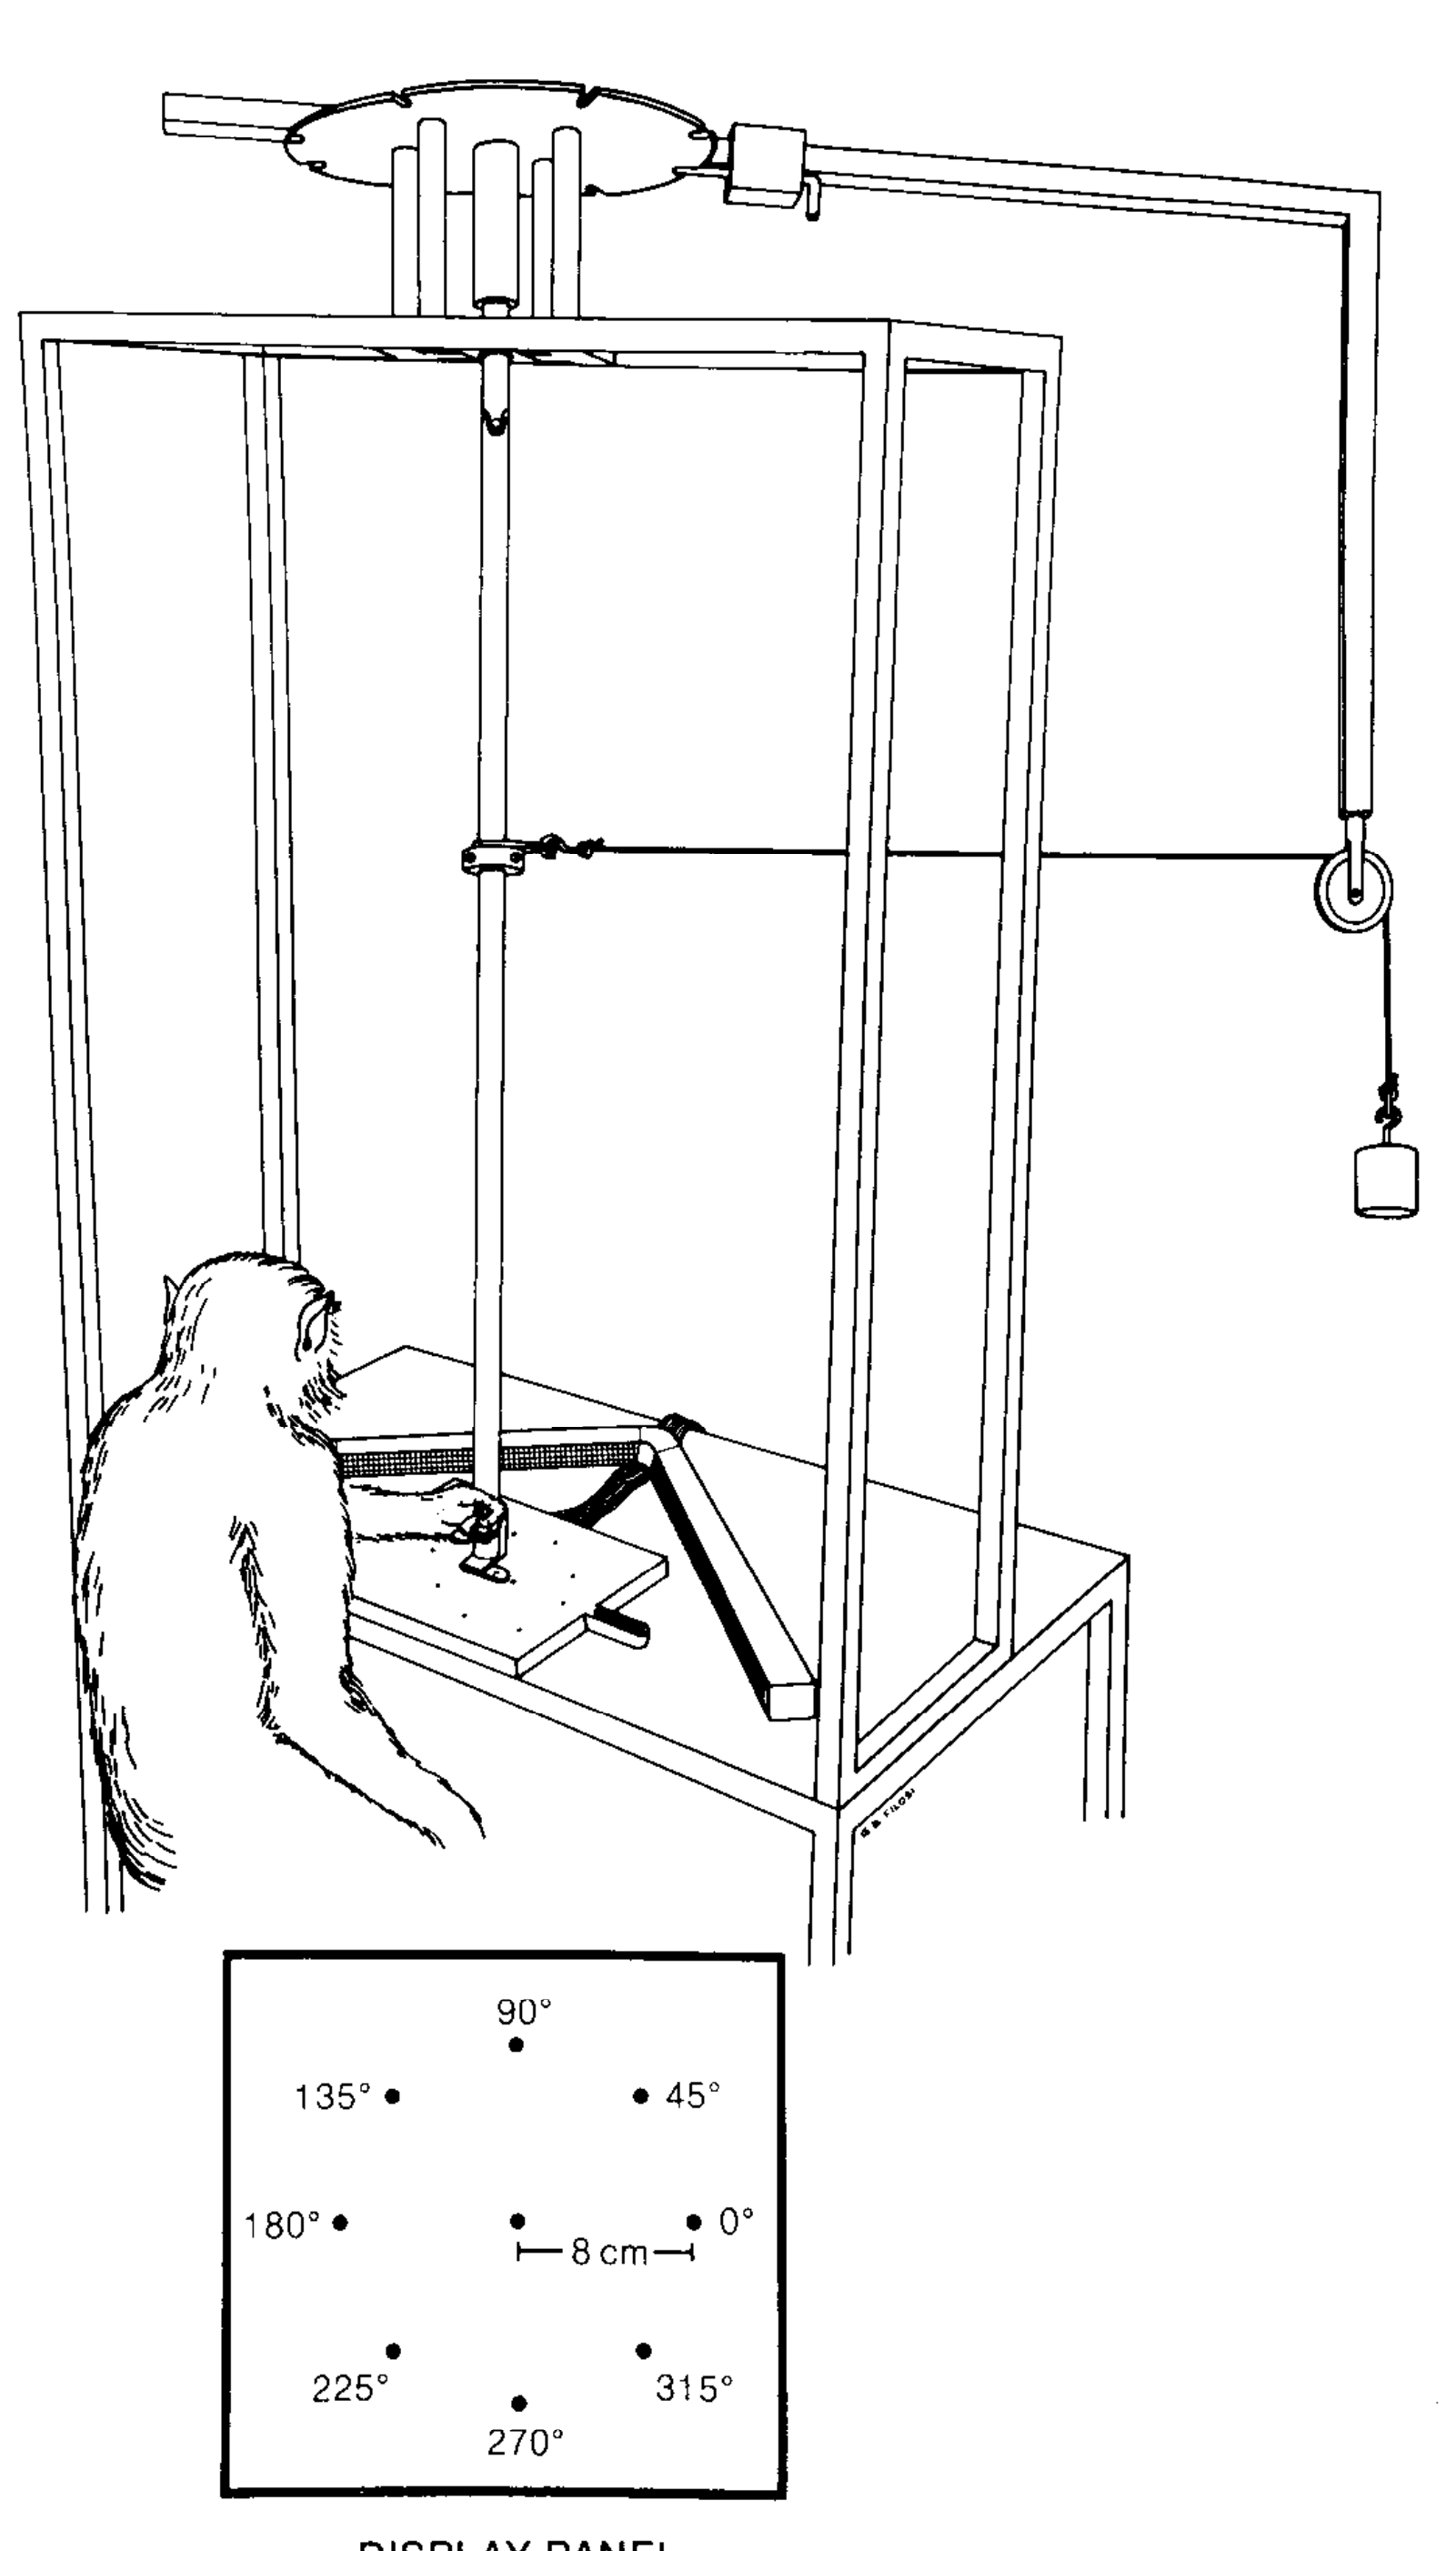
实验样本包含从 5 只猕猴(3 只食蟹猴、2 只恒河猴)的初级运动皮层肩关节代表区筛选出的 262 个任务相关神经元。实验采用水平放置的目标靶板,受试动物握持悬挂式的垂直活动摆杆,摆杆顶端通过低摩擦滑轮组和砝码牵引系统施加近似恒定方向的水平外拉力。标准测试负载采用 250 g 或 350 g 砝码(根据各动物的体型与力量基础选定,非全动物统一绝对质量)。
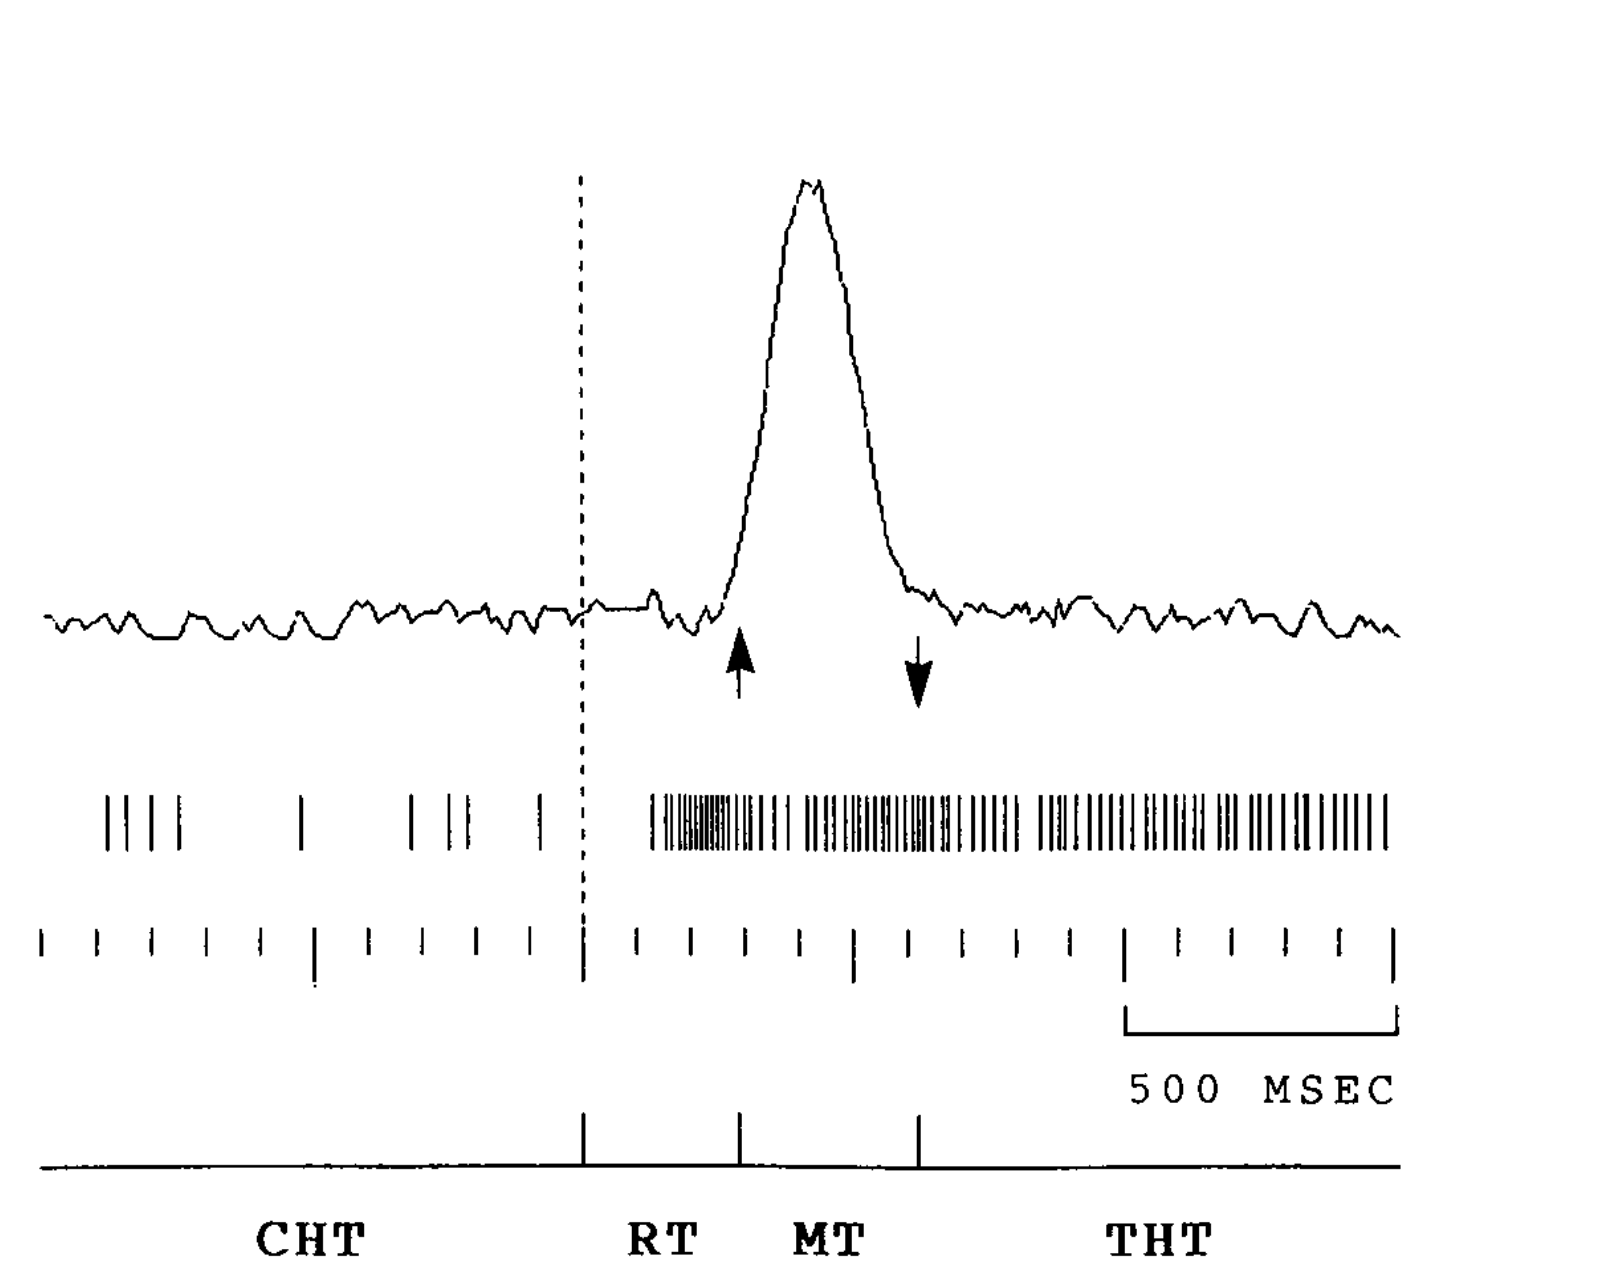
完整实验协议包含无外加负载基准条件以及沿圆周对称分布的 8 个负载方向,共计 9 种动力学环境,每种环境下包含 8 个伸手方向的各 5 次重复试次,整体构成包含 360 次试次的裂区实验设计。分析将任务周期严格划分为:中央按键保持期(CHT,姿态维持期)、反应期(RT)、运动执行期(MT)、靶位保持期(THT)以及动态复合期(RT + MT)。方向调制程差(range)严格定义为八个方向平均放电率的最大值与最小值之差(即 Peak - Trough),不能混同为最大值与全方向均值之差。姿势/运动指数与负载/运动指数分别基于相应时段程差的比值取对数计算,运动期分母依据分析需求分别选用 RT、MT 或 RT + MT 的程差。
主要结果
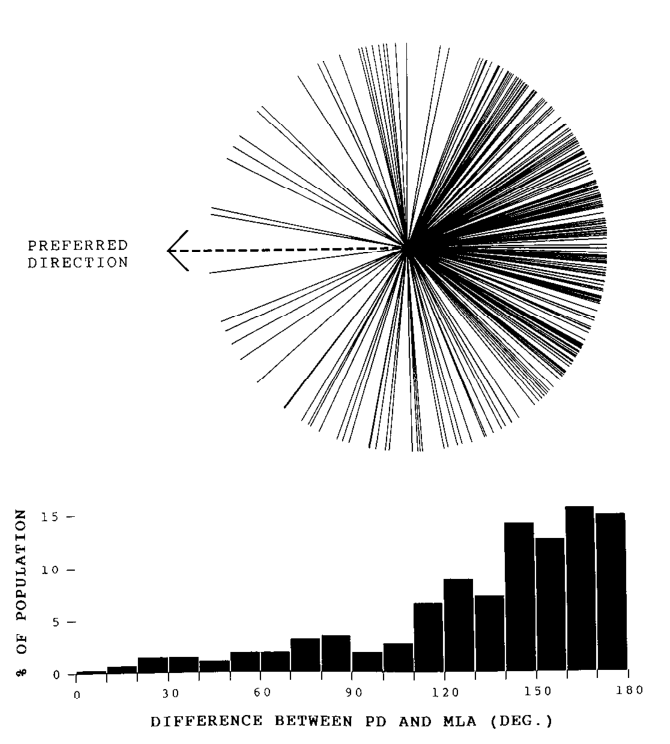
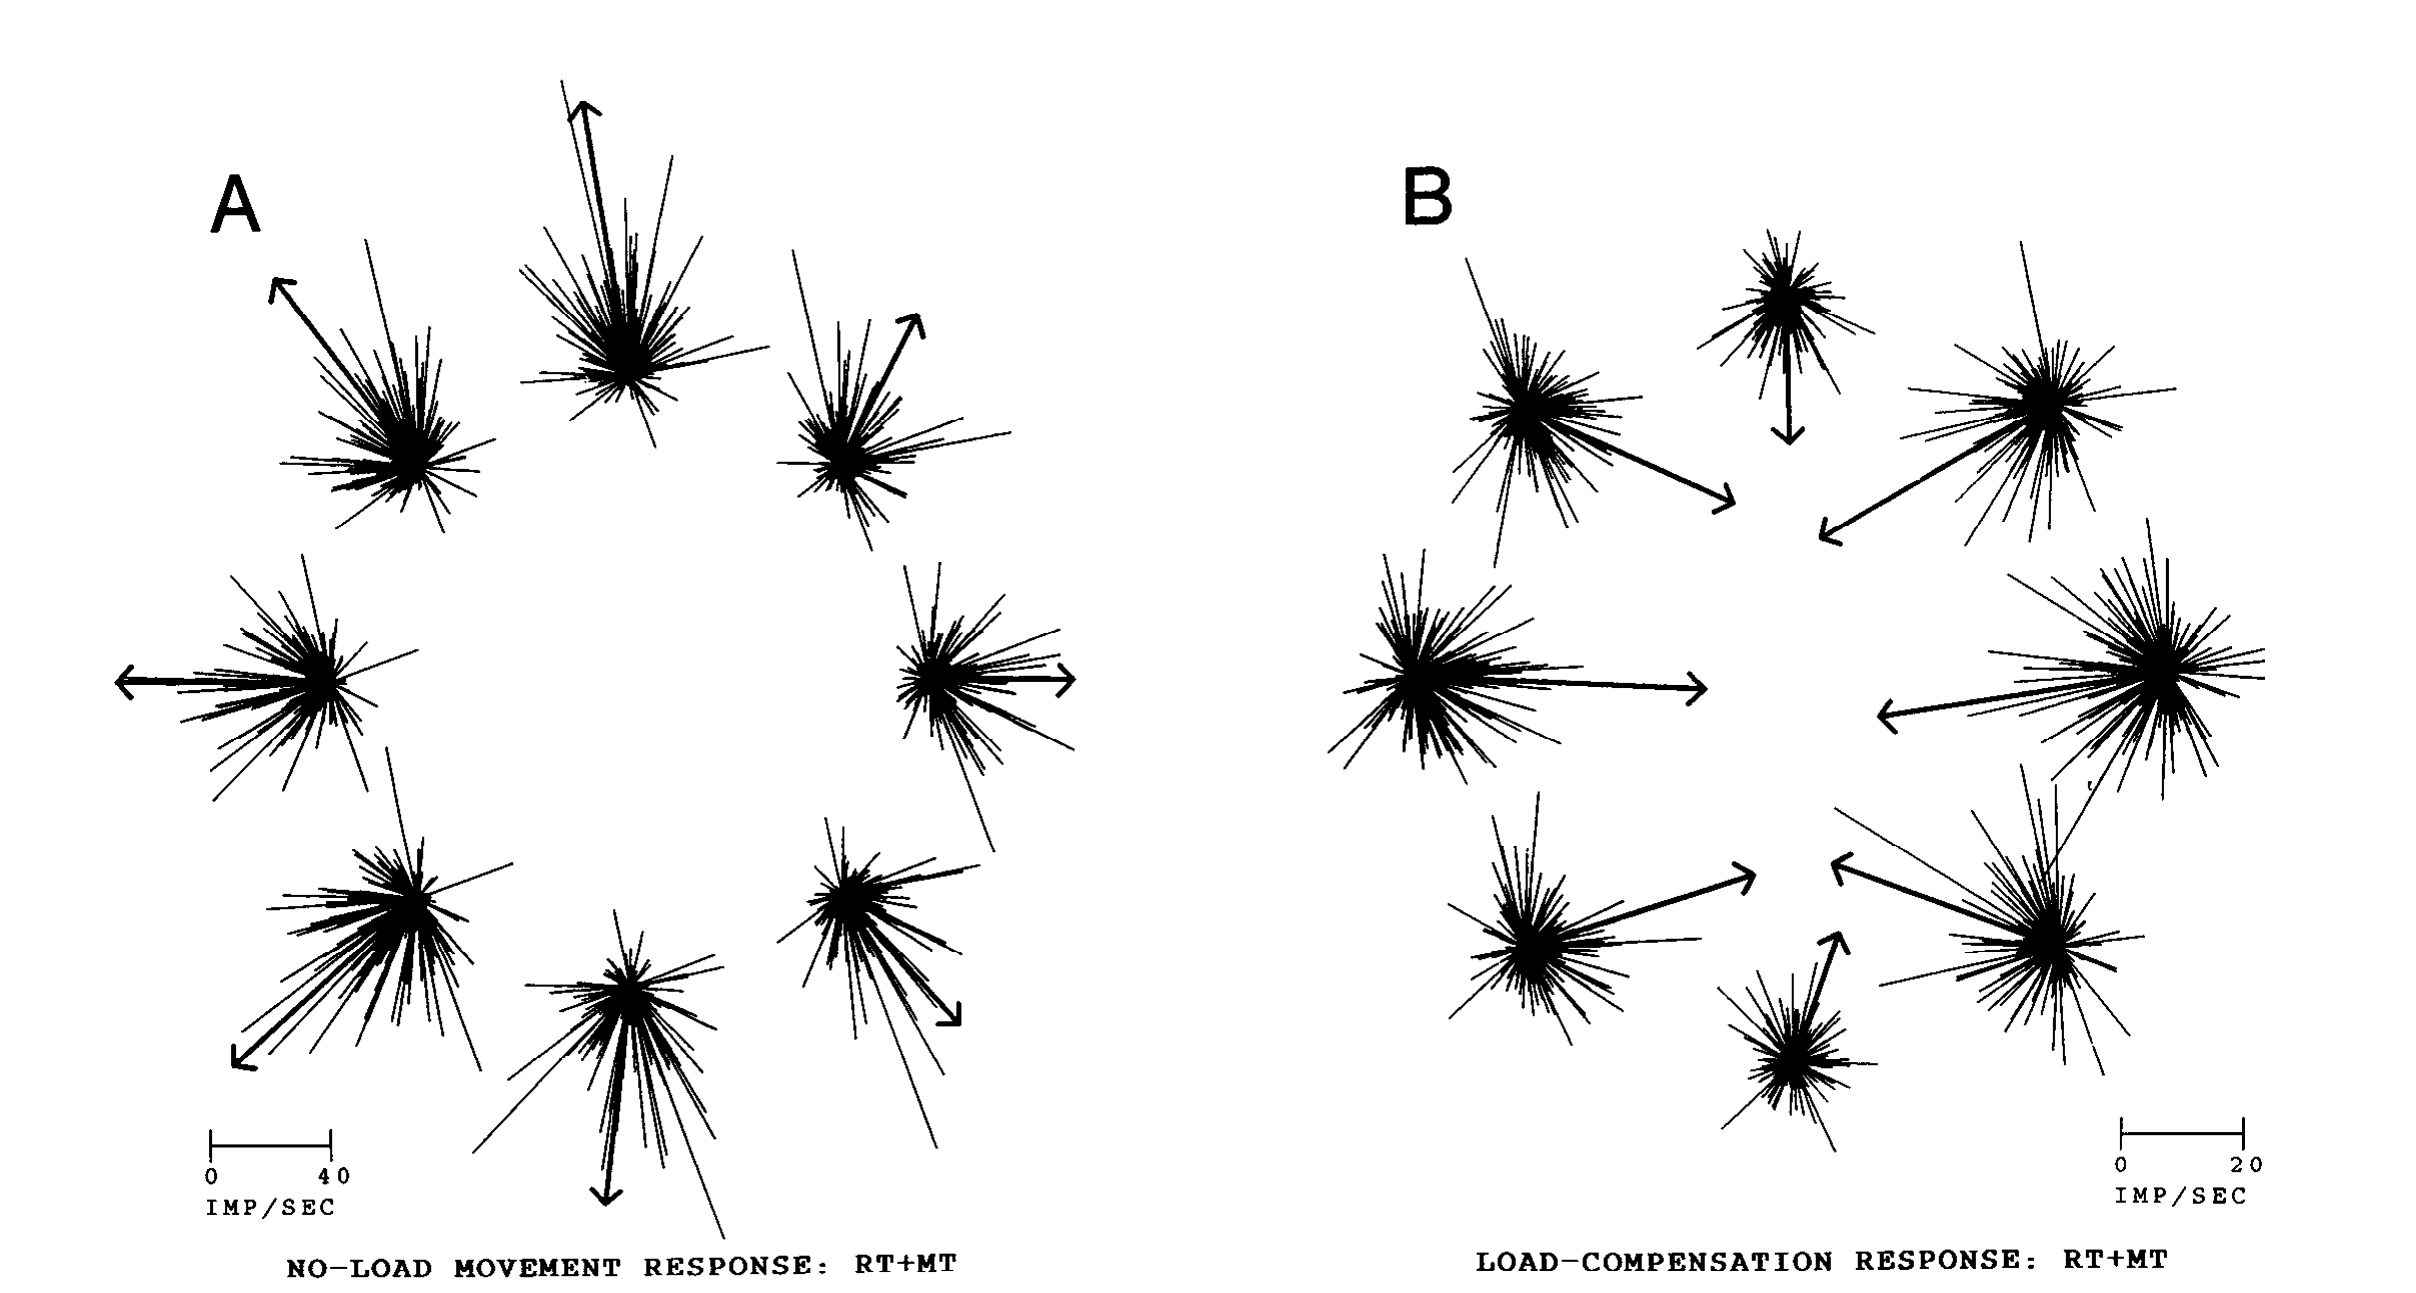
入选的大多数初级运动皮层神经元表现出双重敏感性,其放电强度随运动方向和外加负载方向呈现连续光滑的余弦样调制。单细胞的最大负载敏感轴总体倾向于指向其运动偏好方向的反向空间区间(即背离运动方向,对应于克服外力所需的用力方向),但单细胞间的相对夹角分布具有相当的弥散性,并非所有细胞都严格呈 180° 对称反向。以各细胞运动偏好方向为基准对齐构建的群体向量,在施加外部负载时发生系统性偏转,其偏转方向准确对应于产生对抗外部拉力的物理补偿方向。
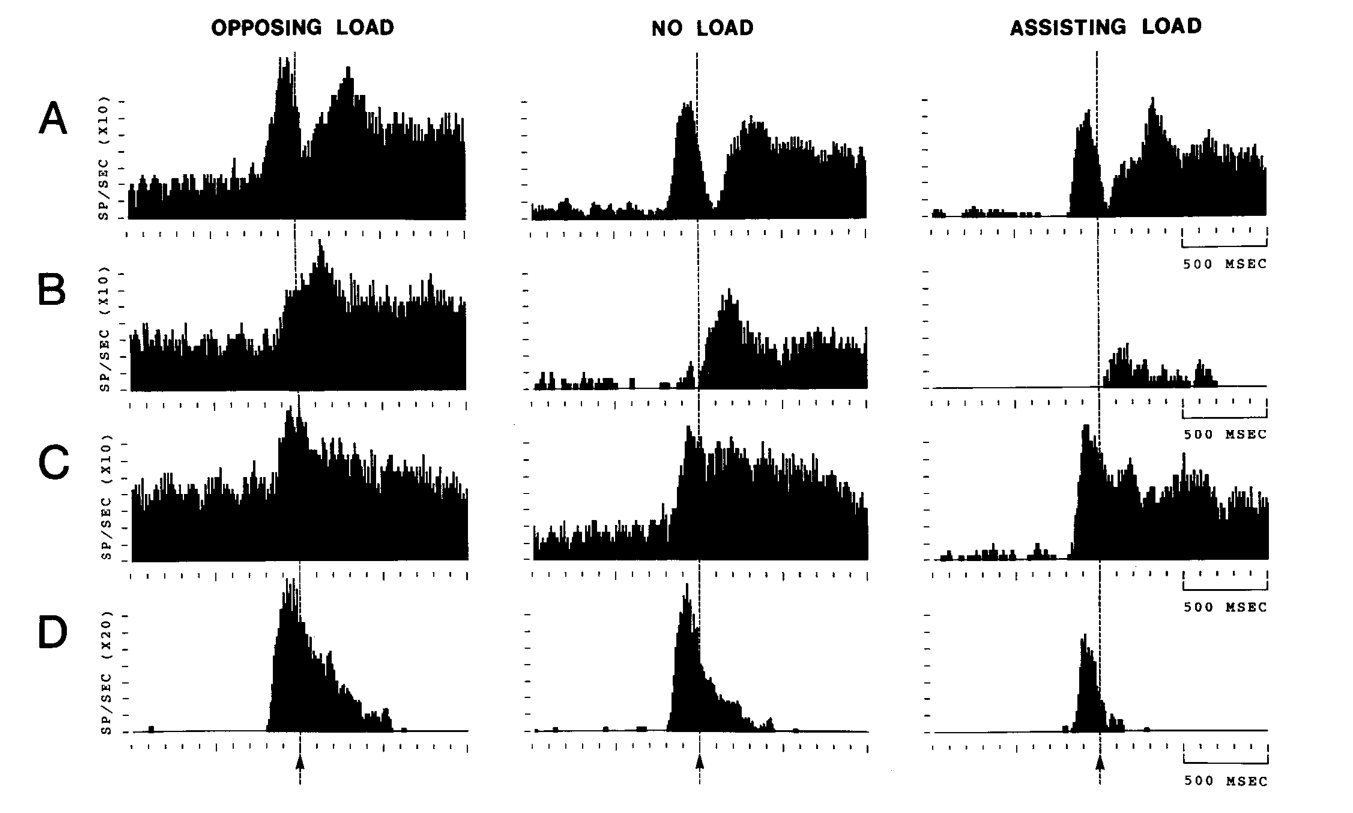
在群体平均层面,“无负载运动响应基准加上由静态负载诱发的背景活动平移”,能够在统计上近似拟合多数工况下的复合神经响应;然而在顺向助力负载等非对称工况下,实际观测与简单线性叠加模型出现显著偏离,部分单细胞在不同方向负荷下表现出明显的非线性增益饱和或抑制截断。上述线性叠加规律适用于群体时段平均趋势,不能视为在任意负荷条件下单细胞水平绝对成立的通用算术定律。
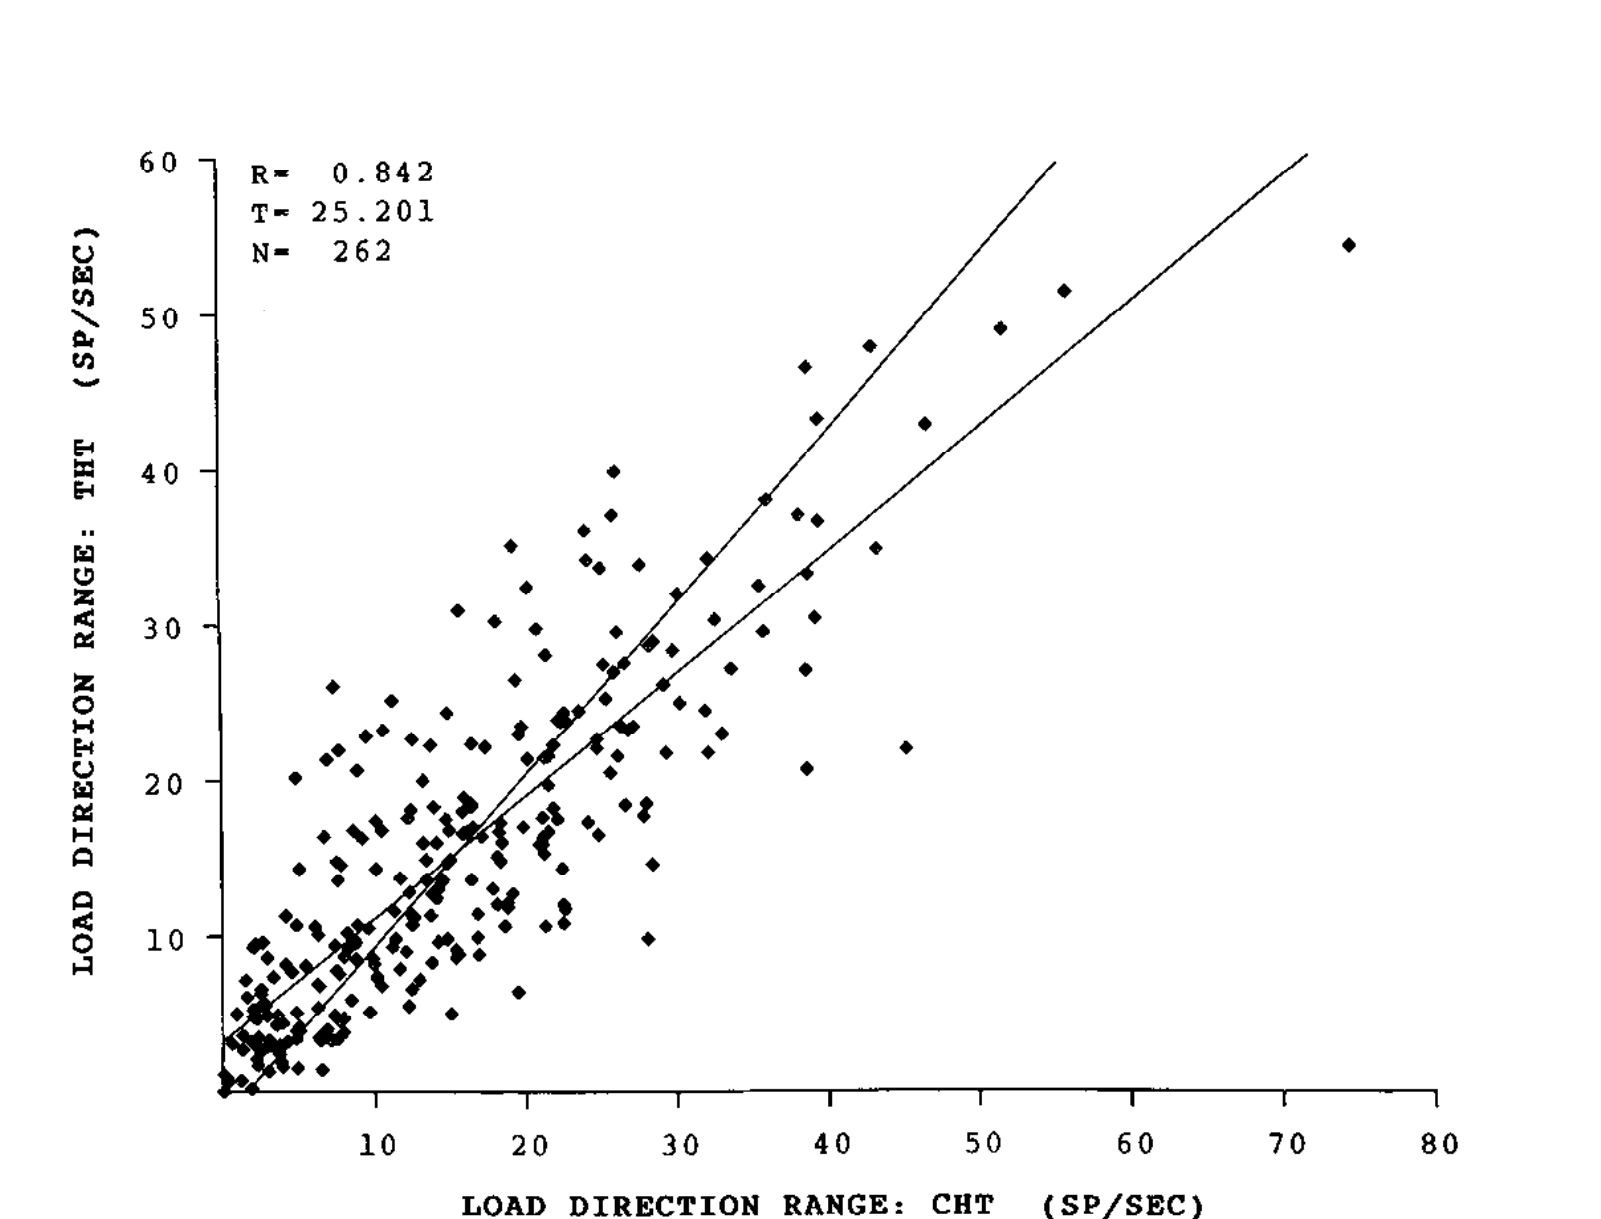
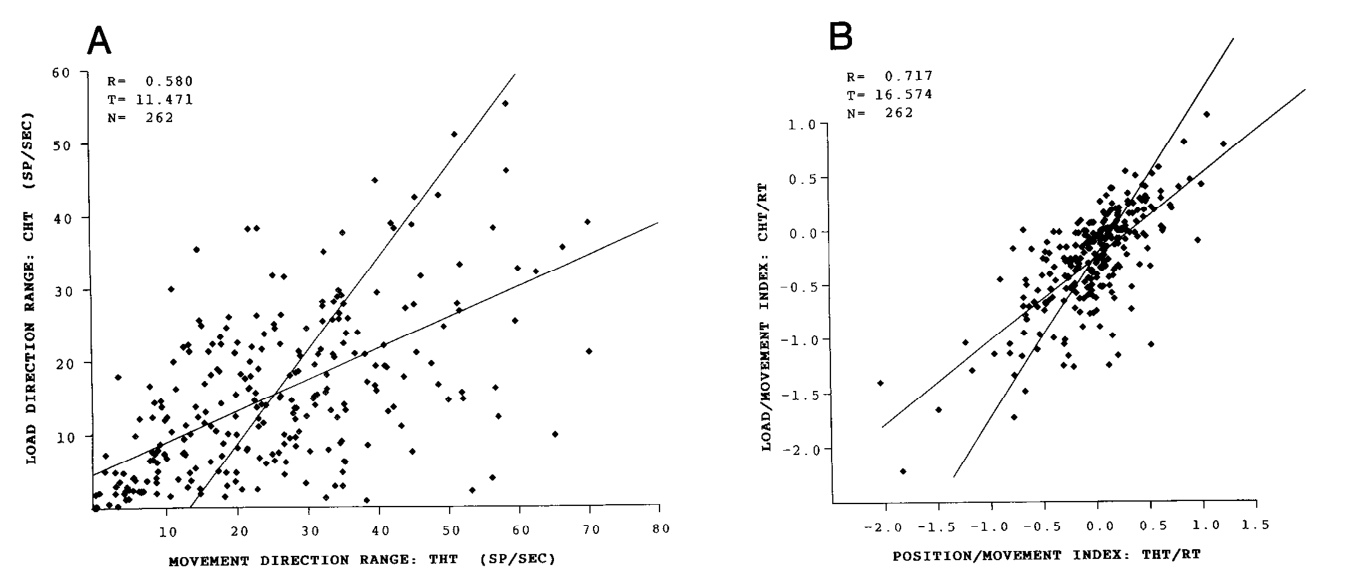
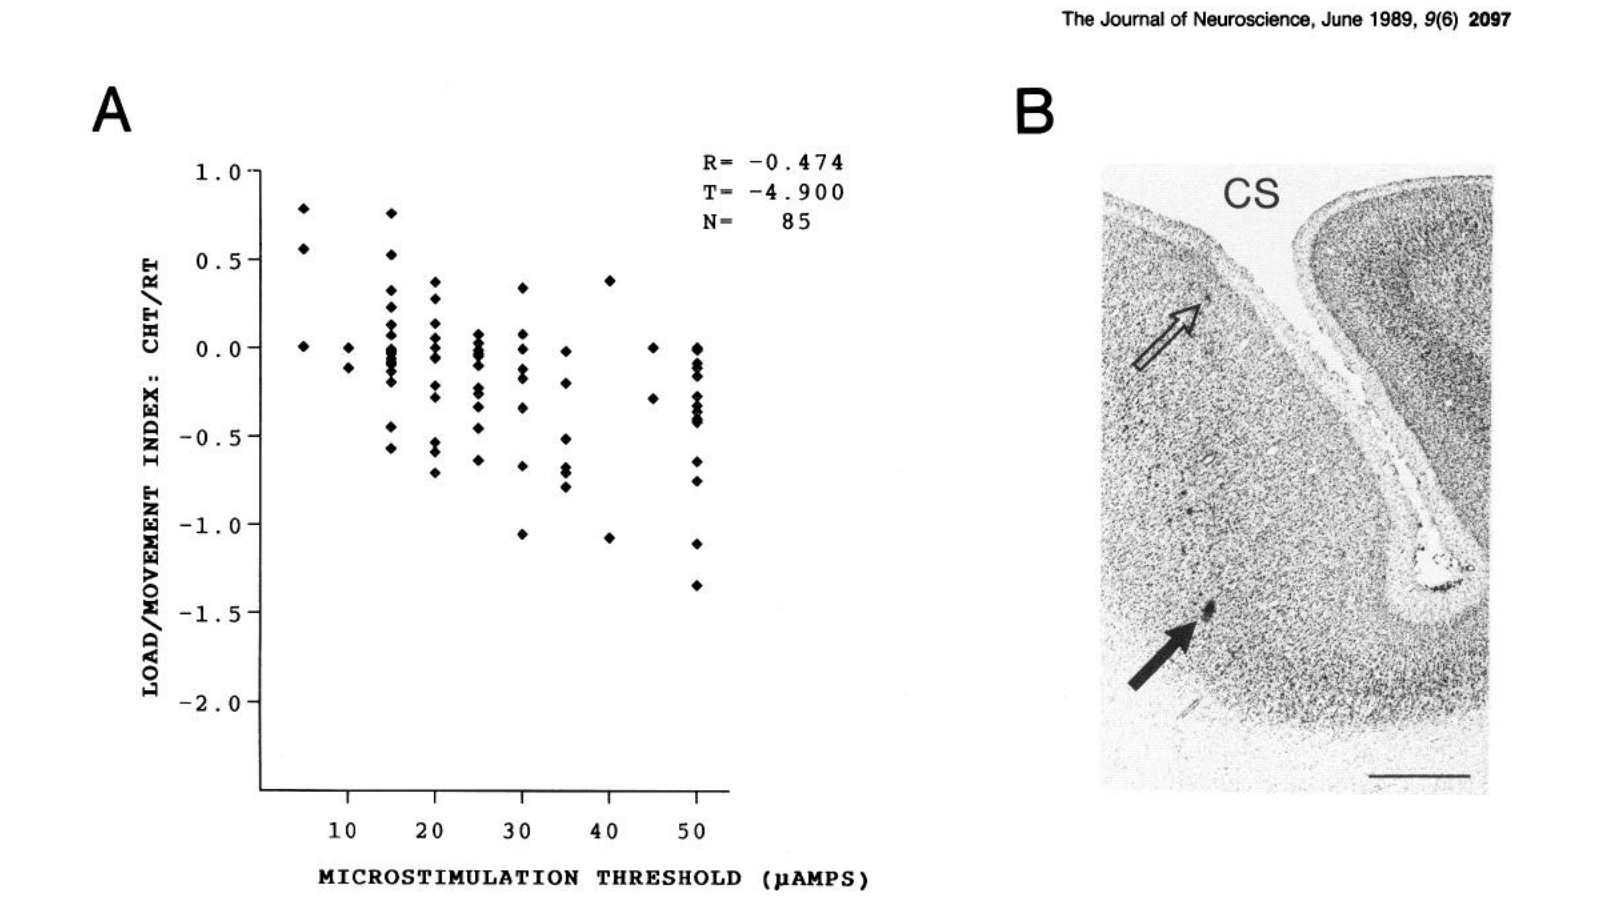
在静态保持期诱发的姿势调制程差与外加动态负载程差之间呈现显著的正相关关系(相关系数 R = 0.580)。在反应期 RT 与运动期 MT,两者间的相关程度有所减弱(R 分别为 0.233 与 0.160),但在完整大样本中仍维持统计显著性。经 RT 程差归一化后的姿势指数与负载指数之间表现出较强的统计关联(相关系数达到 0.717)。此外,神经元的负载/运动指数与该记录位点诱发上肢肌肉抽动的皮层内微电极刺激阈值呈现显著负相关(在 n = 85 的样本中 R = −0.474),表明较低刺激阈值的深层输出区位点往往表现出更高的负载敏感度;但该位点关联未直接追踪下行神经元至脊髓前角的解剖投射。
逐图解读
 原文 Fig. 1 · PDF 第 2 页 · 原文图像 · 查看来源
图1 · 运动与定向负载装置。 九个LED位于水平目标板上,摆杆上方的径向臂和滑轮改变外部拉力方向。目标方向与负载方向可分别安排,但随手柄位置仍有小幅负载方向变化。
 原文 Fig. 2 · PDF 第 3 页 · 原文图像 · 查看来源
图2 · 任务时段。 由CHT、RT、MT和THT划分试次。后续以各时段平均放电为主,因而所得加和关系不等于已刻画了瞬时响应动力学。
 原文 Fig. 3 · PDF 第 4 页 · 原文图像 · 查看来源
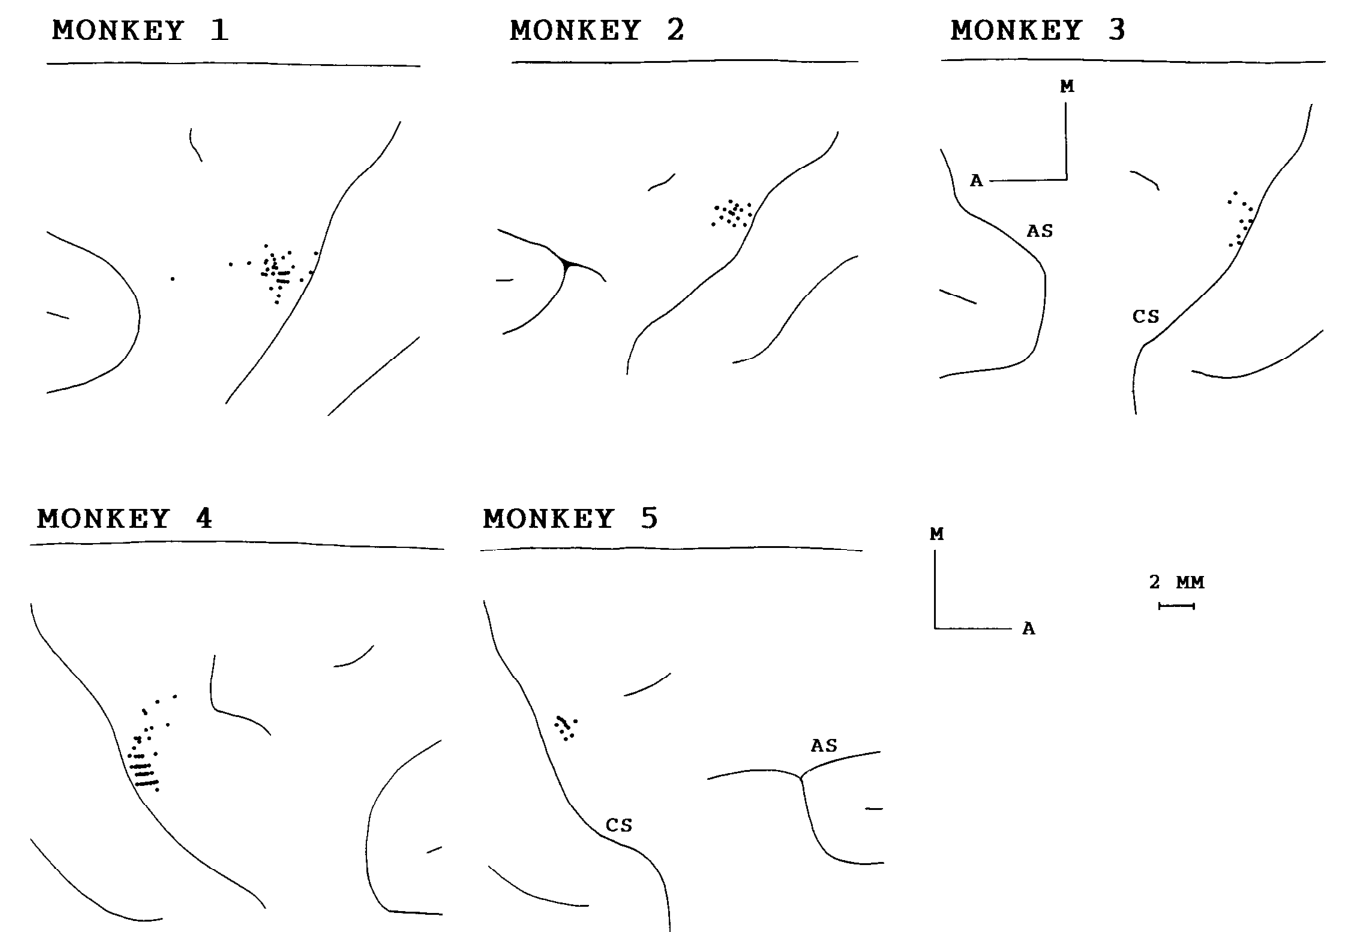
图3 · 五只猴的记录位置。 图示各动物穿刺分布及中央沟、弓状沟等参照。定位和任务外检查支持样本来自肩相关区域,不能把穿刺点直接当作全部单元的位置。
 原文 Fig. 4 · PDF 第 6 页 · 原文图像 · 查看来源
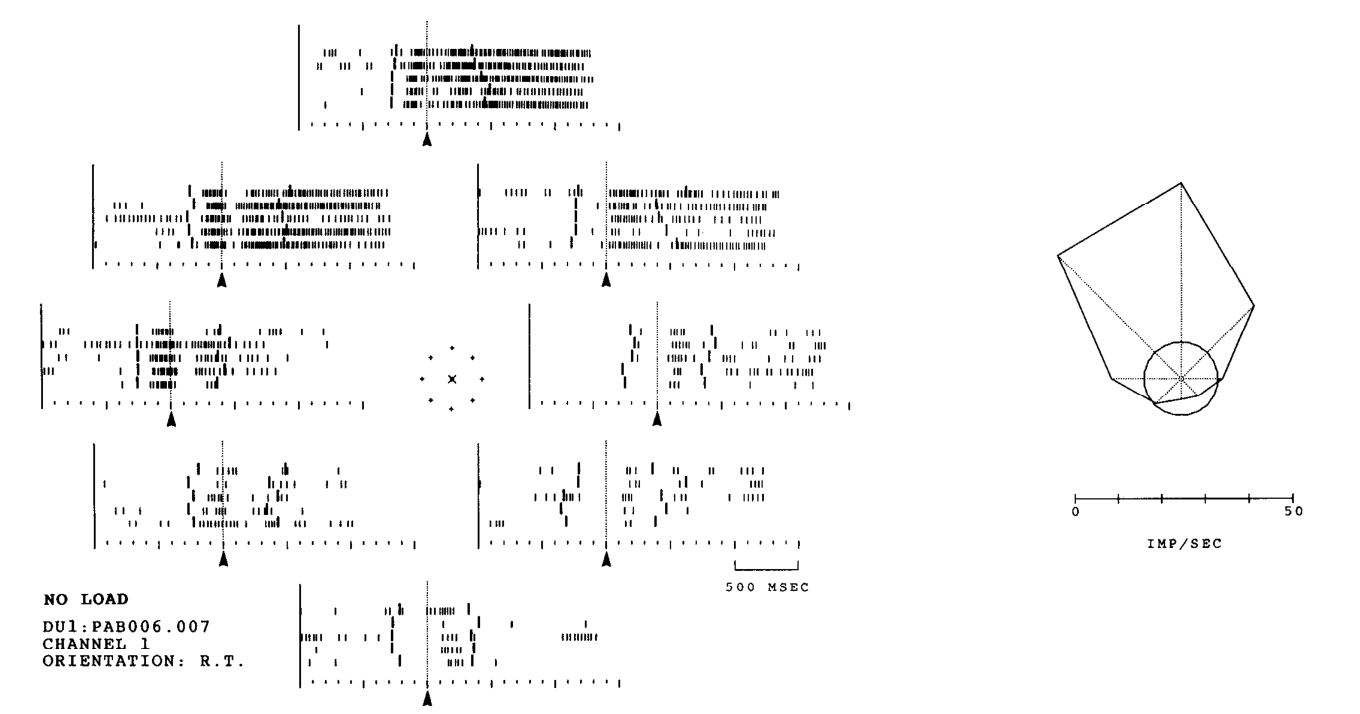
图4 · 无负载时的方向调谐。 左侧为八方向栅格,右侧为RT+MT平均放电的极坐标图。示例偏好方向约122°,正弦拟合R²为0.94;内圈表示CHT期活动。
 原文 Fig. 5 · PDF 第 7 页 · 原文图像 · 查看来源
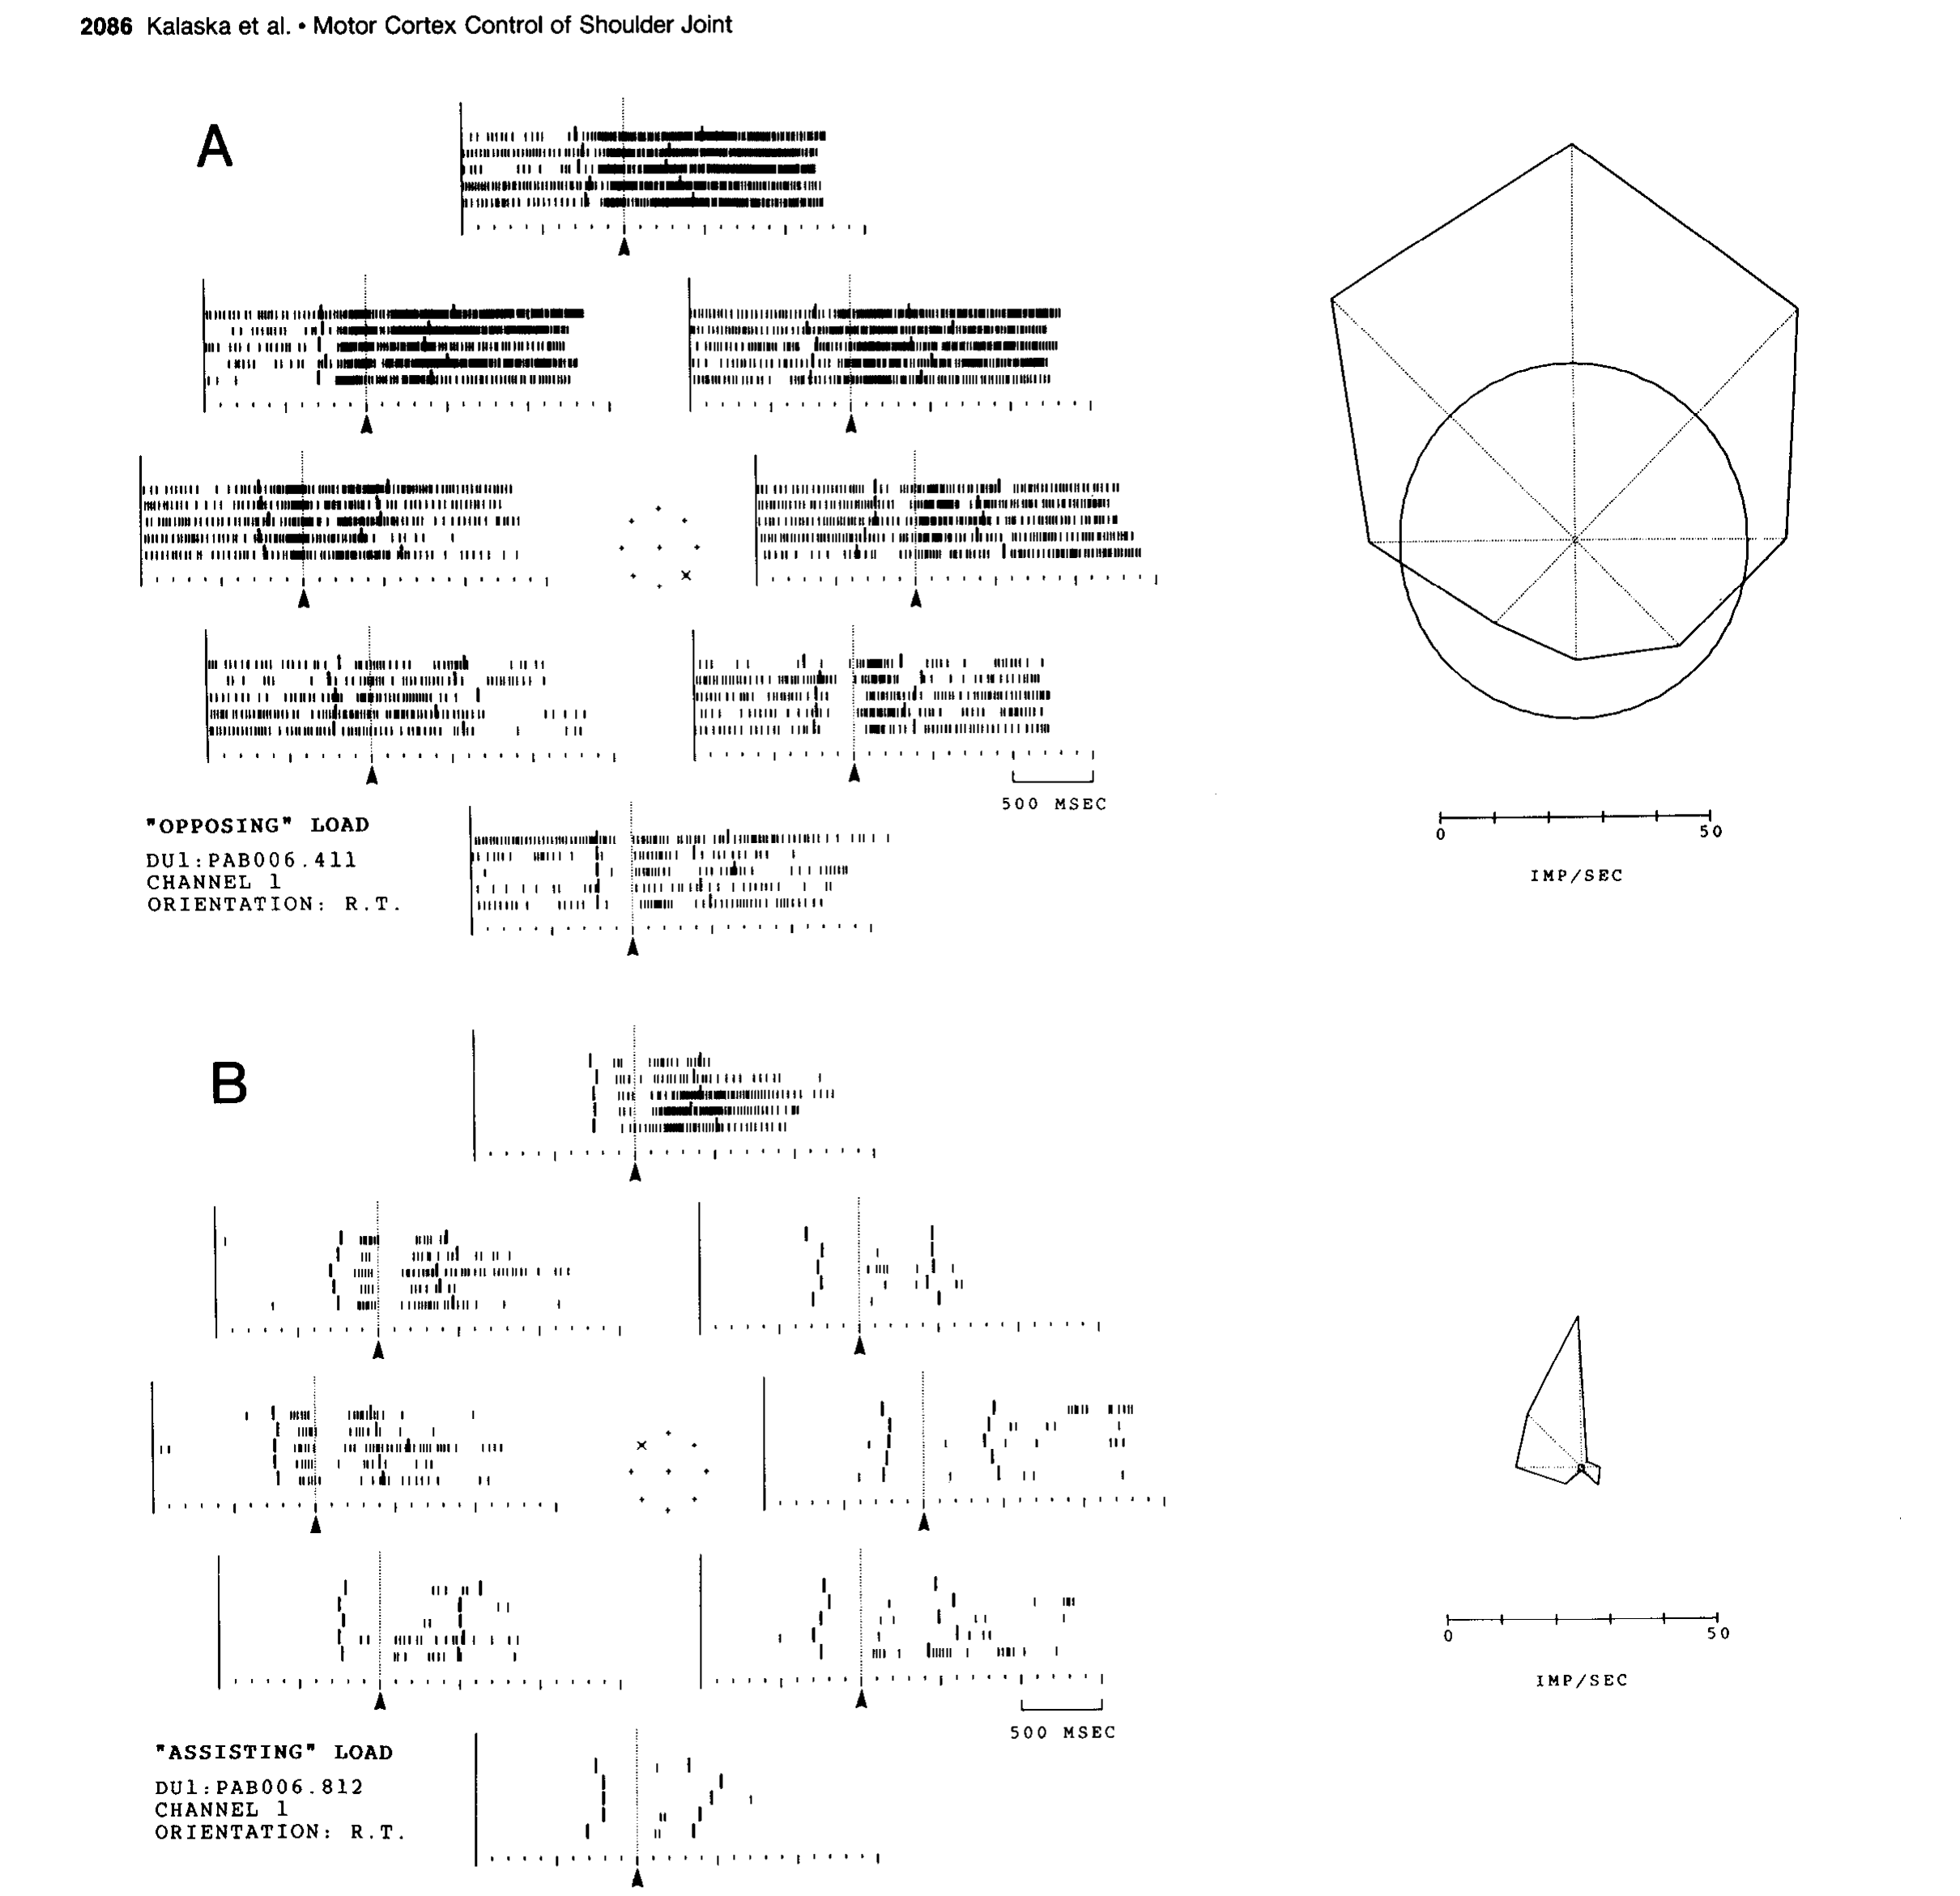
图5 · 同一单元的两种负载条件。 A为315°负载,B为135°负载。保持相同目标方向集合,运动前活动和运动期响应仍随负载改变,表明无负载调谐不能直接代替有负载响应。
 原文 Fig. 6 · PDF 第 8 页 · 原文图像 · 查看来源
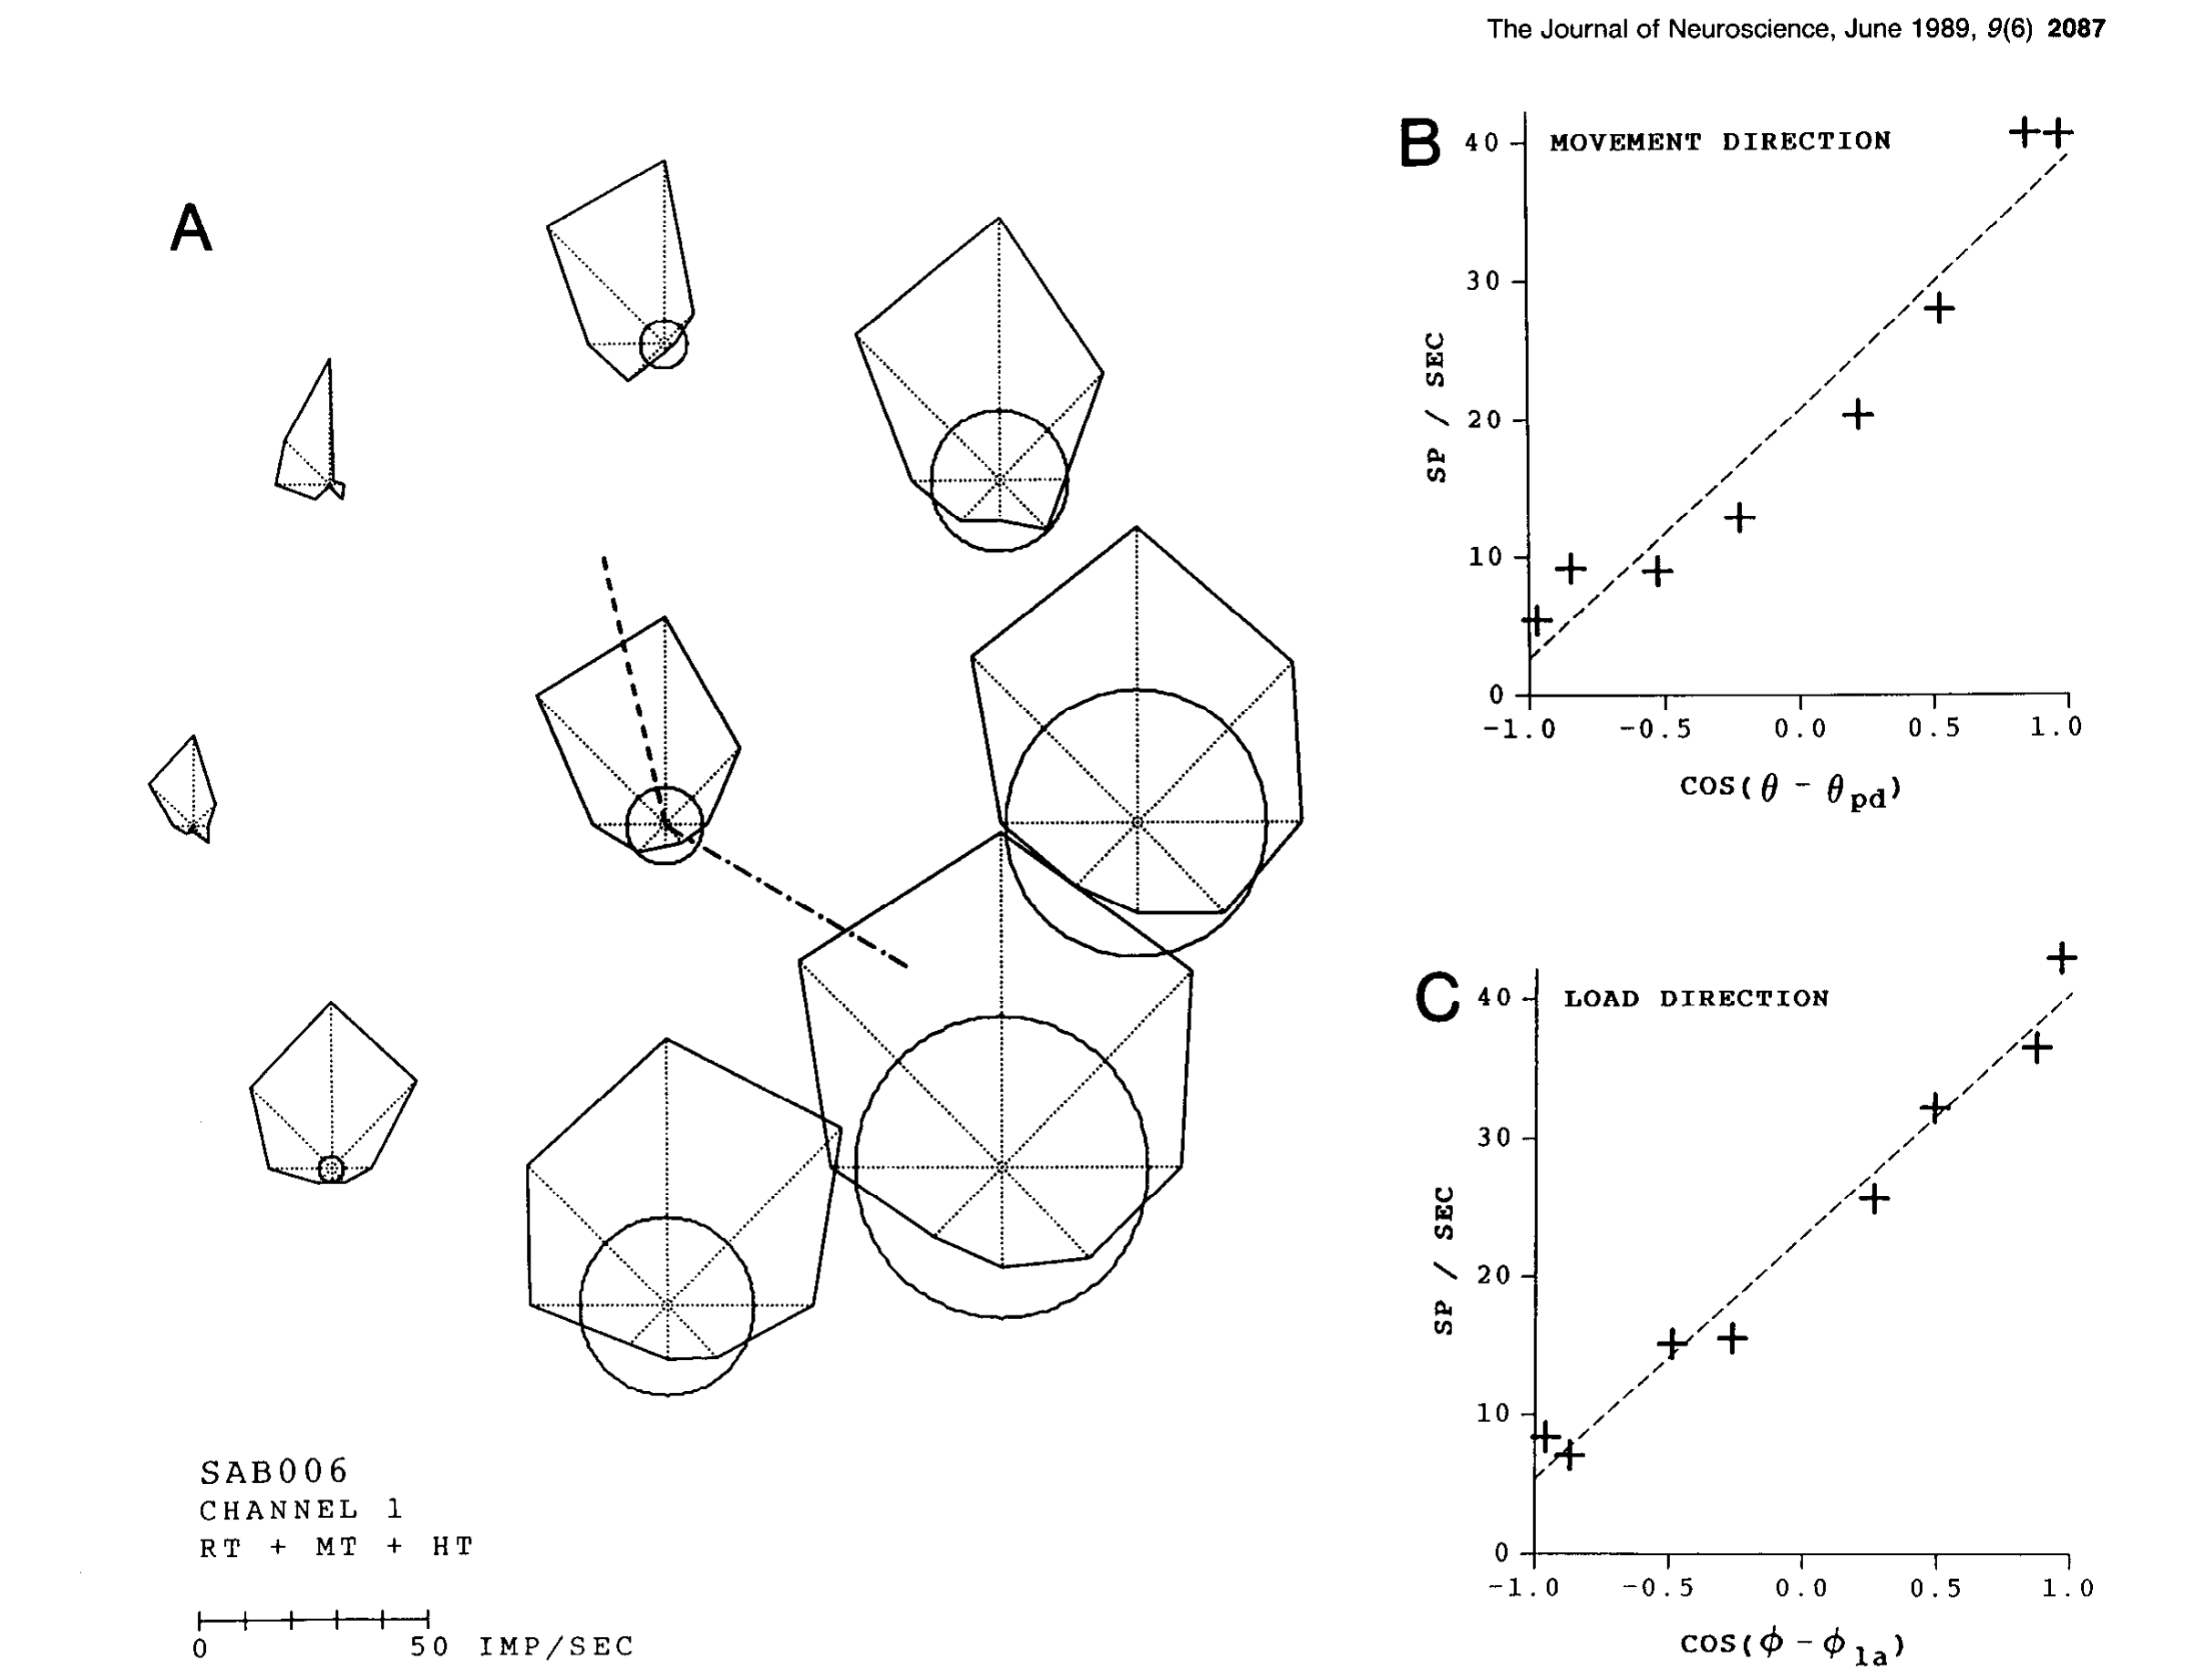
图6 · 运动方向与负载方向的响应。 A汇集八方向负载条件,B、C分别呈现运动和负载调谐。示例的偏好方向约122°、负载轴约330°,二者较接近反向,但并非精确相差180°。
 原文 Fig. 7 · PDF 第 9 页 · 原文图像 · 查看来源
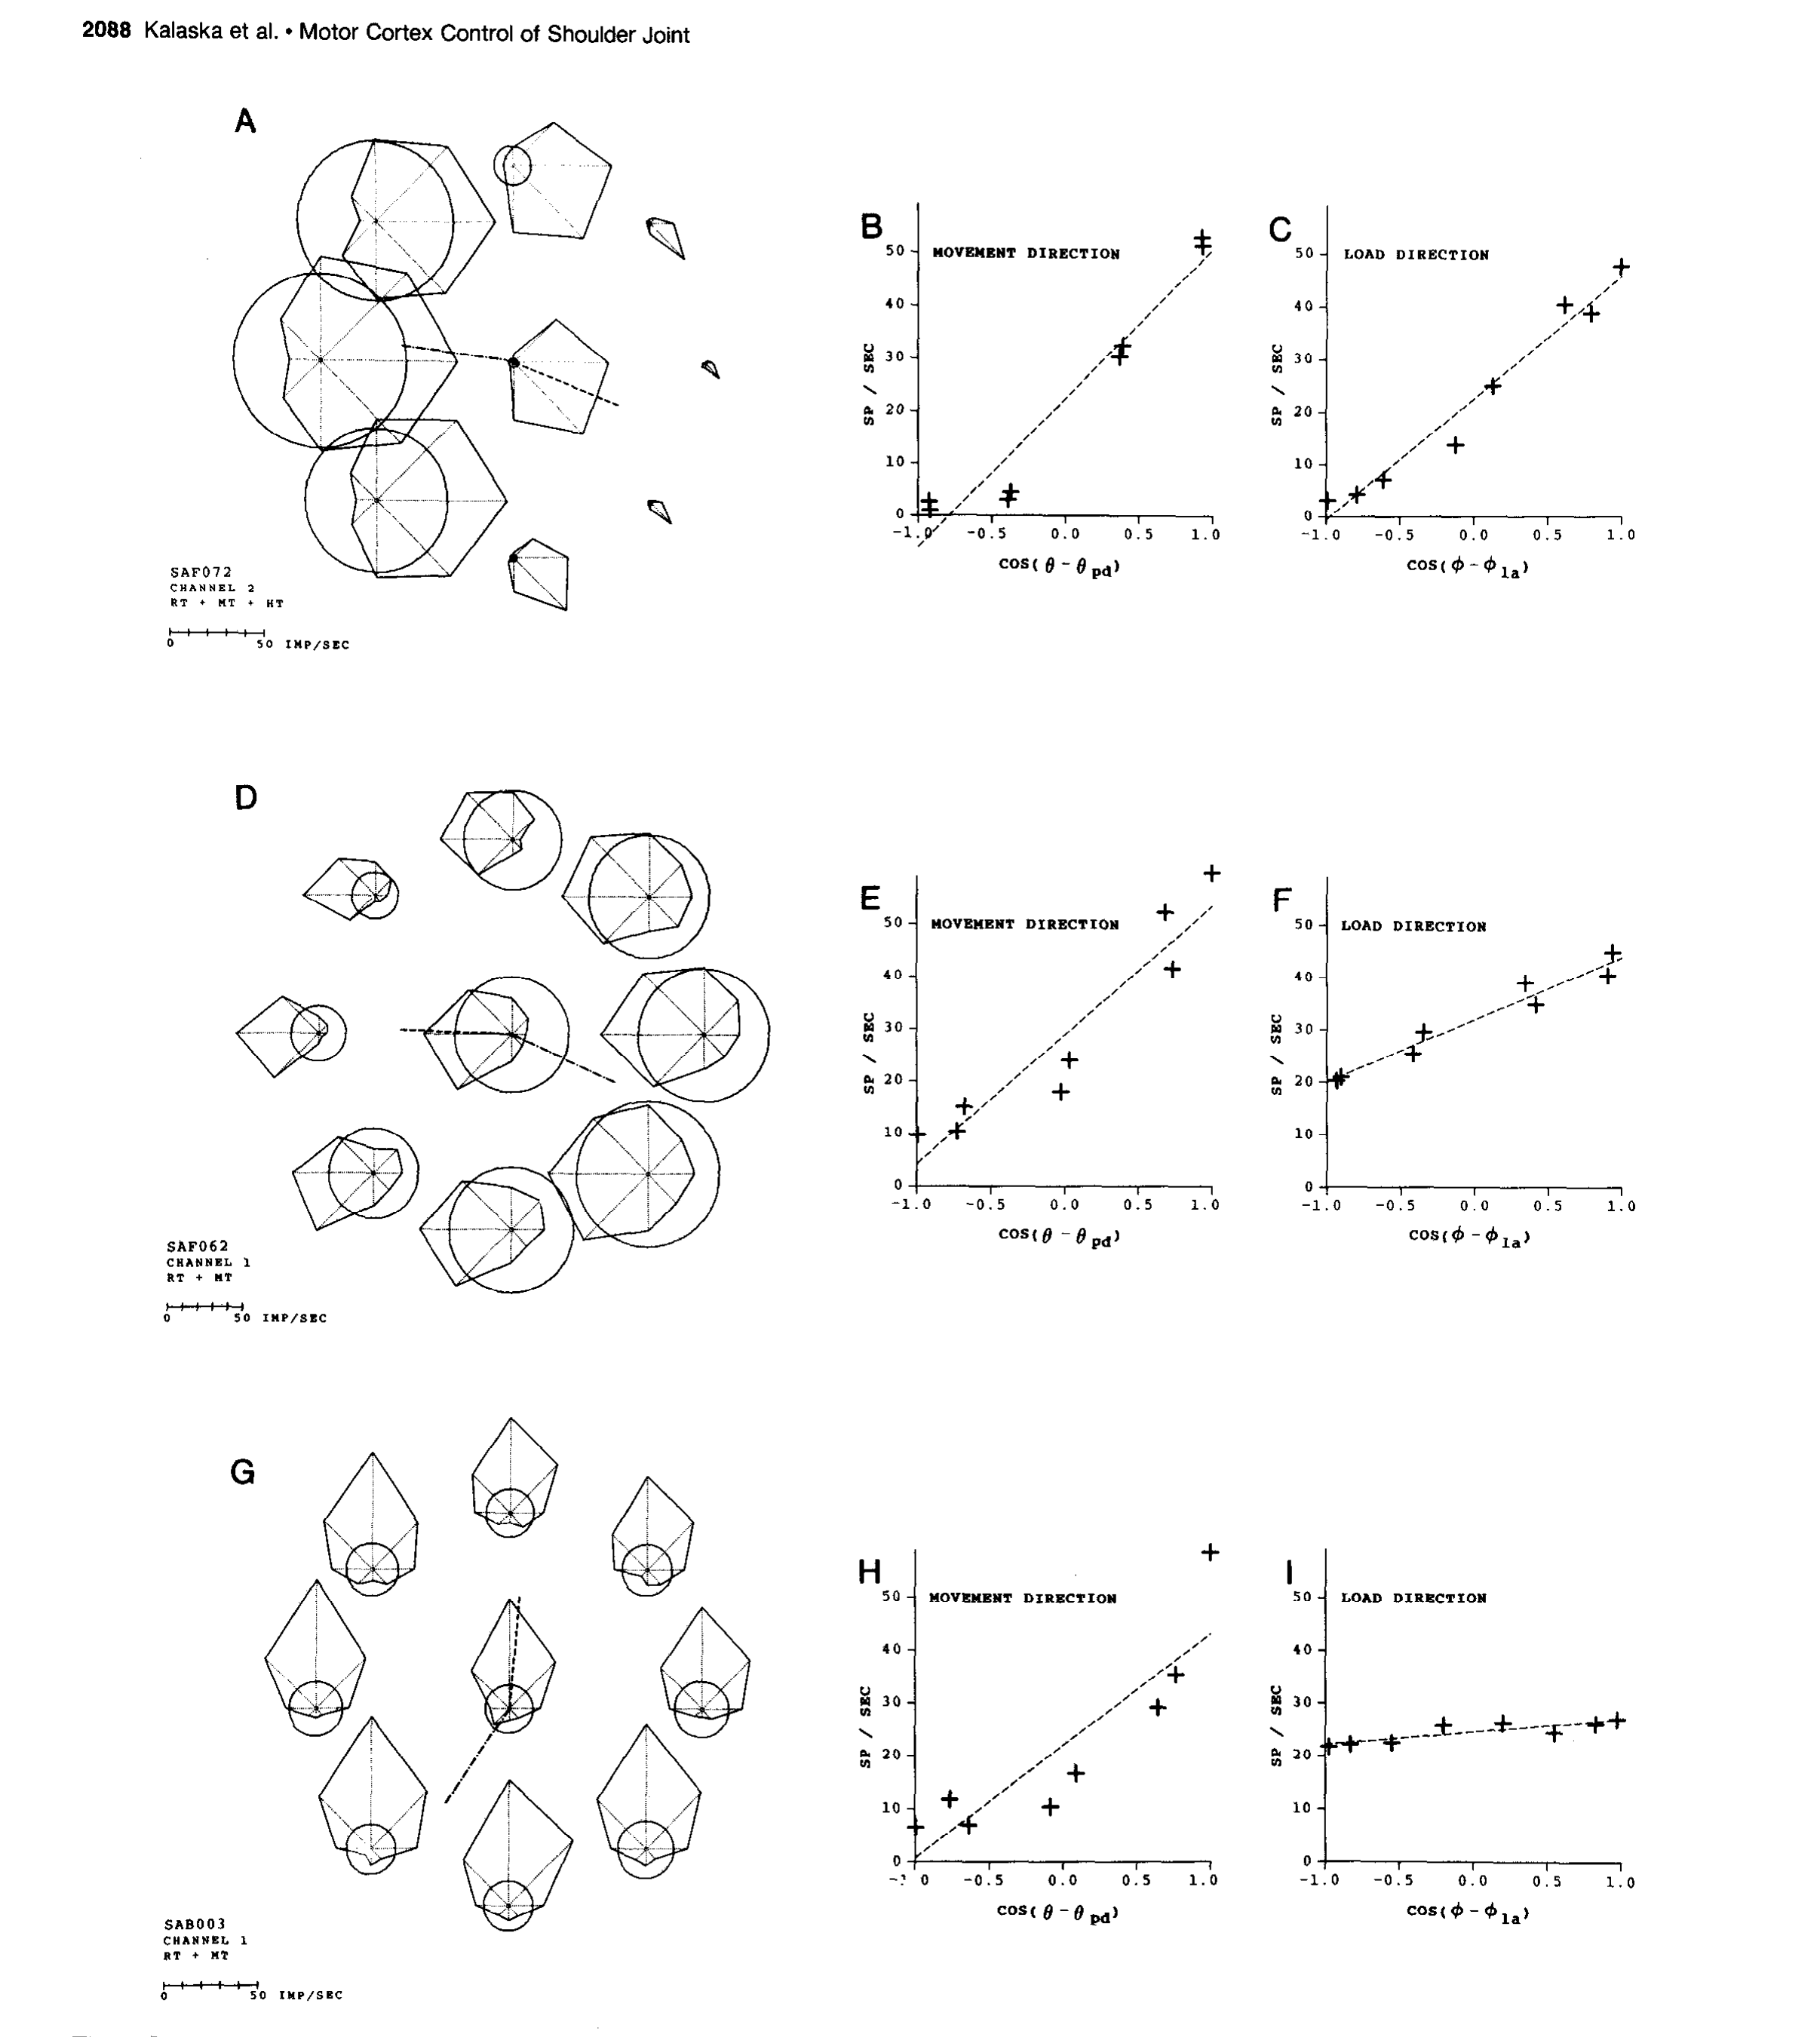
图7 · 不同程度的负载敏感性。 三个单元展示从较强到较弱的负载效应。示例支持响应异质性,不能单凭三个例子确定离散的生物细胞类型。
 原文 Fig. 8 · PDF 第 10 页 · 原文图像 · 查看来源
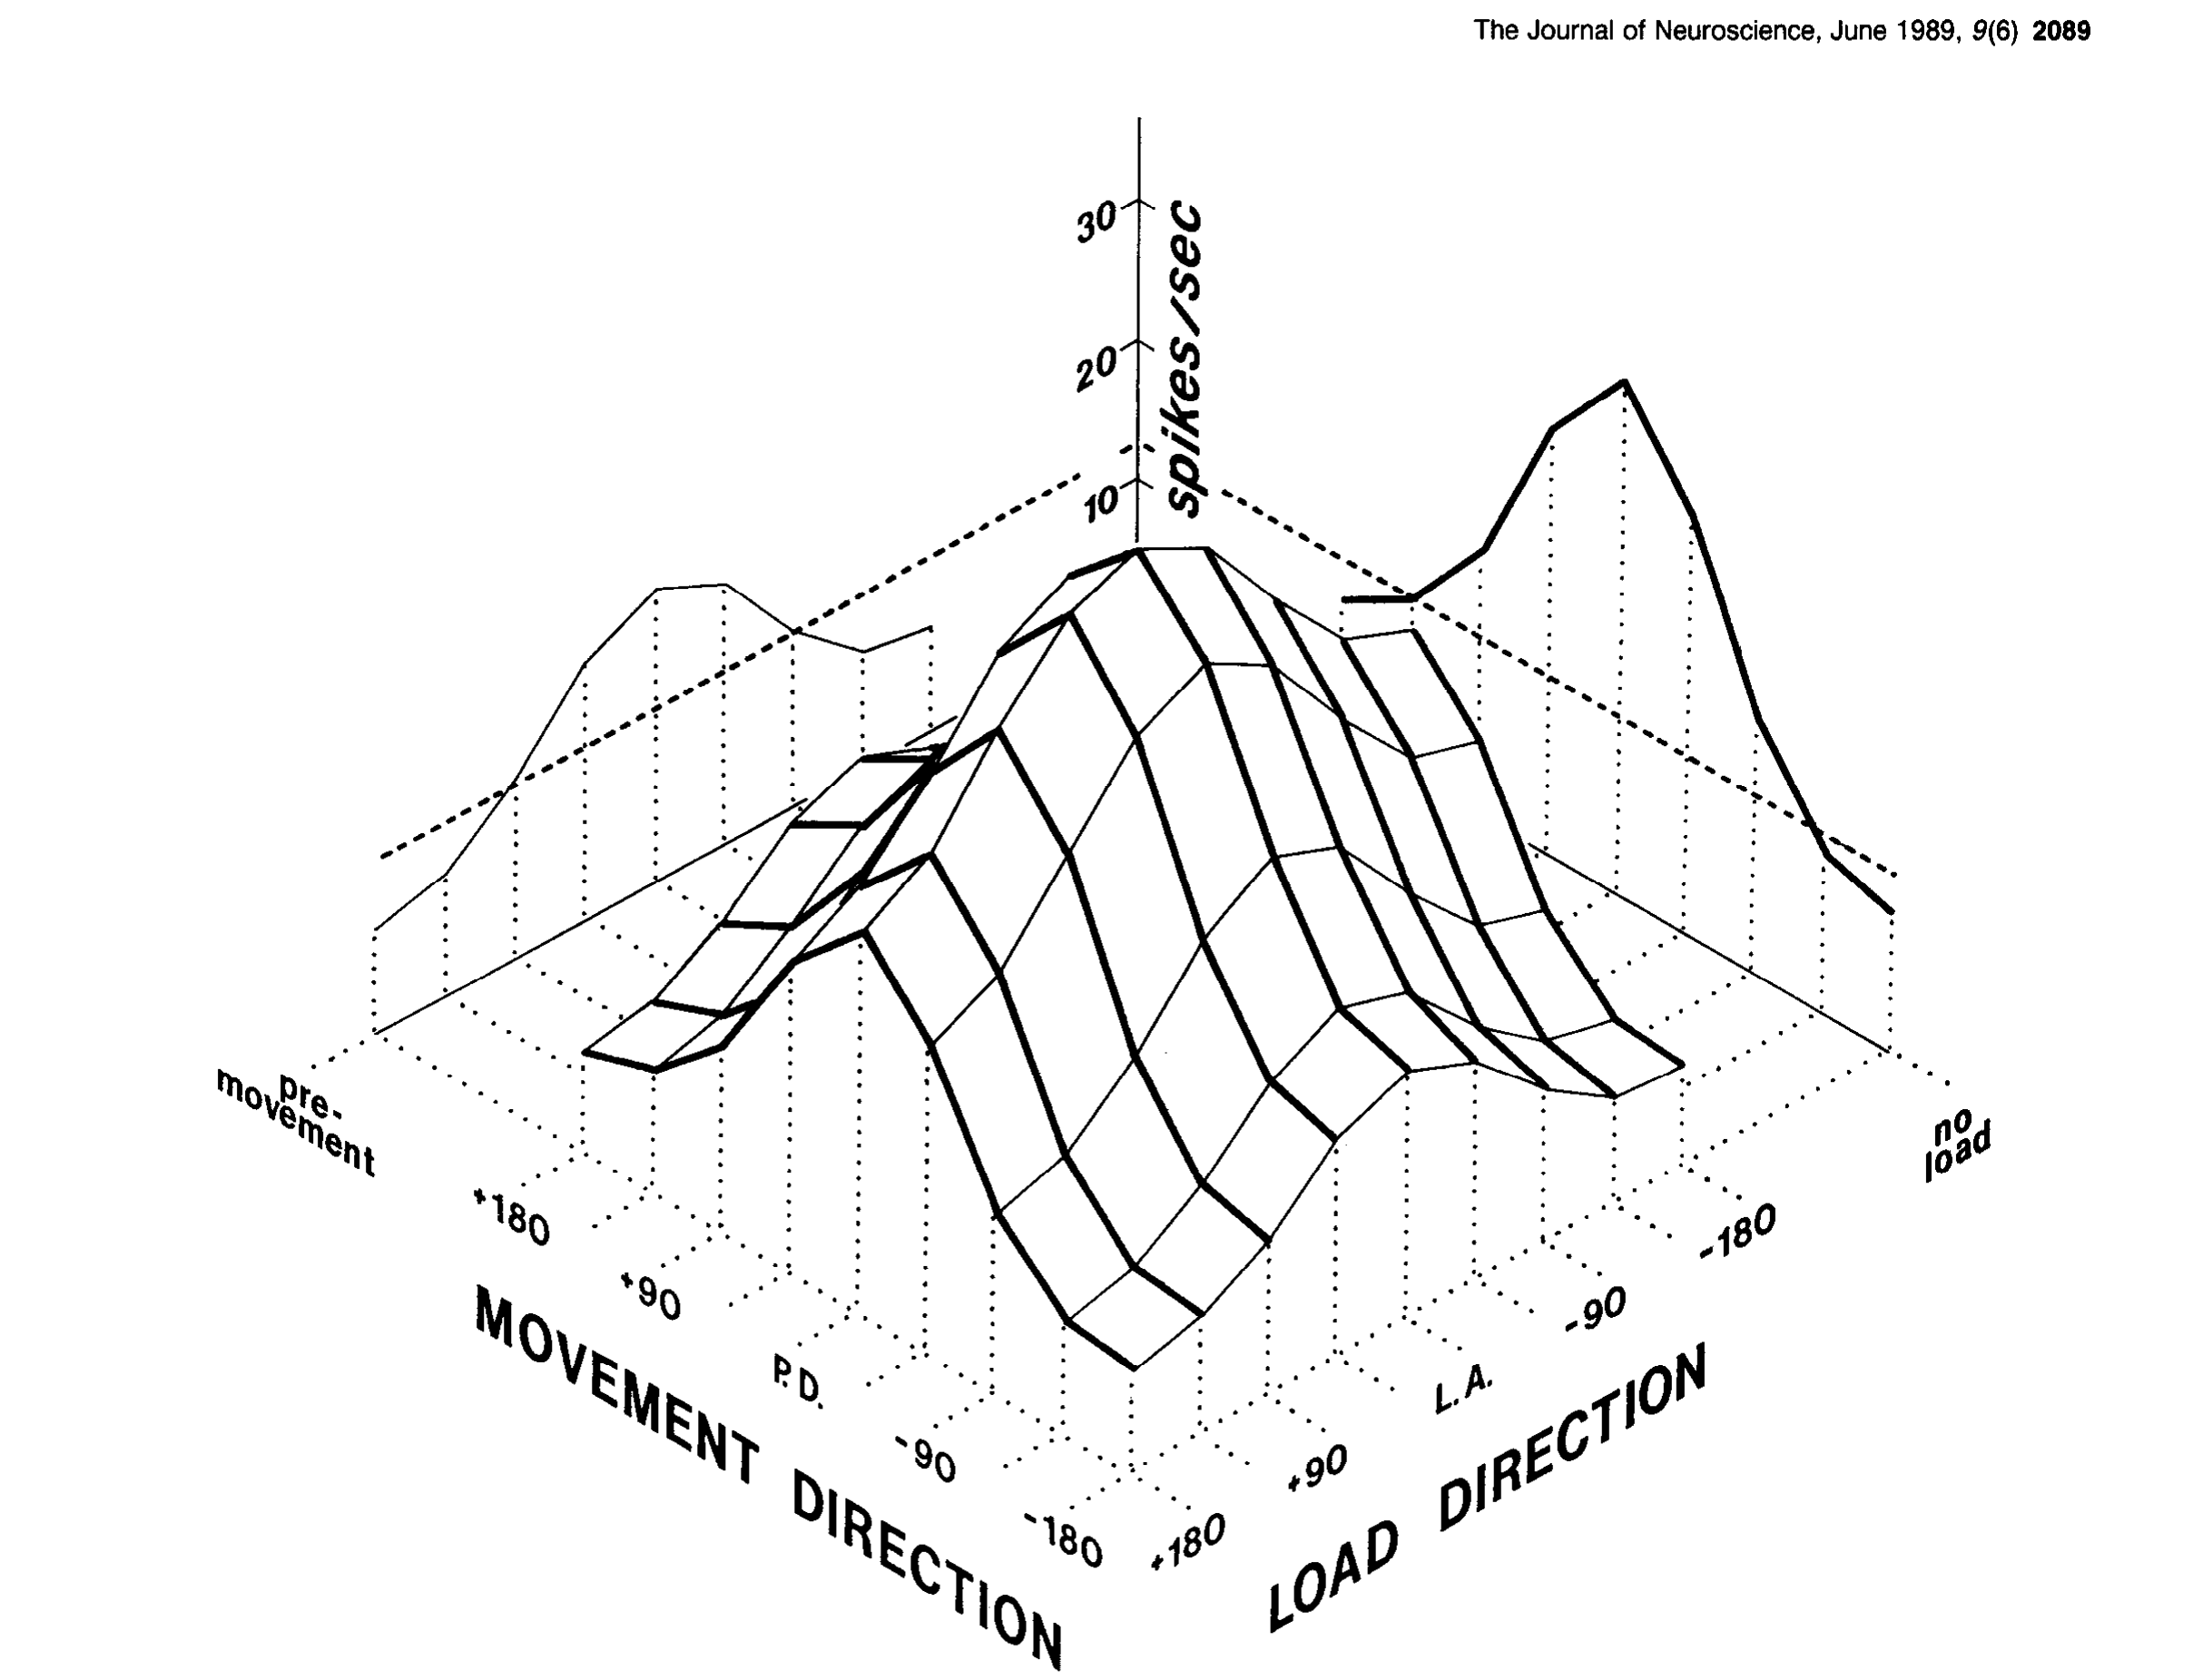
图8 · 对齐后的群体响应面。 按各单元的运动偏好方向和负载轴对齐后求平均,两个维度均存在连续调制。图展示对齐后的总体规律,不是所有单元共享同一绝对方向或同一响应面。
 原文 Fig. 9 · PDF 第 11 页 · 原文图像 · 查看来源
图9 · 负载轴相对偏好方向。 上方为单元方向,下方为夹角分布。负载轴较多位于偏好方向反侧,同时存在较大离散和例外。
 原文 Fig. 10 · PDF 第 12 页 · 原文图像 · 查看来源
图10 · 群体向量的方向。 A为无负载运动相关活动,B为负载补偿相关变化。B的合向量大体指向抵消相应拉力的方向;这是按指定规则构建的读出,不能单独证明脑内的解码算法。
 原文 Fig. 11 · PDF 第 12 页 · 原文图像 · 查看来源
图11 · 负载程差的跨时段比较。 横轴CHT、纵轴THT的程差较相关(R=0.842),并较接近恒等关系。它比较活动变化幅度,不能证明完整试次中负载效应始终恒定。
 原文 Fig. 12 · PDF 第 13 页 · 原文图像 · 查看来源
图12 · 单细胞响应的交互差异。 四行各为一个单元,三列依次为对抗负载、无负载和助力负载。示例包括较接近加和及明显偏离的情况,说明群体近似不能替代逐细胞检查。
 原文 Fig. 13 · PDF 第 14 页 · 原文图像 · 查看来源
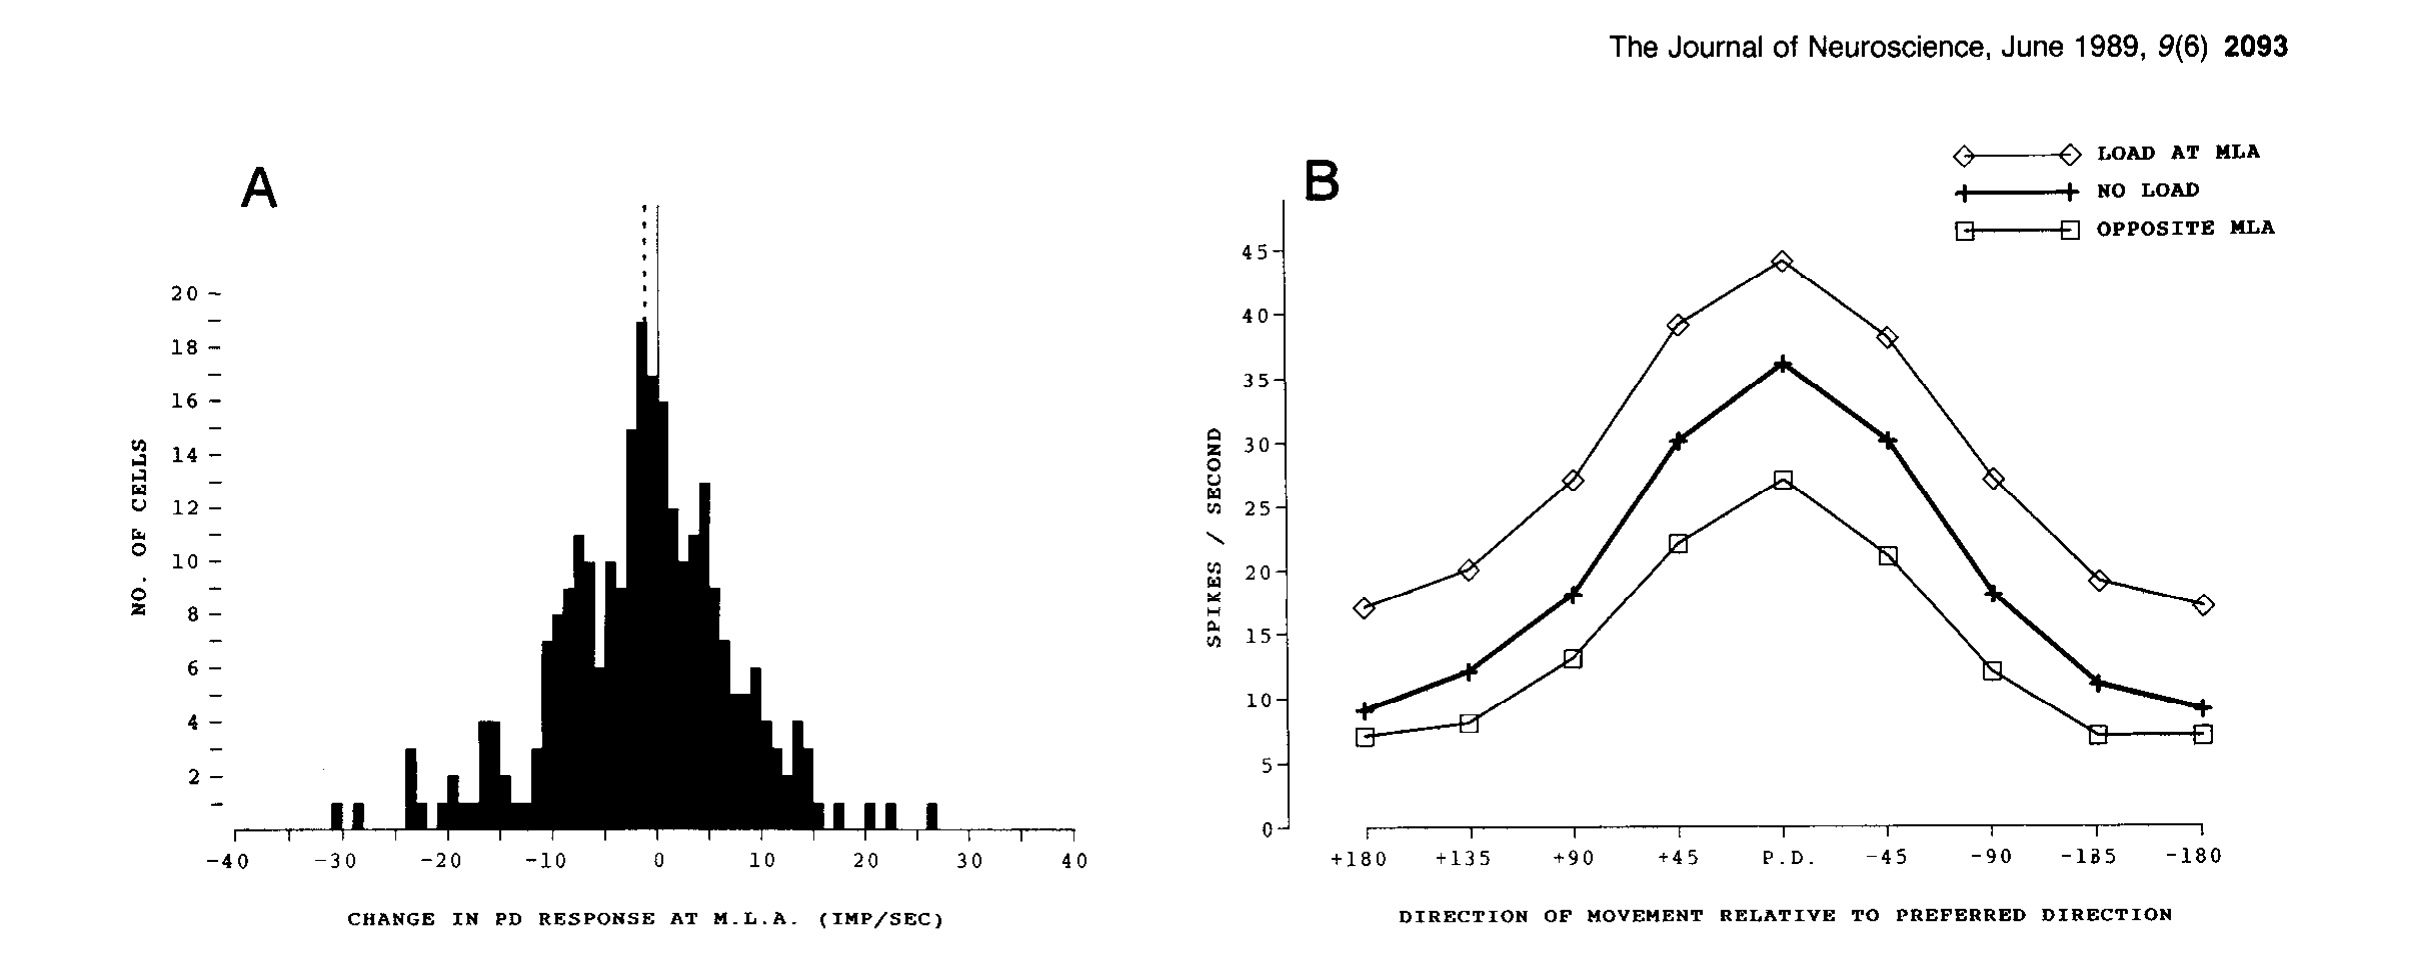
图13 · 负载对运动响应的影响。 A统计扣除各条件运动前活动后的响应差值,均值约−1.3次/秒。B绘的是绝对平均放电率,三条曲线处于不同高度,不能称为相互重合;比较其调制幅度才与加和问题对应。
 原文 Fig. 14 · PDF 第 14 页 · 原文图像 · 查看来源
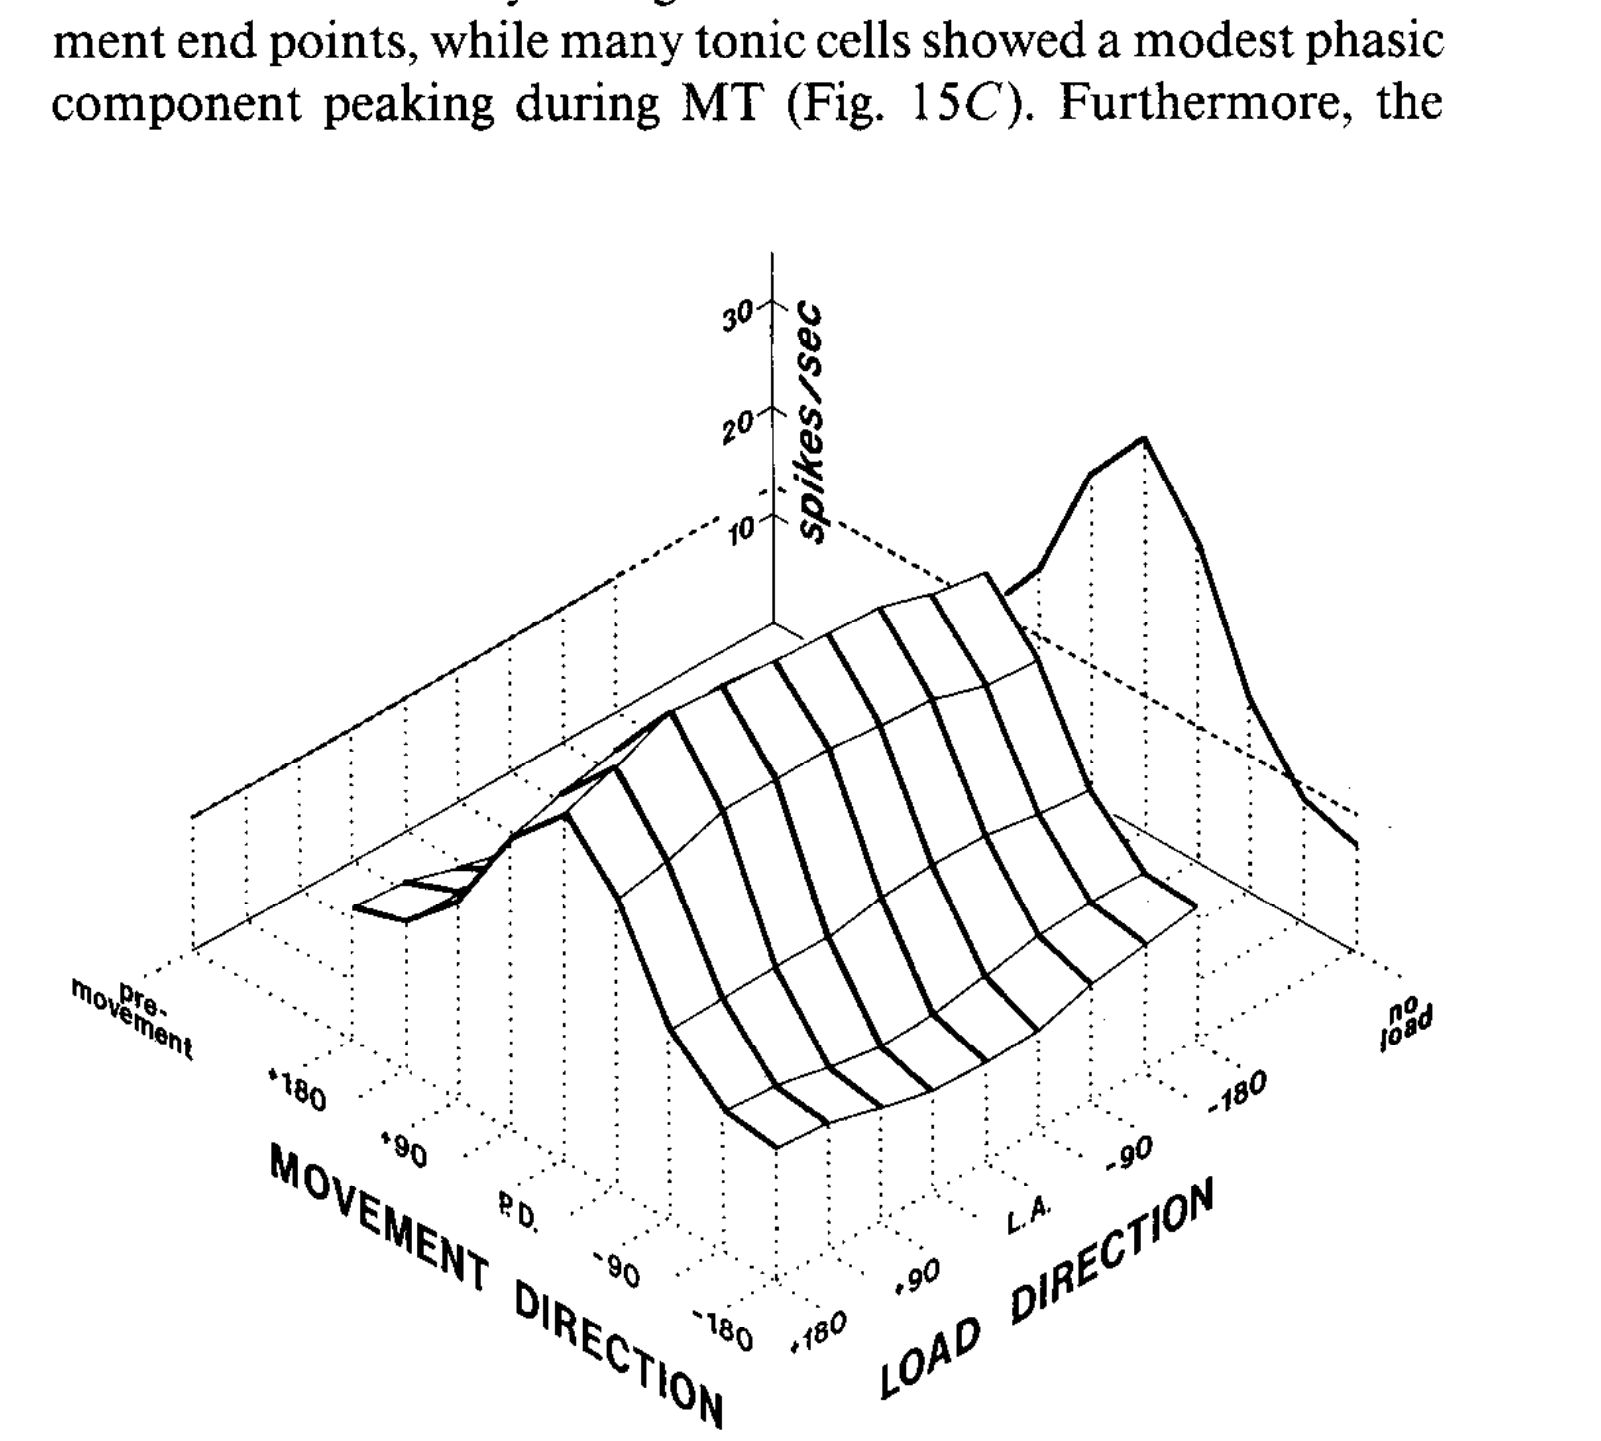
图14 · 扣除负载相关活动后的响应面。 从有负载响应中减去运动前测得的负载效应,检查剩余运动调制是否类似无负载条件。负载轴附近较接近,反侧负载仍有偏离;图不是未经变换的预测值—实测值散点比较。
 原文 Fig. 15 · PDF 第 15 页 · 原文图像 · 查看来源
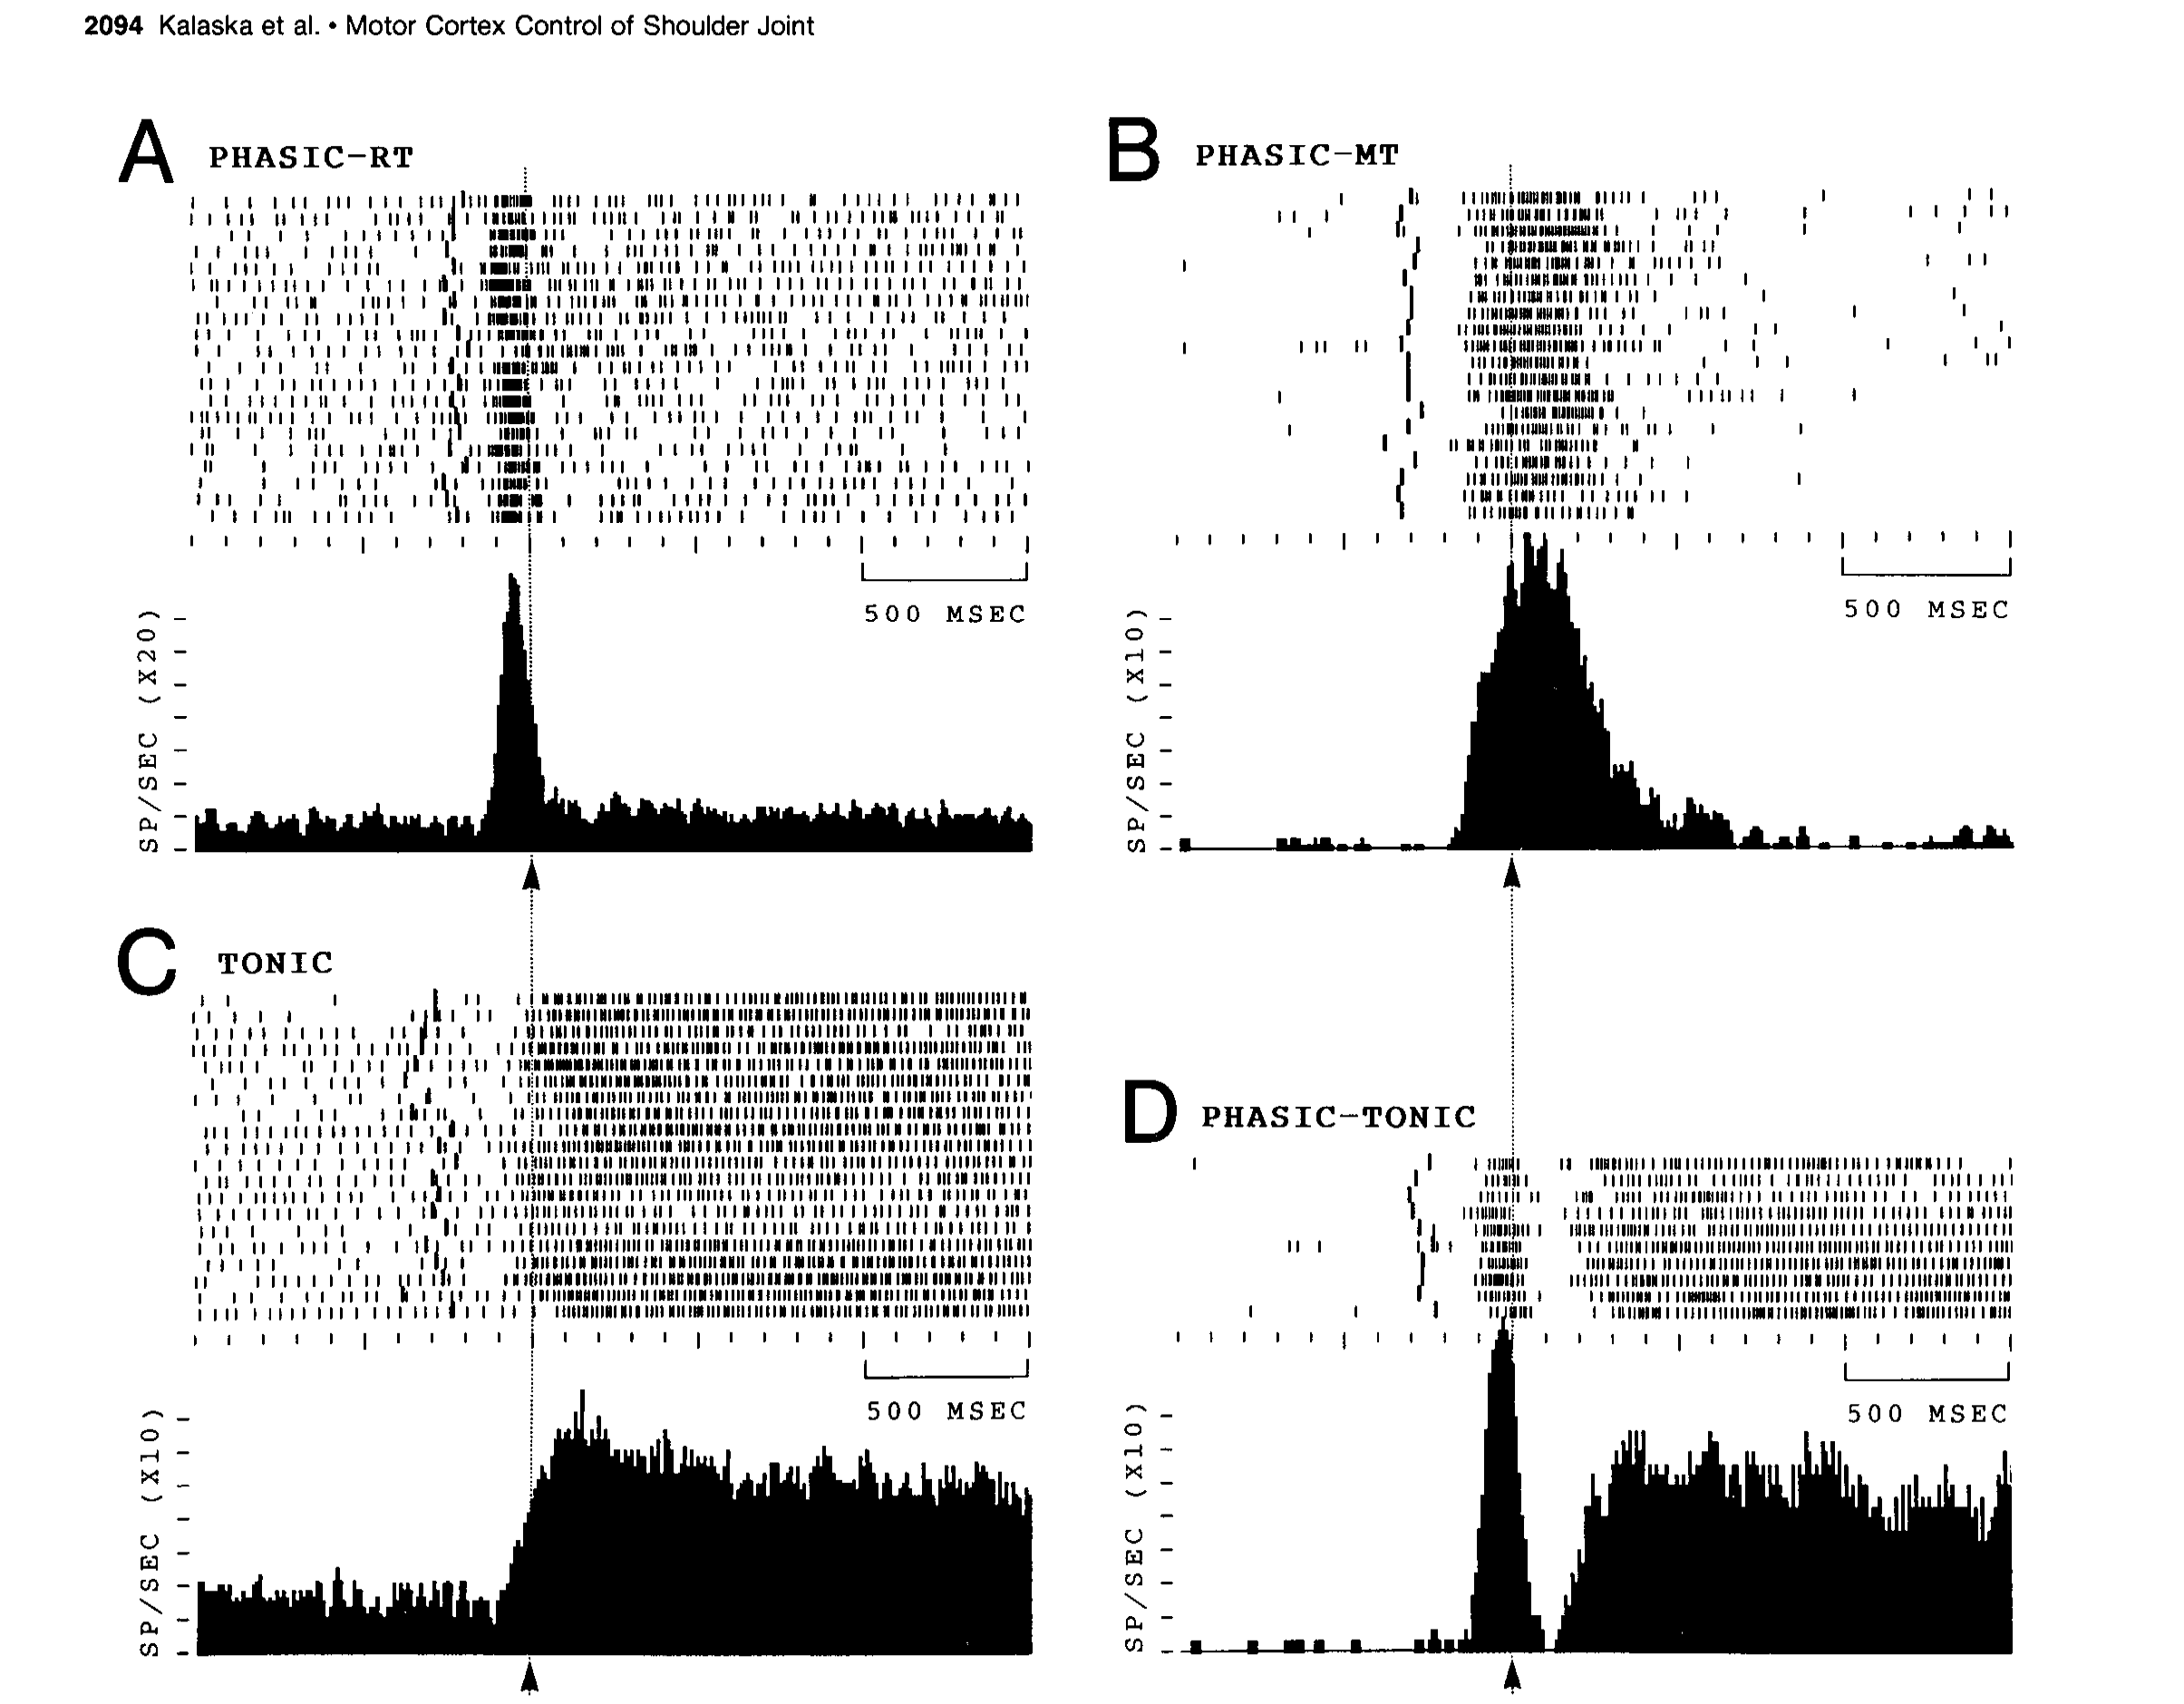
图15 · 四类时间响应示例。 A–D分别为phasic-RT、phasic-MT、tonic和phasic-tonic。分类服务于响应比较,作者也强调连续性,不能当作经解剖验证的四类细胞。
 原文 Fig. 16 · PDF 第 16 页 · 原文图像 · 查看来源
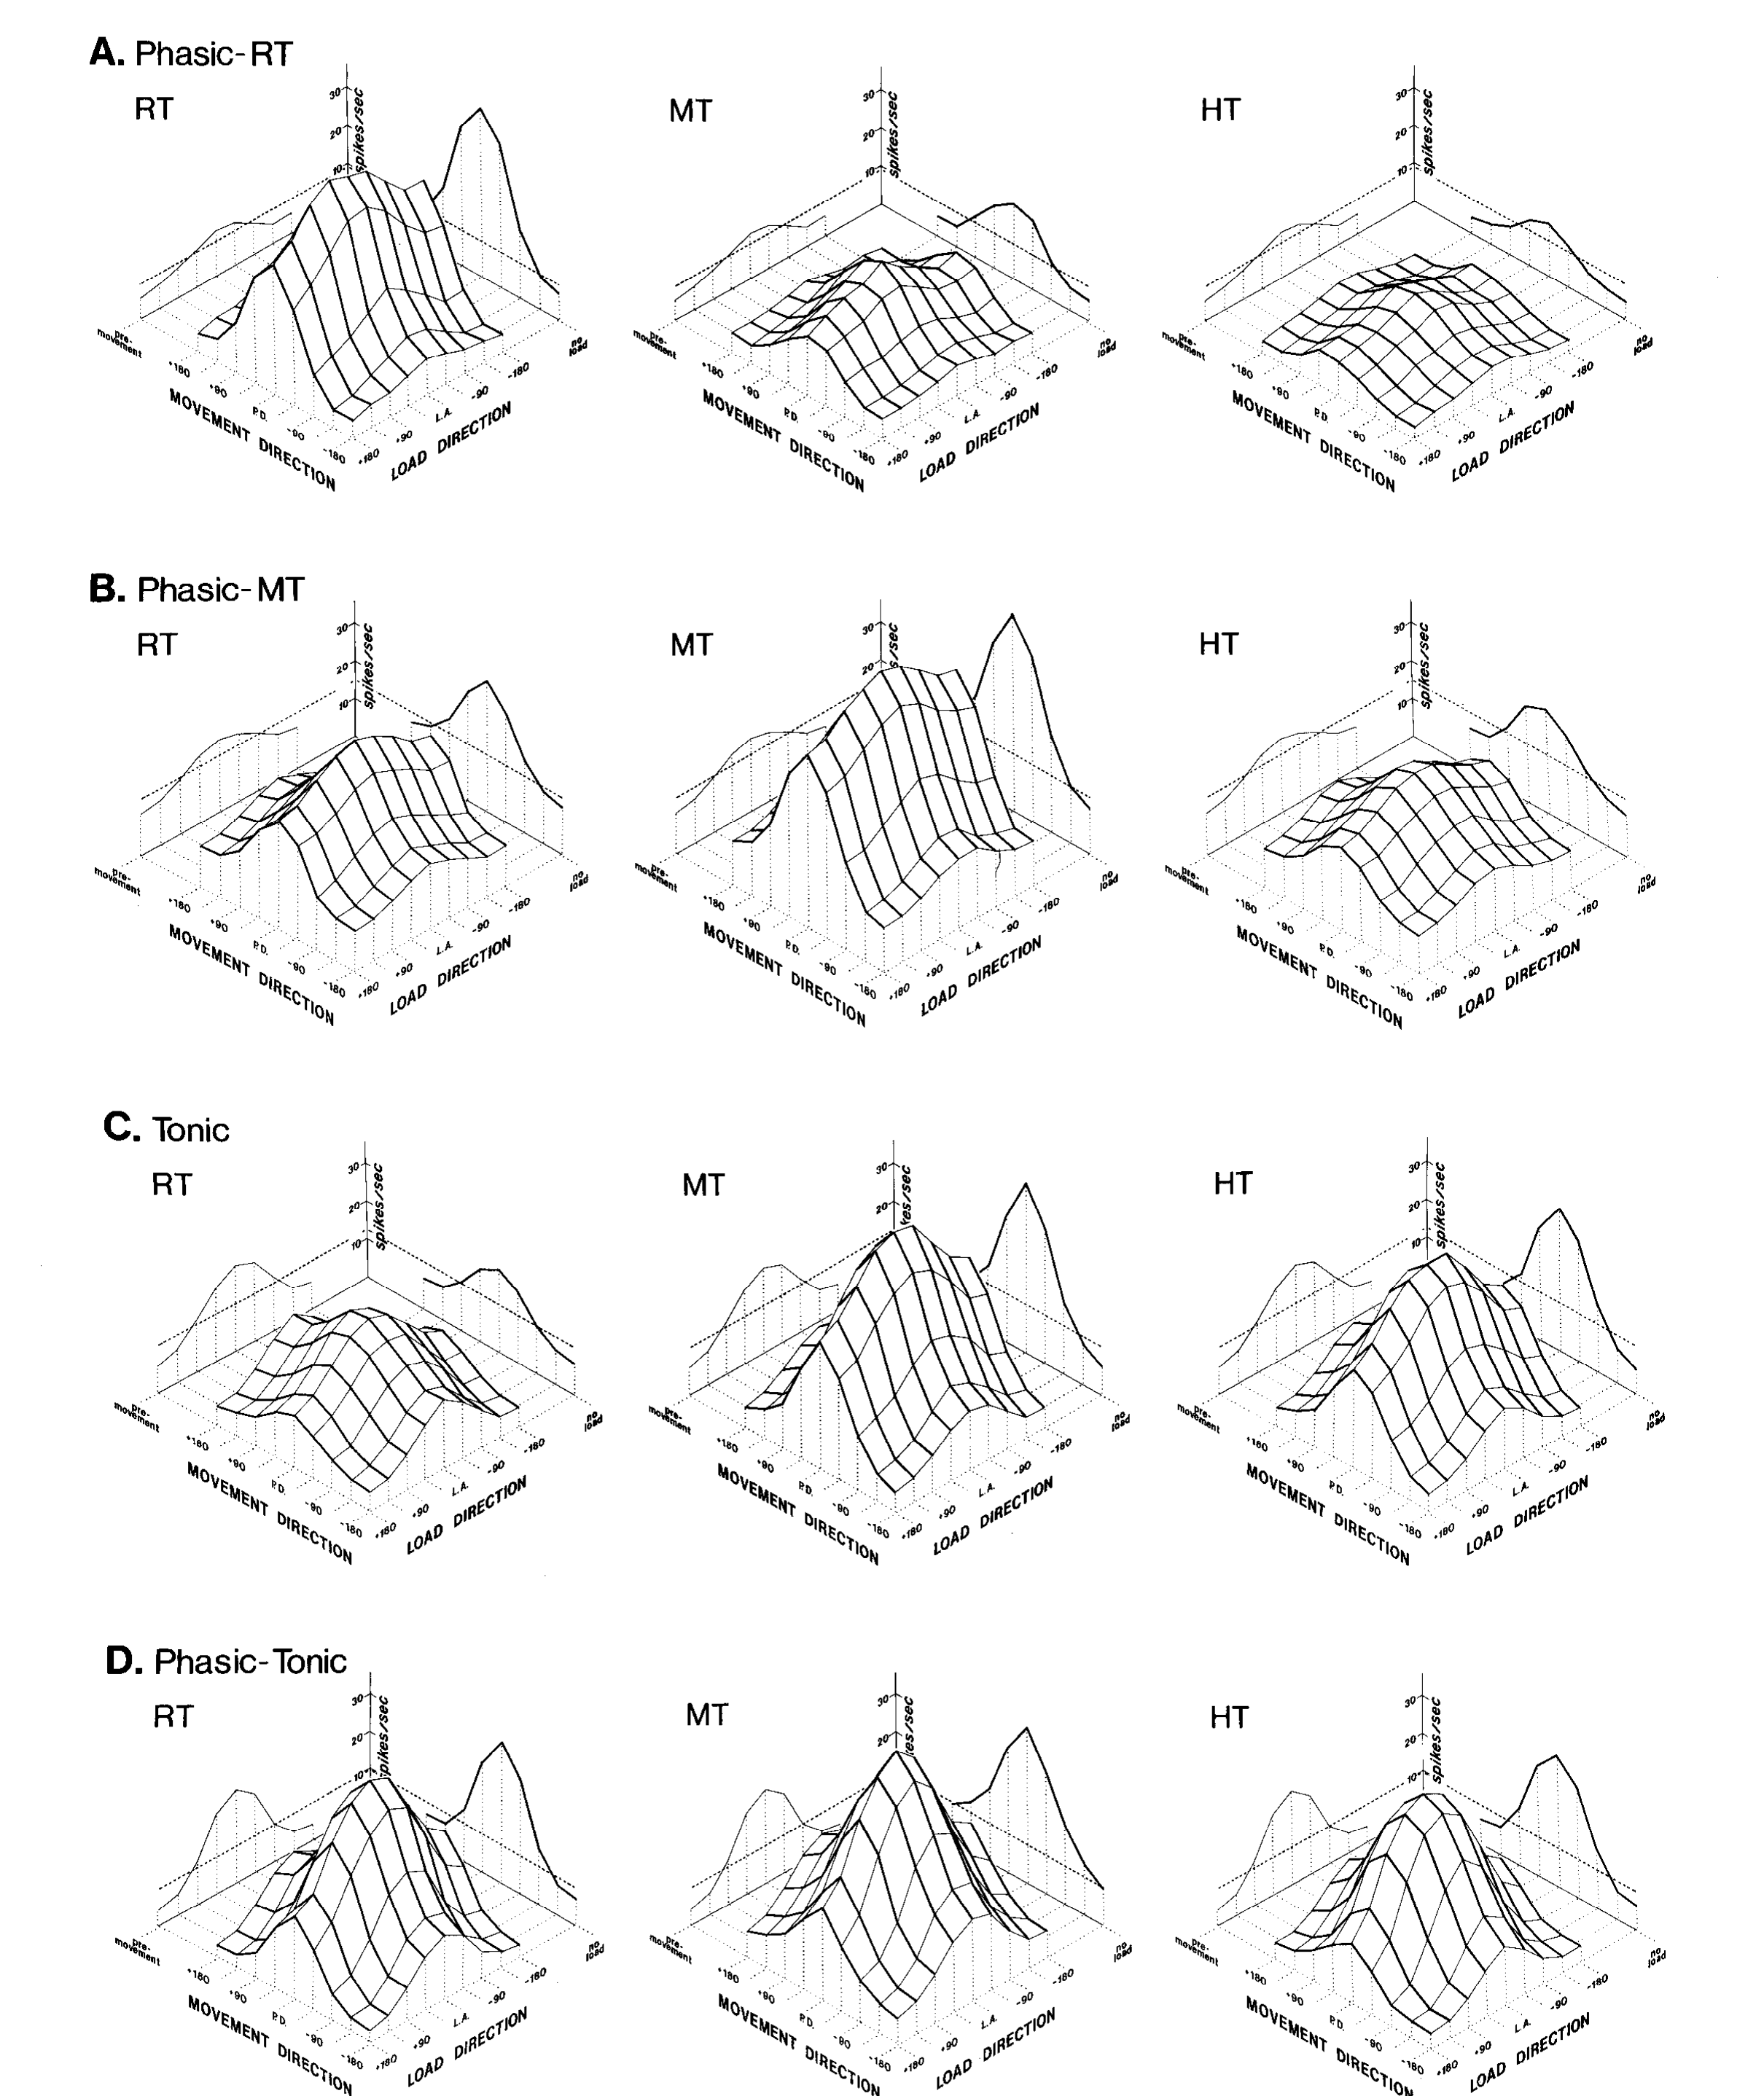
图16 · 响应类型与时段的群体比较。 四行对应四类,三列为RT、MT和THT。各类在某些时段都有运动调制,两个phasic组平均负载效应较弱;并非所有时段的运动调制都相等。
 原文 Fig. 17 · PDF 第 17 页 · 原文图像 · 查看来源
图17 · 姿势与负载敏感性的关联。 A为绝对程差,B为按RT程差归一化的对数指数;R分别为0.580和0.717。B的两个指标共享分母,其较大相关不能全部解释为更强的生理耦合。
 原文 Fig. 18 · PDF 第 18 页 · 原文图像 · 查看来源
图18 · 微刺激阈值与组织学。 A显示负载/运动指数与刺激阈值负相关,B为一个记录位点的切片。它提示响应差异可能与位置有关,但并未确认每个记录细胞的皮层脊髓连接。
 原文 Fig. 19 · PDF 第 18 页 · 原文图像 · 查看来源
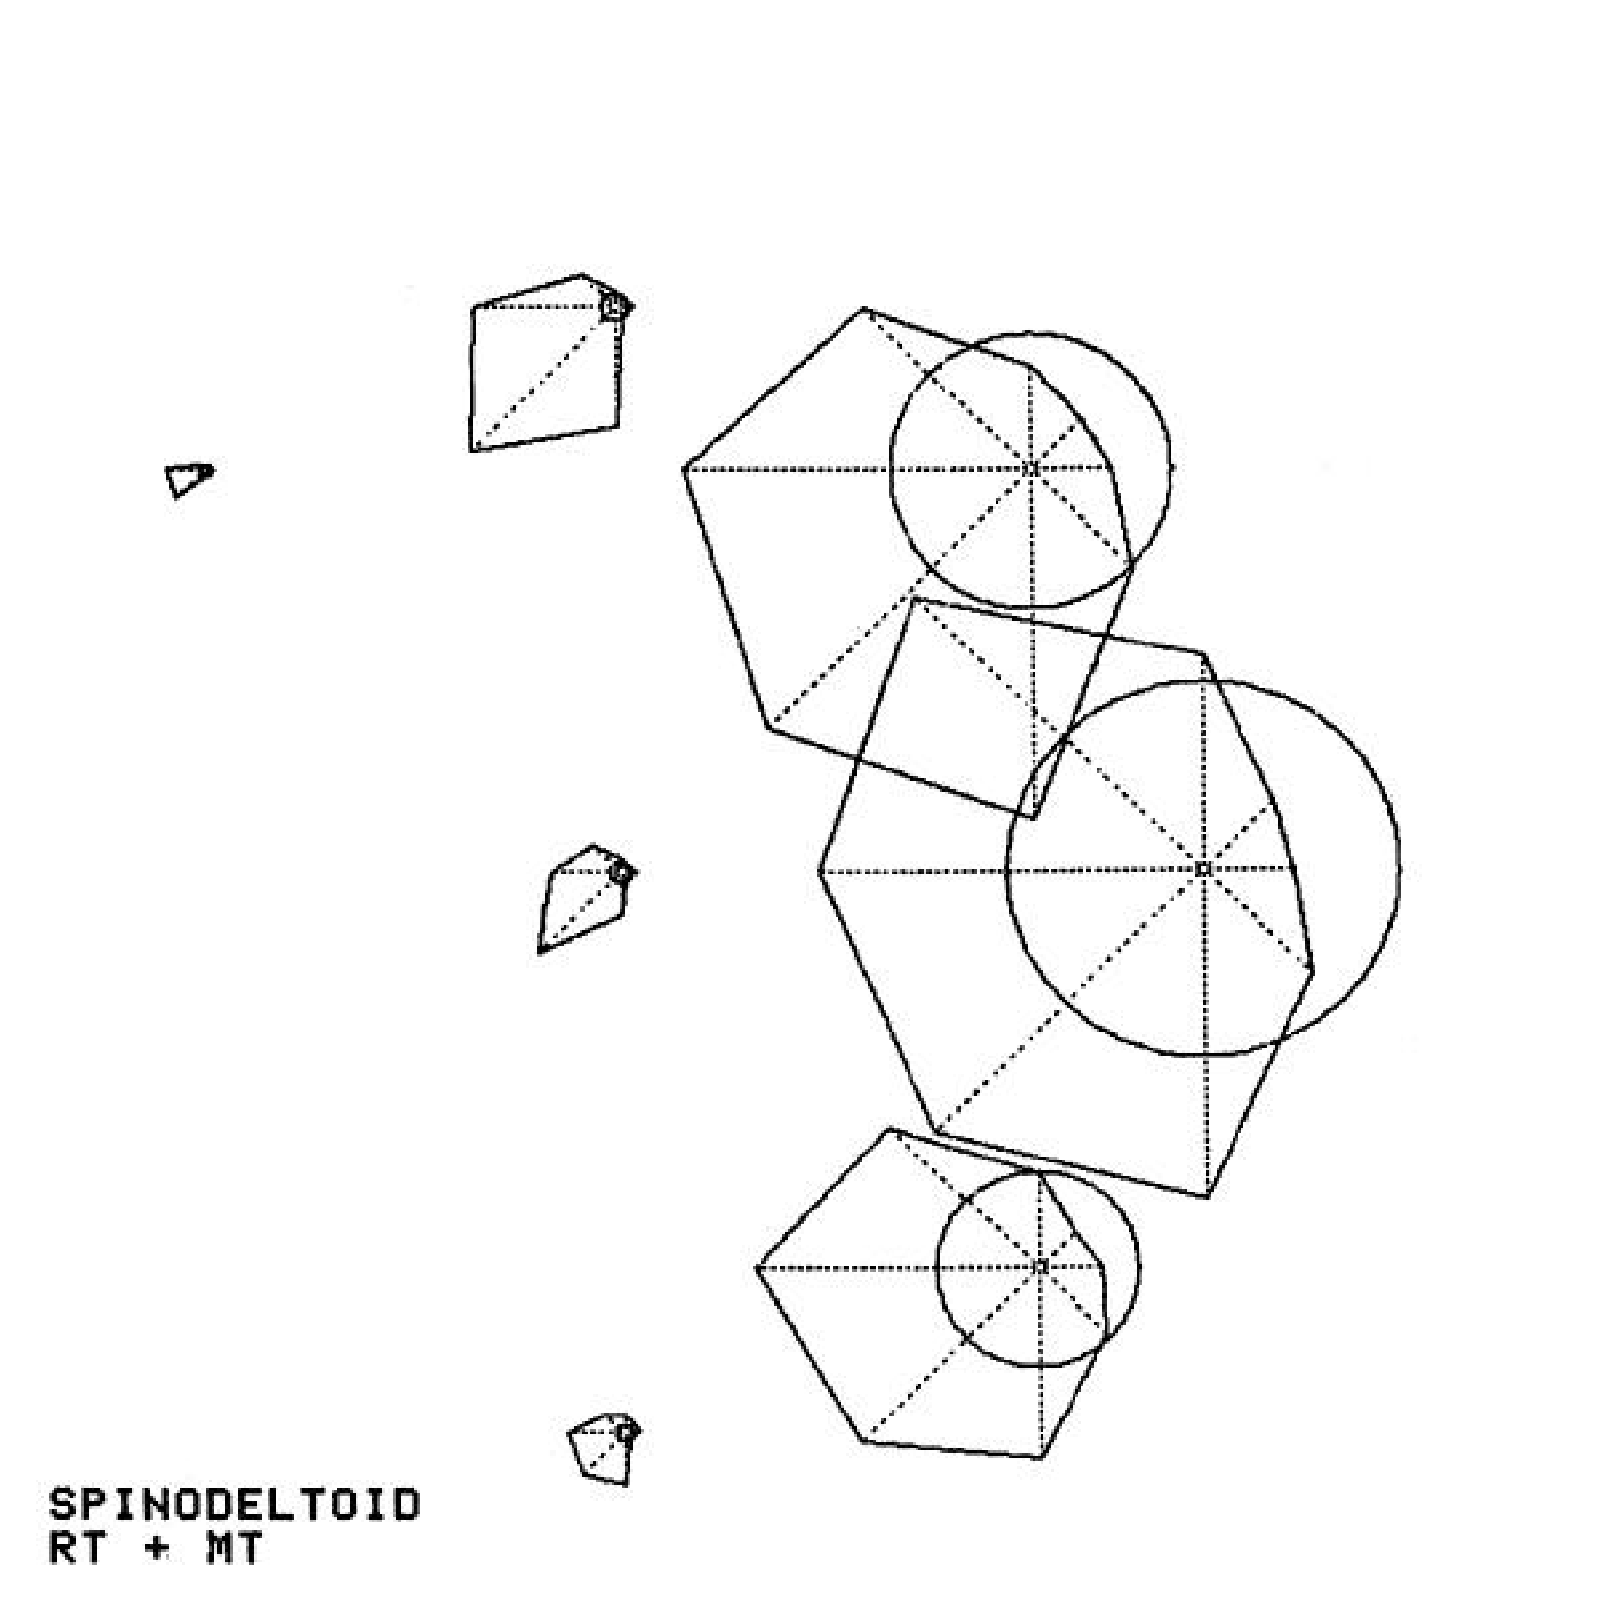
图19 · 三角肌后束EMG。 该肌肉也随运动方向和负载方向改变活动,图使用左臂数据而未镜像。相似趋势支持比较皮层和肌肉的动力学需求,不等于皮层信号被逐项原样传到肌肉。
讨论与解读边界
该实验系统排除了仅用纯外在运动学方向解释初级运动皮层活动的单一化假设,同时也证实仅用静态关节力矩等标量动力学指标无法完整概括皮层神经元的时空动态。外部物理负载的引入在改变机械输出需求的同时,同步改变了外周本体感觉传入、梭内肌反射环路增益以及体态平衡控制策略;在同一脑区同时观察到运动学与动力学相关信号,尚不足以唯一辨识神经表征是以末端笛卡尔操作力、关节力矩还是独立肌肉张力为基础坐标系。
标准实验中未针对同一只动物系统扫描多档负载重量幅值,尽管对少数不敏感细胞曾尝试加载更大重锤,但未建立完整的质量—放电增益响应曲线。群体偏好方向对齐与大时间窗时段平均便于归纳跨细胞的宏观规律,但也掩盖了毫秒尺度上的动态时序相位差异与单神经元局部的强非线性交互。由于归一化指数共享了相同的运动程差分母,对该指标强相关的解释应与原始未归一化的绝对离散度数据结合分析。
思考问题
- 在同一批单元中系统改变负载大小、方向及起始姿势,哪些加和关系能跨条件保持,哪些会出现饱和或交互?
- 若同时检验绝对程差、共享分母校正和逐时间窗响应,姿势敏感性与负载敏感性的关联是否仍成立?