A07 · Muscle and movement representations in the primary motor cortex
Kakei, S., Hoffman, D.S., & Strick, P.L. (1999). Science, 285, 2136–2139. doi
改变前臂姿态后,M1入选单元既有偏好方向随肌肉类似移位者,也有偏好方向相对空间较稳定者。结果支持表征的异质性;姿态增益和方向偏好需要分开分析,且“外在样”与“肌肉样”均是响应描述而非已确认的输出通路。
核对版本:Zotero motor_control_interception_64 集合本地全文(OCR,含 JSTOR 尾注),图注与正文互相校订(2026-09-18);Zotero 条目。
背景
同一个空间方向可以由不同的关节运动和肌肉组合实现。本文利用前臂旋转,在腕部任务中比较神经响应究竟更接近外部运动方向、关节轴还是实际肌肉响应。
研究思路
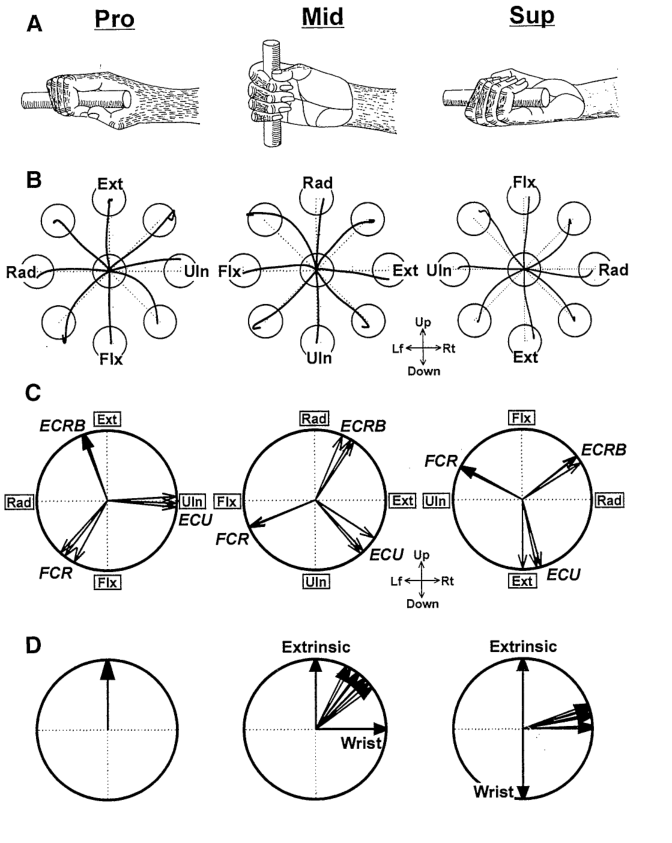
在旋前、中间及旋后三种姿态下完成相同的八方向光标任务,先测量肌肉偏好方向的移位,再与神经元的移位比较。姿态旋转180°时,理想外在坐标偏好不变,理想关节坐标旋转180°,实测肌肉则介于两者之间。
方法
神经记录来自一只长期训练的猴。动物握持轻质二维腕操纵杆,按提示将光标移向八个目标,每种姿态、方向各5–10次。125个运动相关M1神经元中,88个在三种姿态下均有方向调谐,构成主要分析样本。
研究取样27块肌肉,其中7块在三姿态下均有运动前的相位活动并可分析方向调谐,共23次记录;另一只猴用于复核前臂肌肉模式。神经偏好方向取运动前100–0 ms,肌肉取运动起始前后各25 ms。运动前窗口减少本次动作造成的再传入影响,但不能排除已有姿势、视觉或其他感觉输入。
主要结果
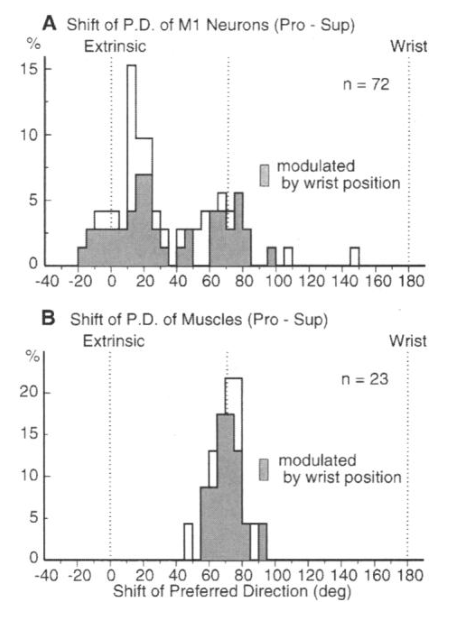
前臂从旋前转到旋后时,7块入选肌肉的偏好方向平均移位71.1°±9.8°。88个单元中,28个出现较大、有序的移位,平均70.2°;44个移位较小,平均12.3°;另16个移位不规则,未进入后续两组比较。28个较大移位单元中有一个超过文中通常使用的肌肉样范围,因此姿态调制统计的肌肉样分母为27。
偏好方向稳定不意味着响应强度完全不受姿态影响。以活动变化超过30%为标准,18/27个肌肉样和27/44个外在样单元有明显调制。其余17/44个外在样单元没有达到这项强调制标准,不能写成对姿态绝对不敏感。
两组记录位置、刺激阈值及响应时序等未显示系统差异。作者明确表示,尚无法确定哪组或是否两组都直接提供下行命令。不同响应模式可能参与坐标变换,是与结果相容的解释,而非本文直接证明的细胞间计算链。
逐图解读
 原文 Fig. 1 · PDF 第 1 页
图1 · 姿态操纵与肌肉参照。 A为三种前臂姿态,B为运动轨迹,C为三块示例肌肉的偏好方向,D为相对旋前姿态的移位。实测肌肉移位位于理想外在坐标与关节坐标之间,为神经响应比较提供参照。
 原文 Fig. 2 · PDF 第 2 页
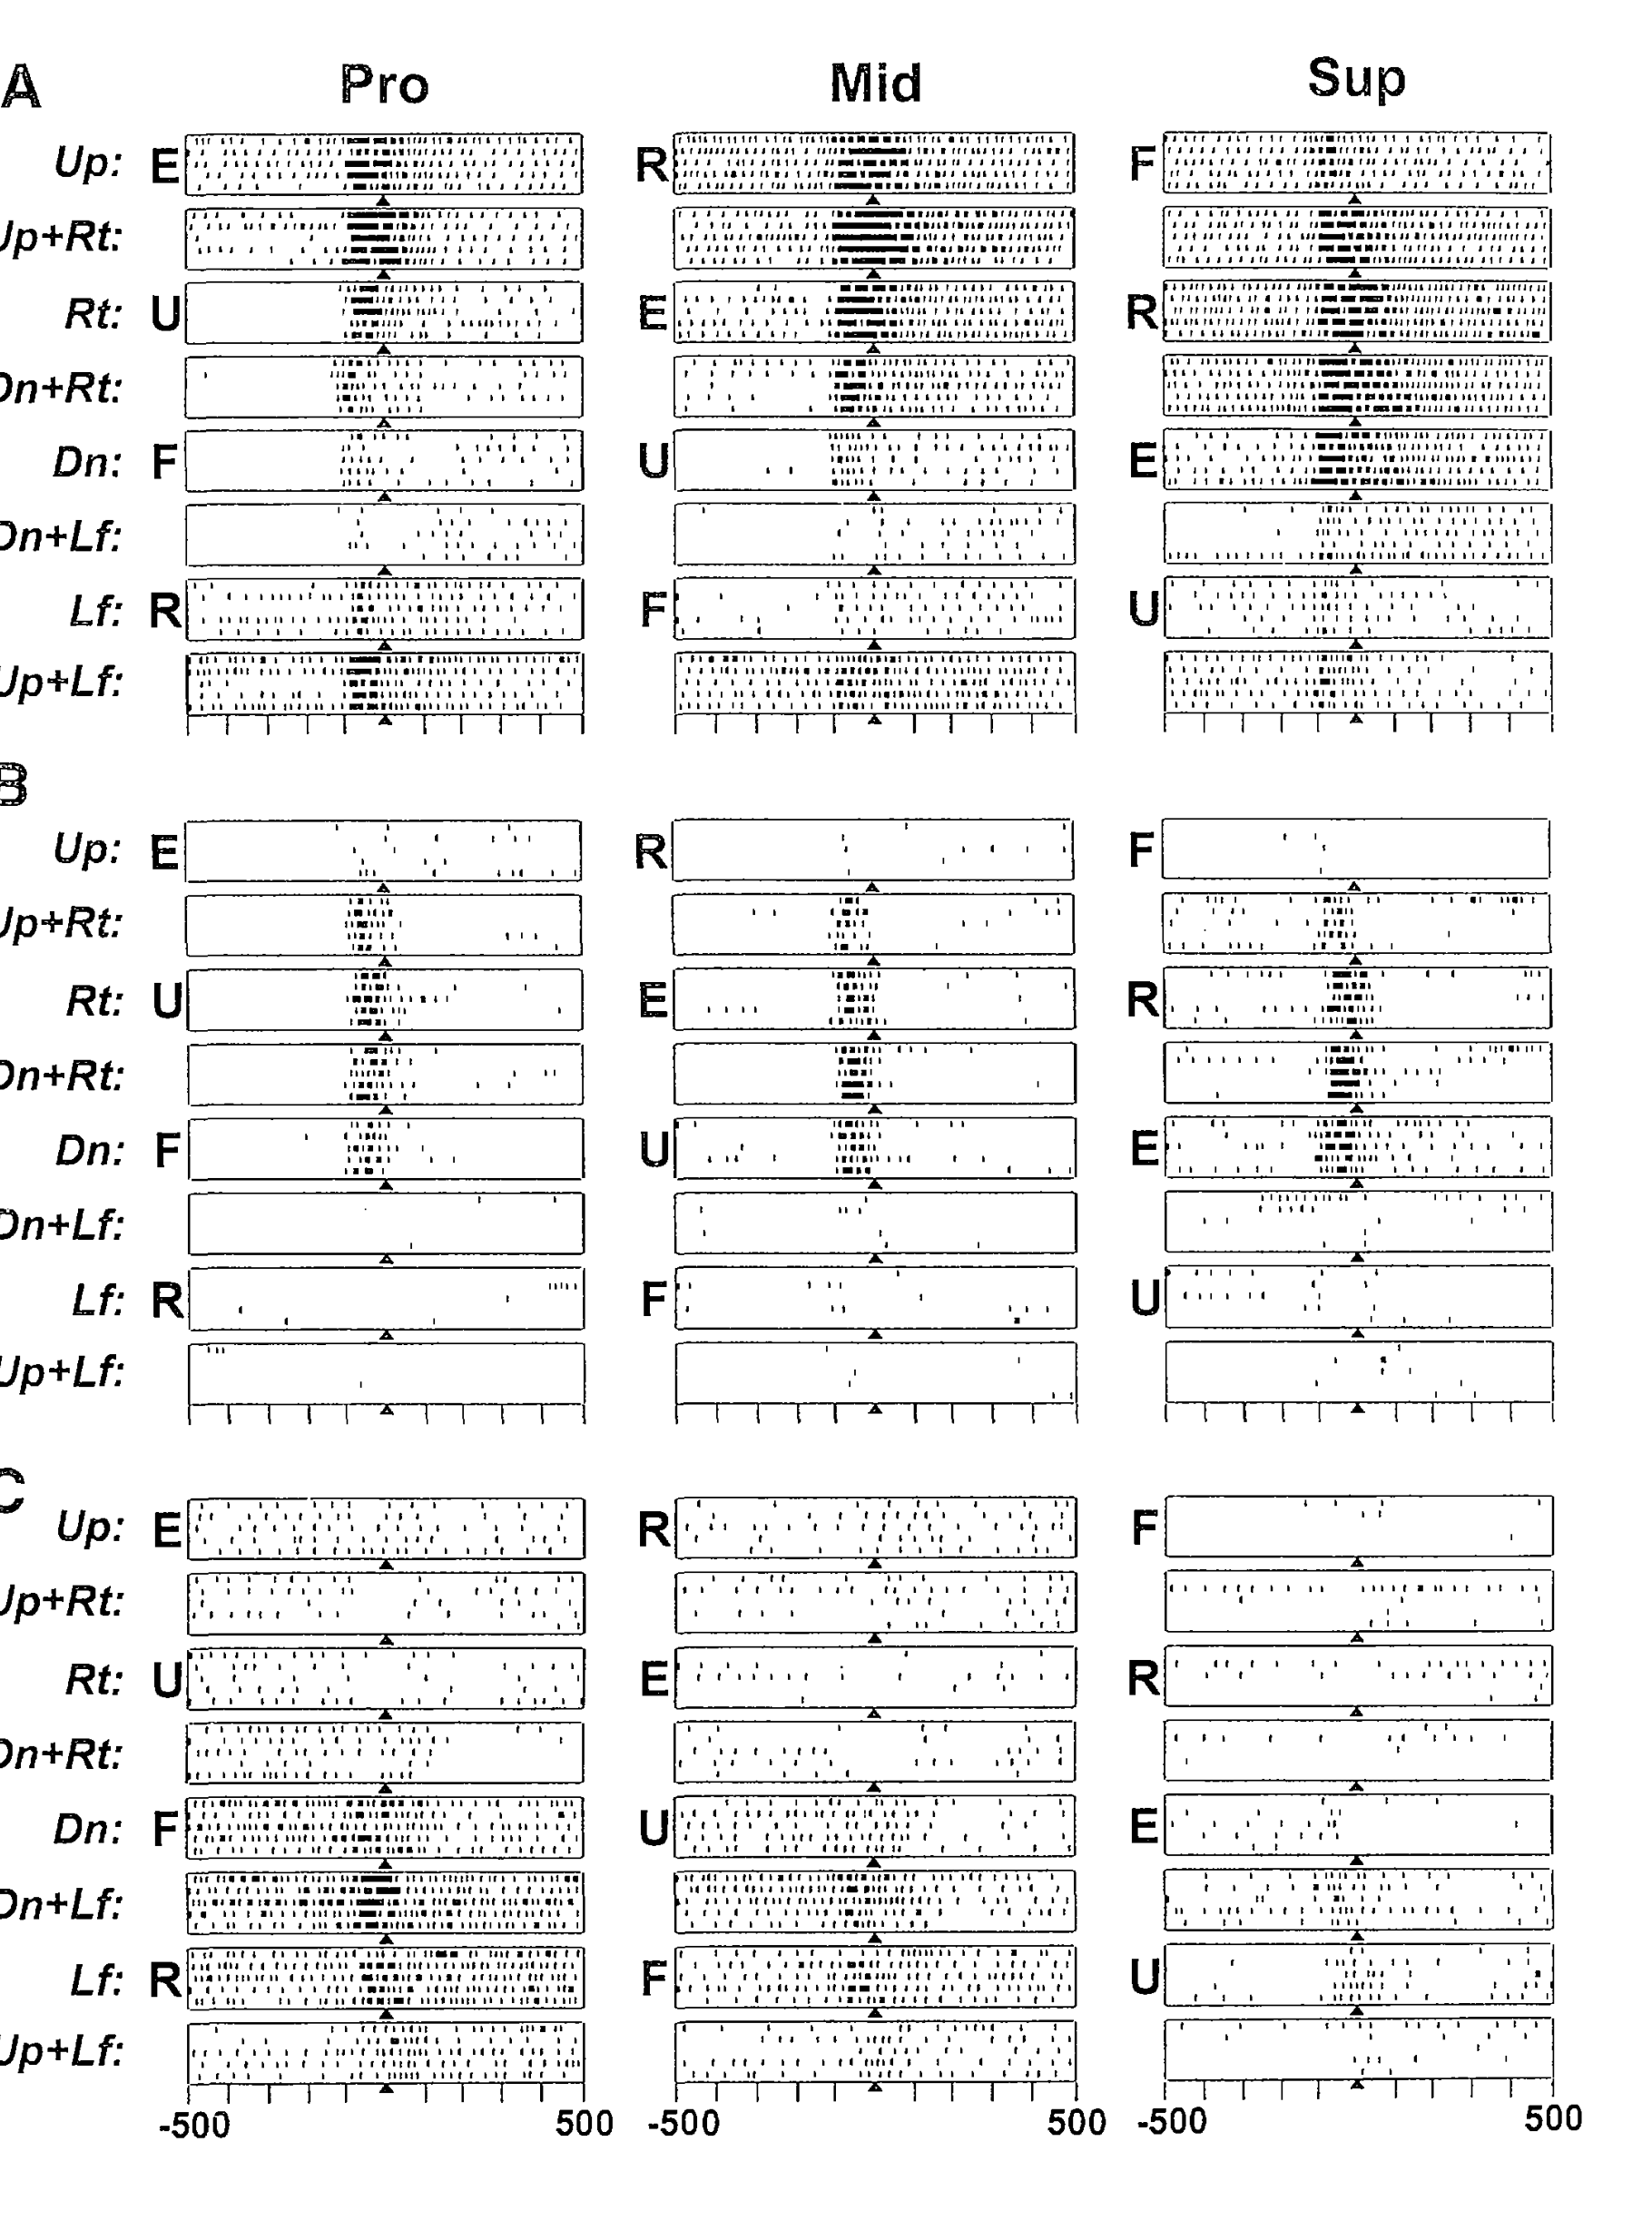
图2 · 三个单元的栅格。 每组内列为姿态、行为外在运动方向。A的方向偏好随姿态变化,B较稳定,C方向较稳定但活动幅度变化。记录位点刺激能引出肌肉收缩,不等于已确定该记录单元直接支配那块肌肉。
 原文 Fig. 3 · PDF 第 3 页
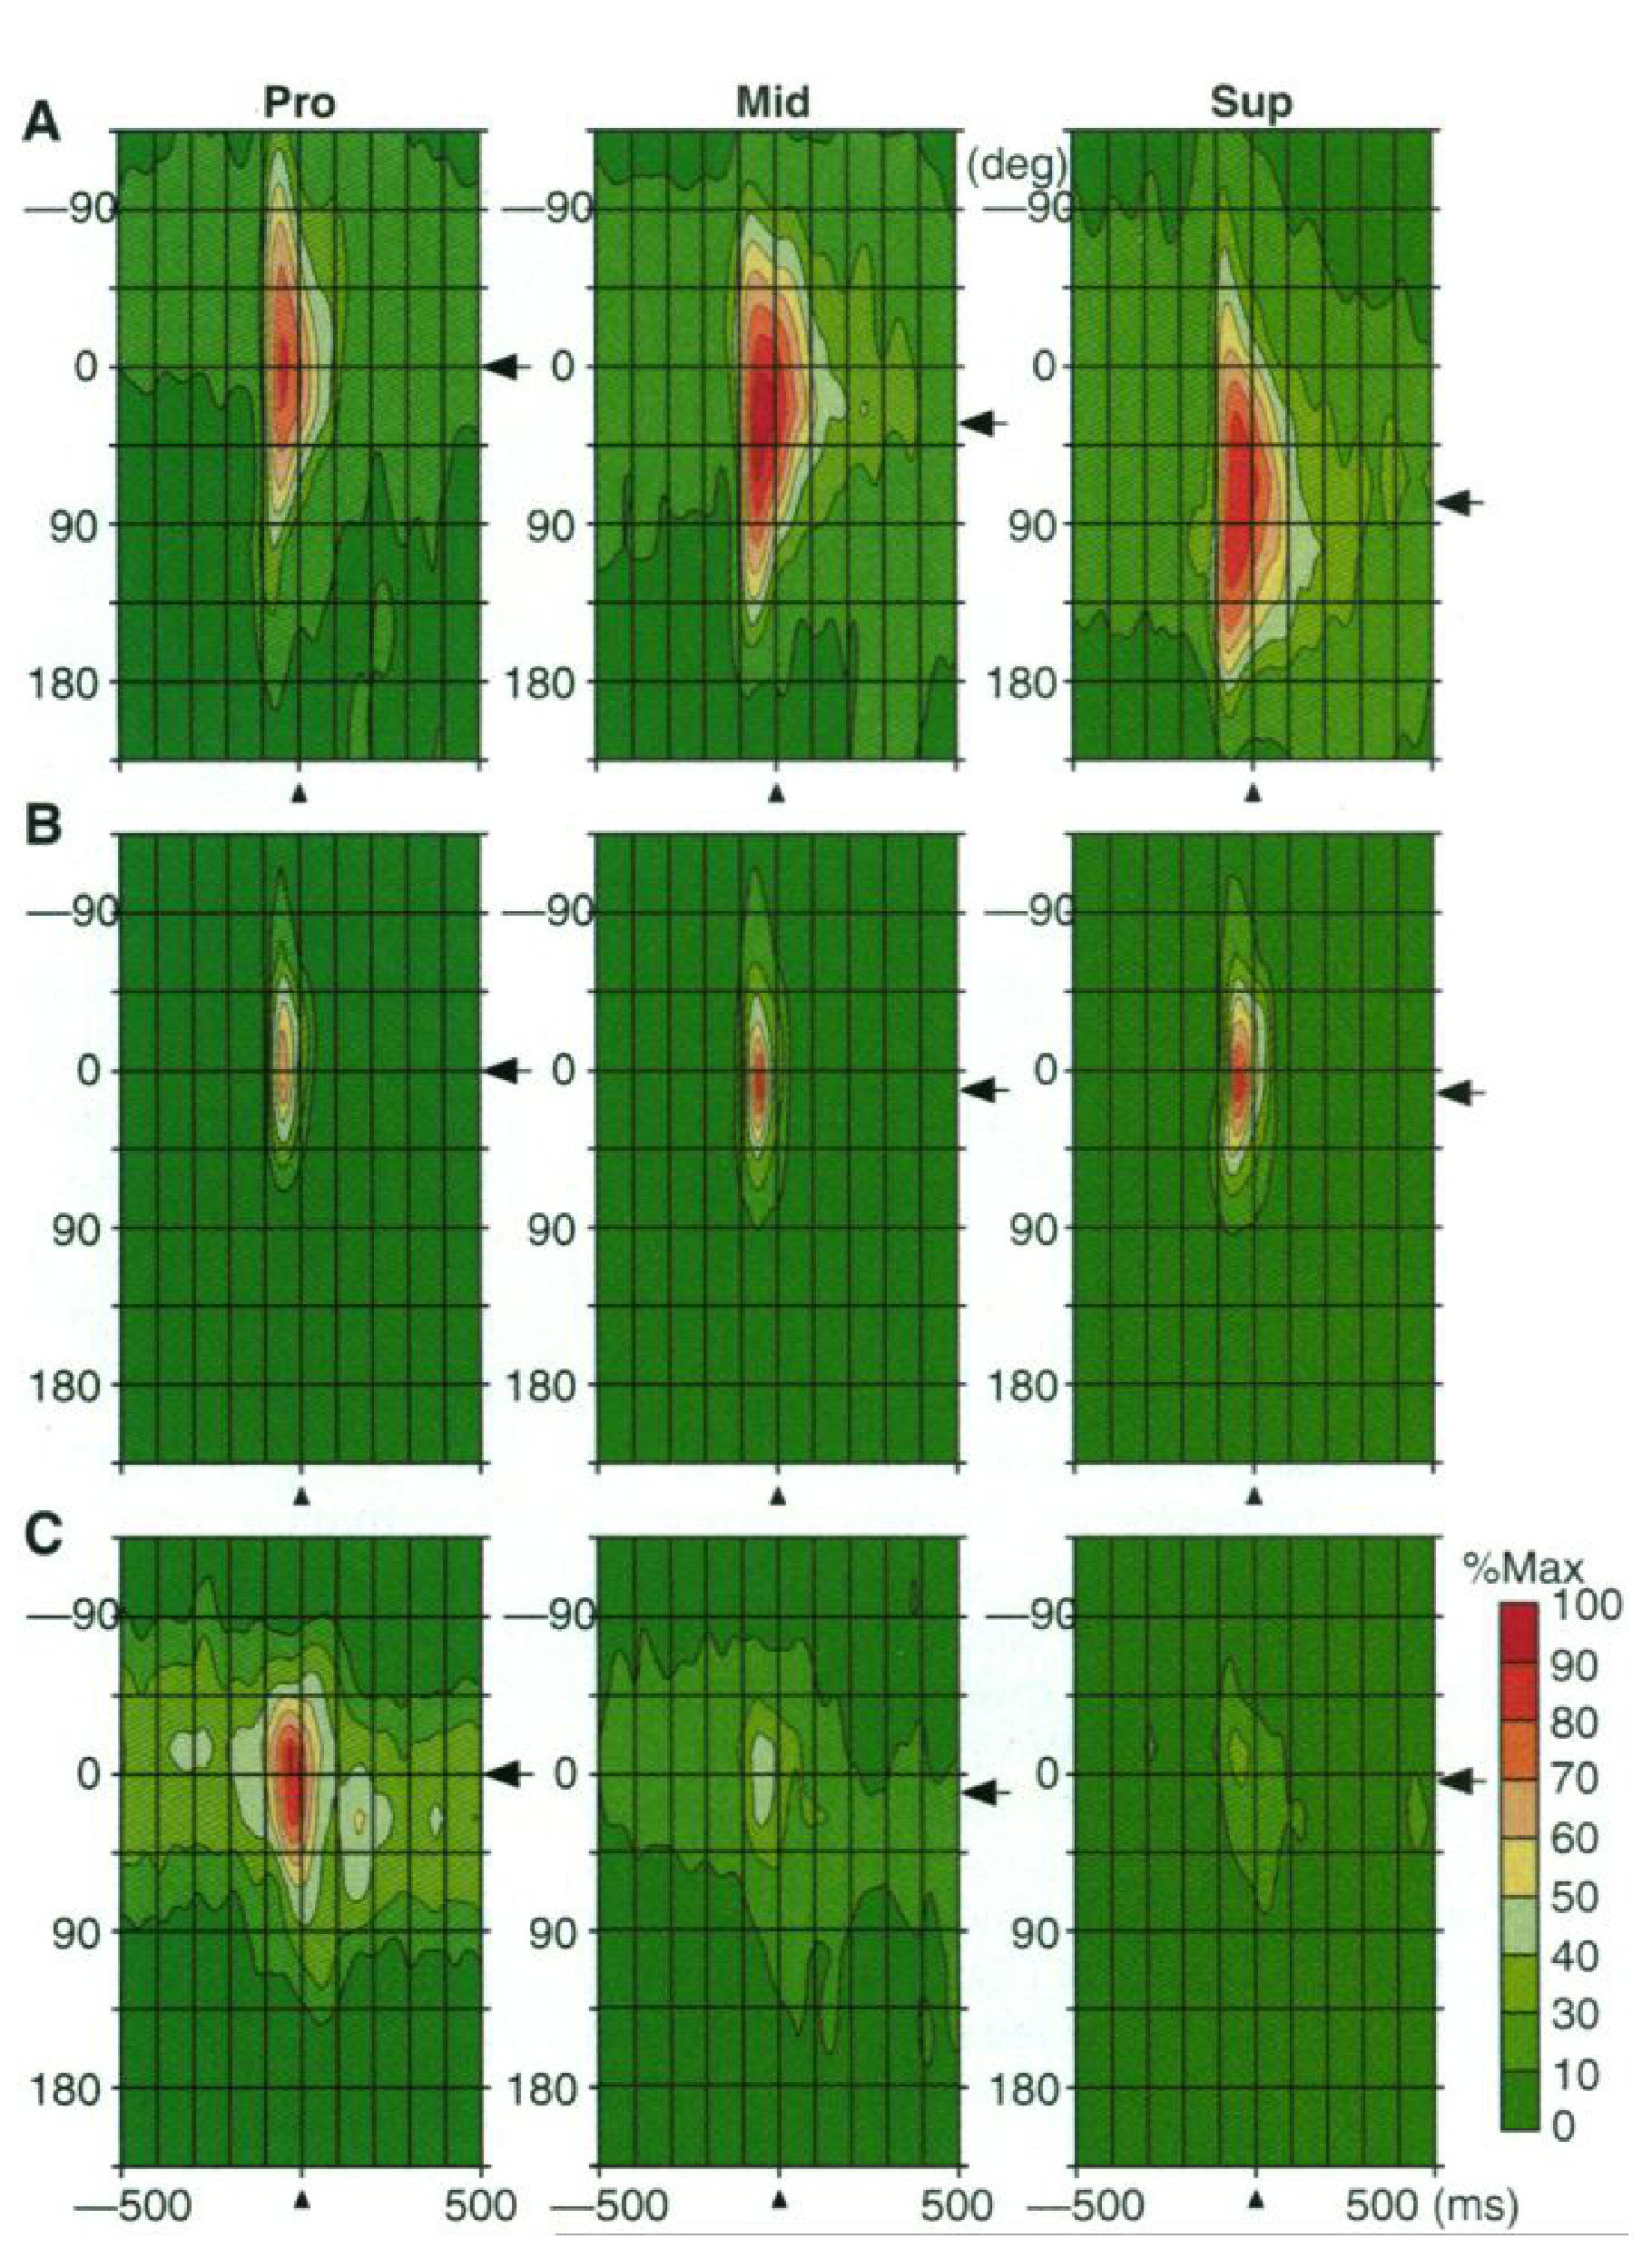
图3 · 相同三个单元的方向—时间响应。 使用50 ms窗口、25 ms步长并按每单元三姿态的共同最大值归一化。A主要表现方向移位,C突出幅度调制。连续颜色图便于比较,但不能代替偏好方向和置信区间的统计估计。
 原文 Fig. 4 · PDF 第 3 页
图4 · 偏好方向移位与幅度调制。 A为用于有序移位比较的神经元,B为7块肌肉的23次记录;灰色标出活动变化超过30%的记录。0°、71.1°和180°参照线分别对应理想外在坐标、肌肉平均移位和理想关节坐标。图中样本经过筛选,不能单凭两簇外观确认天然细胞类别。
讨论与解读边界
结果显示,M1手区的活动不能全部归结为单一肌肉坐标。与此同时,本文未分离视觉目标位置、光标方向和手在空间中的动作方向;“外在样”不能进一步确定为其中唯一一种变量。作者用其他研究的靶依赖单元比例作比较,但跨研究比例差异无法替代本任务中的直接解耦。
单动物、长期训练和只分析三姿态均调谐单元限制了比例的外推。分类阈值与有限方向采样也影响标签,图4的分布既不能免除统计检验,也不宜凭视觉直接宣布必然是连续单峰或天然分成若干生物类型。
思考问题
- 在保持姿态操纵的同时,分别改变目标位置、光标映射与实际腕运动,外在样单元最稳定地跟随哪个变量?
- 把偏好方向移位和姿态引起的幅度变化作为连续指标,并在更多动物及新任务中复核,两类响应及其比例有多稳定?