F04 · Reorganization between preparatory and movement population responses in motor cortex
Gamaleldin F. Elsayed, Antonio H. Lara, Matthew T. Kaufman, Mark M. Churchland & John P. Cunningham (2016) Nature Communications, 7, 13239. doi:10.1038/ncomms13239
准备期与运动期的主要条件相关活动占据接近正交的子空间,但两阶段的条件状态仍可通过简单映射联系。几何分离并不意味着两套独立解剖电路或功能互不影响。
核对依据:Zotero 条目 · 本地全文。本轮核对原文方法、关键结果、解释边界及所引主图;更新于2026-09-20。图注页码采用本地PDF文件页序,版本与未解决问题见正文及审查记录。
背景
延迟伸手任务将运动准备与执行划分为两个时序相邻的阶段,但神经活动并不必然沿着同一组维度平滑增强。同一个运动皮层神经元可以在准备期偏好某个目标,而在运动执行期改变方向偏好或时程动态;若仅逐个细胞孤立比对,这类变化常被视作调谐不稳定,从而掩盖群体层面的组织结构。若要理解准备状态如何塑造动作,两阶段之间又必须保留功能关联:假若彼此毫无联系,准备活动便无法服务于后续运动。因此,核心问题在于厘清这种活动差异究竟发生在何种几何层面,以及该差异是否依然允许目标相关状态由准备期延续至执行期。
状态空间分析为此提供了几种可辨析的理论方案:准备与运动可能复用重叠的活动维度,也可能分别占据互不重叠的方向;即使两组主导方向接近正交,不同目标在两个子空间中的几何构型仍可保持稳定对应。几何层面的正交分离并不等同于功能层面的相互独立。先前关于输出零空间的分析表明,准备期活动可分布在不影响下游读出的维度上,但并未直接回答准备期与运动期的主导协变结构彼此如何相对排列。弥补这一缺口,需要同步检验两阶段协变结构的重叠程度,以及准备末态与后续运动状态之间的可预测关系,而非以单细胞调谐的表观变异代替群体检验。
作者分析了猴八方向延迟伸手的神经数据,比对了两阶段的主成分及交叉解释方差,进而提取出受严格正交约束的子空间,并检验跨阶段条件状态的数学映射。这种设计将“主导活动维度的重组”与“阶段间的状态关联”置于同一框架下考量,为准备活动如何过渡至执行提供了超越“线性延续”或“完全离散切换”的细致解释。需要指明的解释边界是:分析主要基于跨试次的条件平均,并扣除了跨条件共同活动,因而无法直接推广至单试次的全部波动。此外,无约束主成分的经验近似正交,与优化算法主动施加的严格正交约束必须区分。跨条件线性映射与前馈模型揭示了潜在的组织可能,但并未直接测定突触传递,不能将统计上的子空间重构误读为物理电路在瞬间完成了重新布线。
研究思路
先比较准备期与运动期的协方差及PCA维度重叠,再提取严格正交的子空间,最后检验准备末态对后续运动状态的线性预测能力。
方法
两只恒河猴完成八方向延迟伸手任务,分别记录了127个与98个任务相关神经元,数据主要来自跨试次、跨单电极记录的条件平均。预处理采用软归一化(soft normalization)并逐时扣除跨条件均值,因此分析主要刻画与条件相关的神经变异,未涵盖所有时变共同分量。
准备期与运动期各截取300 ms分析时间窗。对齐指数(alignment index)用于衡量前十个主成分的交叉解释方差;随机对照基线保留了全任务的协方差特性。随后的子空间优化算法对两组基底施加了严格正交约束,最终提取的两维准备子空间与四维运动子空间捕获了主导方差,而非全部群体变异。
主要结果
两时期的神经元间相关结构发生显著改变,准备期与运动期主成分的重叠程度显著低于随机基线及四类对照模型。这一统计结果支持群体活动存在有组织的几何分离,但不能仅凭“低于随机水平”断定存在主动门控或特定学习机制。
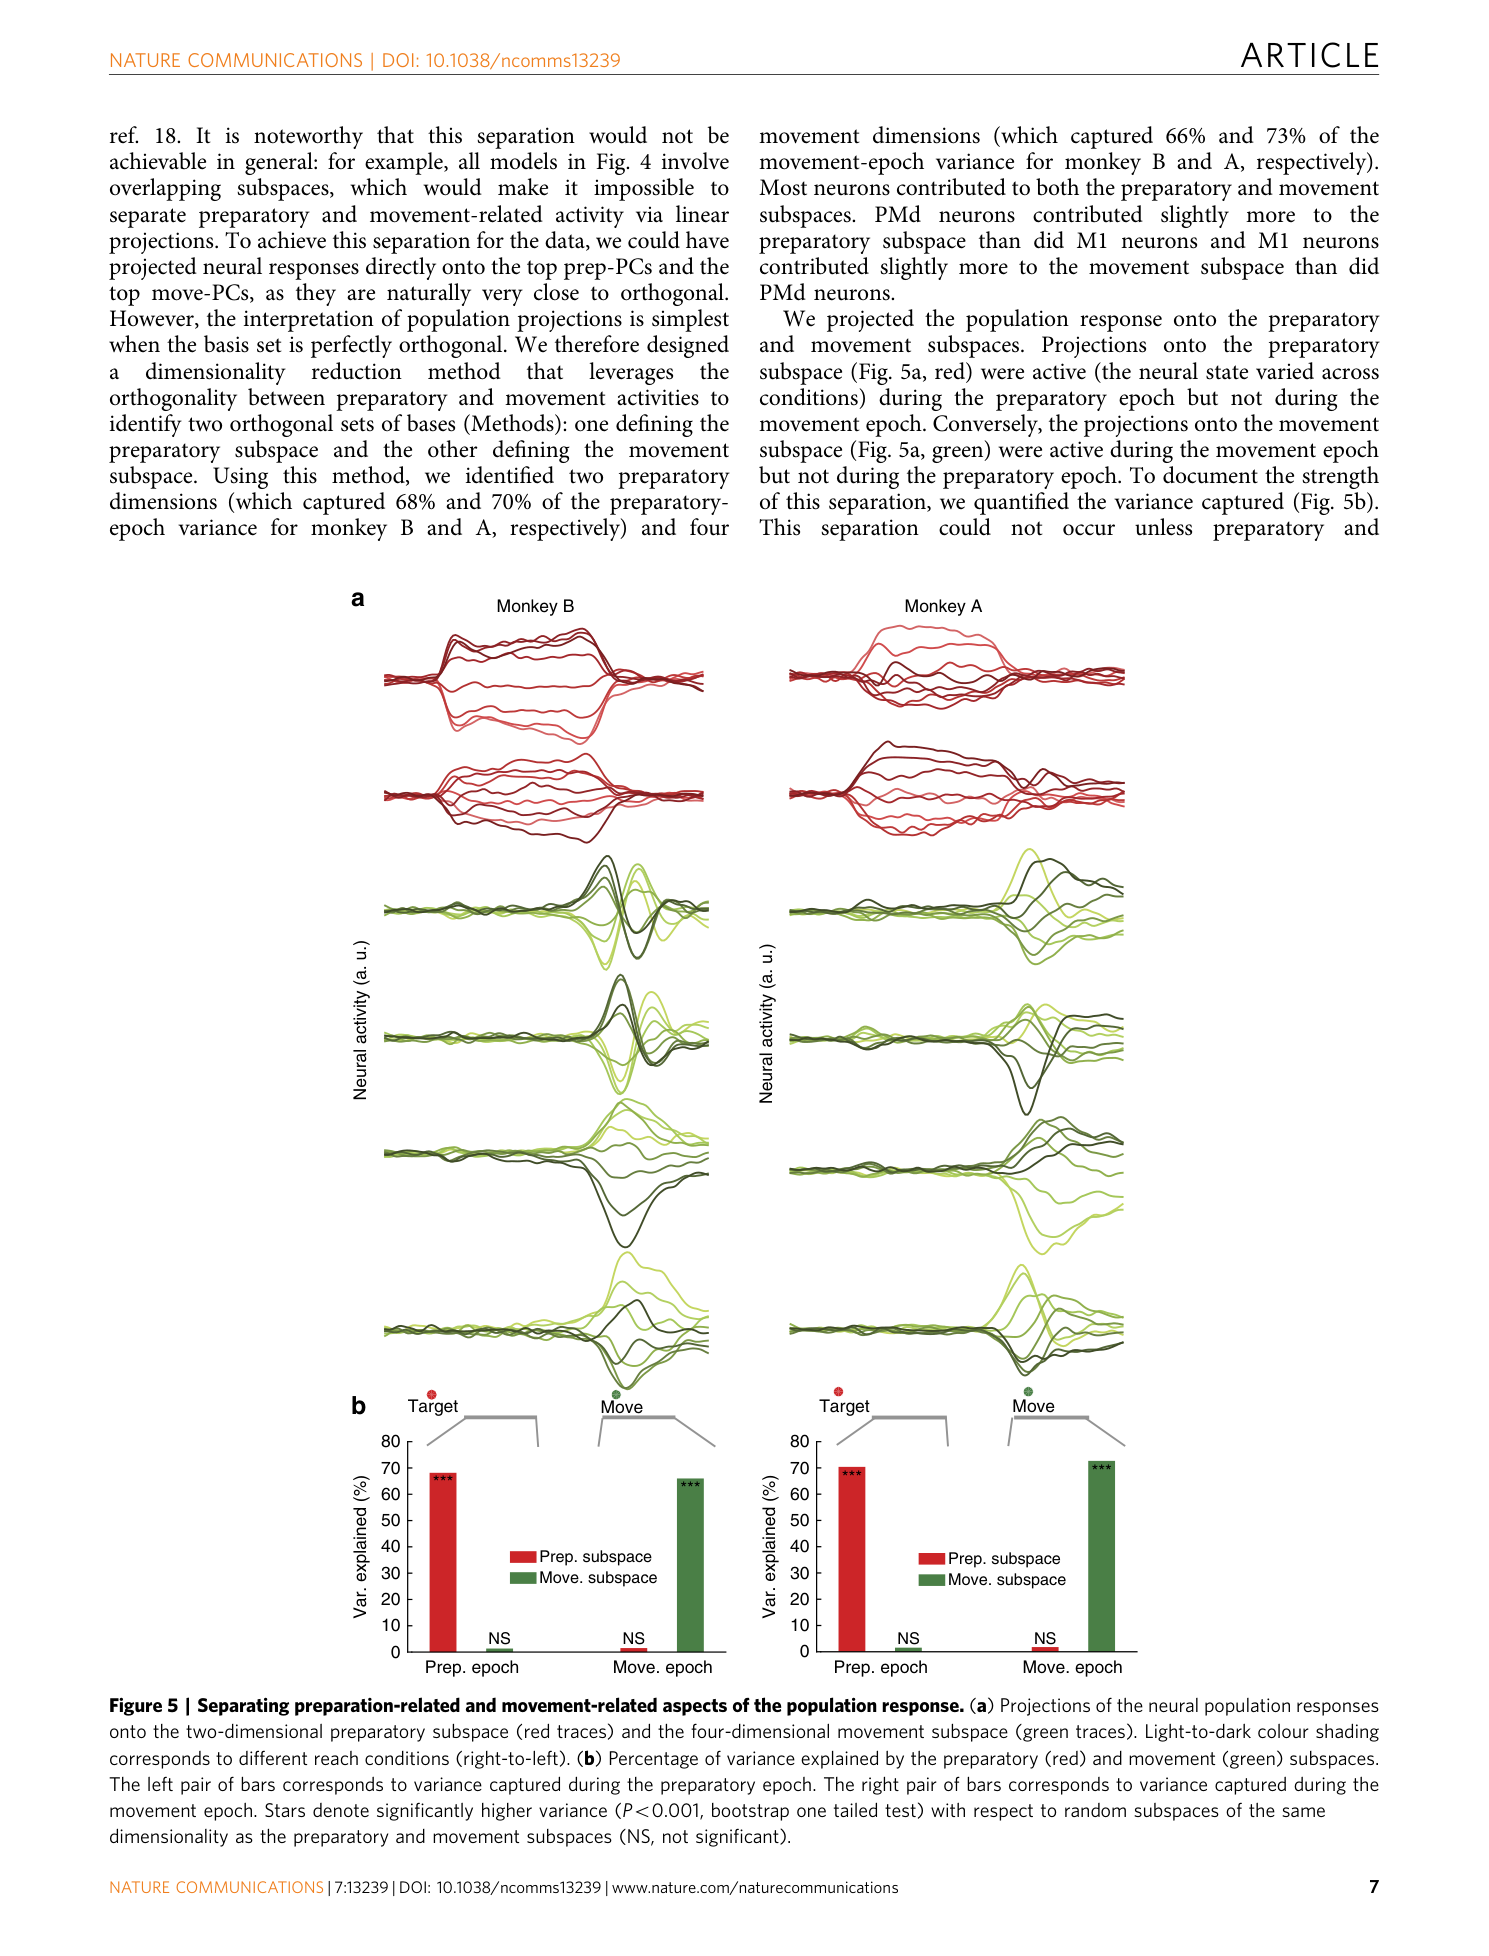
在施加正交约束后,两维准备子空间捕获了约68%(猴1)与70%(猴2)的准备期方差,四维运动子空间捕获了约66%与73%的运动期方差。需强调的是,严格正交是后续算法强加的数学约束,原始PCA提取的基底仅为近似正交。
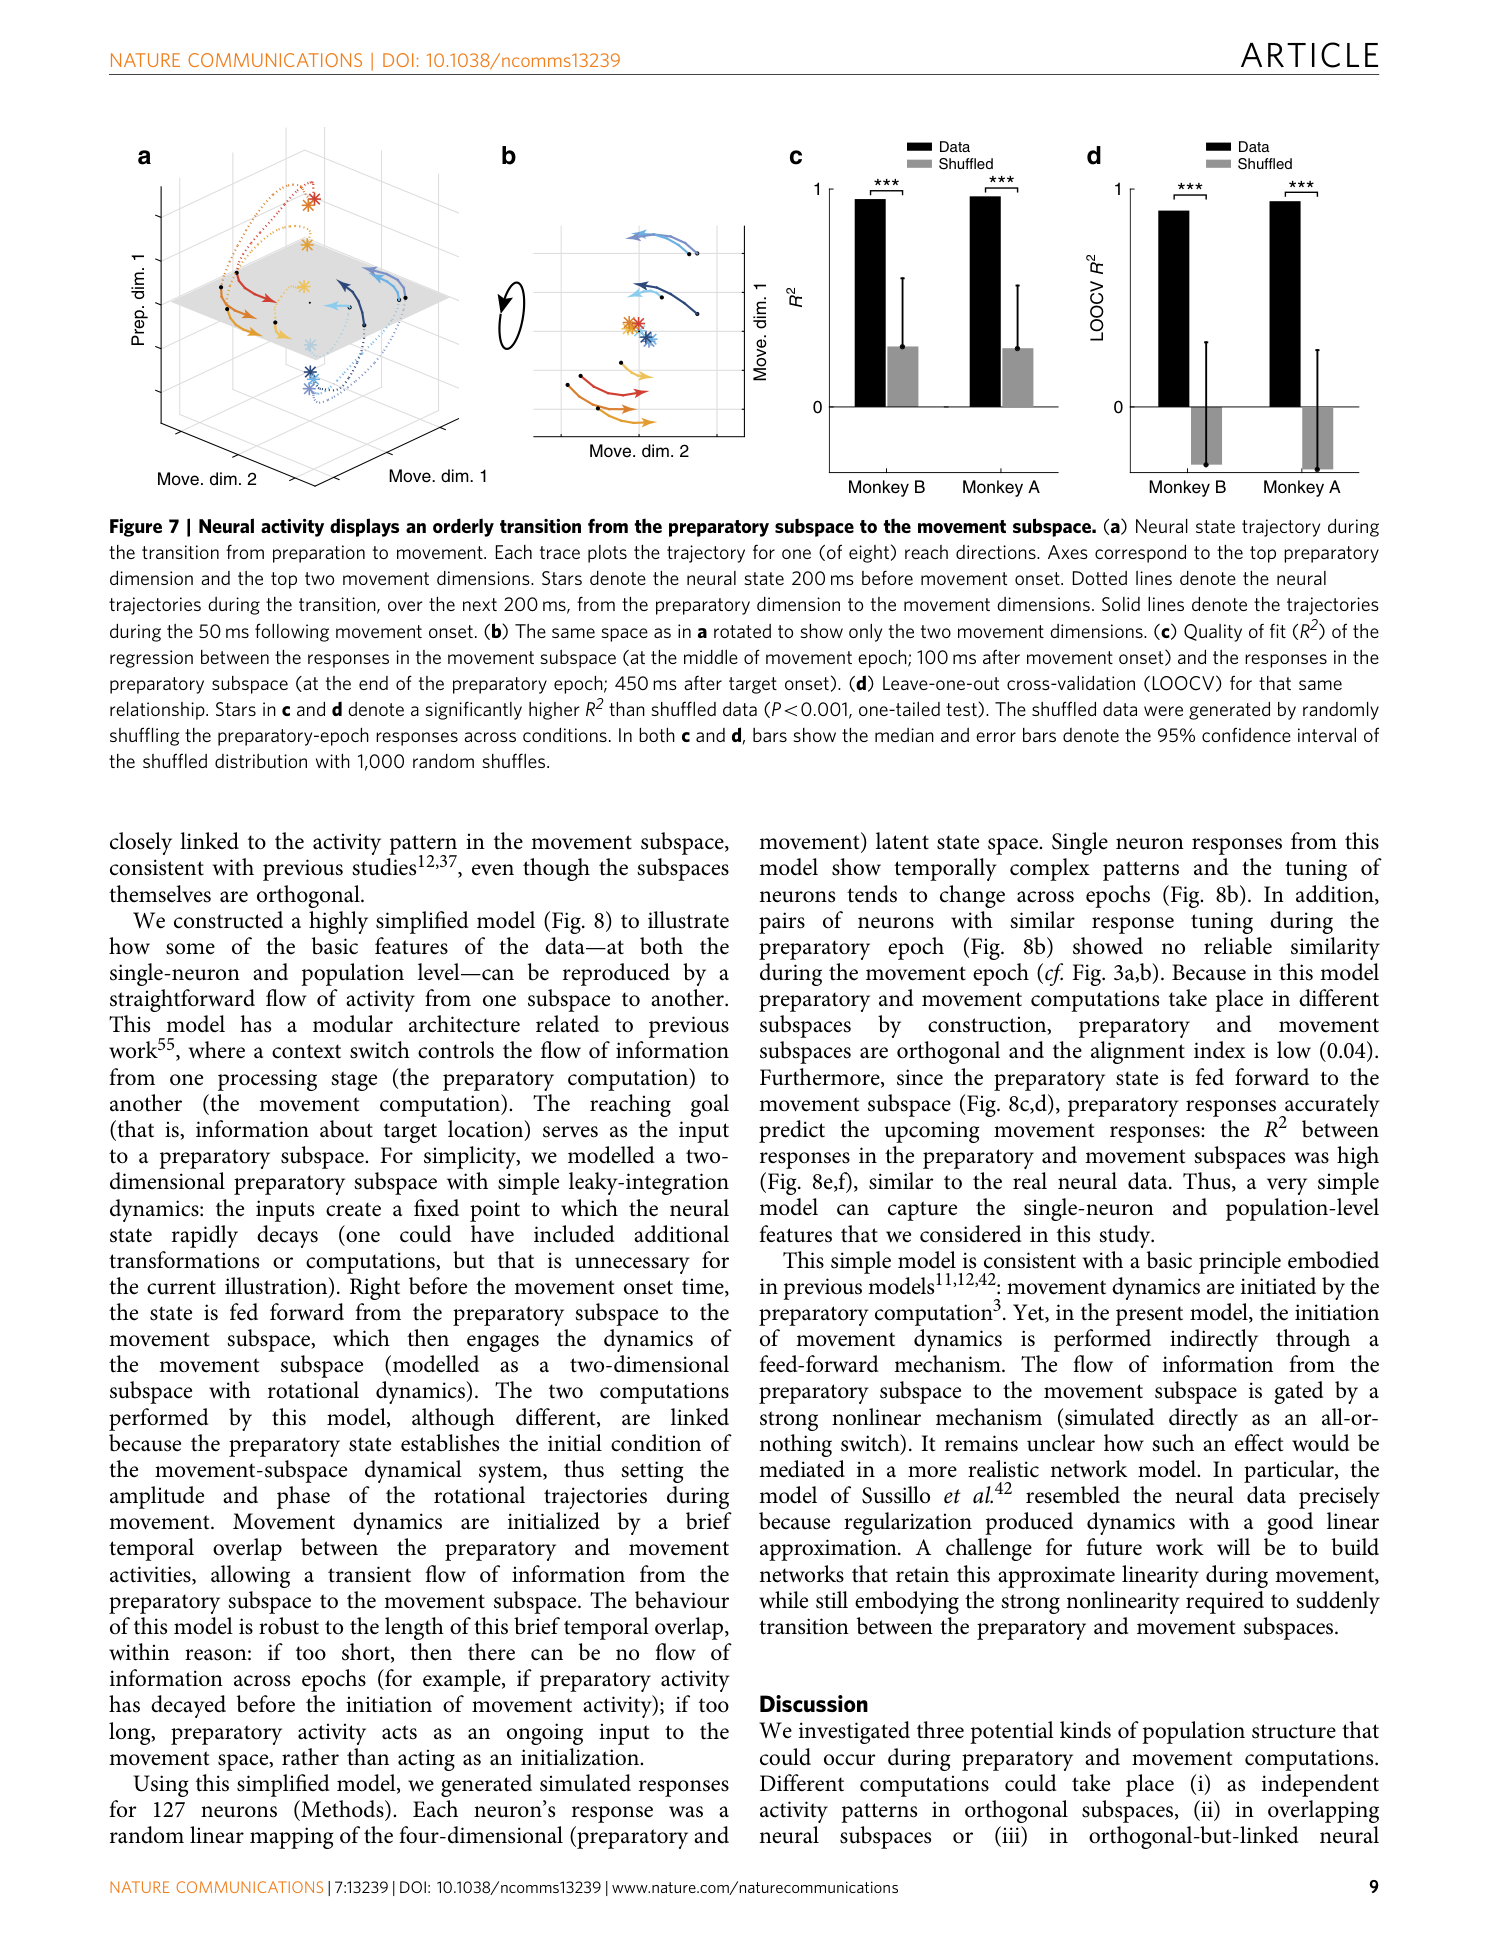
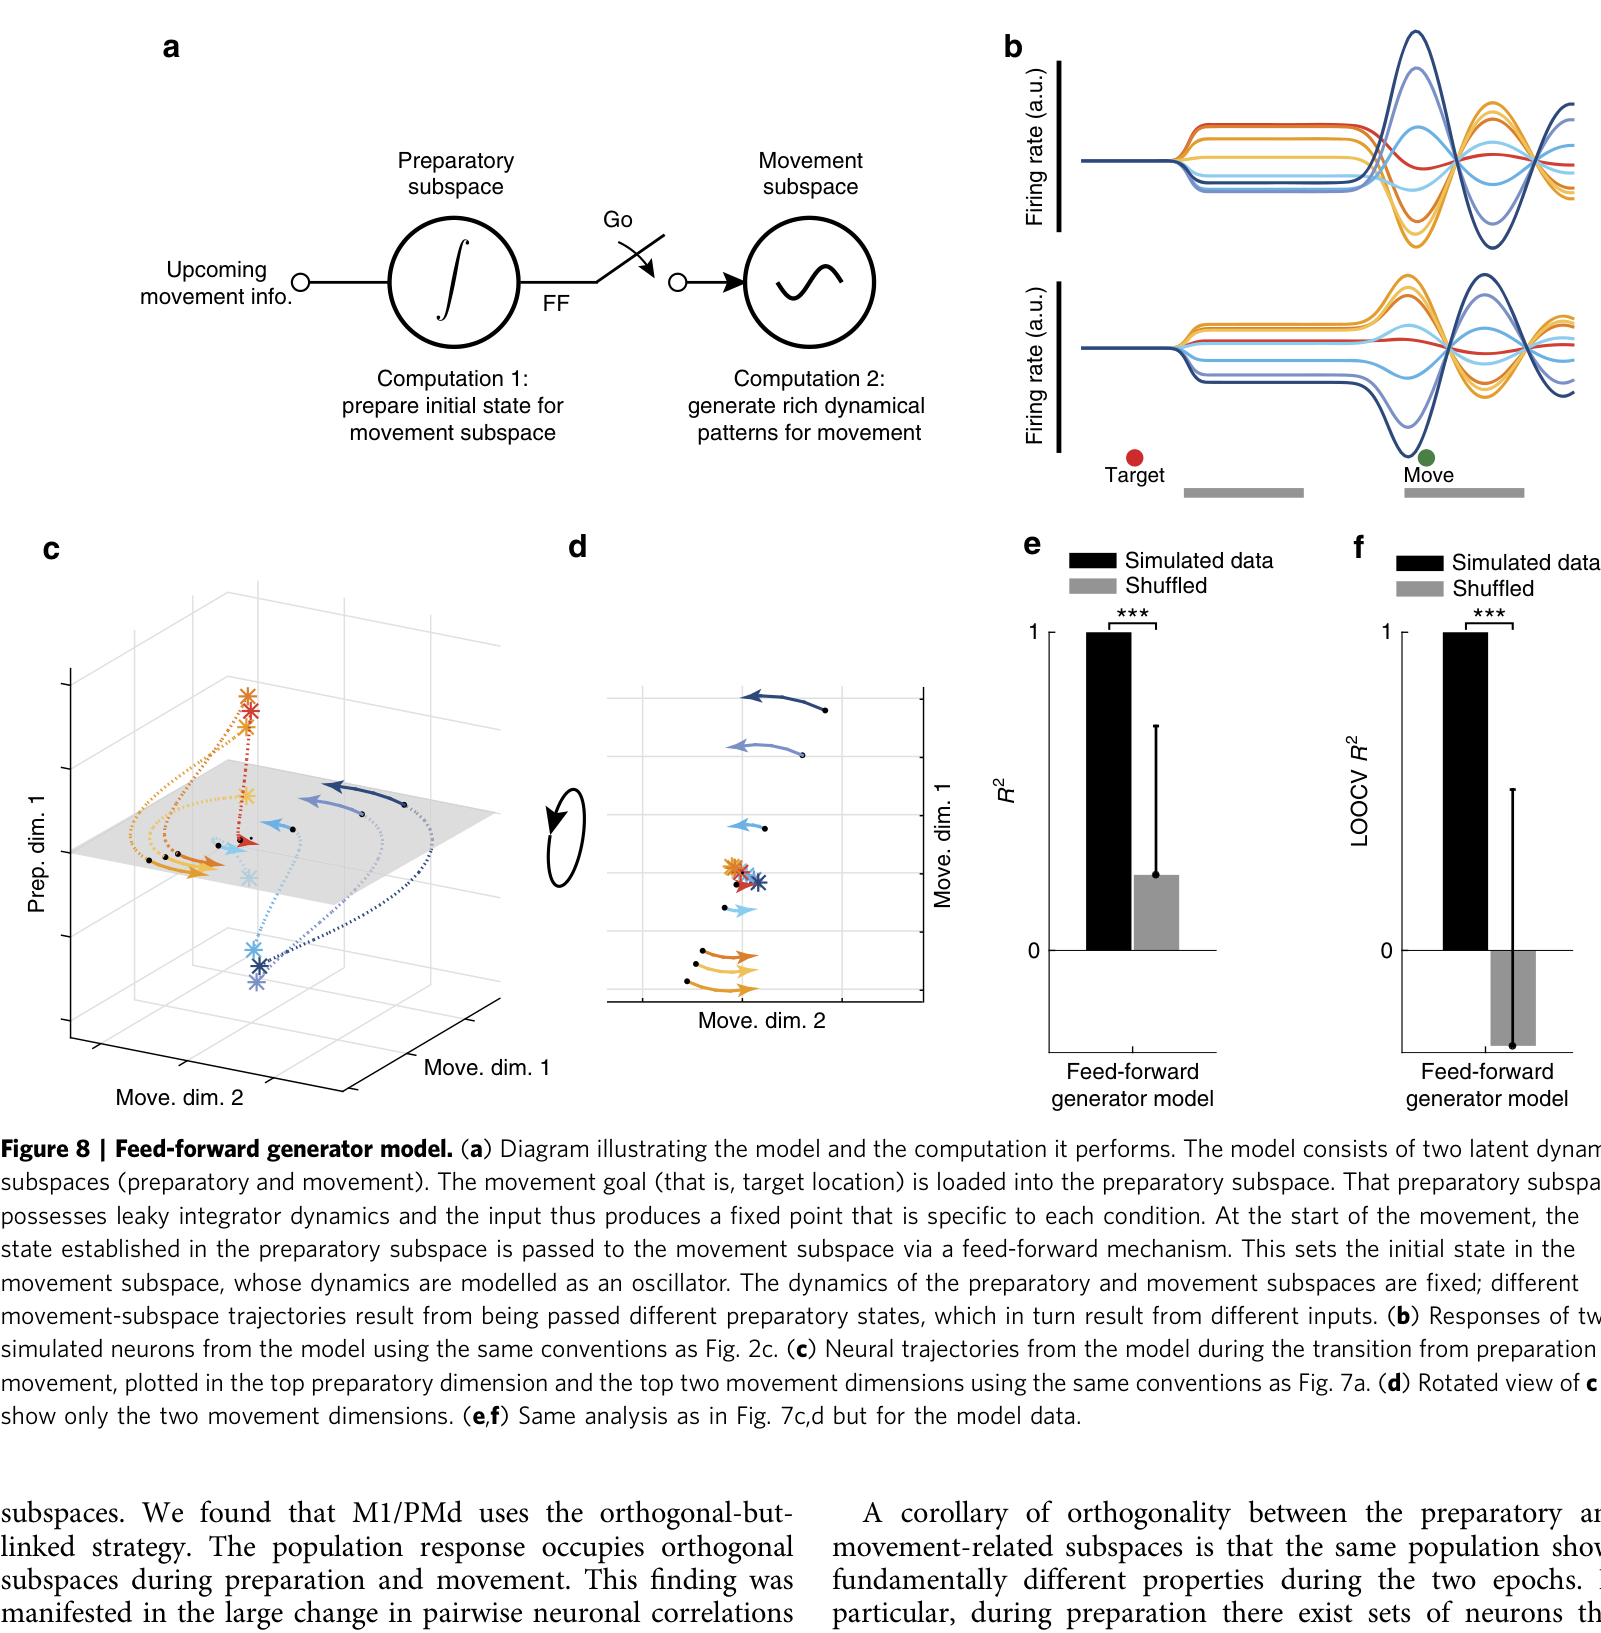
准备末期与运动中段的条件状态可通过线性映射良好衔接,拟合优度R²约为0.95与0.97,留一条件交叉验证亦支持这一关联。该结果反映的是跨条件平均状态的数学联系,而非对单试次完整轨迹的精确预测,亦未直接证实突触层面的前馈线性交接;文中的前馈网络仅作为一种可行的实现范例。
逐图解读
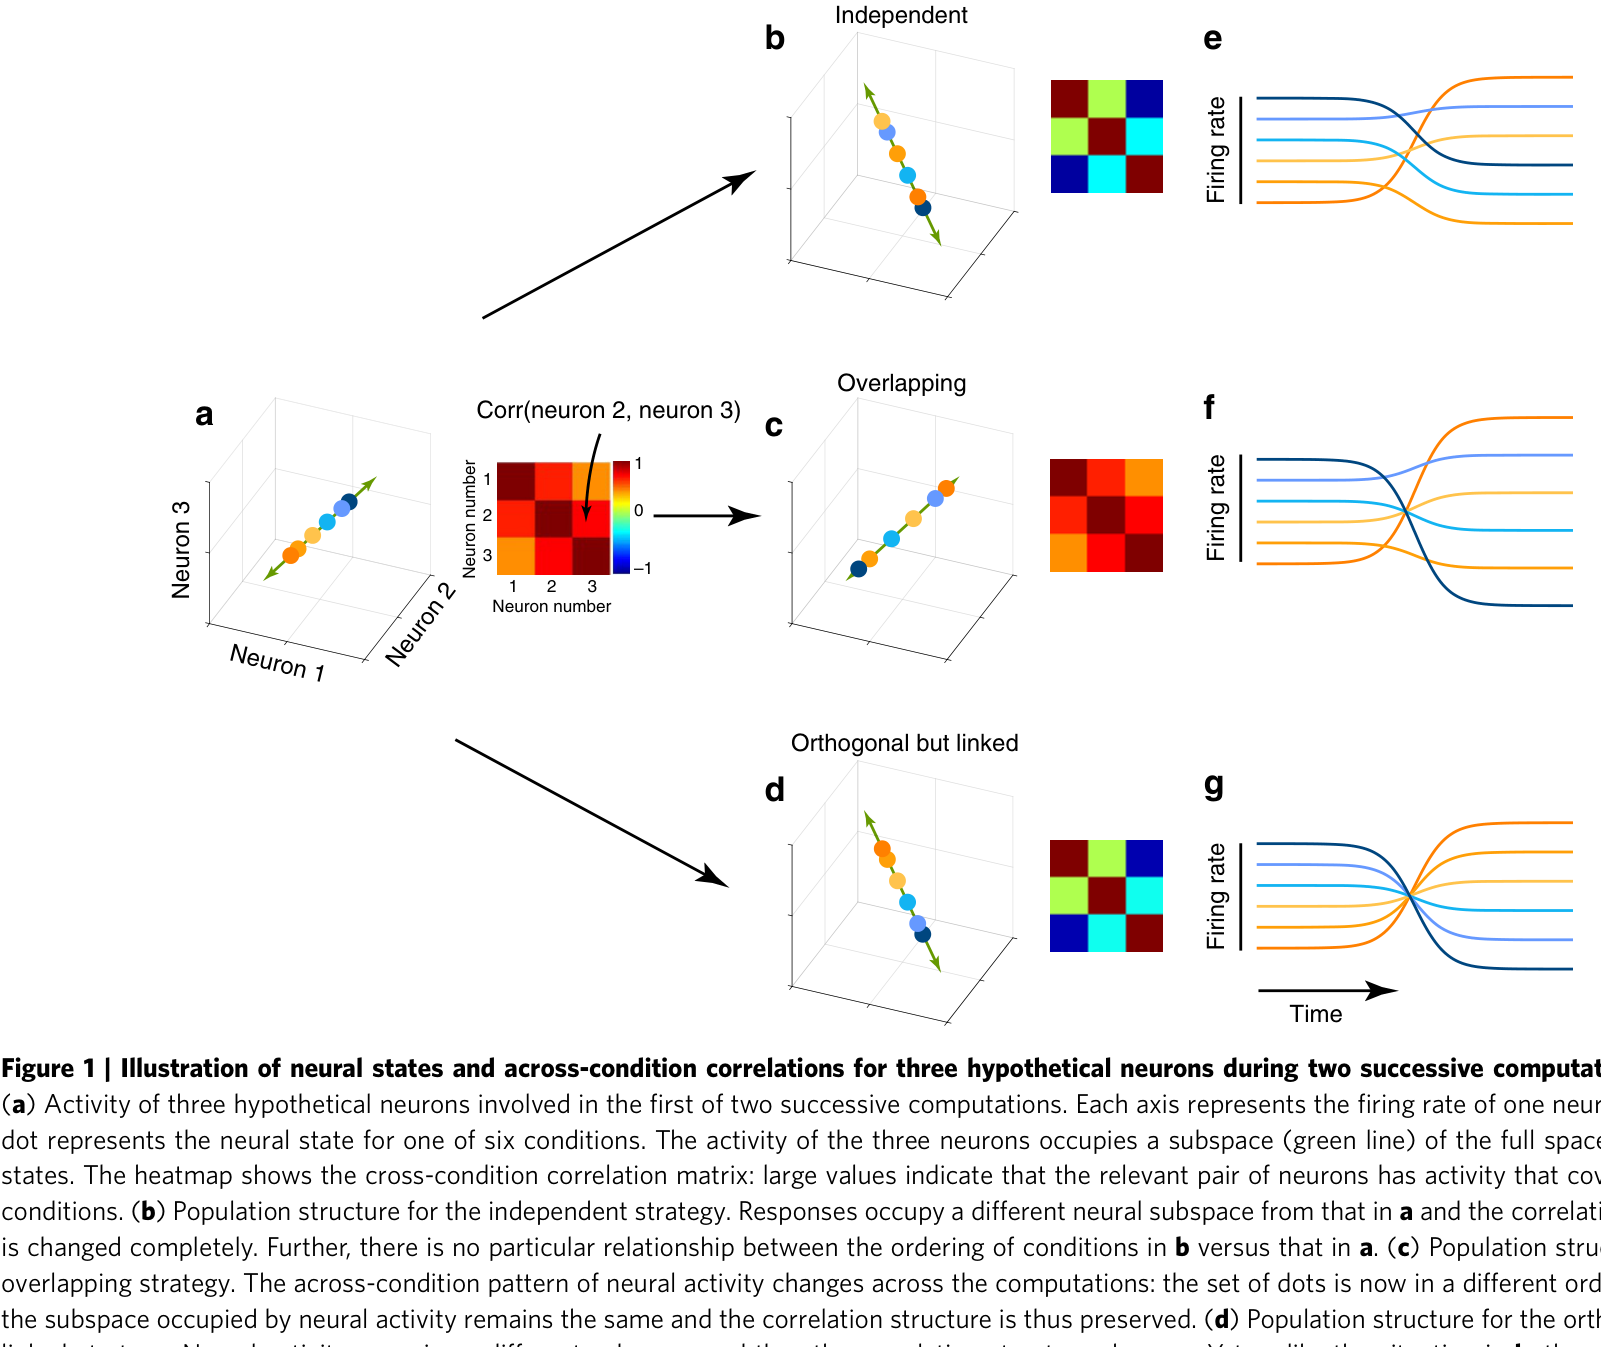 原文 Fig. 1 · PDF 第 3 页 · 原文图像 · 查看来源
图1 · 三种群体组织示意。 独立、重叠与正交但关联是理论比较,单细胞曲线本身不足以区分。
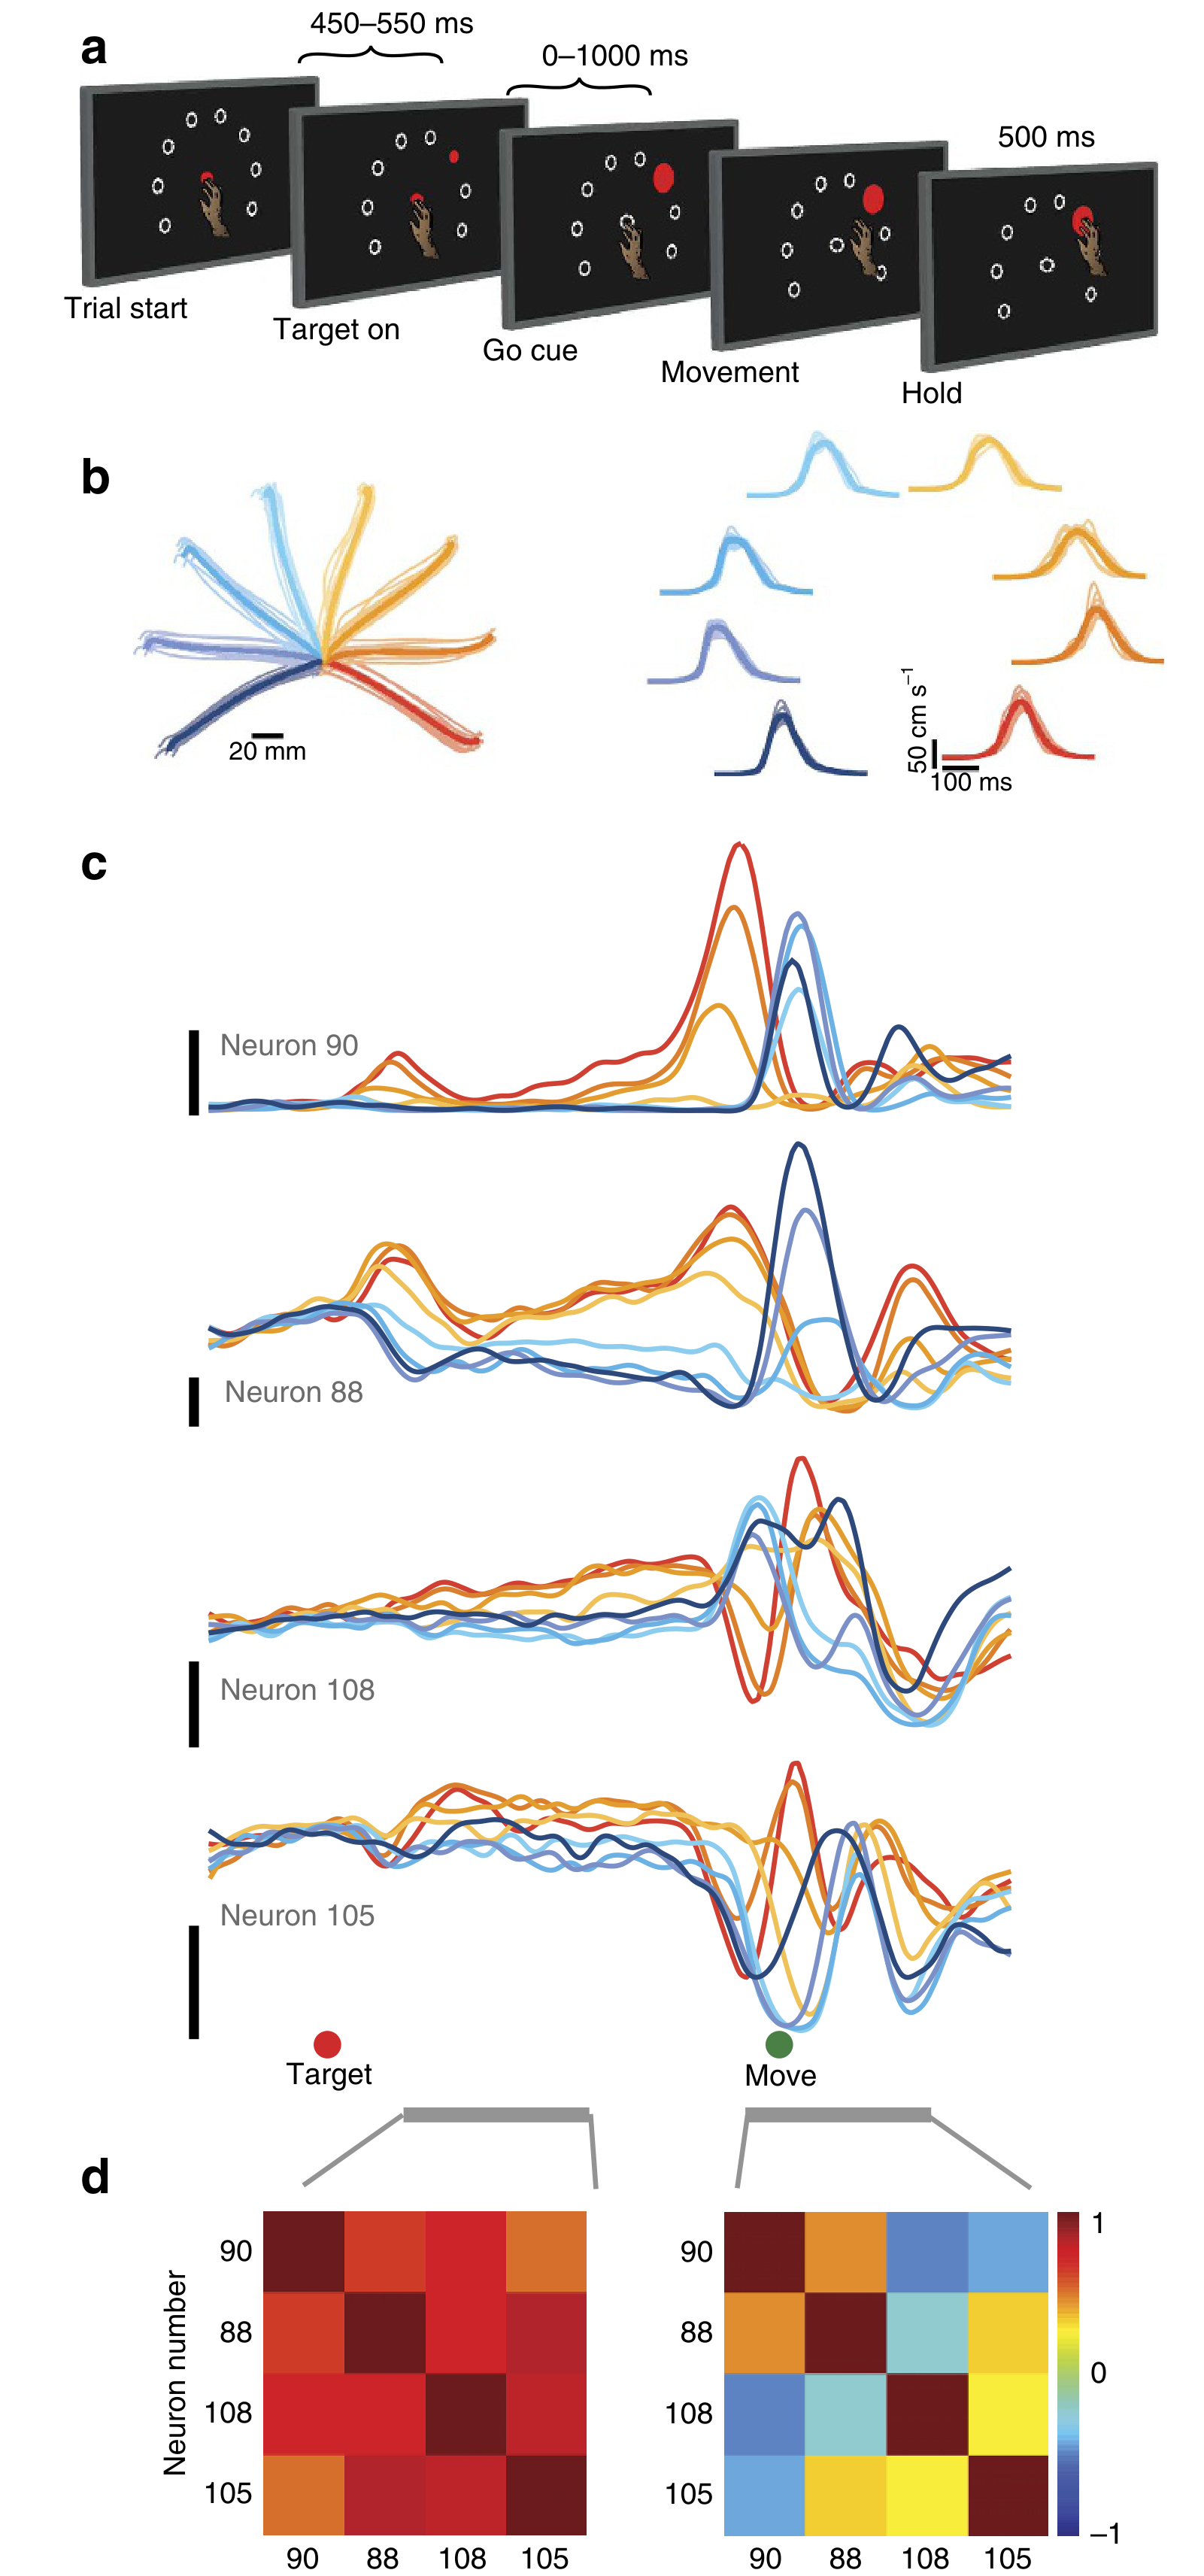 原文 Fig. 2 · PDF 第 4 页 · 原文图像 · 查看来源
图2 · 任务和示例记录。 同一细胞可在两个阶段都有活动,不支持按阶段简单分成两类细胞。
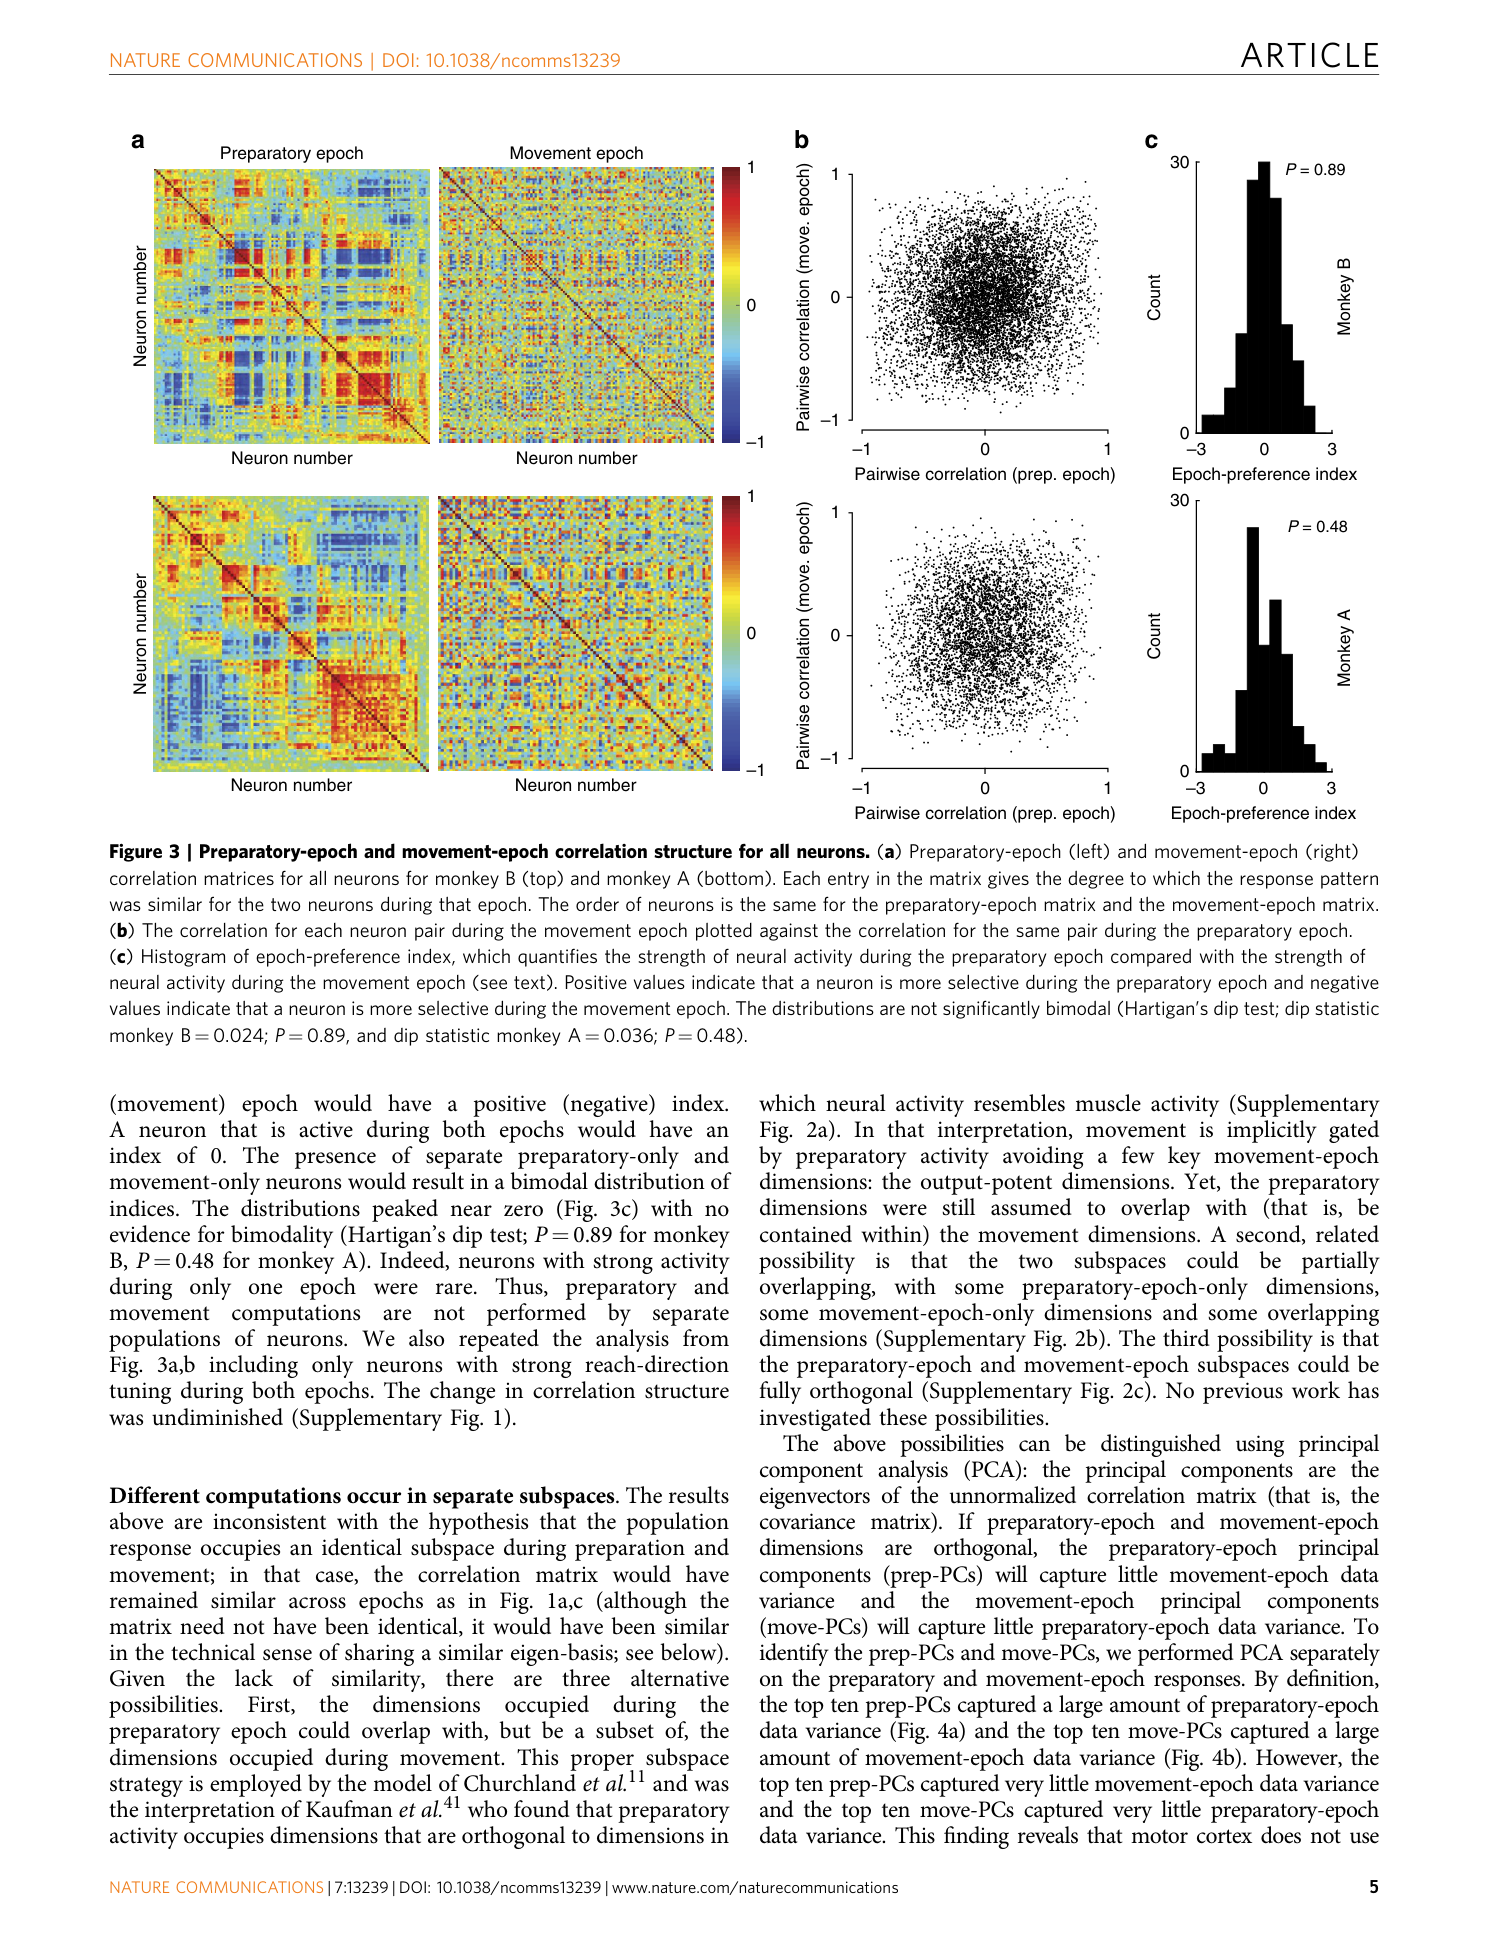 原文 Fig. 3 · PDF 第 5 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图3 · 相关结构重组。 条件平均响应的相关矩阵与时期偏好分布,不能解释为突触连接矩阵。
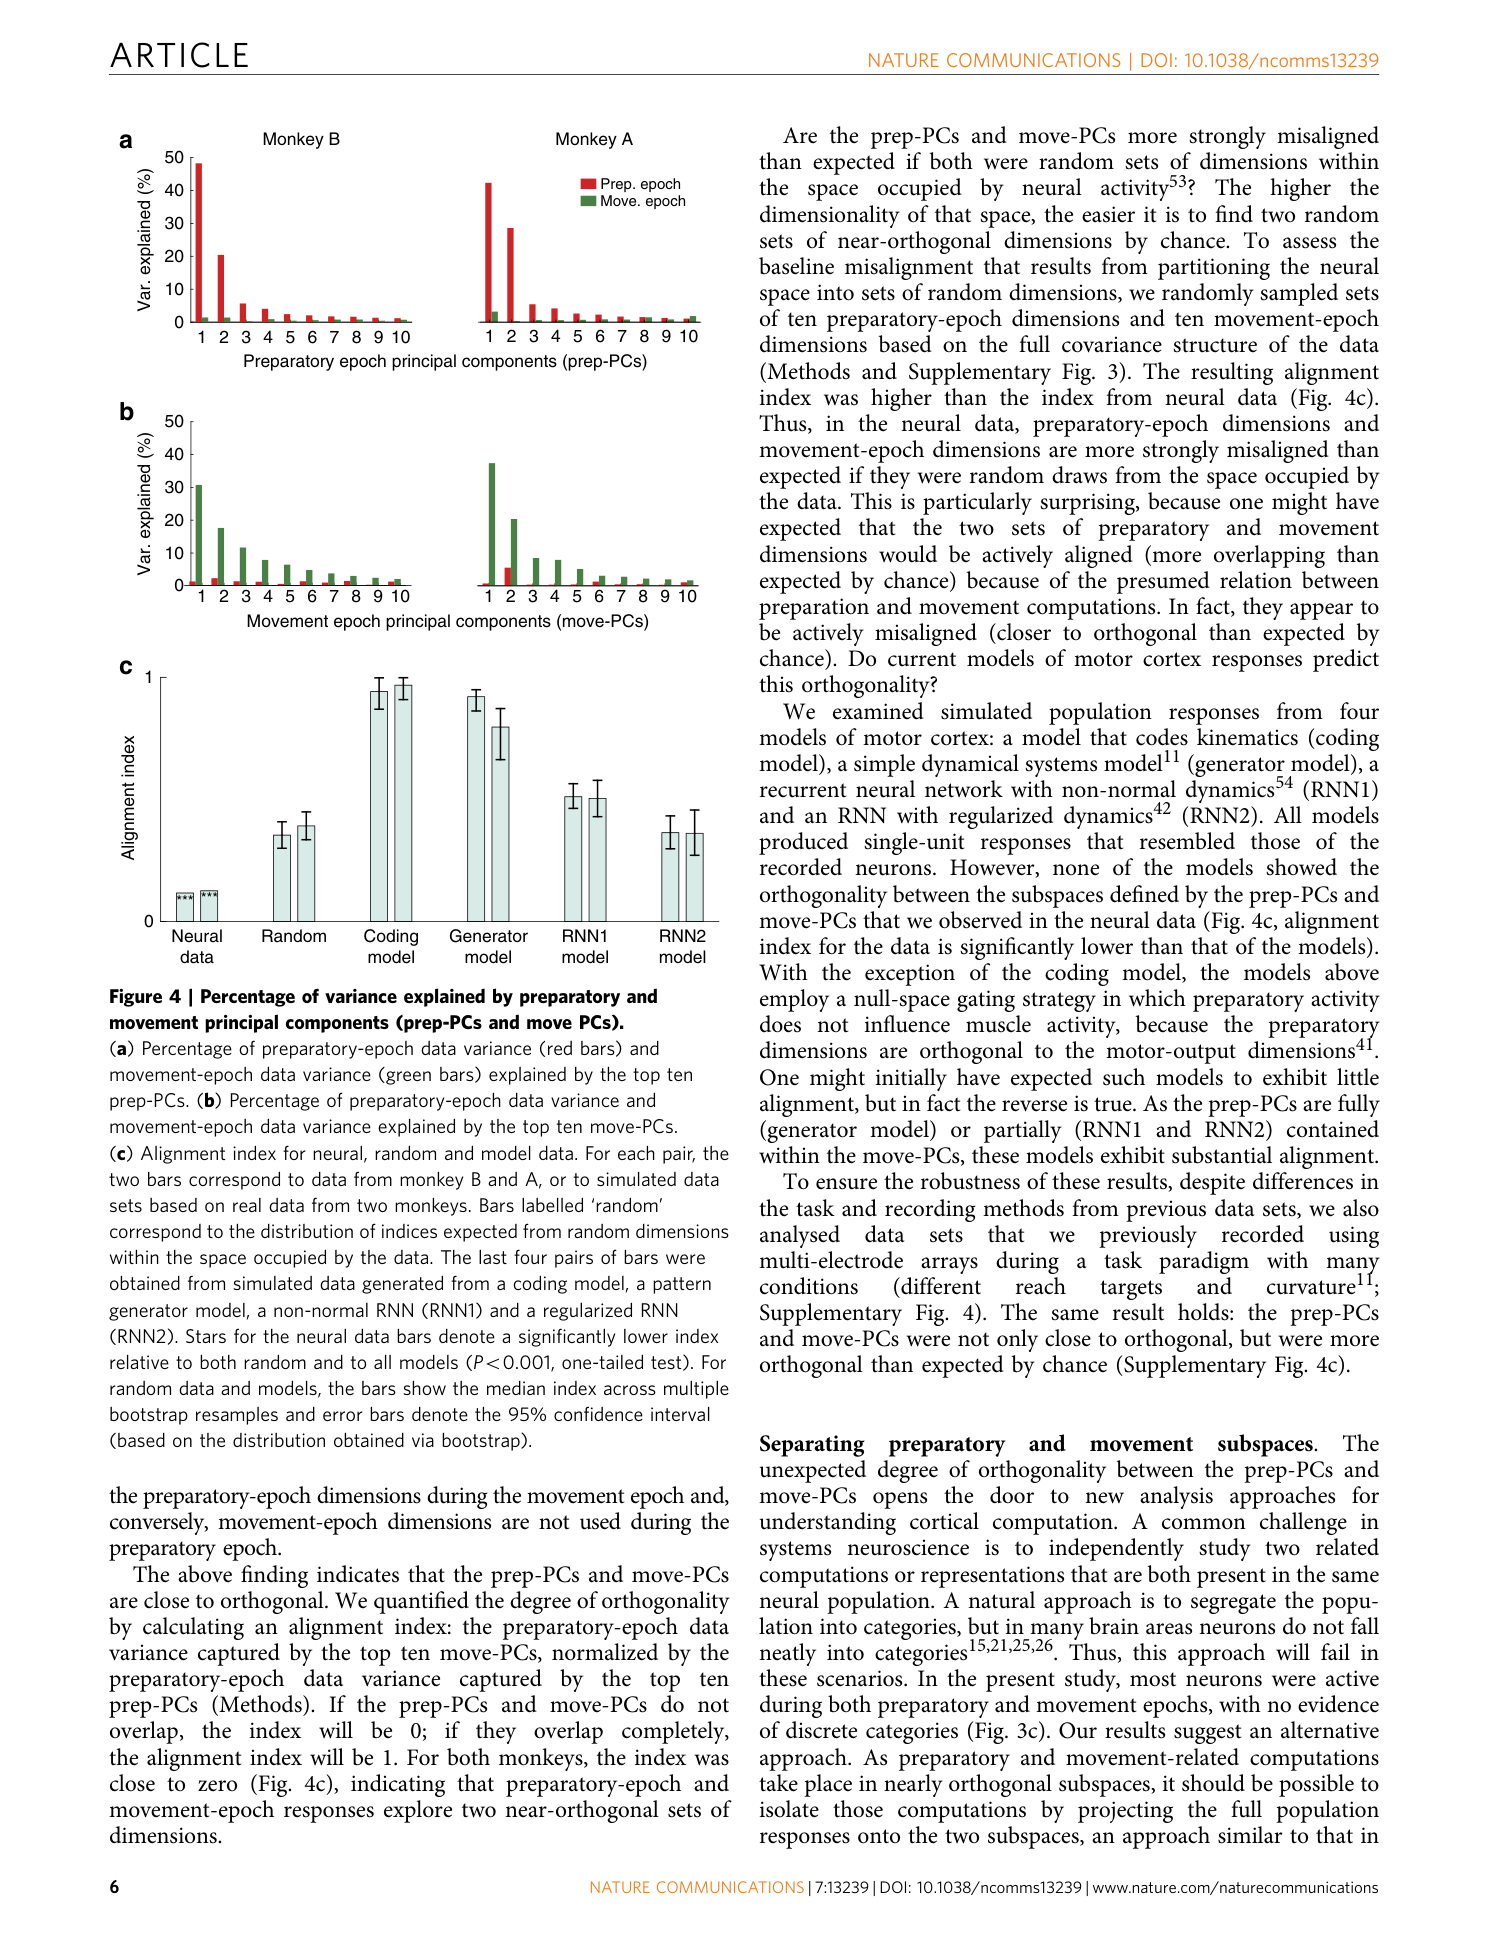 原文 Fig. 4 · PDF 第 6 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图4 · PCA与alignment index。 比较经验数据、受限随机基线和四模型,应同时比较两只动物及不同模型的结果。
 原文 Fig. 5 · PDF 第 7 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图5 · 正交约束子空间。 a为投影,b为解释方差;b是评估分离程度的必要结果,不能省略。
 原文 Fig. 6 · PDF 第 8 页 · 原文图像 · 查看来源
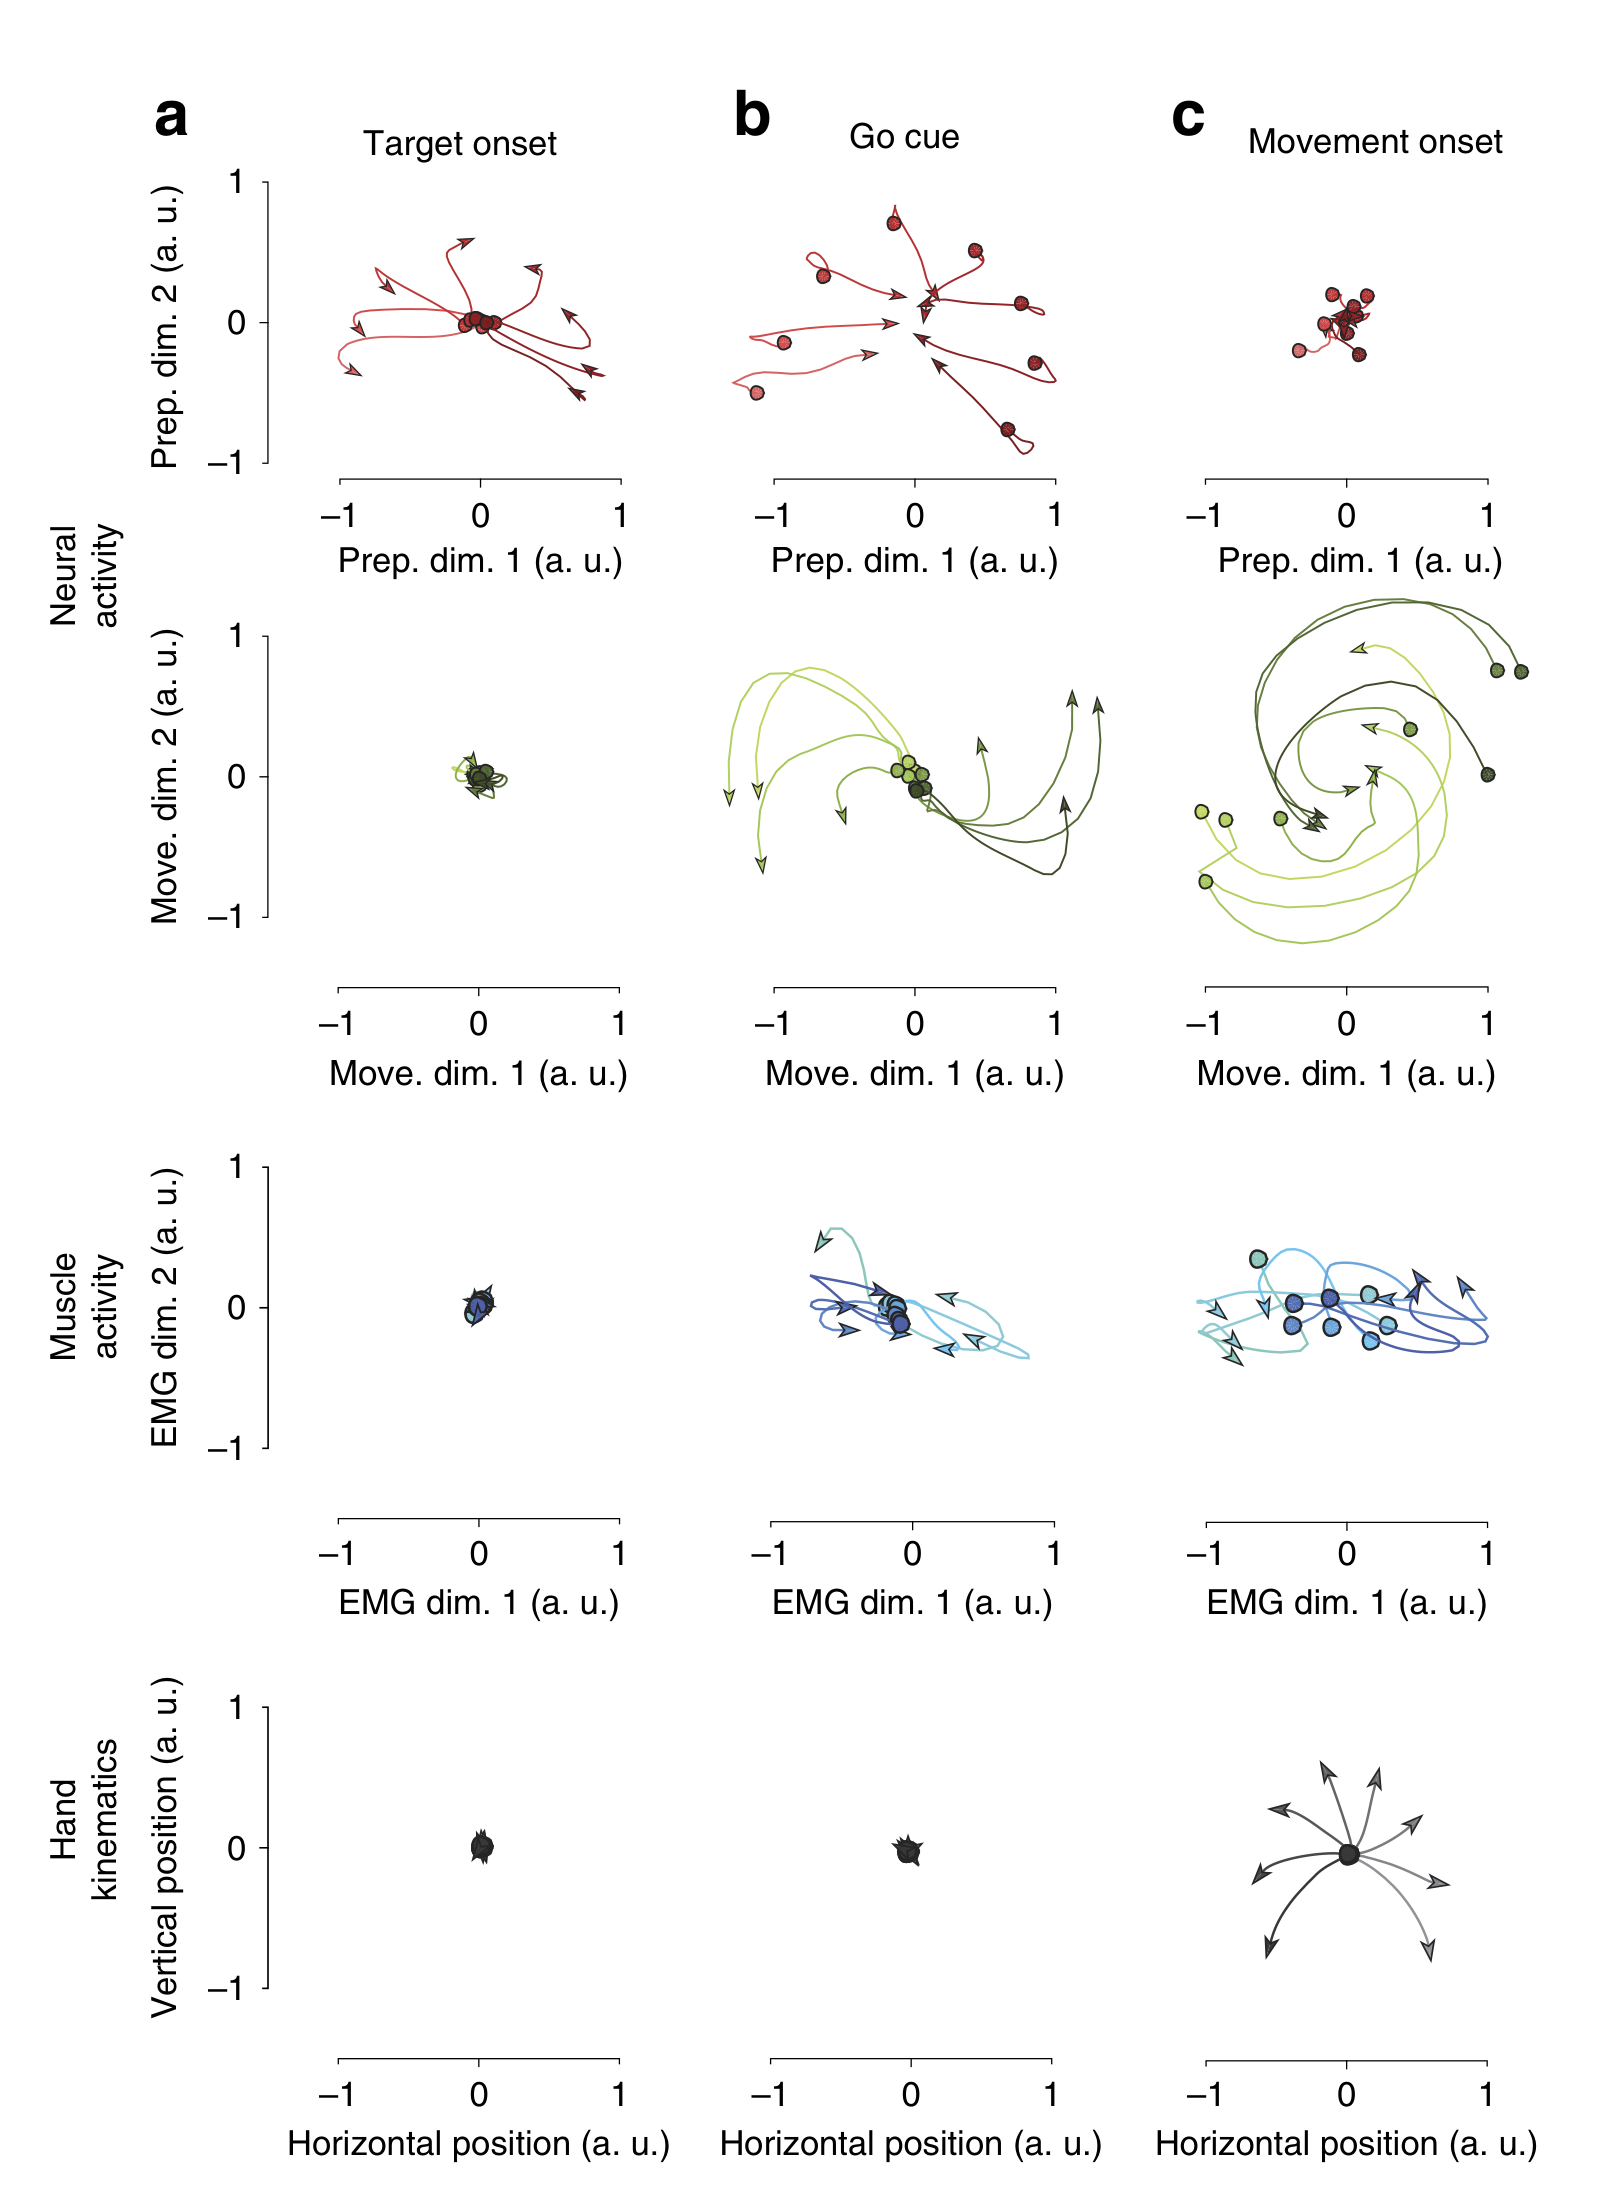
图6 · 状态、肌电和手运动。 按目标、GO、运动对齐的投影,展示各时期主要变化,不是全部活动归零或开启。
 原文 Fig. 7 · PDF 第 9 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图7 · 跨阶段联系。 a/b为轨迹,c为拟合,d为留一条件结果;应区分拟合优度与泛化。
 原文 Fig. 8 · PDF 第 10 页 · 原文图像 · 查看来源
图8 · 前馈生成模型。 门控交接及正交结构是模型构造,说明可行性,尚未验证生物实现。
讨论与解读边界
所提取的子空间高度依赖于特定任务结构、预处理流程、电极采样以及所选时间窗。四个对照模型的失配并不意味着排除了所有替代机制;先前关于输出零空间的结论亦未要求准备空间必须完全包含于运动子空间中。几何上的近似正交与动力学上的状态传递完全能够共存,不能将其解读为同一解剖回路在毫秒间发生了物理层面的重新布线。
思考问题
- 在不减去共同活动、改变窗口并使用同时记录的单试次数据时,主要结论有哪些变化?
- 定向改变准备状态后,后续运动状态的变化能否由跨条件拟合的映射预测?