A02 · Functional classes of primate corticomotoneuronal cells and their relation to active force
Cheney, P.D., & Fetz, E.E. (1980). Journal of Neurophysiology, 44, 773–791. doi:10.1152/jn.1980.44.4.773
以尖峰触发肌电平均中的放电后易化(PSF)识别 CM 细胞后,作者发现其静态保持期放电与主动腕力矩显著相关,部分动态相响应也与力矩变化率密切联系。该结论受限于所测特定任务与筛选标准,并不意味着未检出易化的细胞缺乏下行运动输出。
核对依据:Zotero 条目 · 本地全文。本轮核对原文方法、关键结果、解释边界及所引主图;更新于2026-09-20。图注页码采用本地PDF文件页序,版本与未解决问题见正文及审查记录。
背景
运动皮层神经元放电与腕关节力矩相关,并不能直接证明它单突触支配特定目标肌肉。细胞放电可能编码视觉目标、关节位置或整体运动状态,也可能通过多突触多径路间接参与输出。Cheney 与 Fetz 此前发展的尖峰触发肌电平均(STA)提供了更具特异性的功能筛选方法:若皮层动作电位触发的整流肌电平均中出现潜伏期极短的放电后易化(PSF),便将该神经元归为对目标肌肉具有相对直接促进作用的皮质运动神经元(CM 细胞)。这一电生理指标比单纯的行为相关性更贴近实际输出联系,但它仍非针对脊髓运动神经元胞内单突触 EPSP 的直接记录,其实际检出率也高度依赖记录肌肉覆盖度、脉冲累积样本量与信噪比。
另一个关键考量在于运动范式。常规腕部运动往往伴随关节力矩、肌纤维长度与关节角度的同步改变,因而所谓的“放电率—力矩关系”很可能混杂了肌肉本体长度或关节位置变化的伴随影响。等长收缩任务严格固定了腕关节角度,而弹性负载任务则允许伴随位移,两者对照能够检验在相同力矩轨迹下细胞响应是否仍然保留。此外,运动的动态起始段与静态维持段也必须区分处理:部分神经元仅在出力增减阶段短暂放电,另一些则在稳态维持期间持续放电;如果单纯计算整个试次的平均放电,就会掩盖这些不同的动力学特征。
本文据此先以放电后易化筛选确认 CM 细胞,进而系统比对不同任务范式、外加负载及腕关节角度下的放电形态与力矩依赖性。研究表明,CM 细胞在保持期的放电率在相当大的测试区间内随静态力矩呈近似线性增长,且不同神经元展现出相位—持续、持续、相位—斜坡等多样化动力学形态。这些发现有力支持了 CM 细胞与主动用力之间的特异性联系;但文中所划分的四类动力学模式属于特定行为任务下的功能描述,未必对应互斥的固定解剖亚型,未检出 PSF 的纯相位神经元同样不能被断言没有运动输出功能。此外,关节位置仍能显著调制放电曲线,而快速运动中的有限样本也提示静态规律不能被无条件推广。
研究思路
研究设计了允许腕部产生位移的弹性负载任务与关节位置固定的等长收缩任务,分别量化运动动态起始相与静态维持期的放电变化。结合负载变换与关节角度固定,有助于解耦关节位移、外部力矩与肌肉长度等变量,但无法完全消除肌腱韧带内部弹性力学与外周本体感觉反馈的影响。
方法
三只恒河猴完成阶梯式腕部屈伸维持任务(ramp-and-hold)。以皮层单单元脉冲触发多块前臂肌肉的整流肌电平均,凡表现出清晰放电后易化(PSF)的神经元按标准界定为 CM 细胞,共获得 135 个。该指标反映的是外周肌电群体的短潜伏期易化效应,而非胞内电极直接记录的运动神经元单突触 EPSP,亦非确认解剖突触联系的形态学证据。作者在弹性负载与等长条件下系统对比放电响应,并对部分神经元改变负荷力矩或腕关节角度;不同子项分析所纳入的细胞样本量并不完全相同。
主要结果
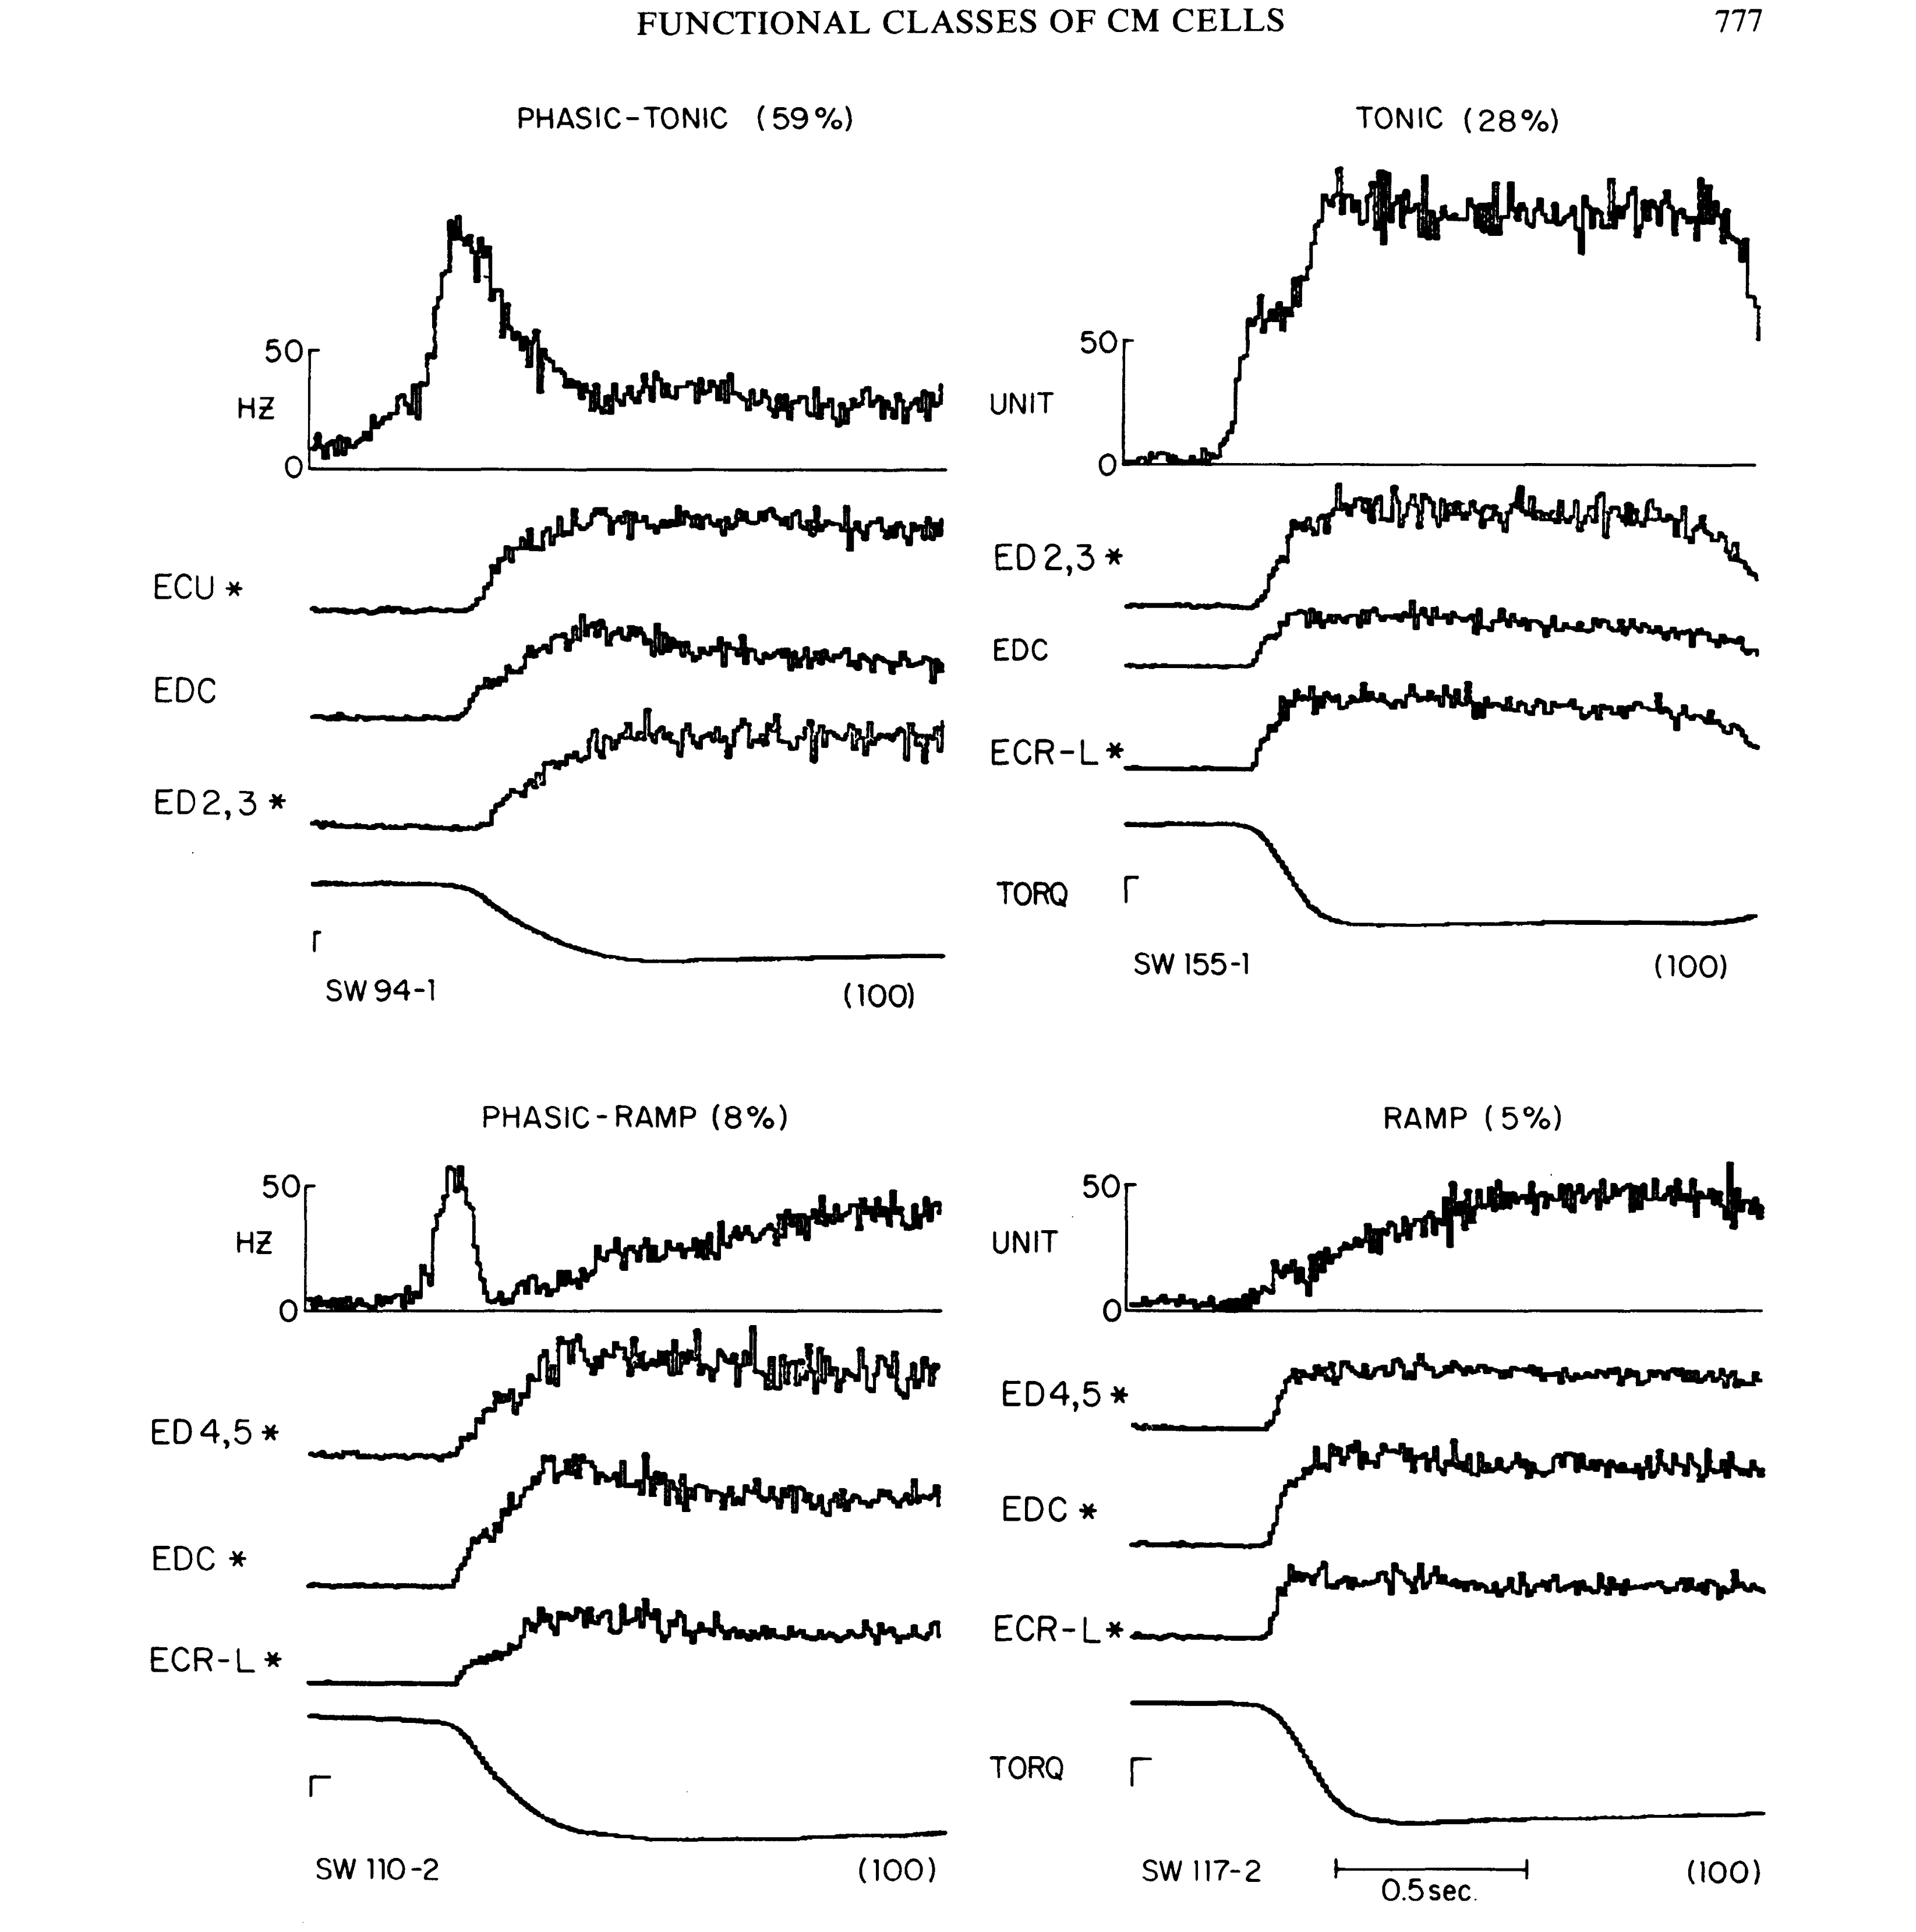
135个入选 CM 细胞按其时间动力学特征归入四类:相位—持续型(phasic-tonic,59%)、持续型(tonic,28%)、相位—斜坡型(phasic-ramp,8%)与斜坡型(ramp,5%)。这四类神经元在静态维持段均呈现稳定的放电活动;而在所记录的 STA 样本中,未能在纯相位型神经元上检出明确的 PSF。需要注意的是,未检出易化受制于肌电电极插入部位、触发尖峰数量以及检测灵敏度阈值,不能外推为所有纯相位细胞均不承担下行运动输出作用。
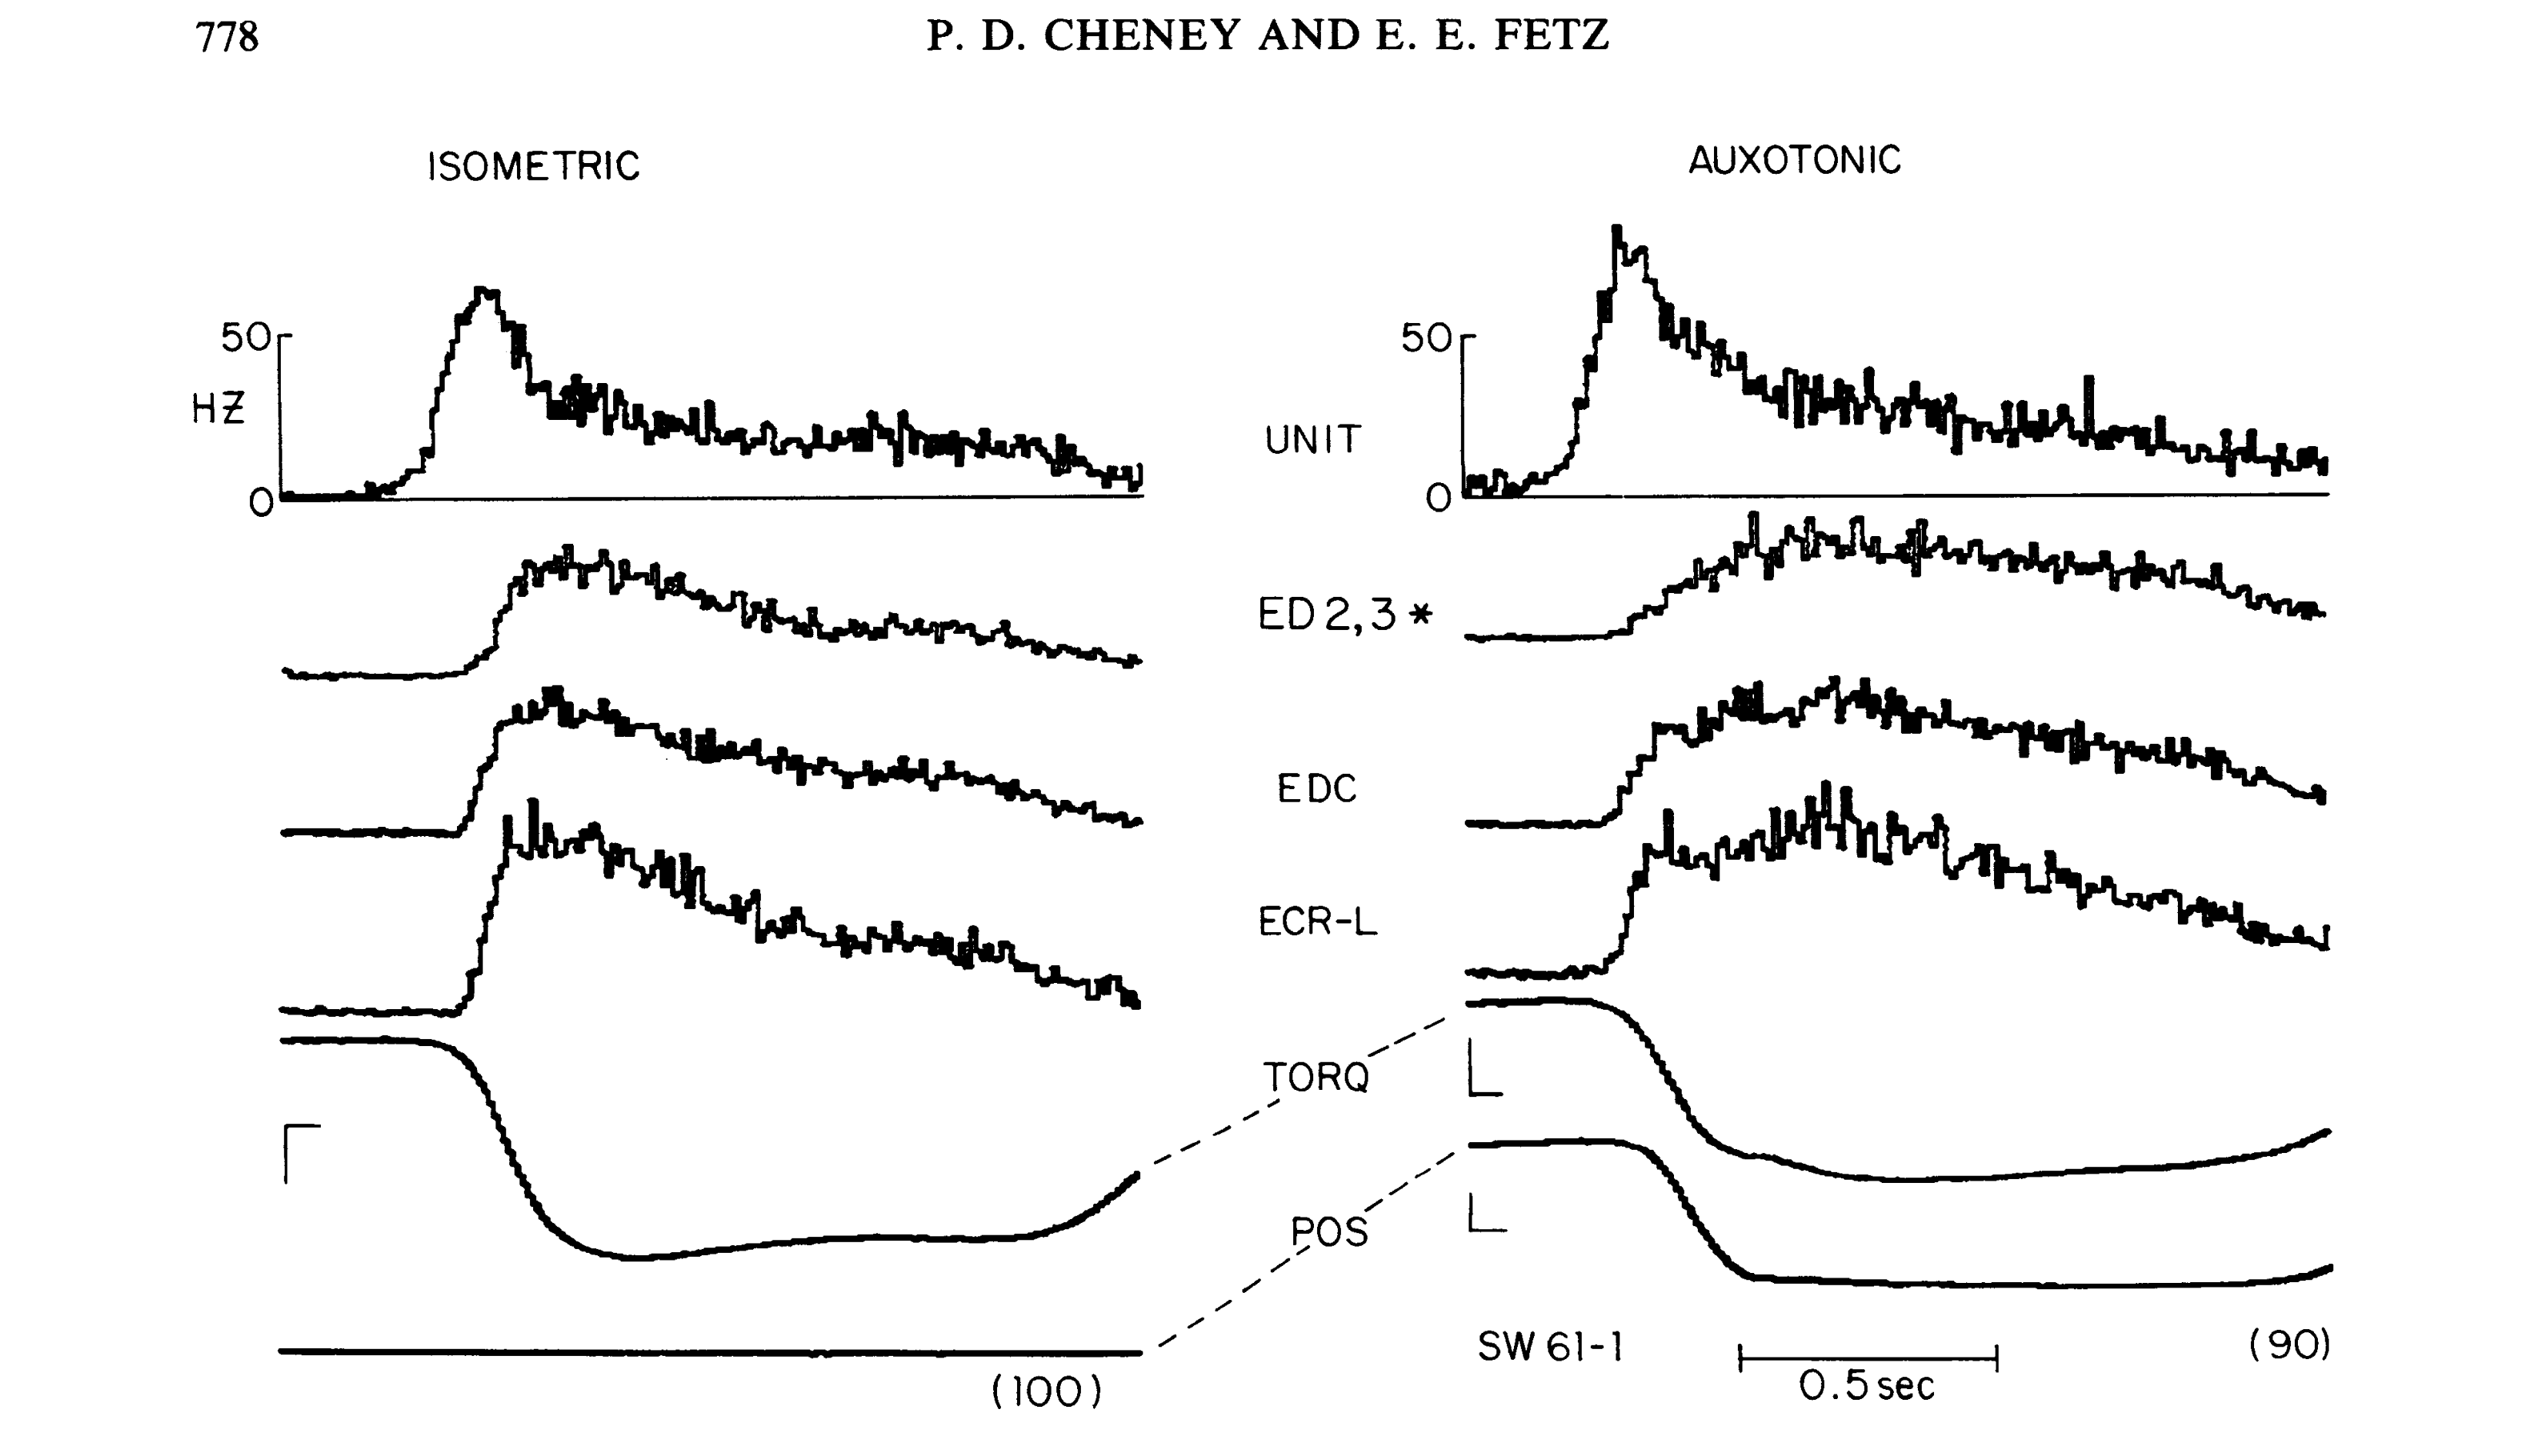
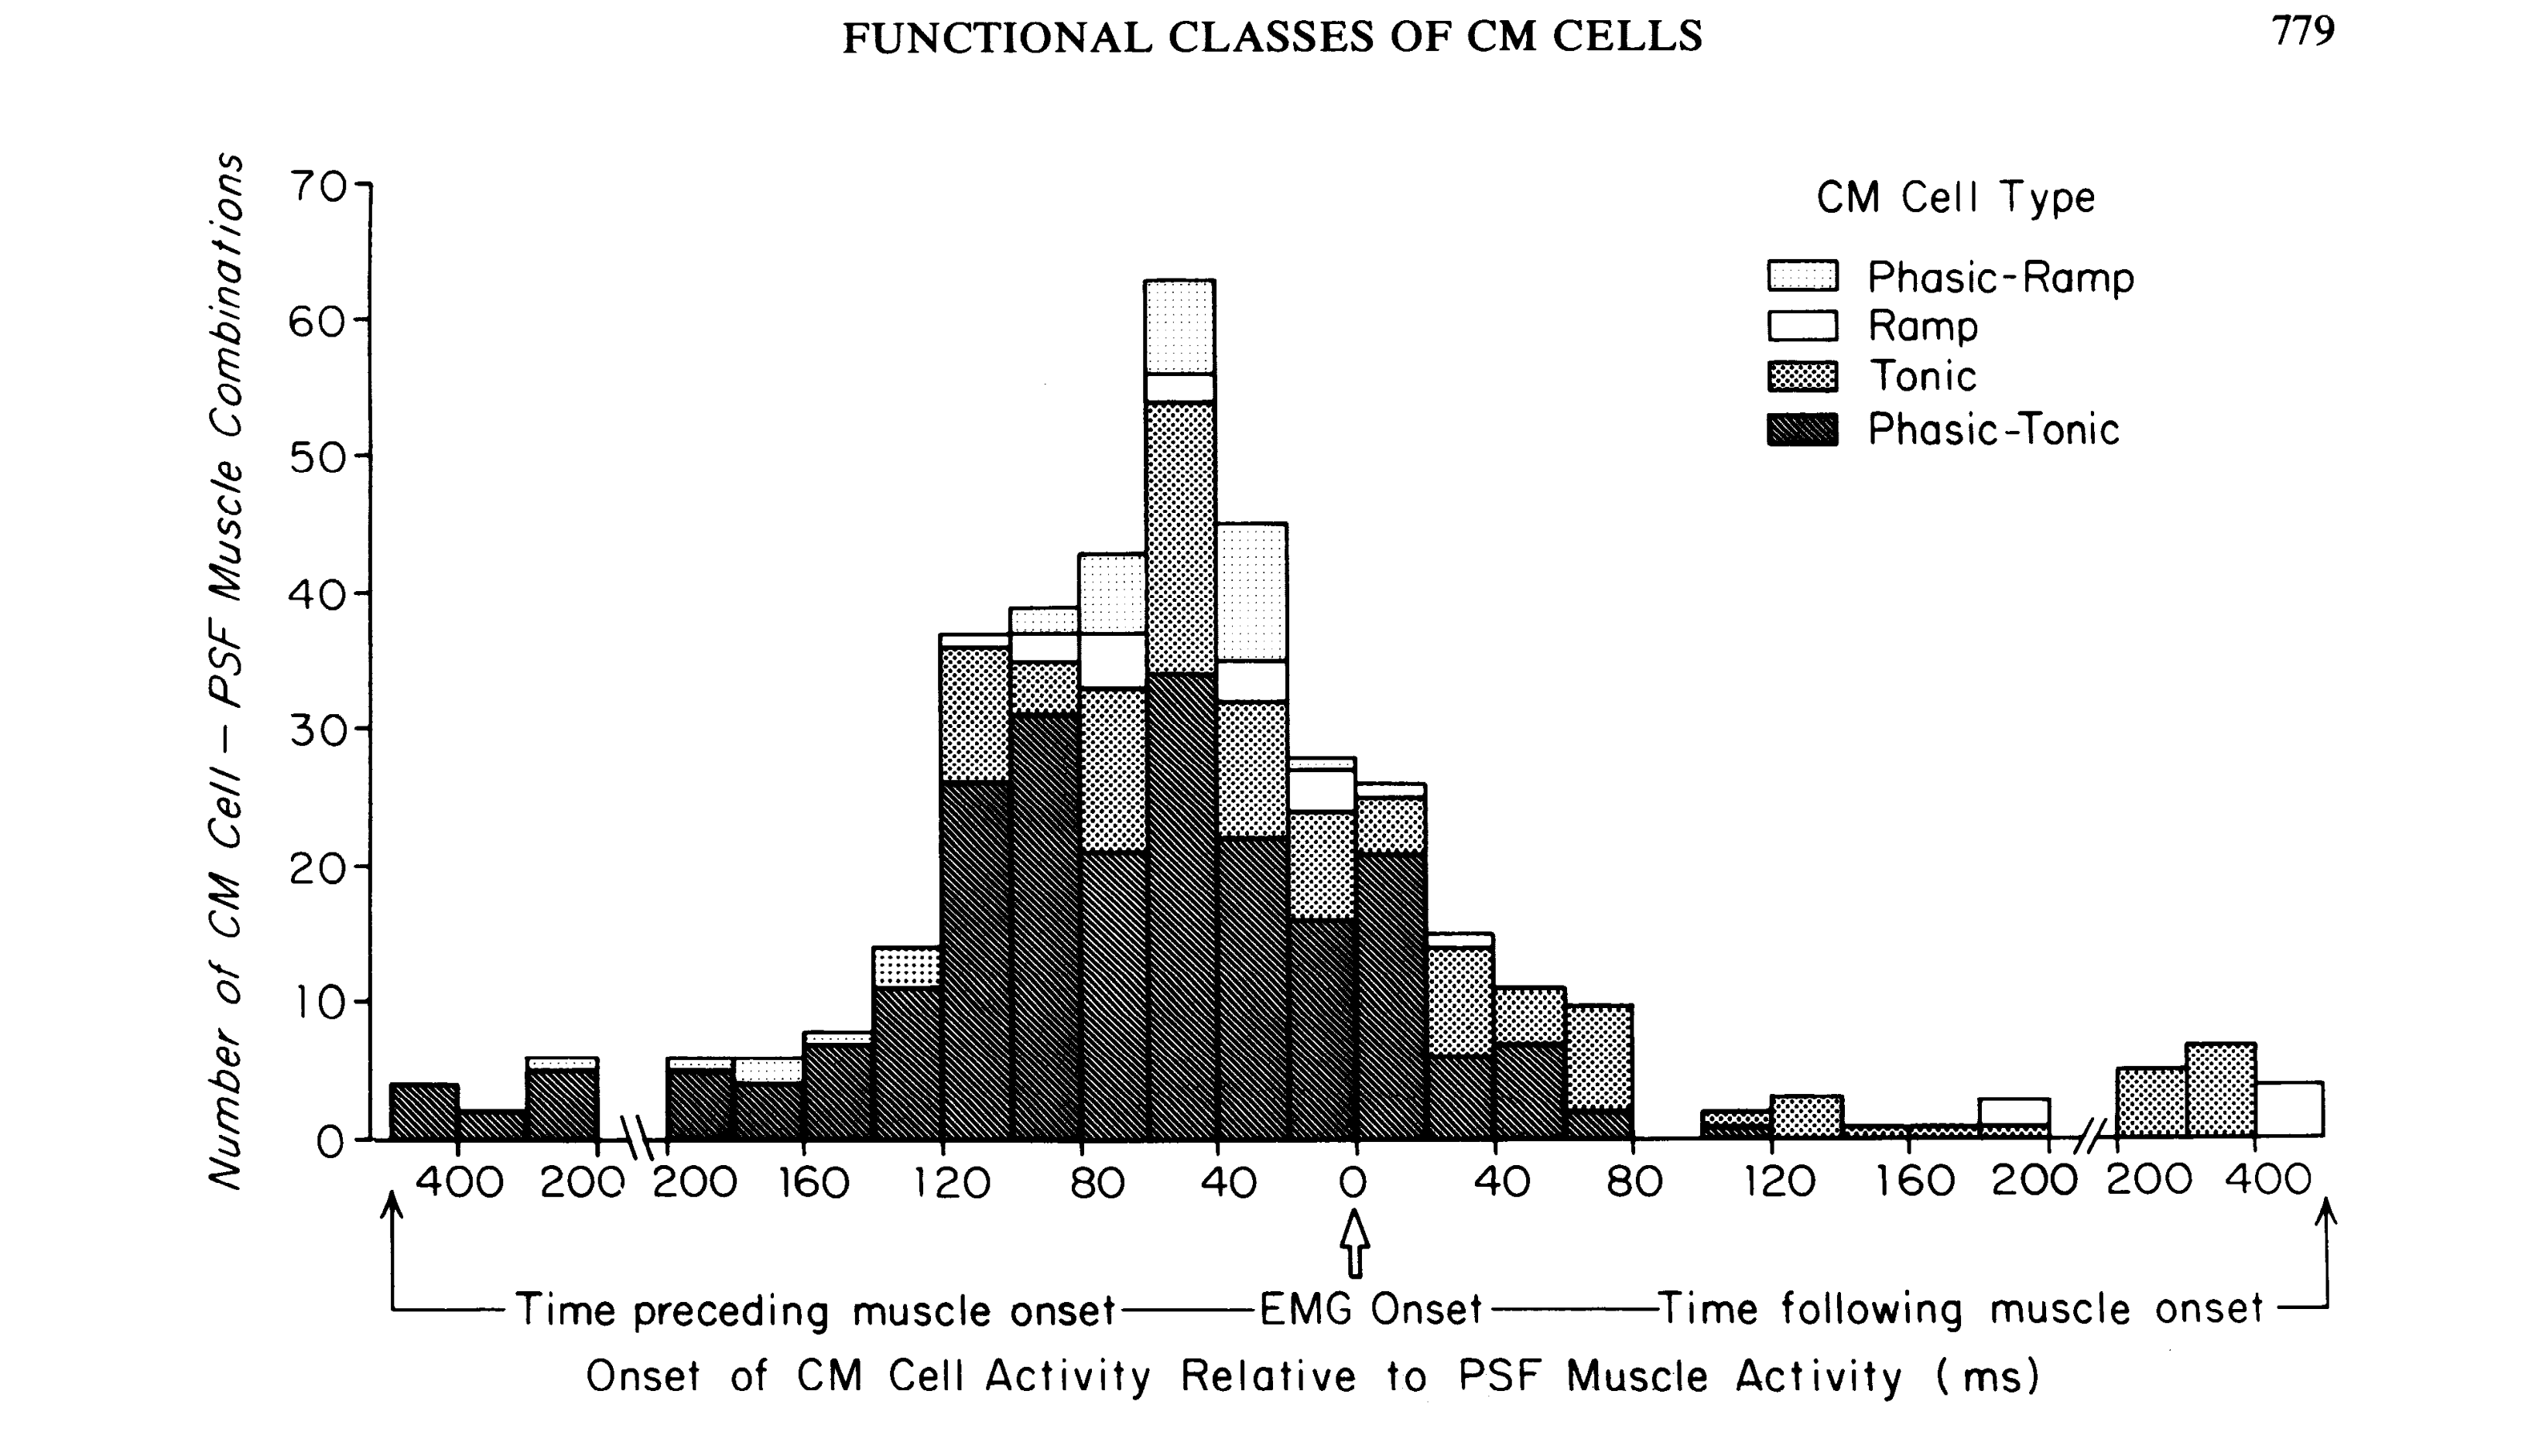
部分神经元在等长收缩与伴随位移的弹性负载任务中展现出高度相似的响应包络,支持力矩时间轨迹是决定所测神经活动的关键主导因素。四类细胞放电相对目标肌电起始的平均提前/落后时间分别约为 −71、+5、−63 与 +101 ms,但个体时序离散范围较宽,单一均值不足以确定皮层神经元的突触级联阶梯。
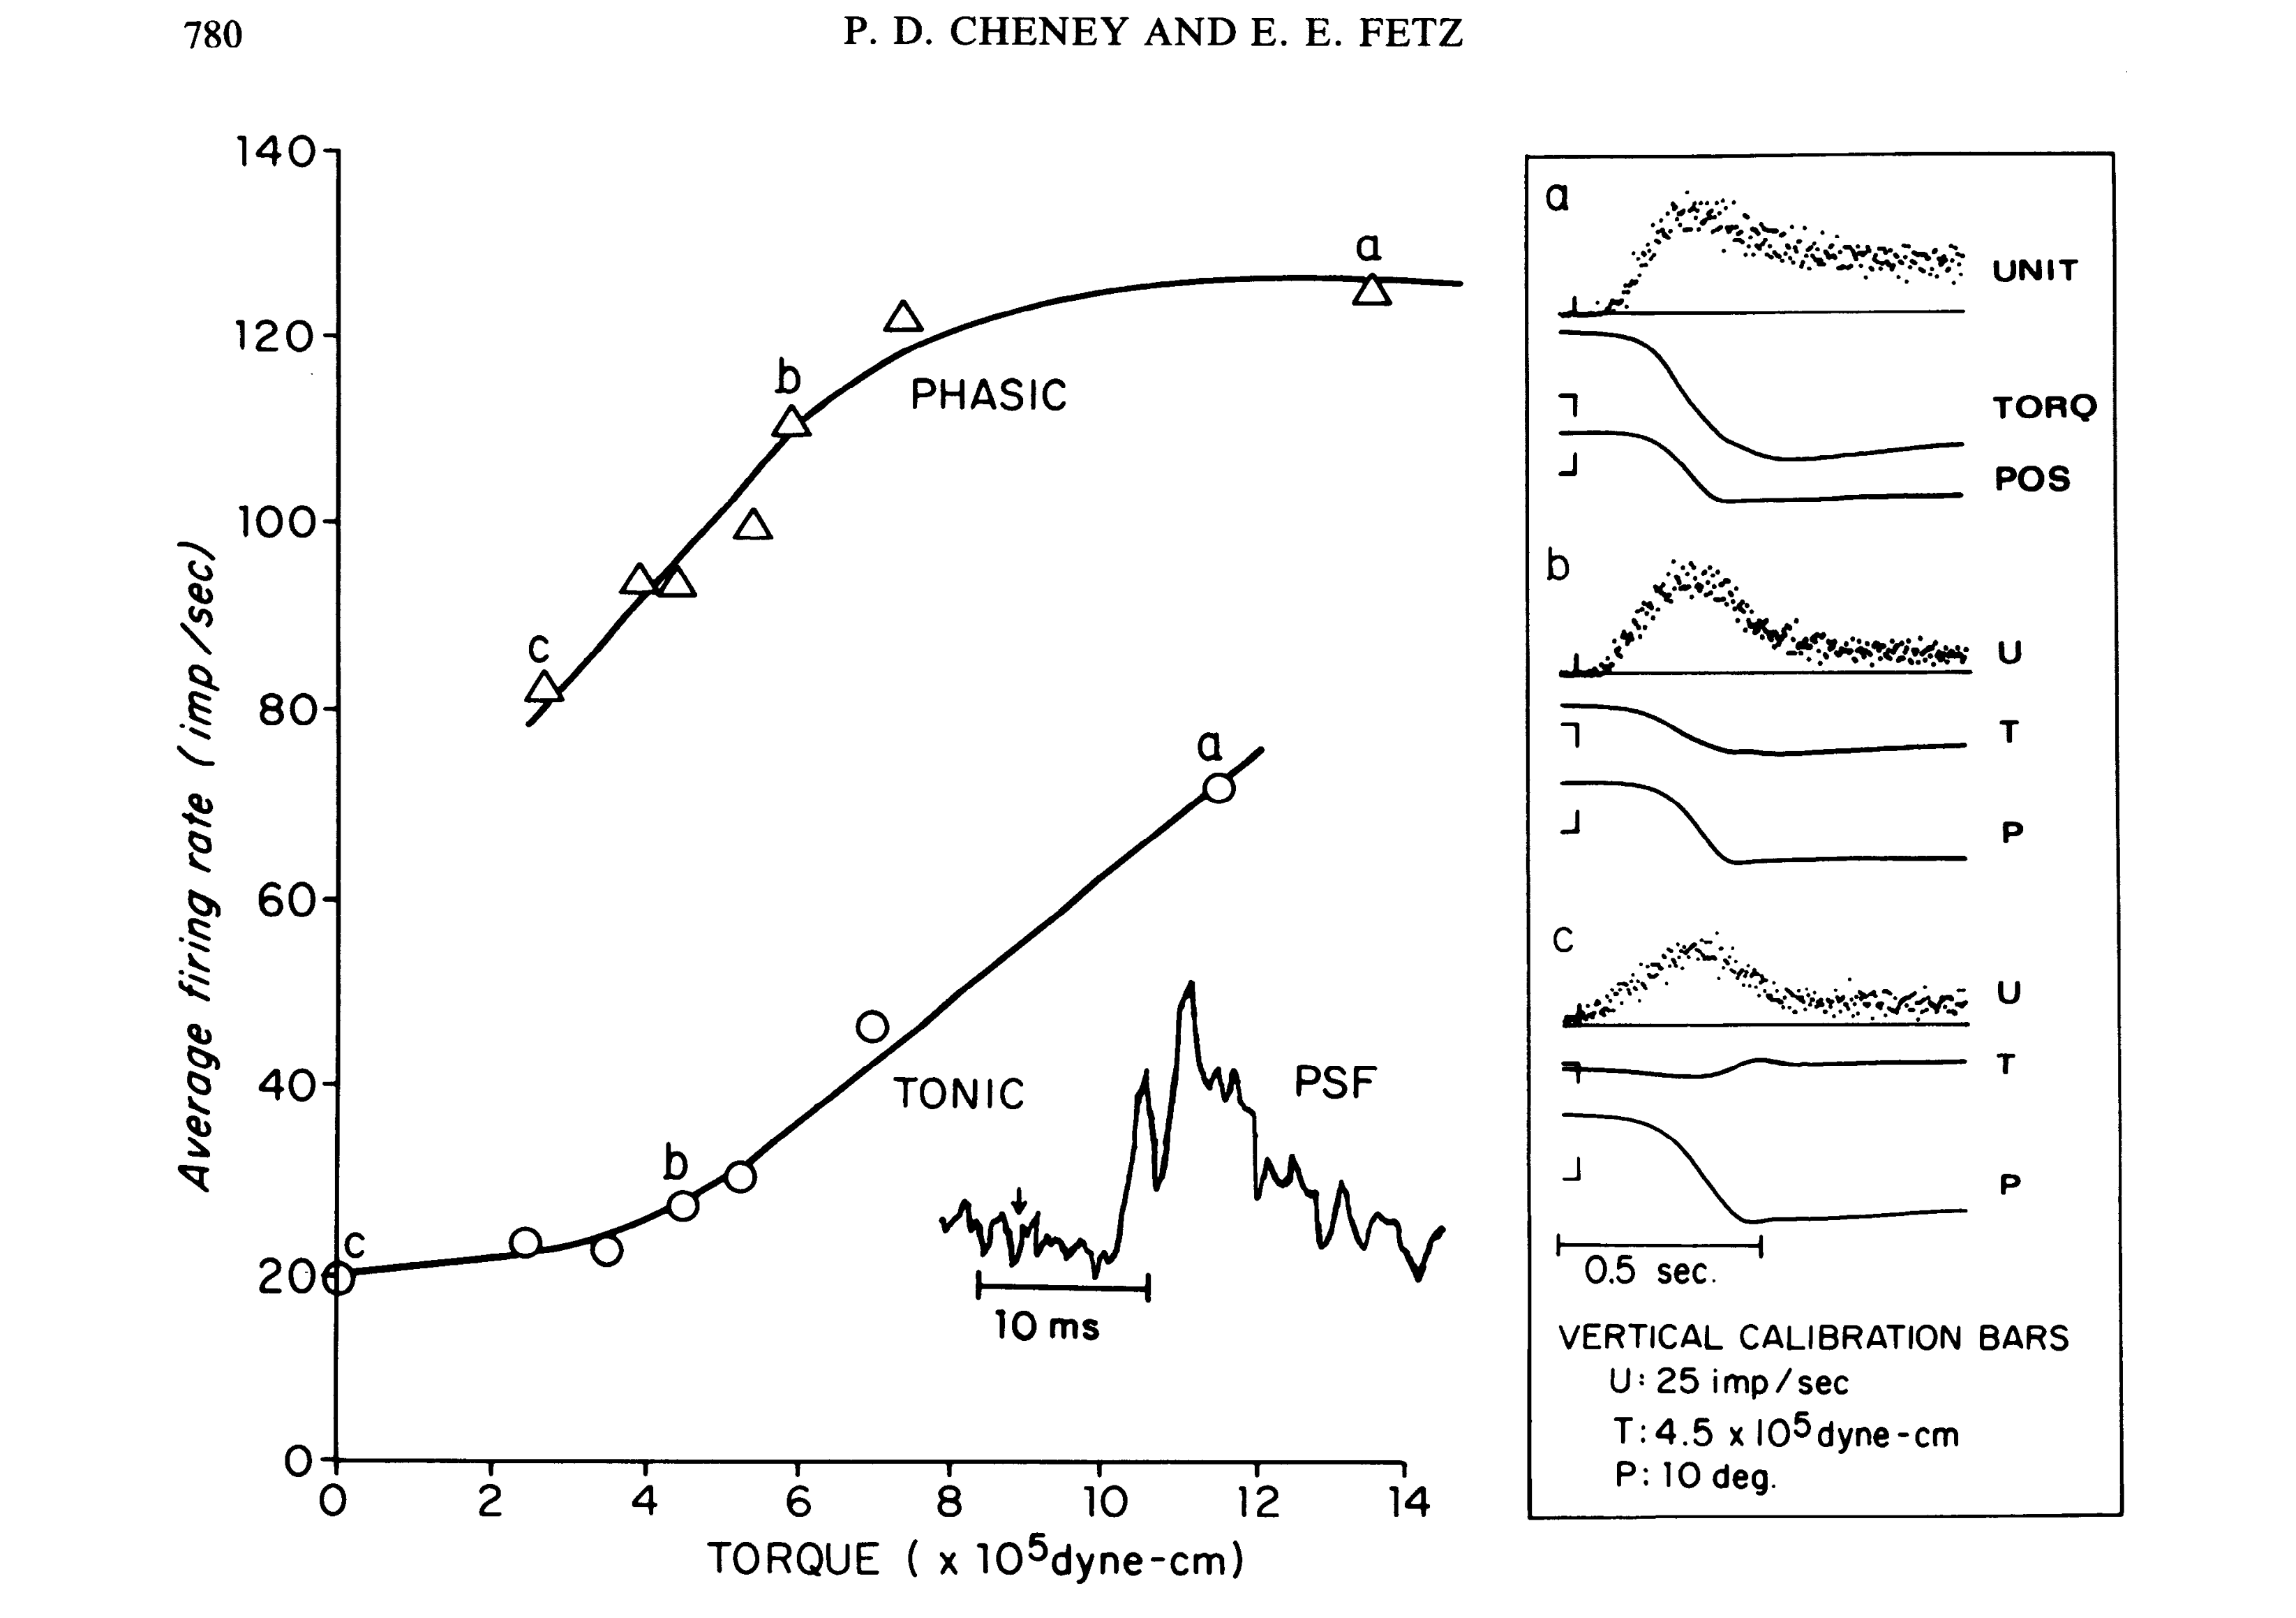
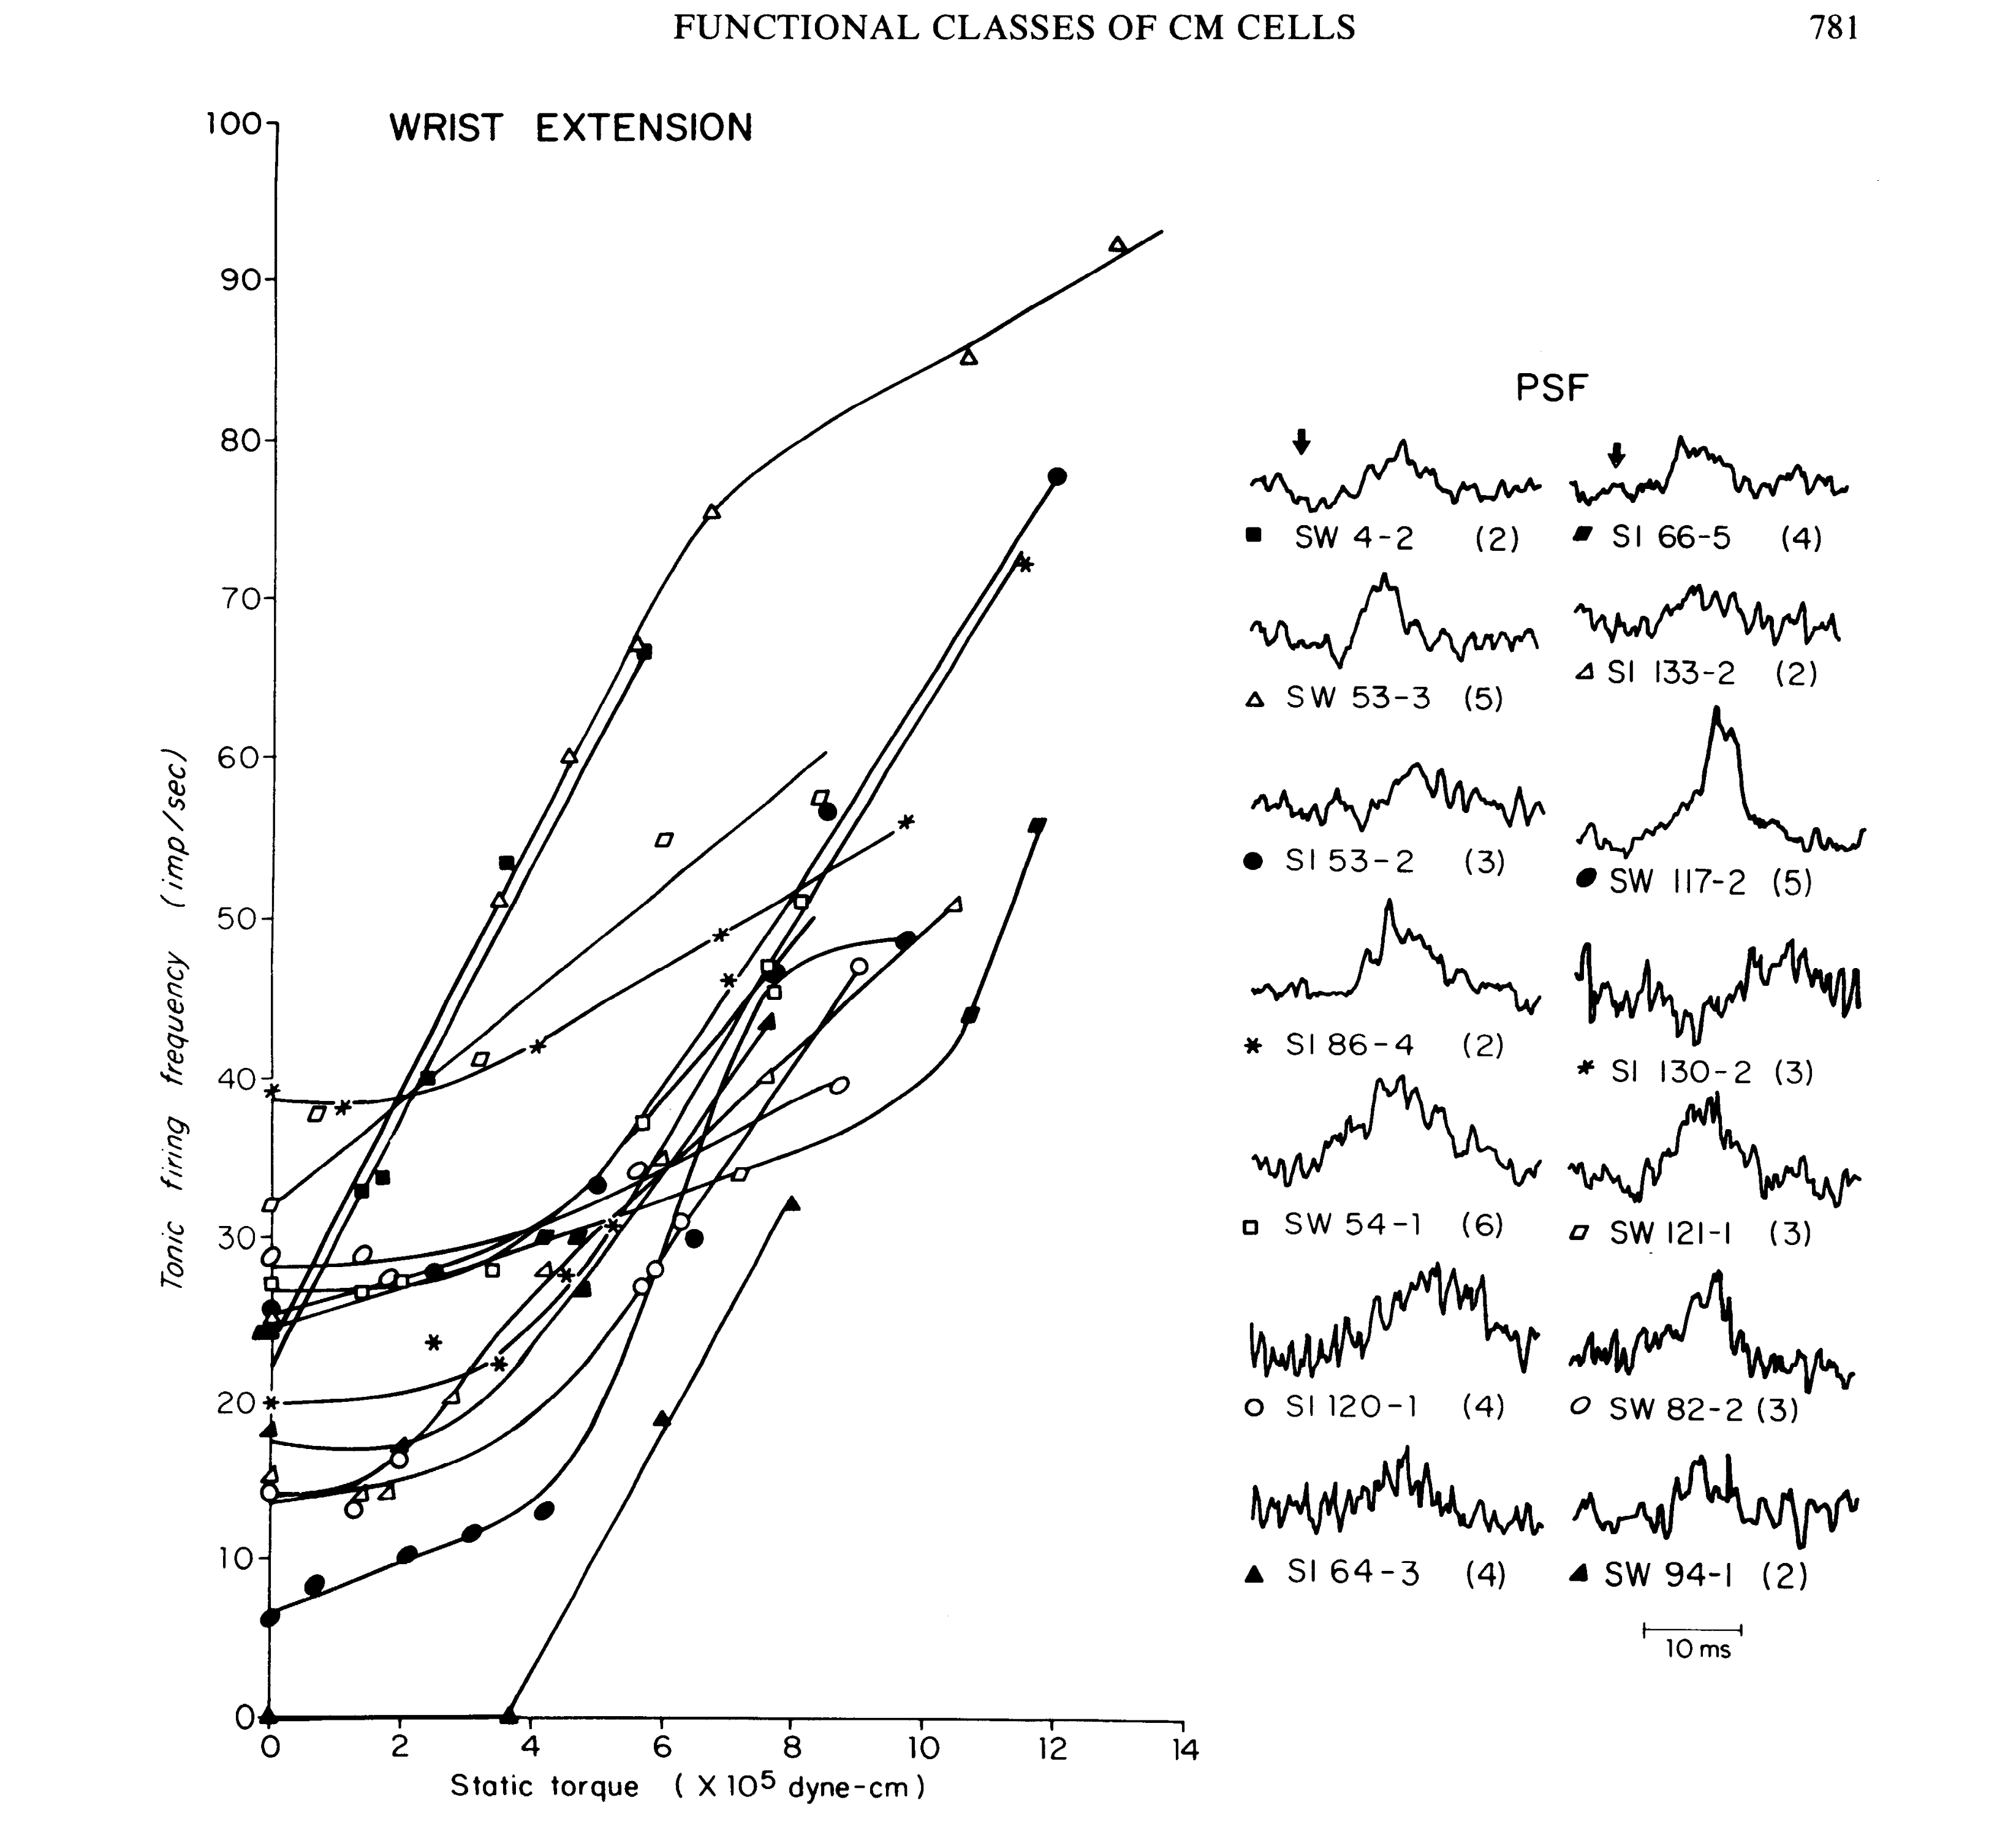
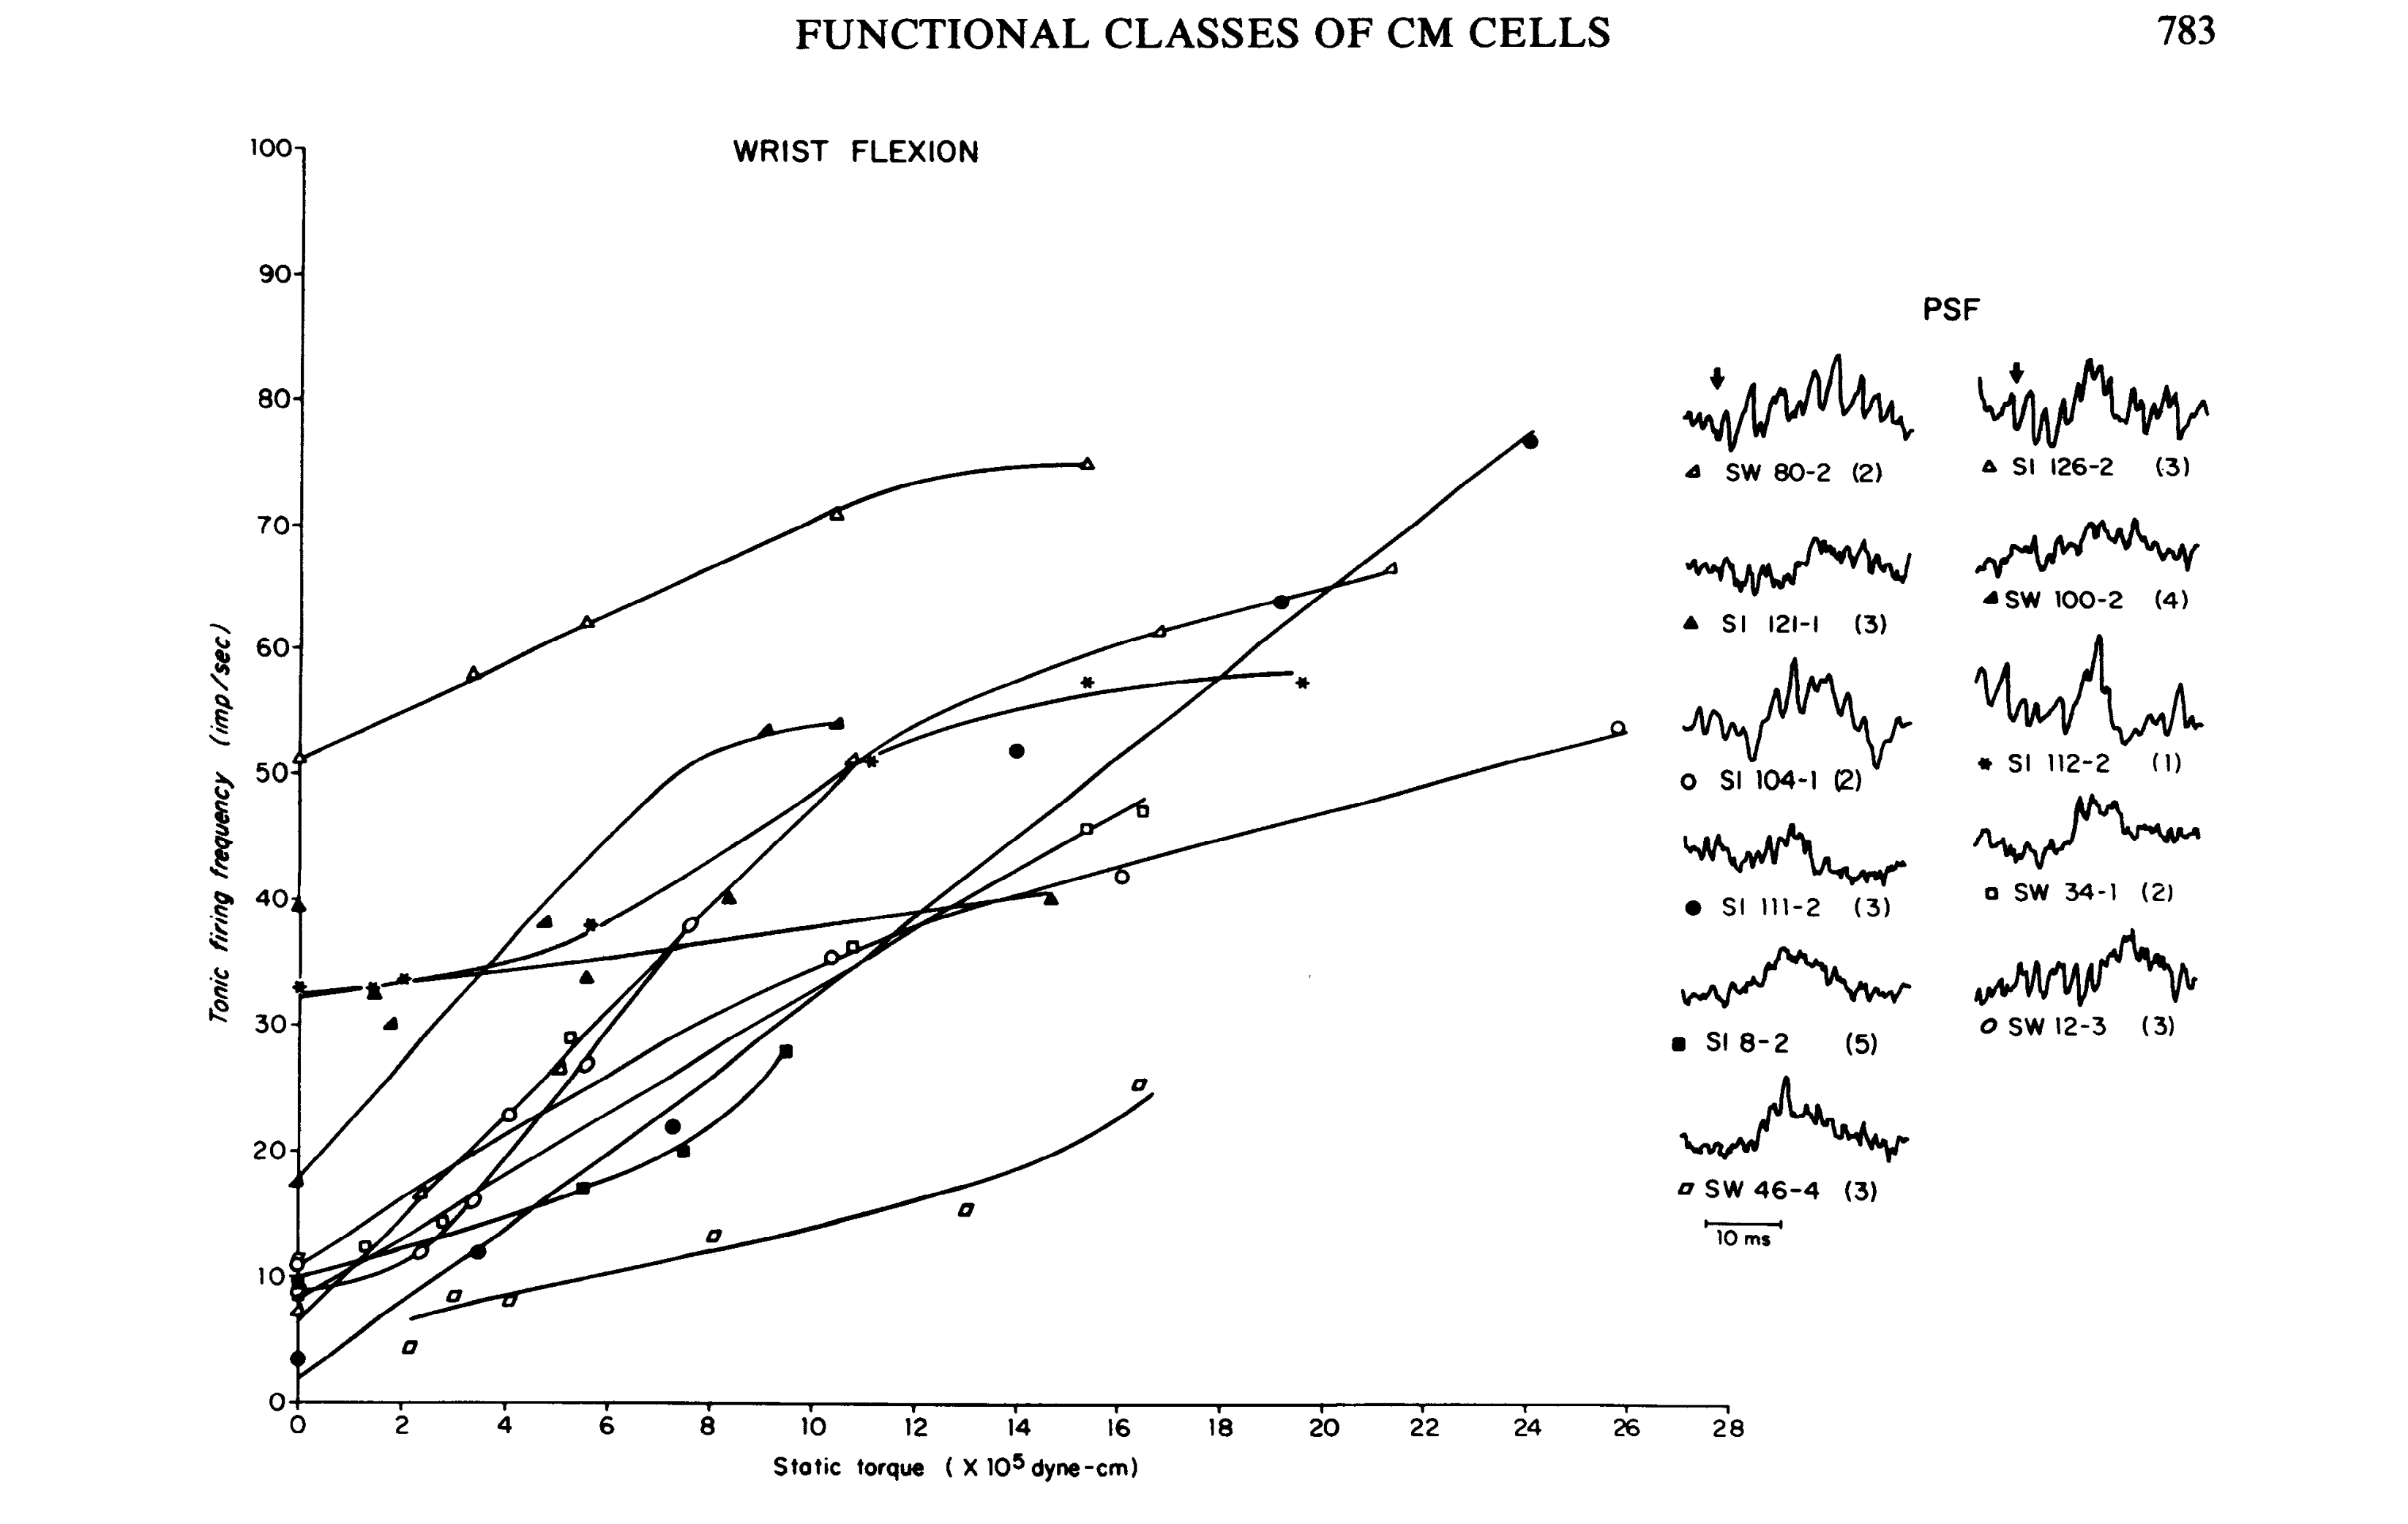
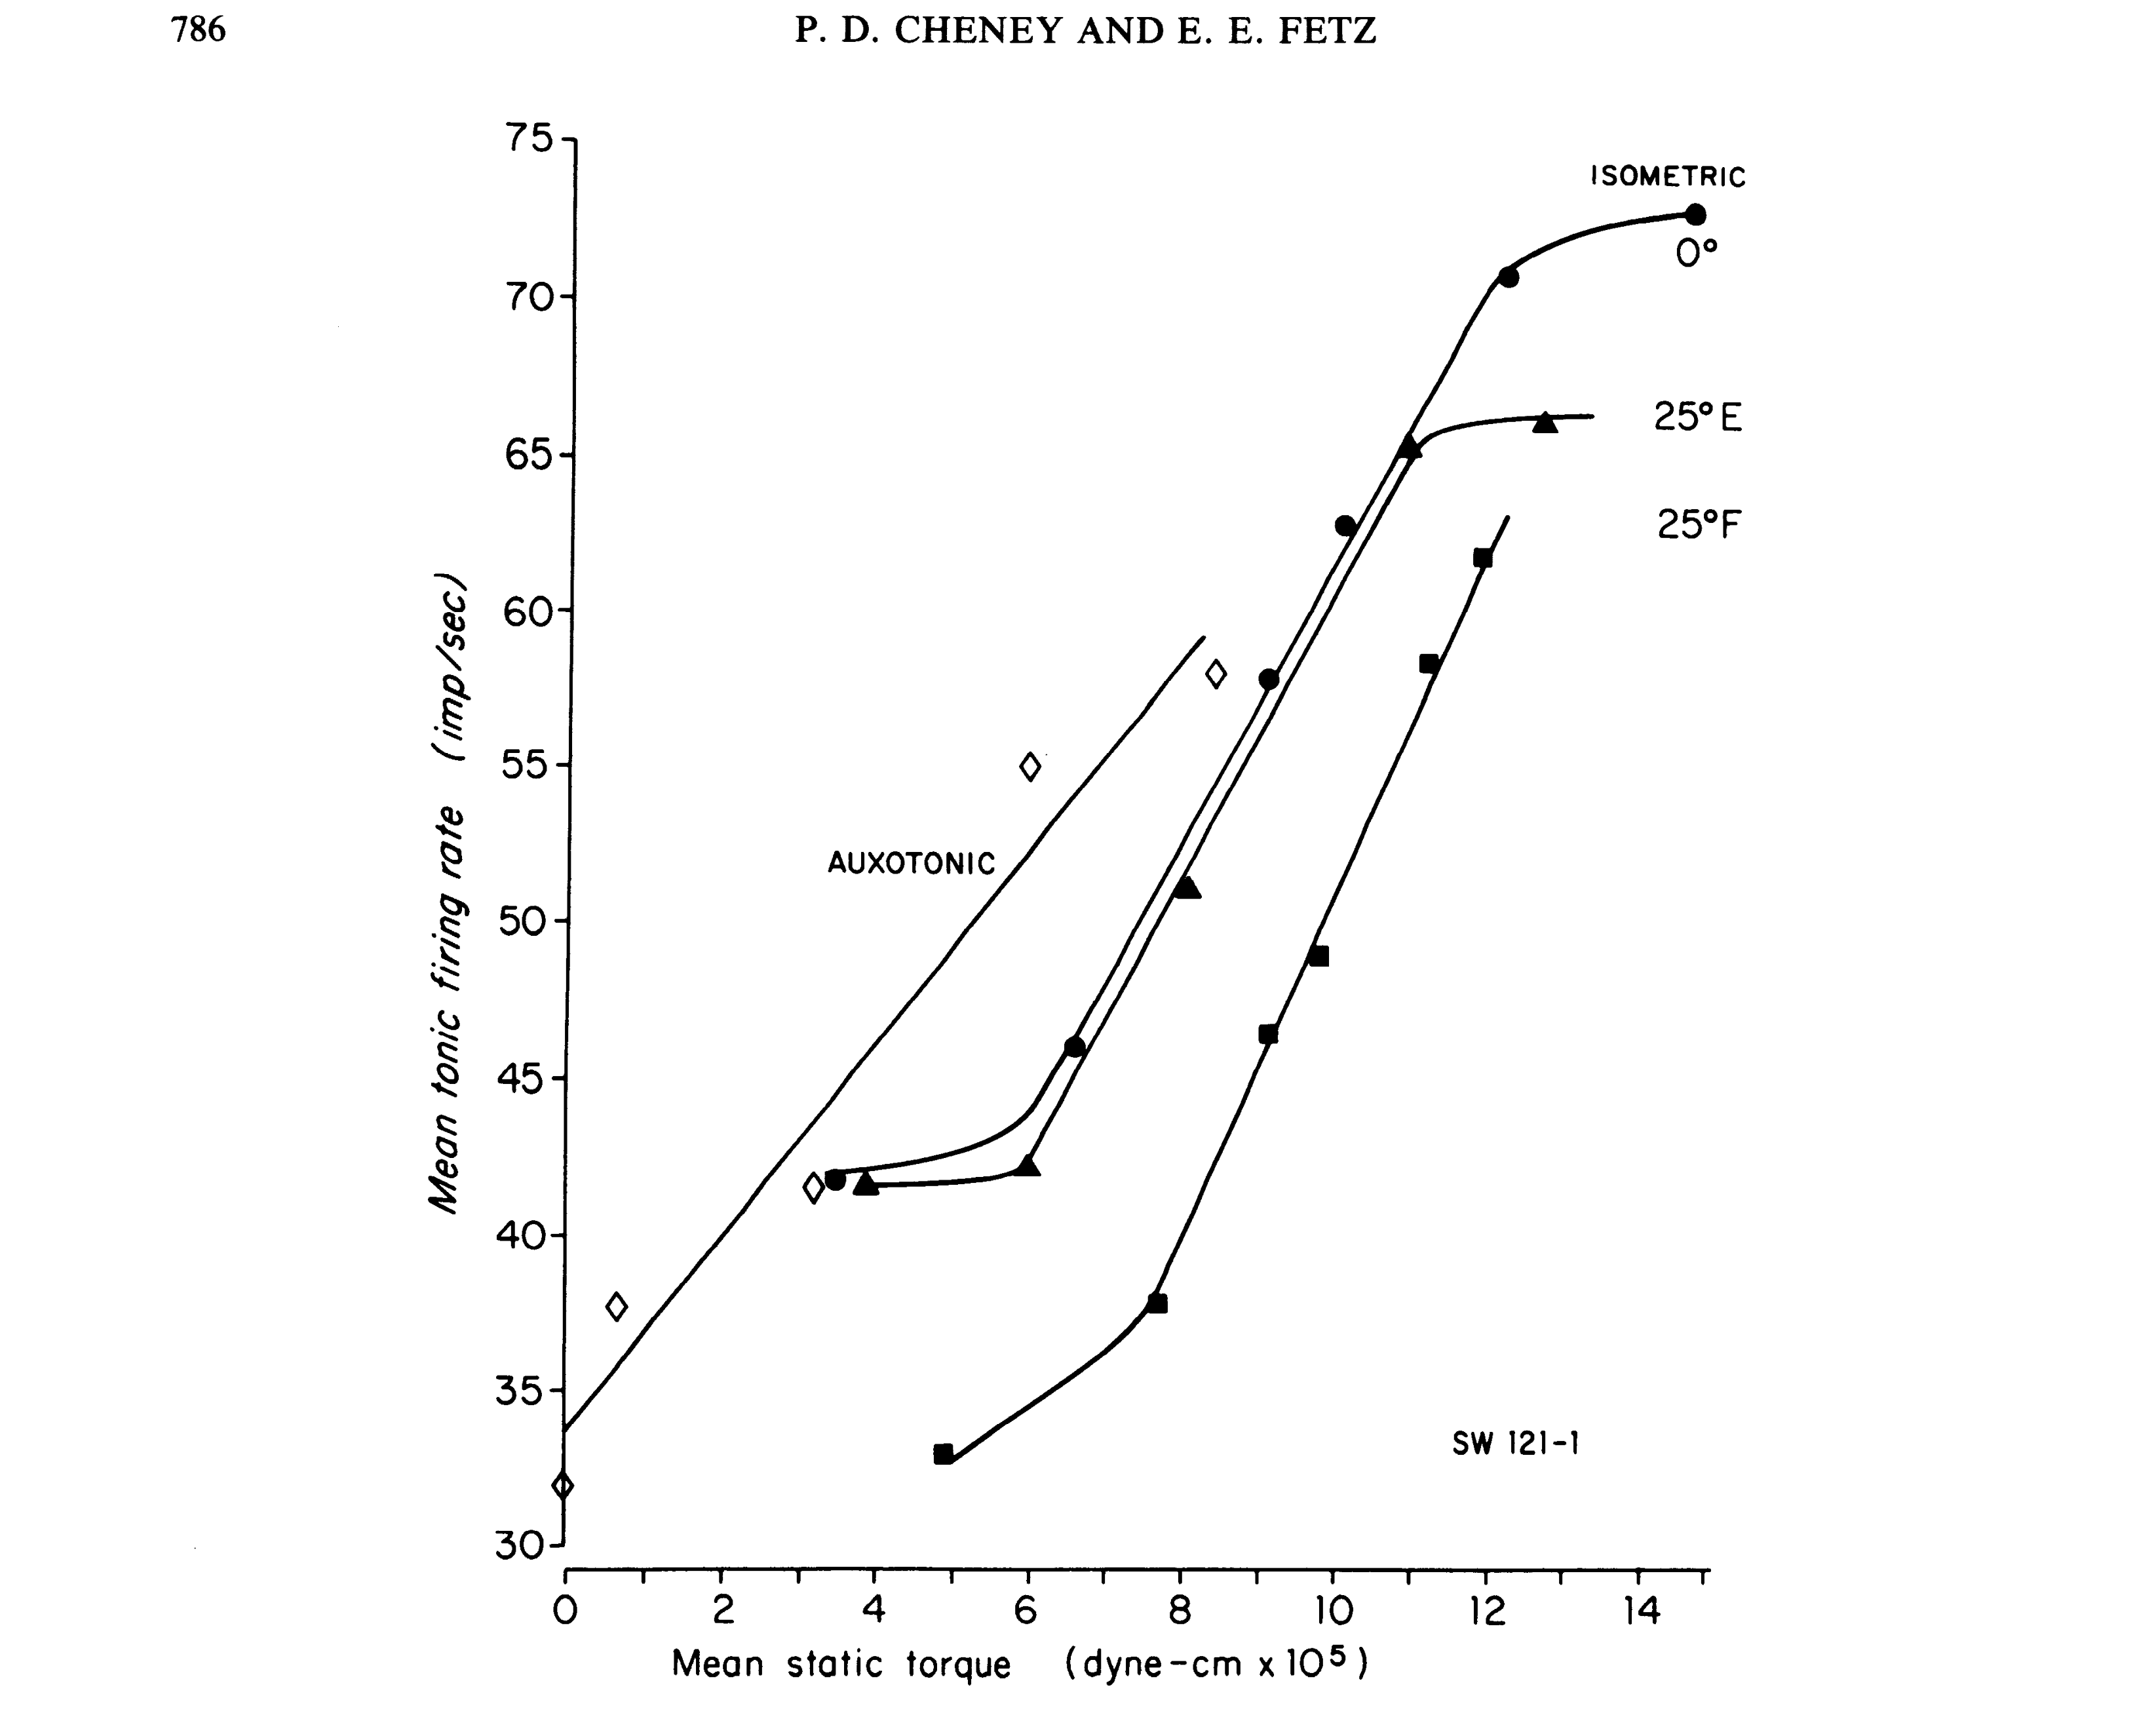
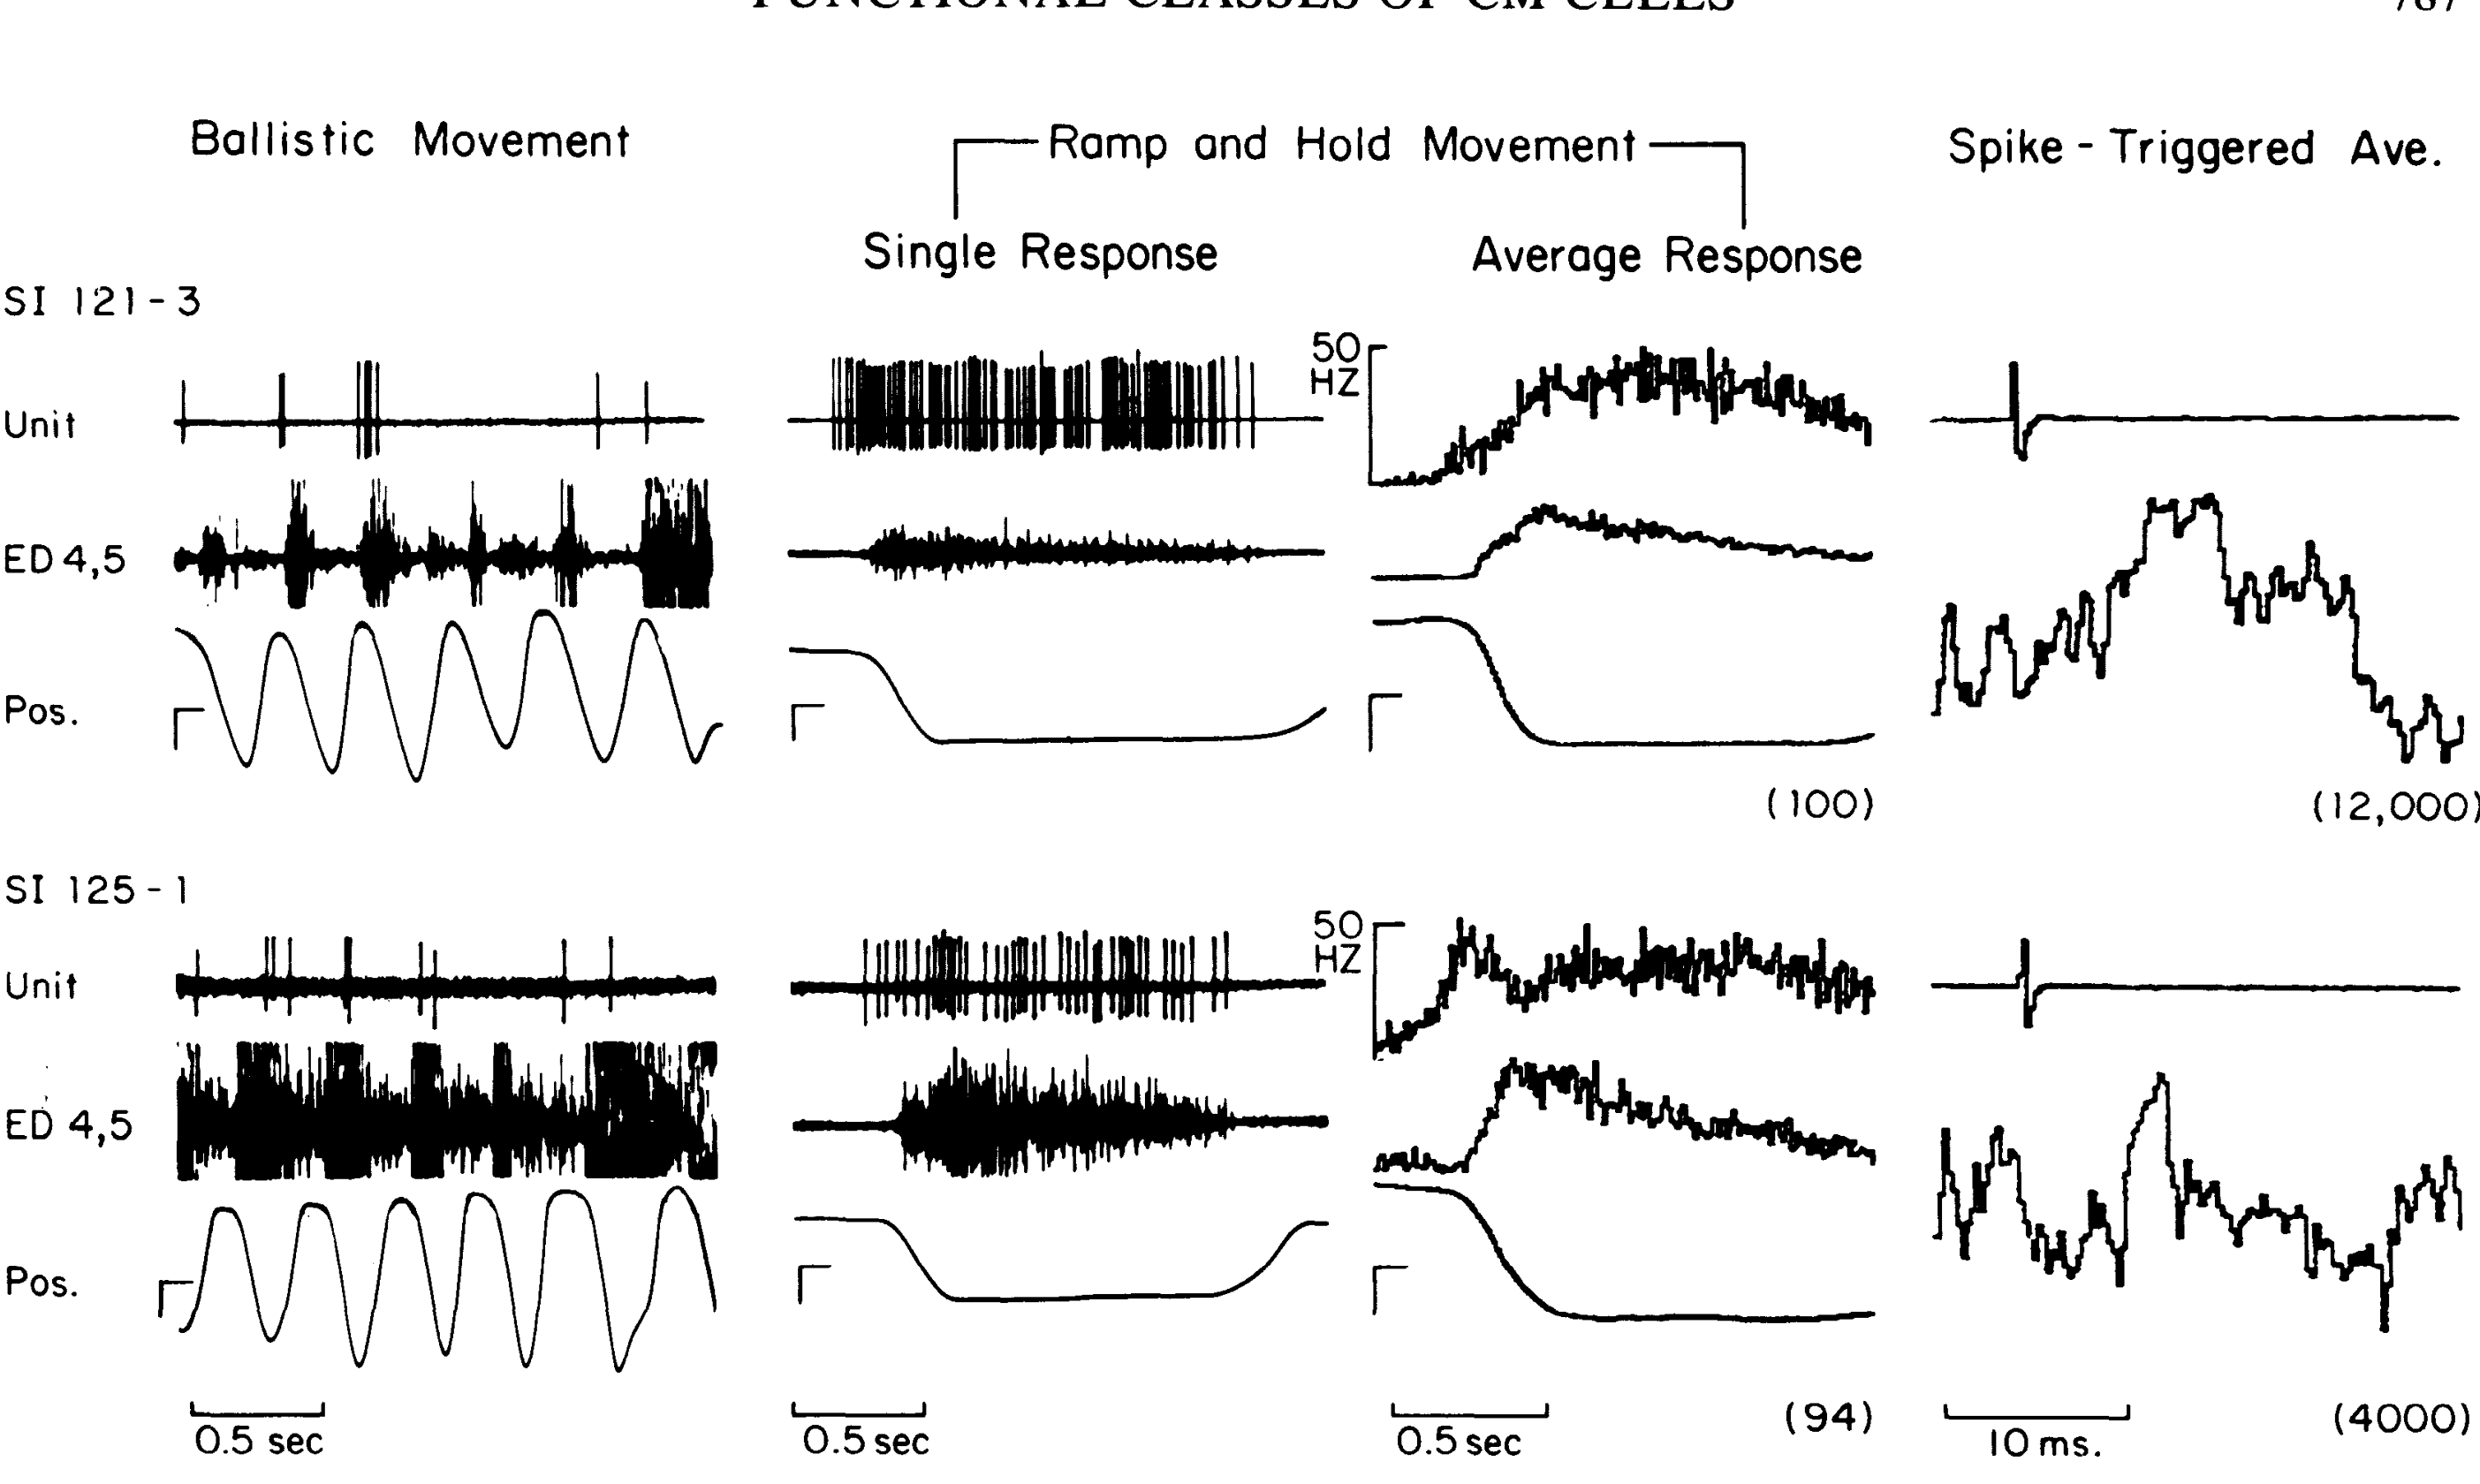
在静态维持期,多数神经元的放电率在全部或大部分测试区间内随主动力矩呈近似线性增加。其中伸肌相关细胞的拟合平均斜率约为 4.8,屈肌相关细胞约为 2.5 impulses·s⁻¹/(10⁵ dyn·cm)。作者讨论了皮层对不同肌群下行支配强度的潜在差异,但也明确指出肢体解剖力学因素的可能干扰。在恒定力矩下改变腕关节角度会引起放电率的显著偏移;此外,部分神经元在快速弹道动作中放电反而明显减弱,进一步明确了静态率—力矩关系的适用边界。
逐图解读
 原文 Fig. 1 · PDF 第 5 页 · 原文图像 · 查看来源
图1 · 四种CM细胞响应形态。 图中上下行区分维持期放电恒定或持续爬升,左右列区分是否存在初始相位发放峰;四个典型范例均来自等长收缩力矩任务。星号标注该 CM 细胞产生 PSF 的对应肌肉。该图呈现了相似任务下神经元动力学形态的多样性,但不能就此断定形态特征完全脱离任务环境而固定不变。
 原文 Fig. 2 · PDF 第 6 页 · 原文图像 · 查看来源
图2 · 等长与弹性负载条件。 左列为等长固定条件(isometric),右列为弹性位移条件(auxotonic)。示例神经元在无位移与伴随位移时均呈现高度一致的初始相位突发与稳态持续放电,印证了力矩轨迹的主导作用;但这并不意味着腕关节位置在所有生理场景下均不产生调节效应。
 原文 Fig. 3 · PDF 第 7 页 · 原文图像 · 查看来源
图3 · CM细胞相对于关联肌肉的活动起点。 直方图采用不同图例填充区分四种功能类型,横轴左侧代表早于目标肌电爆发,右侧代表落后于肌电。具有初始相位的类型平均启动偏早,但整体分布高度重叠,无法单纯依据时序均值推导出严格层级化的离散神经回路。
 原文 Fig. 4 · PDF 第 8 页 · 原文图像 · 查看来源
图4 · 示例细胞的静态与动态率—力矩关系。 静态维持期放电率与起始相位峰值分别绘图,右侧给出代表性出力梯度的试次平均迹线,插图展示其特征性 PSF。维持期放电表现出清晰的近似线性区间,而动态相位峰在高力矩下趋向饱和;在起始相中,力矩幅值与力矩变化率仍呈现共变关系。
 原文 Fig. 5 · PDF 第 9 页 · 原文图像 · 查看来源
图5 · 伸肌相关细胞的保持期率—力矩关系。 14个细胞在所测力矩区间内普遍随主动力矩增大而放电上升,但其募集阈值、增益斜率以及高力矩下的非线性拐点各不相同。右侧列出对应神经元的 PSF 触发图。该样本经过严格的 PSF 检出与任务配合筛选,不能等同于无偏抽样的全部 CM 细胞总体。
 原文 Fig. 6 · PDF 第 10 页 · 原文图像 · 查看来源
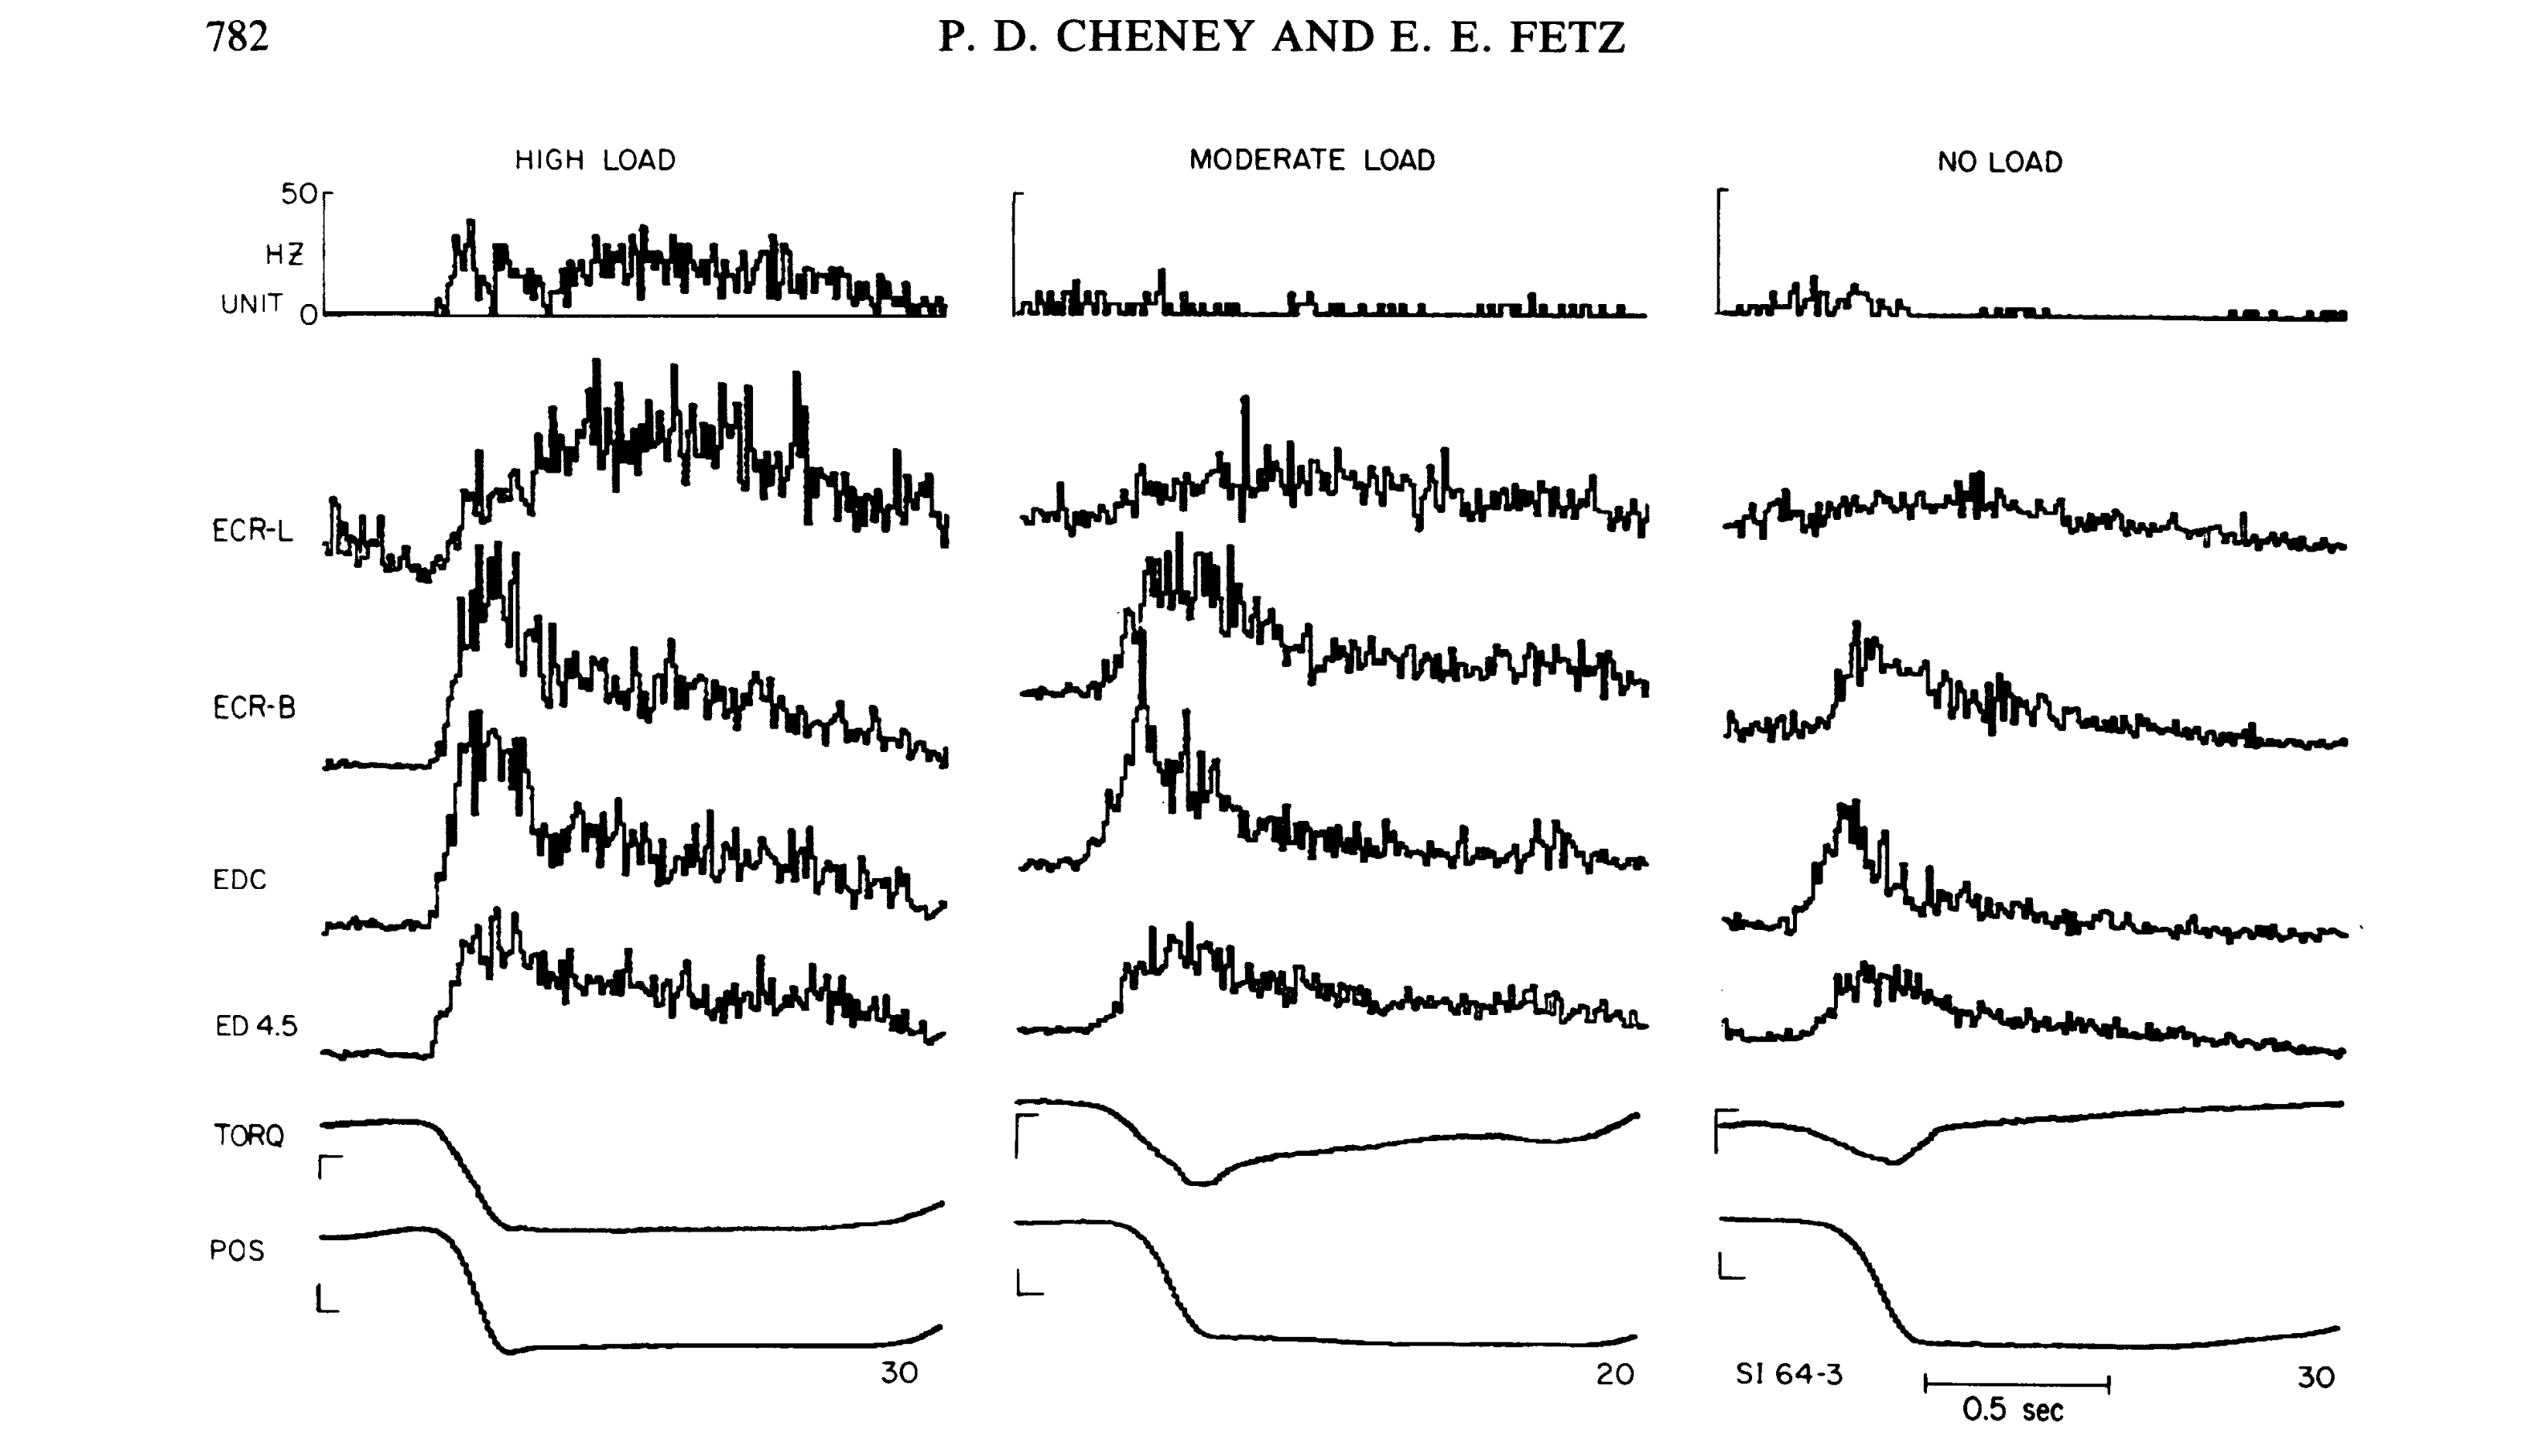
图6 · 较高放电阈值的示例。 从左至右分别展示重负载、中等负载与零负载试次。在轻负载条件下,关联肌肉已表现出稳定的肌电募集,而该皮层细胞的持续放电却近乎沉寂;此例直接说明外周运动单位的募集与单个皮层 CM 细胞的激活并不存在刚性的一一绑定。
 原文 Fig. 7 · PDF 第 11 页 · 原文图像 · 查看来源
图7 · 屈肌相关细胞的率—力矩关系。 11个屈肌相关细胞的放电增益斜率整体上比图5所示的伸肌组更为平缓。虽然在同一实验体系中观察到屈伸不对称性,但由于伸屈肌群的骨骼肌杠杆几何与非皮质脊髓下行输入未作独立分离量化,不能仅凭斜率反推皮层中枢对两群运动神经元的突触权重比例。
 原文 Fig. 8 · PDF 第 13 页 · 原文图像 · 查看来源
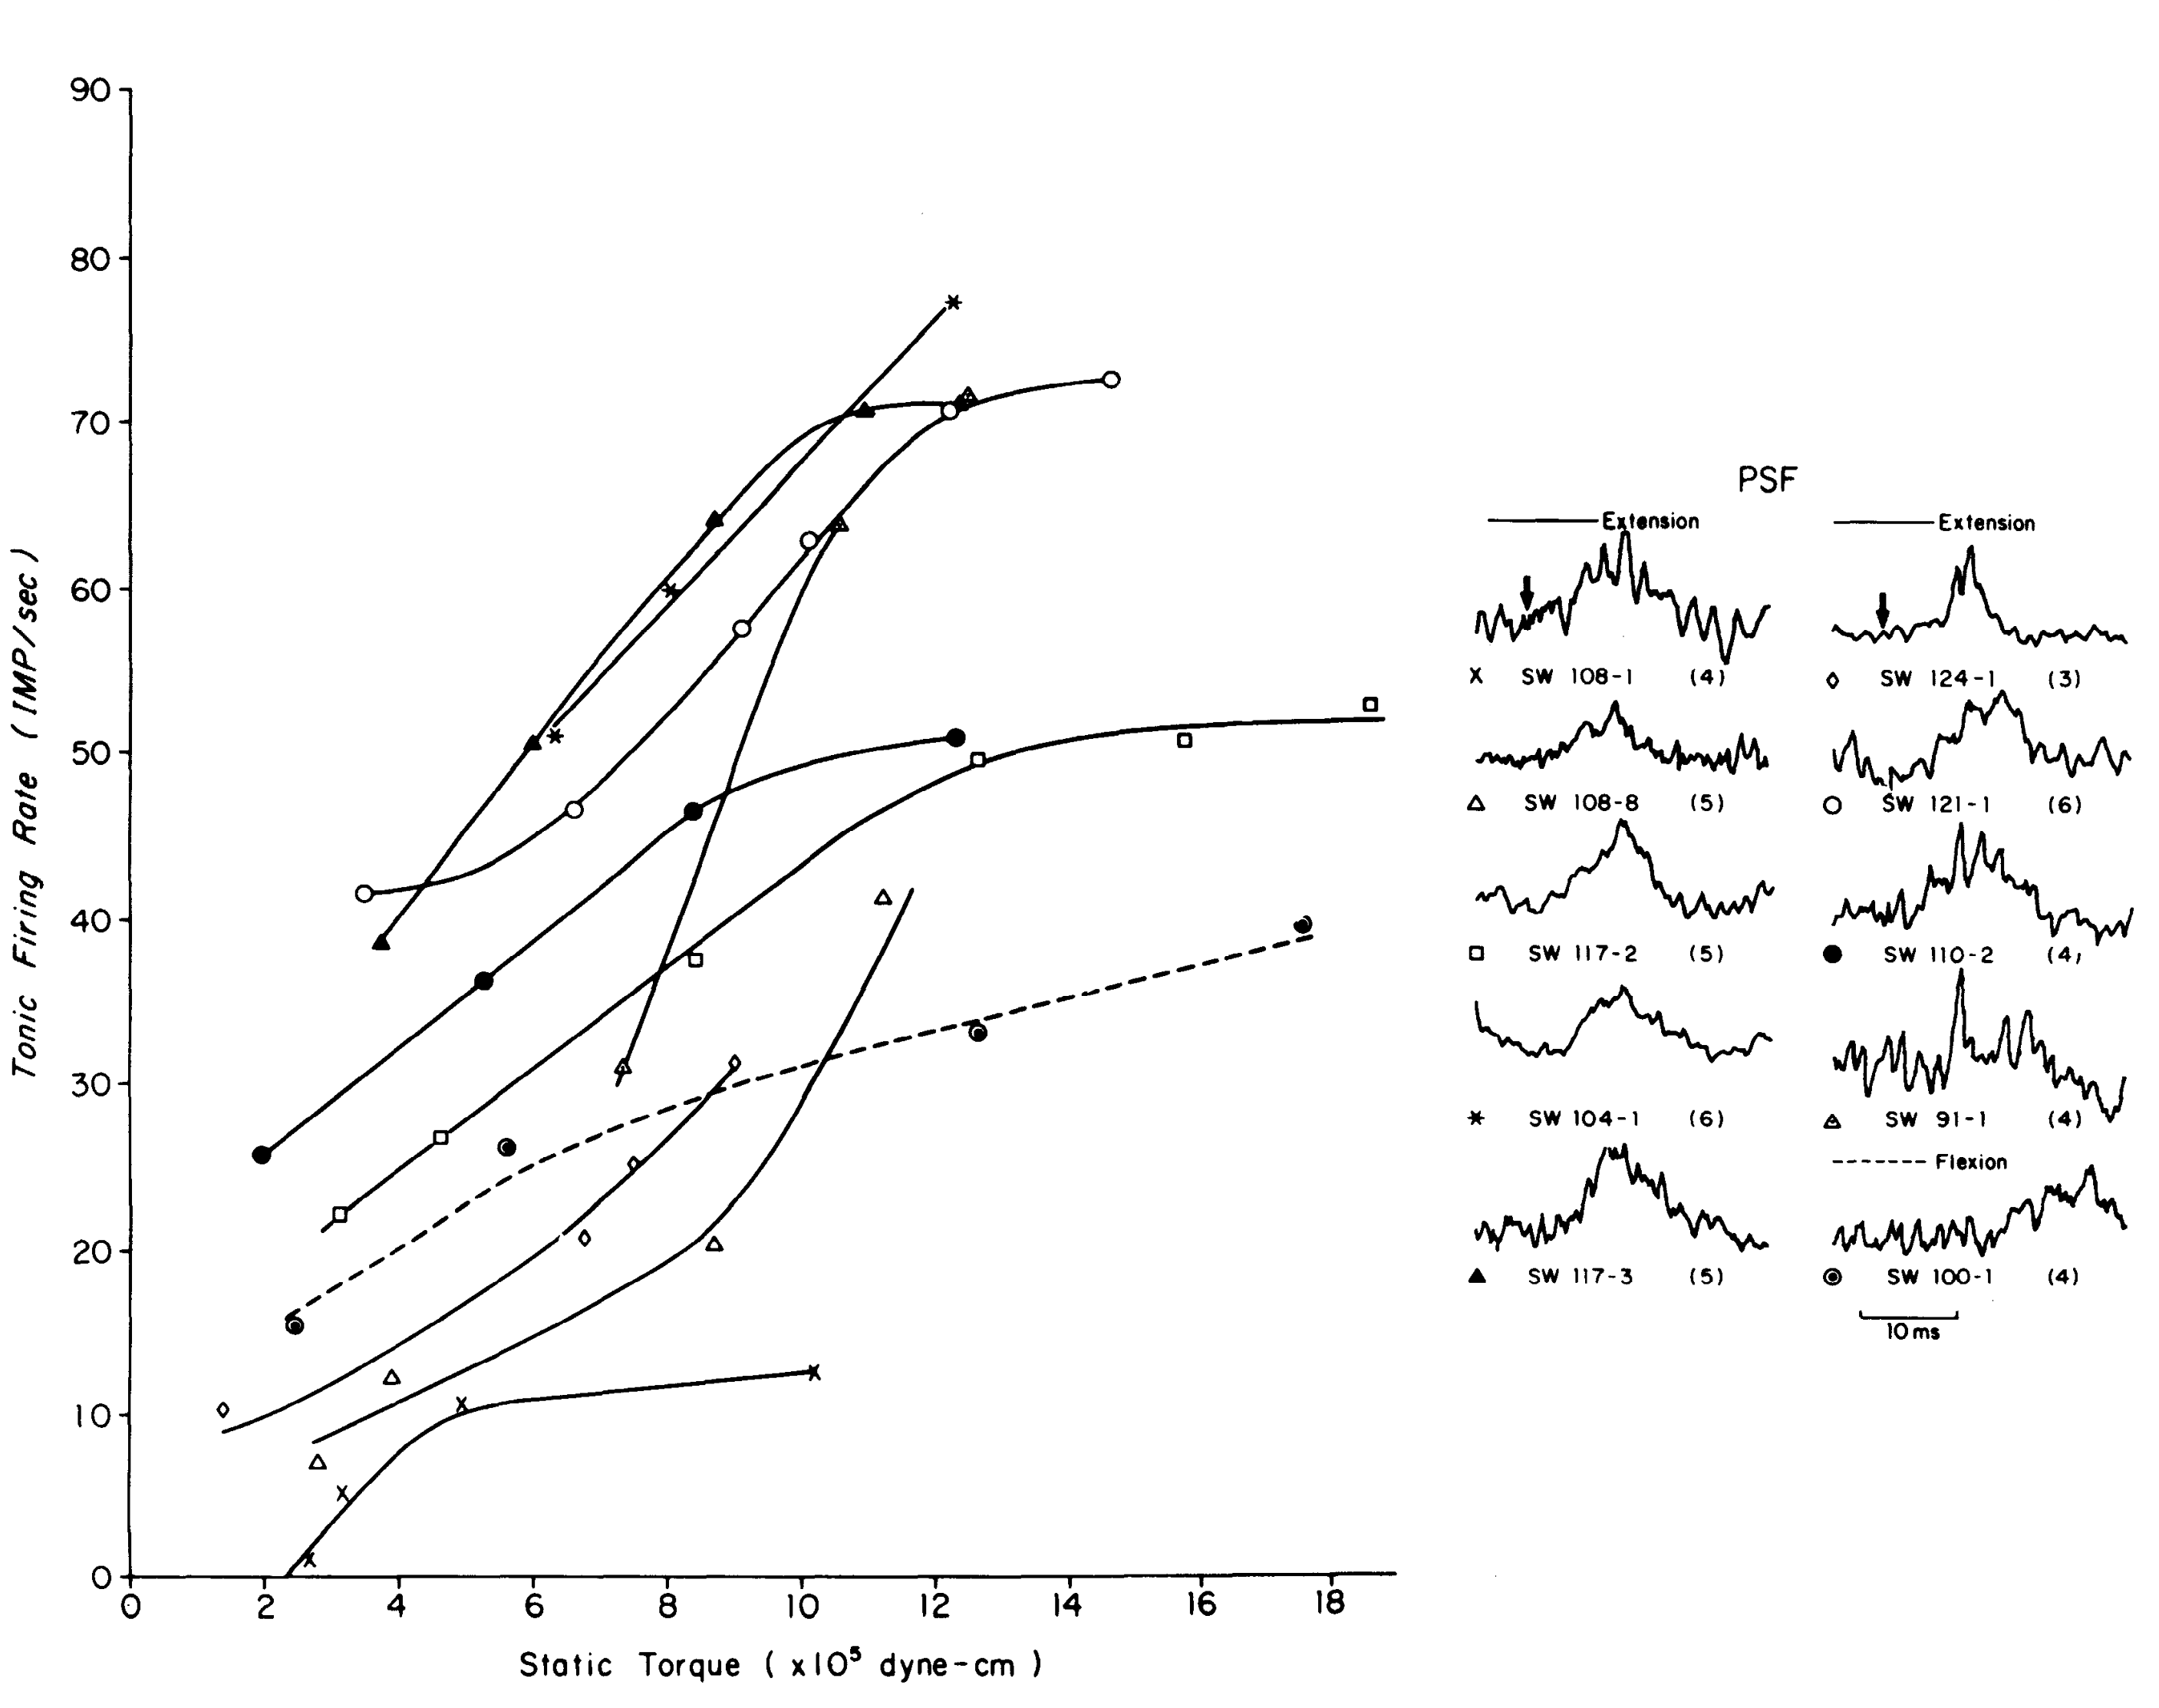
图8 · 等长条件下的率—力矩关系。 即使腕关节被刚性固定、完全剥离运动位移,神经元维持期放电仍清晰地与主动力矩呈正相关。等长收缩与位移运动条件的回归斜率对比未达到统计显著性差异,但这属于等效性推断上的未拒绝,并不构成严格的等效证明,亦不表明力矩是唯一驱动变量。
 原文 Fig. 9 · PDF 第 14 页 · 原文图像 · 查看来源
图9 · 固定力矩下的腕位置效应。 同一神经元在中立位 0°、伸展 25°、屈曲 25° 以及弹性位移条件下展现出彼此分离的率—力矩曲线。需要注意,对于腕前臂伸肌而言,腕关节的主动伸展导致肌纤维生理长度缩短,切勿混淆为“屈曲 25° 使伸肌缩短”。实验曲线证实关节角度引起的被动力学与本体感受输入会显著重塑放电关系,不能简单概括为斜率恒定的刚性平移。
 原文 Fig. 10 · PDF 第 15 页 · 原文图像 · 查看来源
图10 · 快速与受控运动中的两个示例细胞。 上下两部分别代表两个记录神经元;从左至右依次给出弹道式自发摆动、阶梯任务单试次、试次平均反应及肌电 STA。在快速弹道动作中,外周肌肉虽剧烈放电,这两个 CM 细胞的脉冲发放却相对微弱。这一对照提示中枢对不同动态尺度的运动可能采取差异化调控,但仅凭两个案例尚不足以确立互斥独立的快慢运动控制神经回路。
讨论与解读边界
本文通过放电后易化(PSF)严格界定 CM 细胞,使放电活动与外周肌肉靶标建立了清晰的功能关联。PSF 证明了短潜伏期的皮层肌肉易化效应,但不能替代针对运动神经元的单突触 EPSP 胞内测量。文中所区分的四种放电模式是特定受控任务中的时间动力学表征,未必对应解剖上固定隔离的细胞谱系。
在实验记录中“未检测到纯相位 CM 细胞”,不能等同于“纯相位放电神经元不参与运动输出”;同样,伸肌与屈肌细胞力矩增益斜率的统计差异,亦无法单独量化大脑对伸屈运动神经元池的突触连接密度比例。此外,检测到的非零募集阈值神经元数量偏少,可能受到电极搜寻阶段的背景负载门槛、PSF 检出信噪比及测试力矩范围的共同筛选偏差。快速运动下的放电脱耦取自有限的试次对比,主要价值在于启示后续动力学探索,尚不能断言存在两套彼此割裂的动作控制中枢。
思考问题
- 若在实验中成倍扩展前臂肌肉肌电记录通道并增加尖峰累加数量,原先未检出 PSF 的纯相位放电神经元中,会有多大比例展现出确凿的肌电易化效应?
- 在全面控制静态腕力矩、肌纤维绝对长度与动态角速度后,伸屈肌相关细胞的斜率不对称性以及快慢运动间的放电脱耦现象还能在多大程度上保留?