F03 · A neural network that finds a naturalistic solution for the production of muscle activity
David Sussillo, Mark M. Churchland, Matthew T. Kaufman & Krishna V. Shenoy (2015) Nature Neuroscience, 18, 1025–1033. doi:10.1038/nn.4042
训练RNN生成实测肌电时,鼓励简单动力学的正则化可产生更接近运动皮层的群体响应。这提供一种生成性解释,但不证明大脑采用同样训练规则或唯一网络机制。
核对依据:Zotero 条目 · 本地全文。本轮核对原文方法、关键结果、解释边界及所引主图;更新于2026-09-20。图注页码采用本地PDF文件页序,版本与未解决问题见正文及审查记录。
背景
运动皮层群体在伸手过程中呈现出旋转等有组织的时间结构,但这引出一个更深的问题:这些结构因何形成,与生成肌肉活动究竟有何关联?降维分析能描述神经状态的演化,却无法单凭轨迹形态说明网络为何采取这种解。将放电拟合为运动方向、速度或肌电的函数,固然可以检验相关信息;但让网络实际生成目标肌电,则把关注点引向完成输出任务所需的内部计算。若相同的输出要求能自然诱导出类似皮层的群体组织,动力学假说便获得了生成层面的支持。不过,即便任务输出拟合良好,也无法直接保证内部机制贴近生物系统,因为不同网络完全可能以相异的内部活动产生一致的输出。
研究关注的核心缺口,正是输出正确性与内部解相似性之间的落差。递归神经网络具备充裕的自由度,既能形成规律且相对简练的动态过程,也可能借助杂乱活动拟合同一组肌电曲线。因此,研究必须在同一目标下比对不同约束催生的解,而不能止步于展示单个成功网络。作者将鼓励简练动力学的正则化设为可操纵变量,检验此类约束是否会改变单元响应与群体时间结构,并借助模型中已知的连接权重解析其演化机制。由此,模型不仅承担曲线拟合任务,更成为检验“何种约束足以产生目标结构”的受控对象;当然,其结论仍须与真实神经回路的识别严格区分。
该研究使用猴延迟伸手时的实测肌电训练网络,再将内部活动与皮层记录比对。训练目标只要求生成肌电,并未强求逐时复制单个神经元;但模型的条件输入提取自真实的准备期神经活动,因此这种比对并非完全独立于神经数据。正则化与未正则化网络均能生成合适的肌电,但前者的群体模式显著更贴近皮层记录,使得任务约束之外的内部组织原则成为解释关键。模型中的不动点与衰减振荡模式提供了一种可解析的计算实现,但这并非在真实皮层中直接测得的结构。此外,主模型未包含完整手臂动力学与真实感觉反馈,在既有条件上的拟合也无法替代新动作推广或闭环扰动检验。这项工作提出的是一种受数据约束的可行生成机制,而非大脑训练规则、唯一网络解或局部自主性的定论。
研究思路
在相同肌电输出目标下比对有无正则化的网络,结合单元响应、jPCA、CCA及已知连接下的动力学分析,检验内部解的系统差异。
方法
两只猴在27种延迟伸手条件下的运动皮层记录与7或8路肌电。RNN包含300个单元,六维条件输入来自真实准备期活动的PCA投影,外加条件无关的保持(hold)信号。训练目标为肌电,而非逐时神经响应;但因输入端使用了神经数据,不能视作完全独立于神经记录的前向预测。
正则化项约束输入输出权重、活动幅度以及递归项的局部变化。主模型未引入真实感觉反馈或完整手臂动力学;分析集中于对已有27种条件的拟合与群体模式匹配,而非新动作下的闭环行为验证。
主要结果
两类网络均能拟合肌电,所报告的归一化误差在猴J为7%、猴N为3%,但内部响应差异显著。正则化网络的群体旋转与时间模式与皮层记录更为接近。
以猴J主图为例,旋转线性拟合R²在神经数据中为0.60、正则化模型中为0.61;前十个CCA典型变量的平均相关为0.74,高于所测对照组。由于CCA会主动搜寻最相关投影,该数值不能等同于单神经元的预测准确率或独立测试集泛化表现。
在训练后的正则化模型内部,不动点附近的少数衰减振荡模式主导并组织了输出,对施加的输入与连接扰动表现出一定稳健性。这些不动点与连接机制源于模型内部解析,未在真实皮层中直接观测确认。
逐图解读
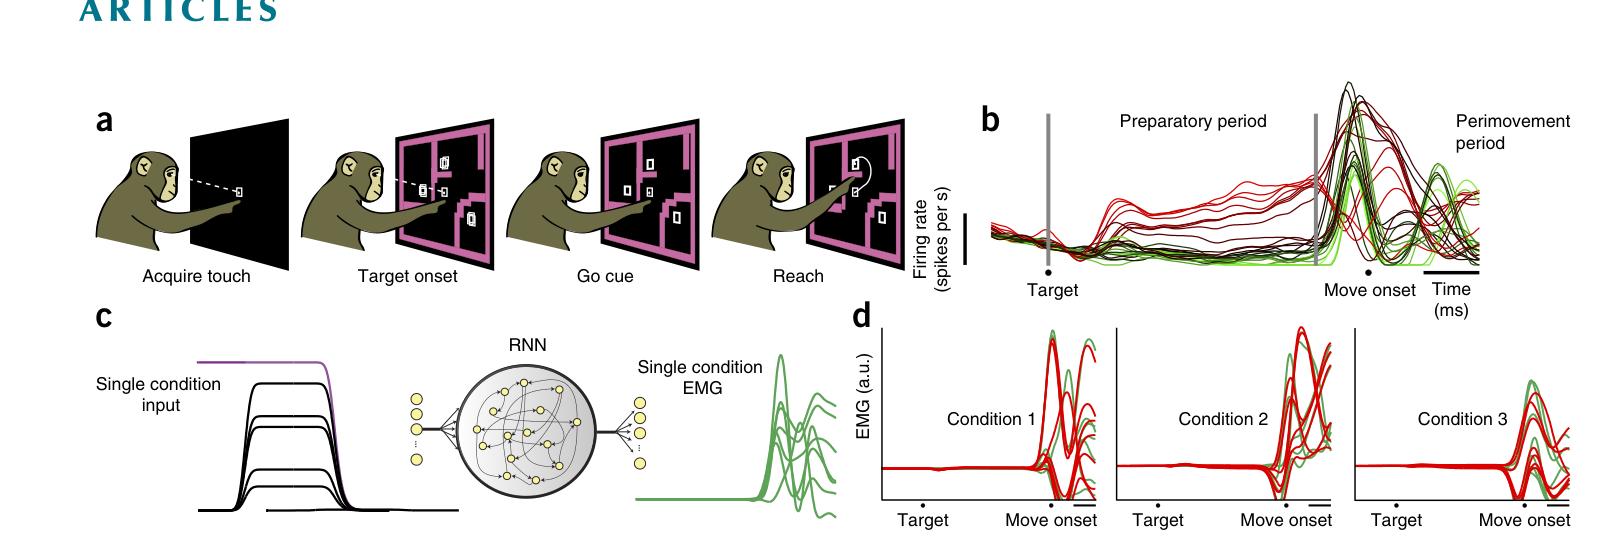 原文 Fig. 1 · PDF 第 2 页 · 原文图像 · 查看来源
图1 · 数据任务与网络任务。 a/b为猴任务和记录,c/d为网络输入及肌电拟合。模型输入含神经准备信息。
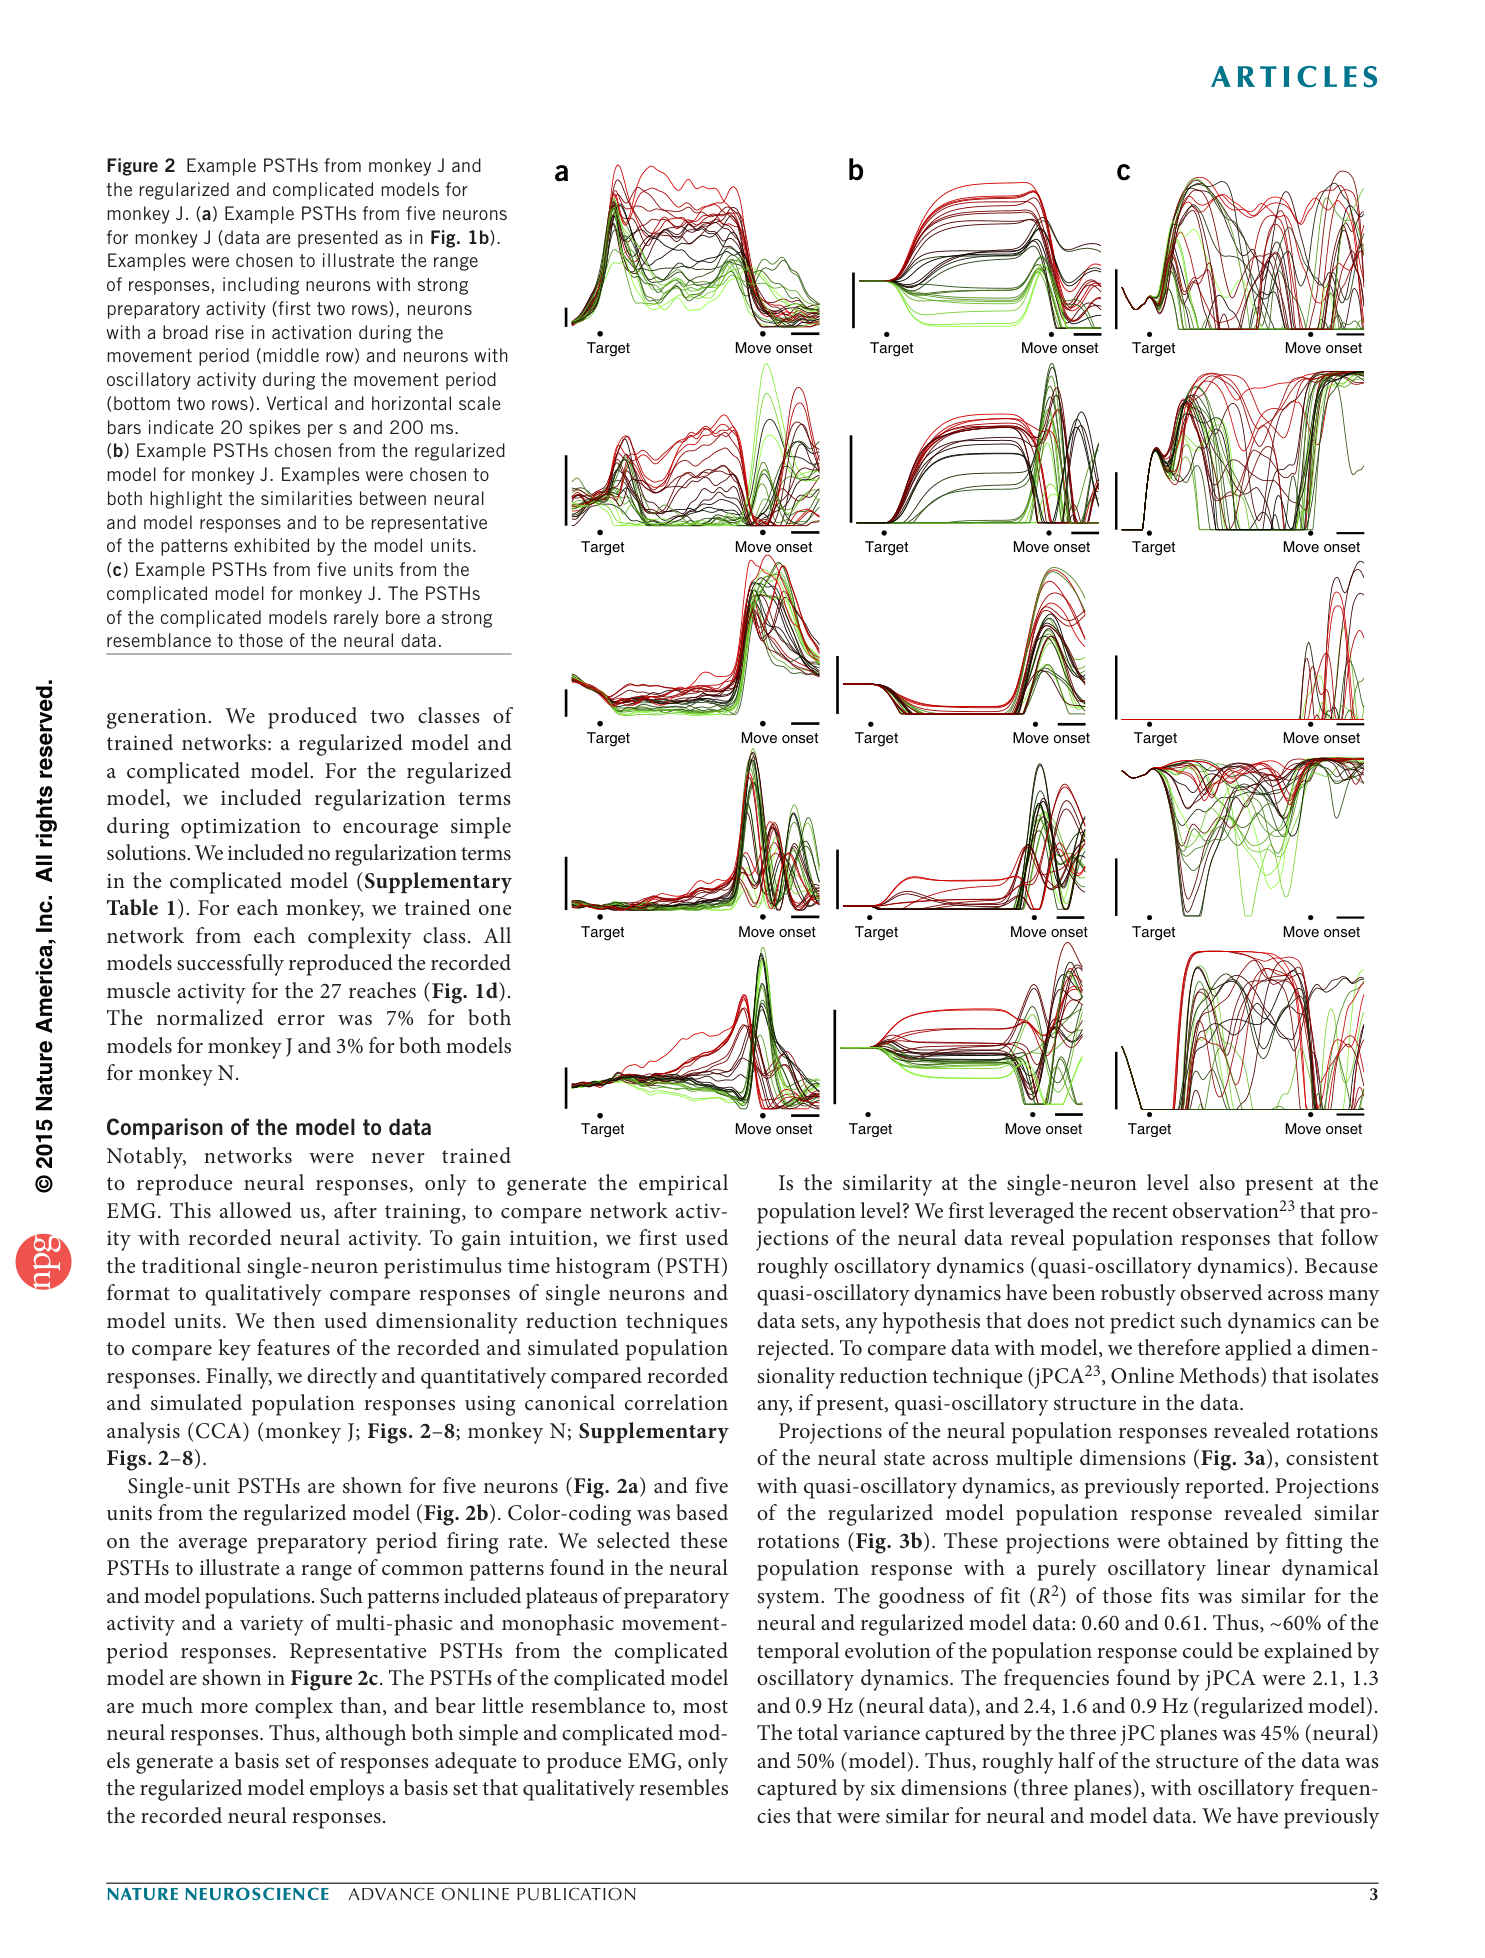 原文 Fig. 2 · PDF 第 3 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图2 · 示例响应。 三列为记录、正则化网络及复杂网络;选择的示例说明形态差异,不替代全群体统计。
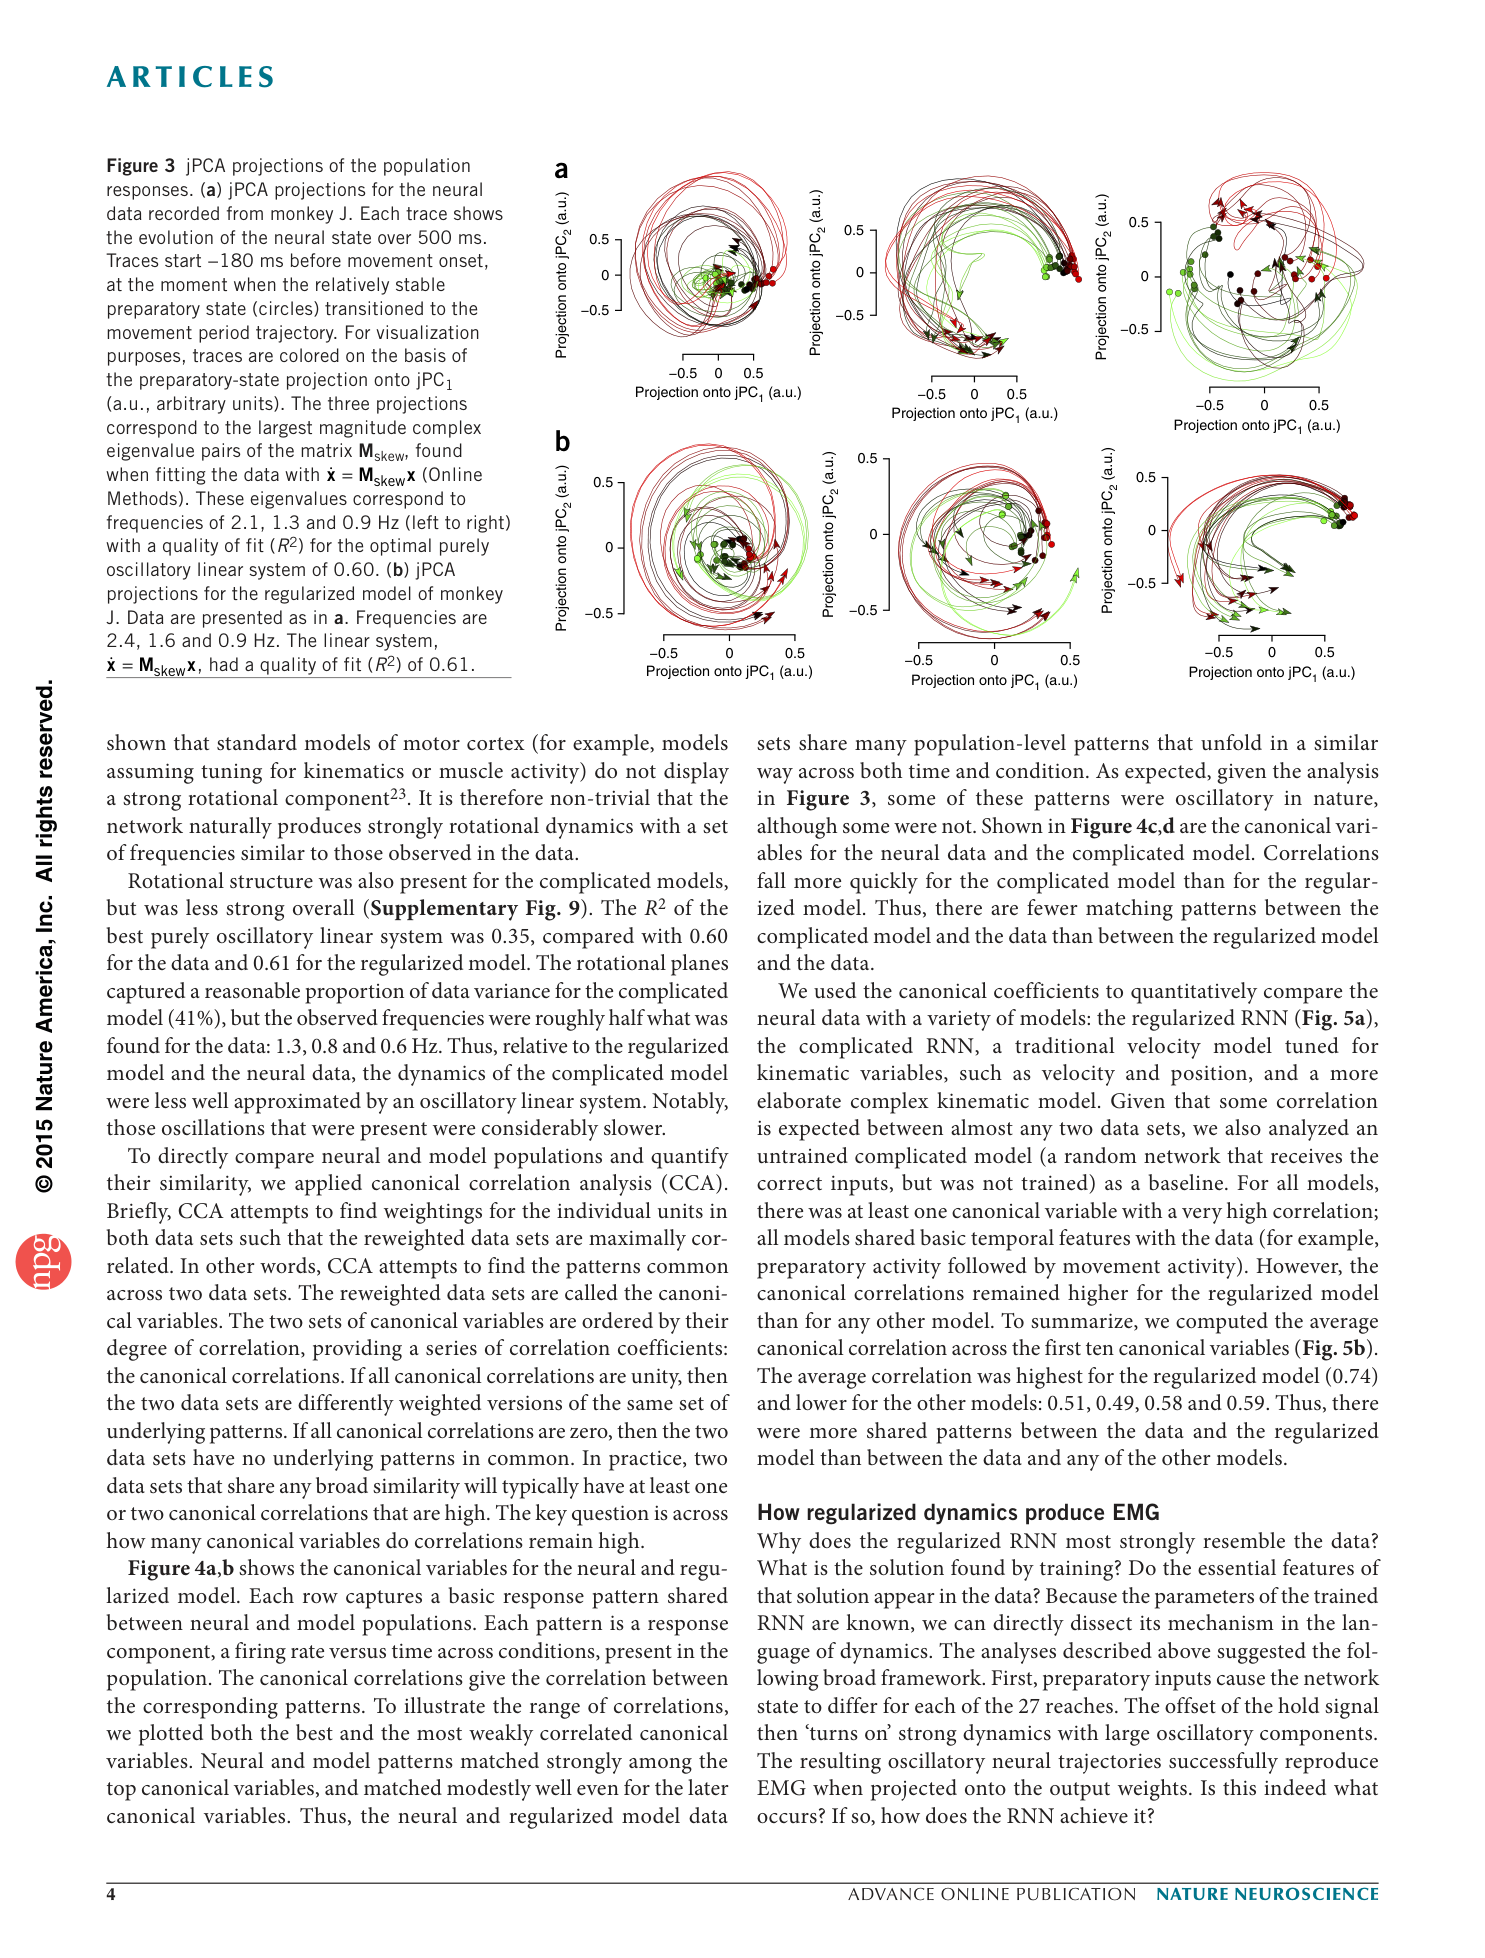 原文 Fig. 3 · PDF 第 4 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图3 · jPCA比较。 上行为猴J,下行为正则化网络。旋转拟合与捕获方差是不同指标,轴与时间窗须保留。
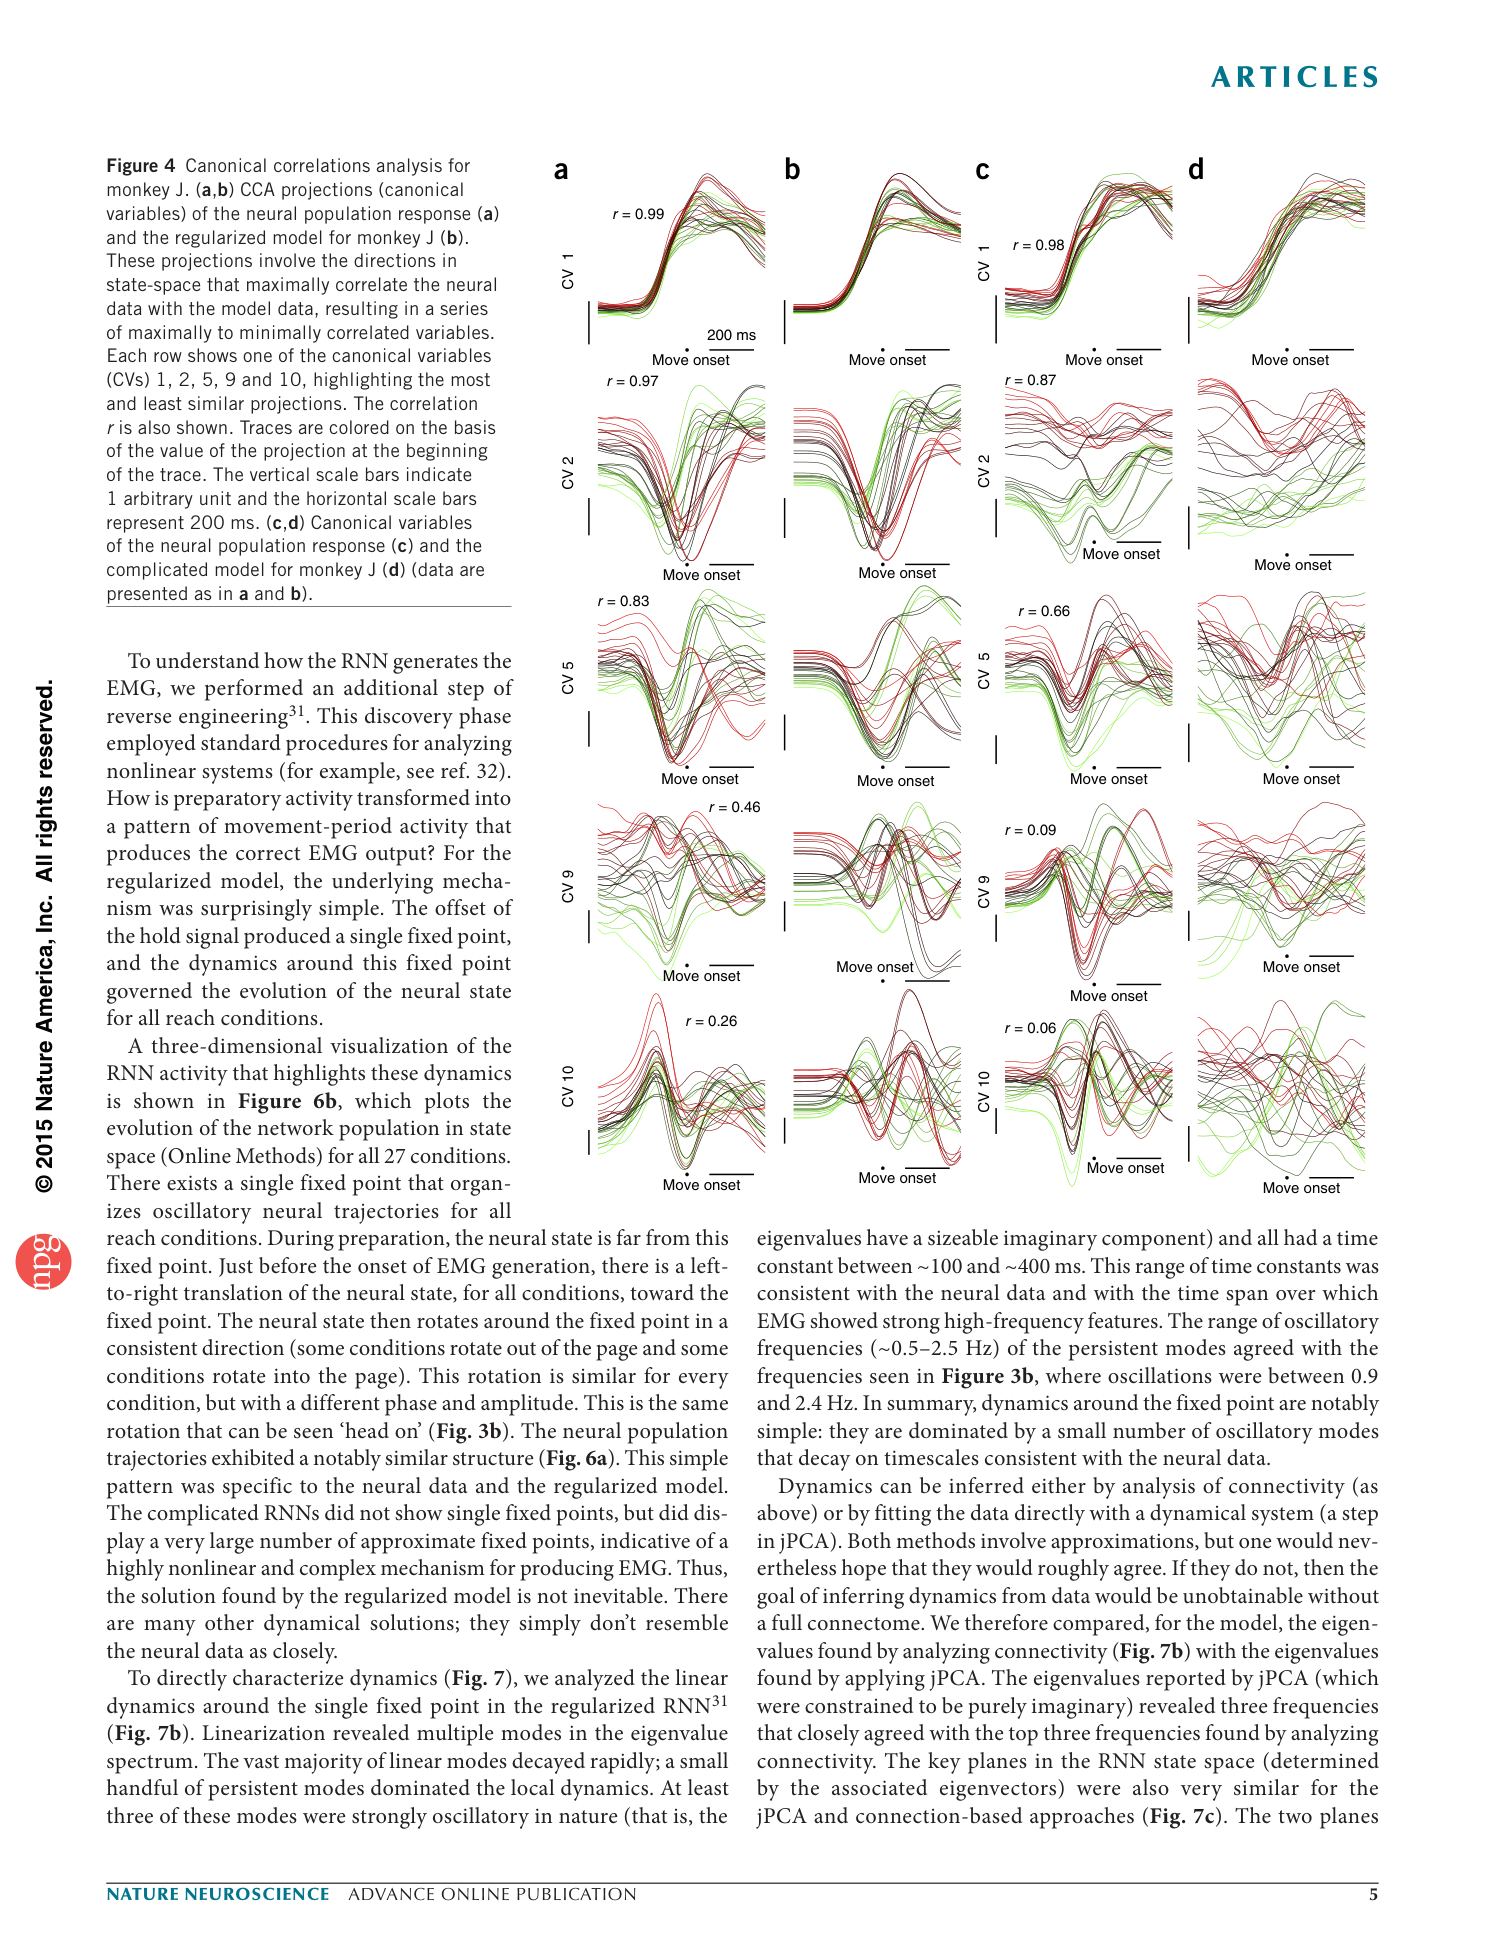 原文 Fig. 4 · PDF 第 5 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图4 · CCA共同模式。 比较各模型与数据经最优线性投影后的相似性;不是同一细胞的预测曲线。
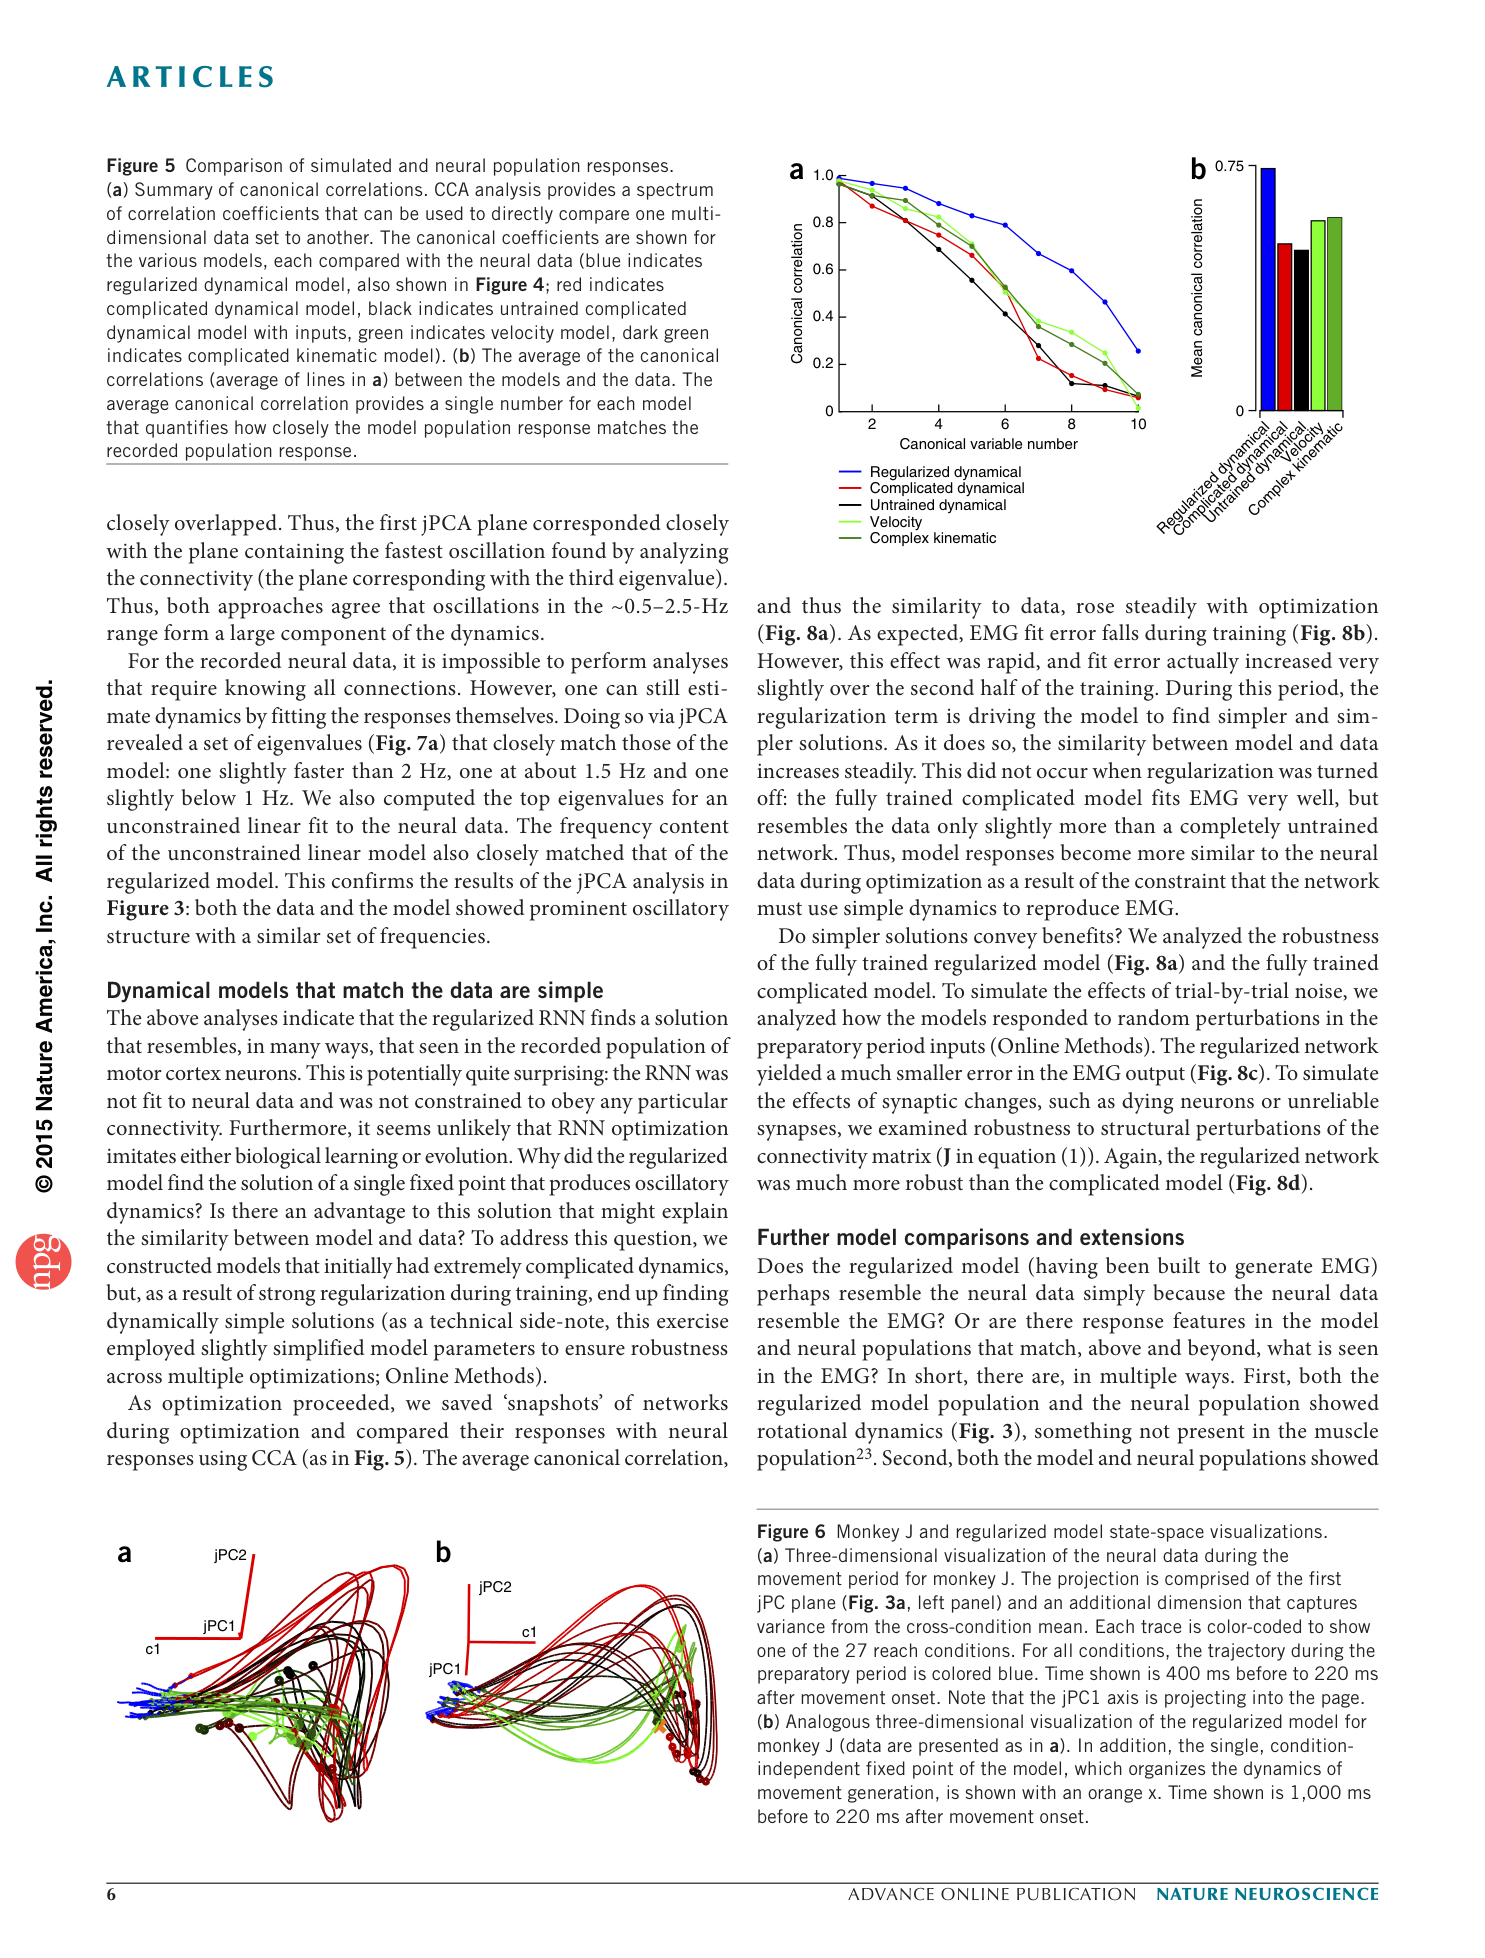 原文 Fig. 5 · PDF 第 6 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图5 · 多模型CCA汇总。 a为各典型变量,b为十变量均值。优势限定于所比较模型及该分析。
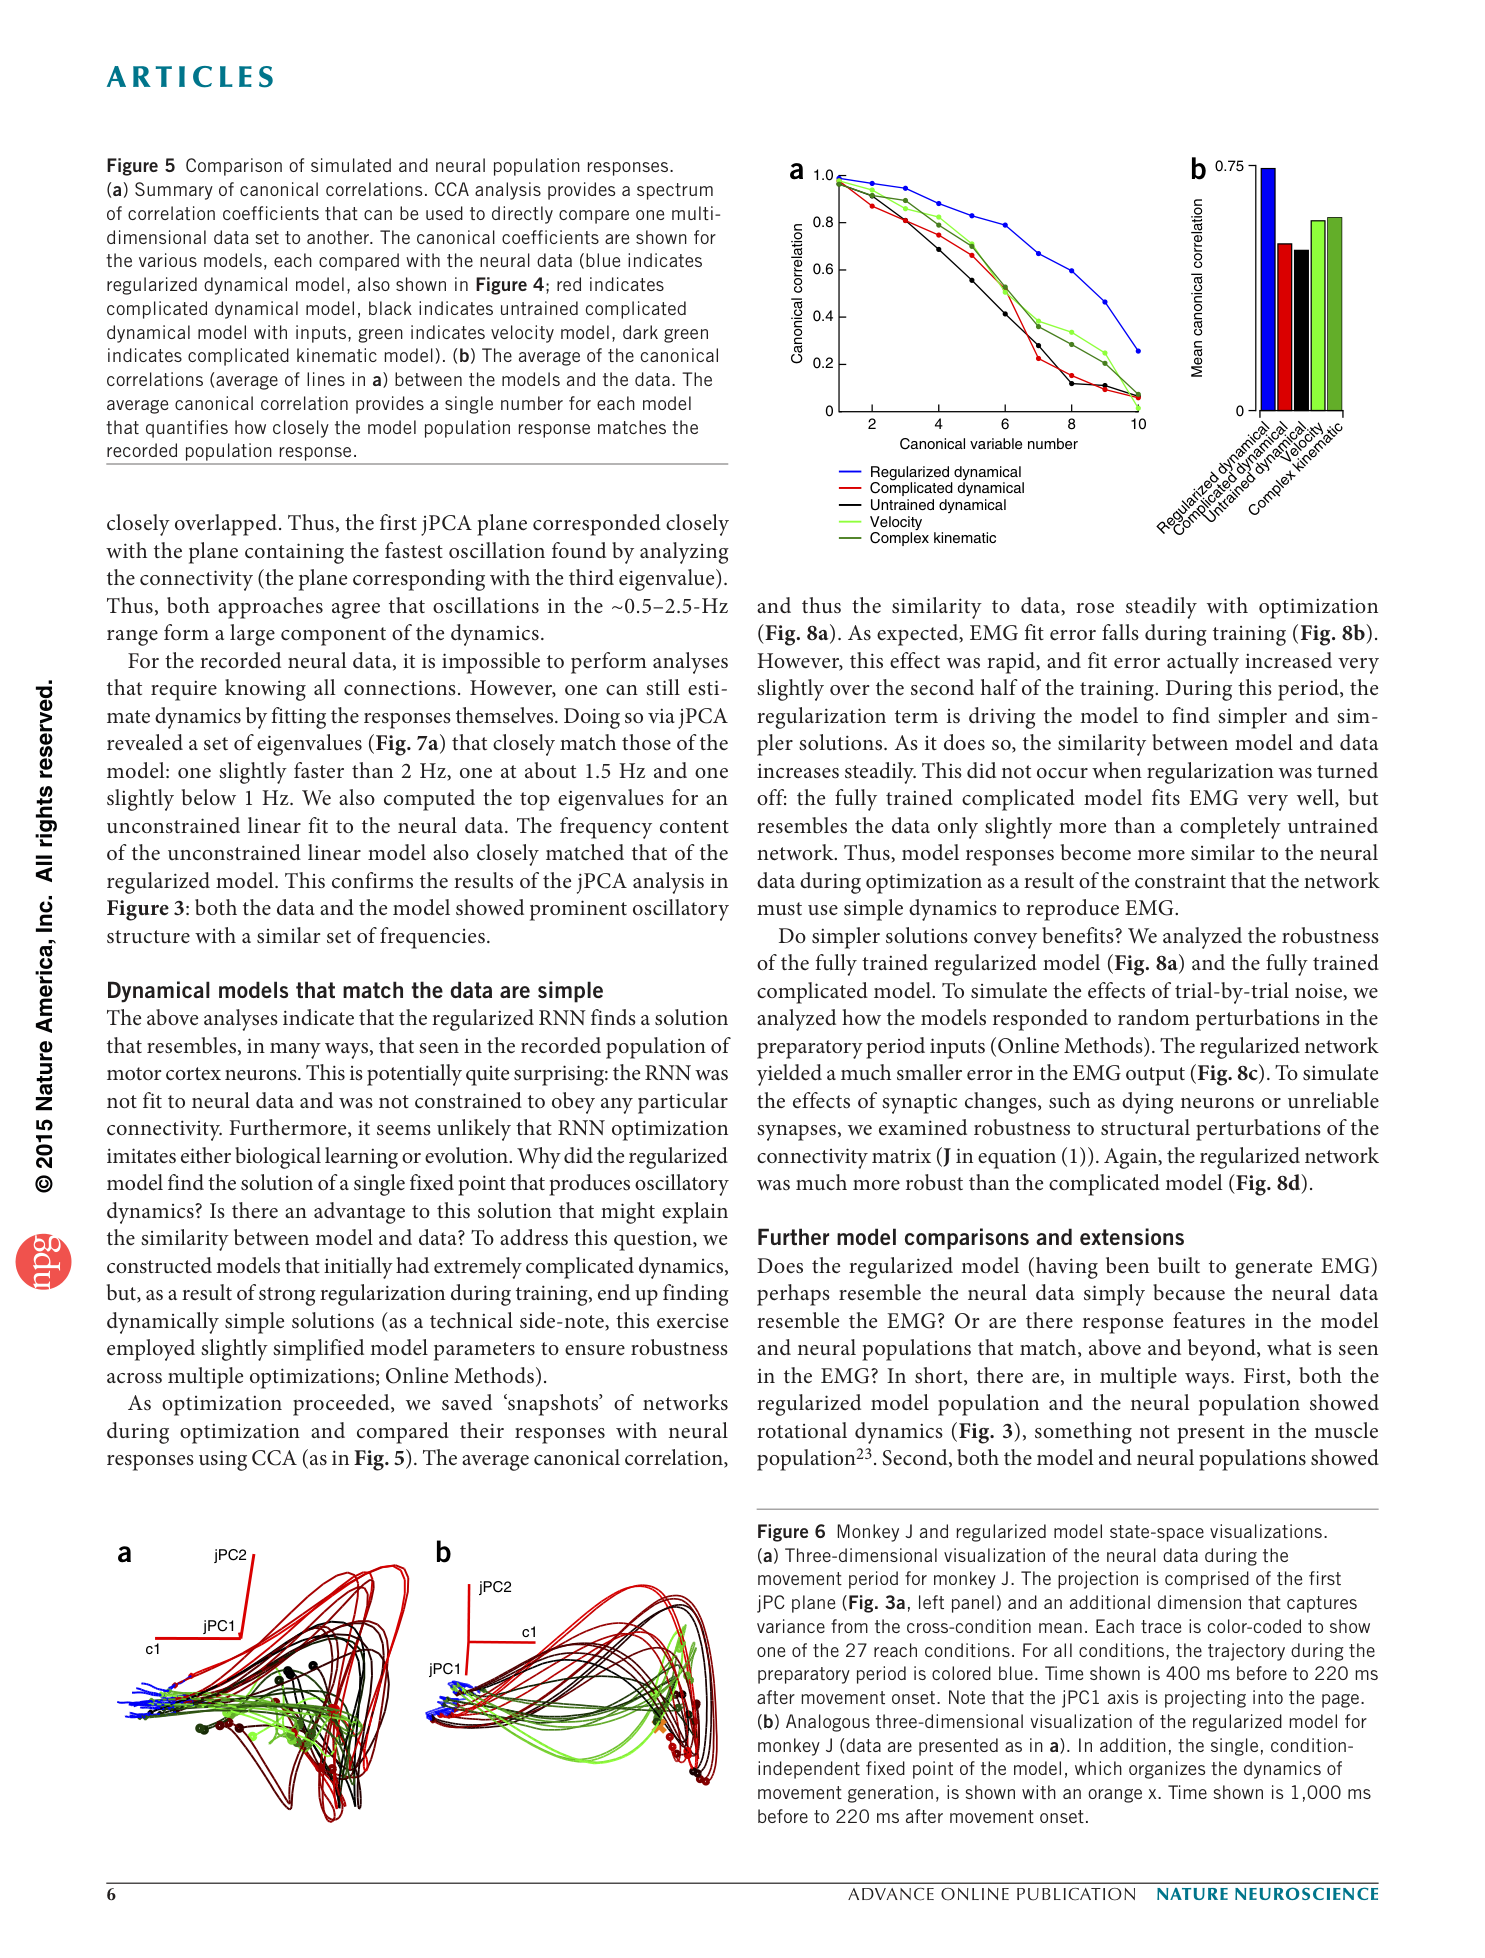 原文 Fig. 6 · PDF 第 6 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图6 · 群体三维轨迹。 a为神经记录,b为网络;网络定点可由方程求解,记录轨迹相似不等于直接测出皮层定点。
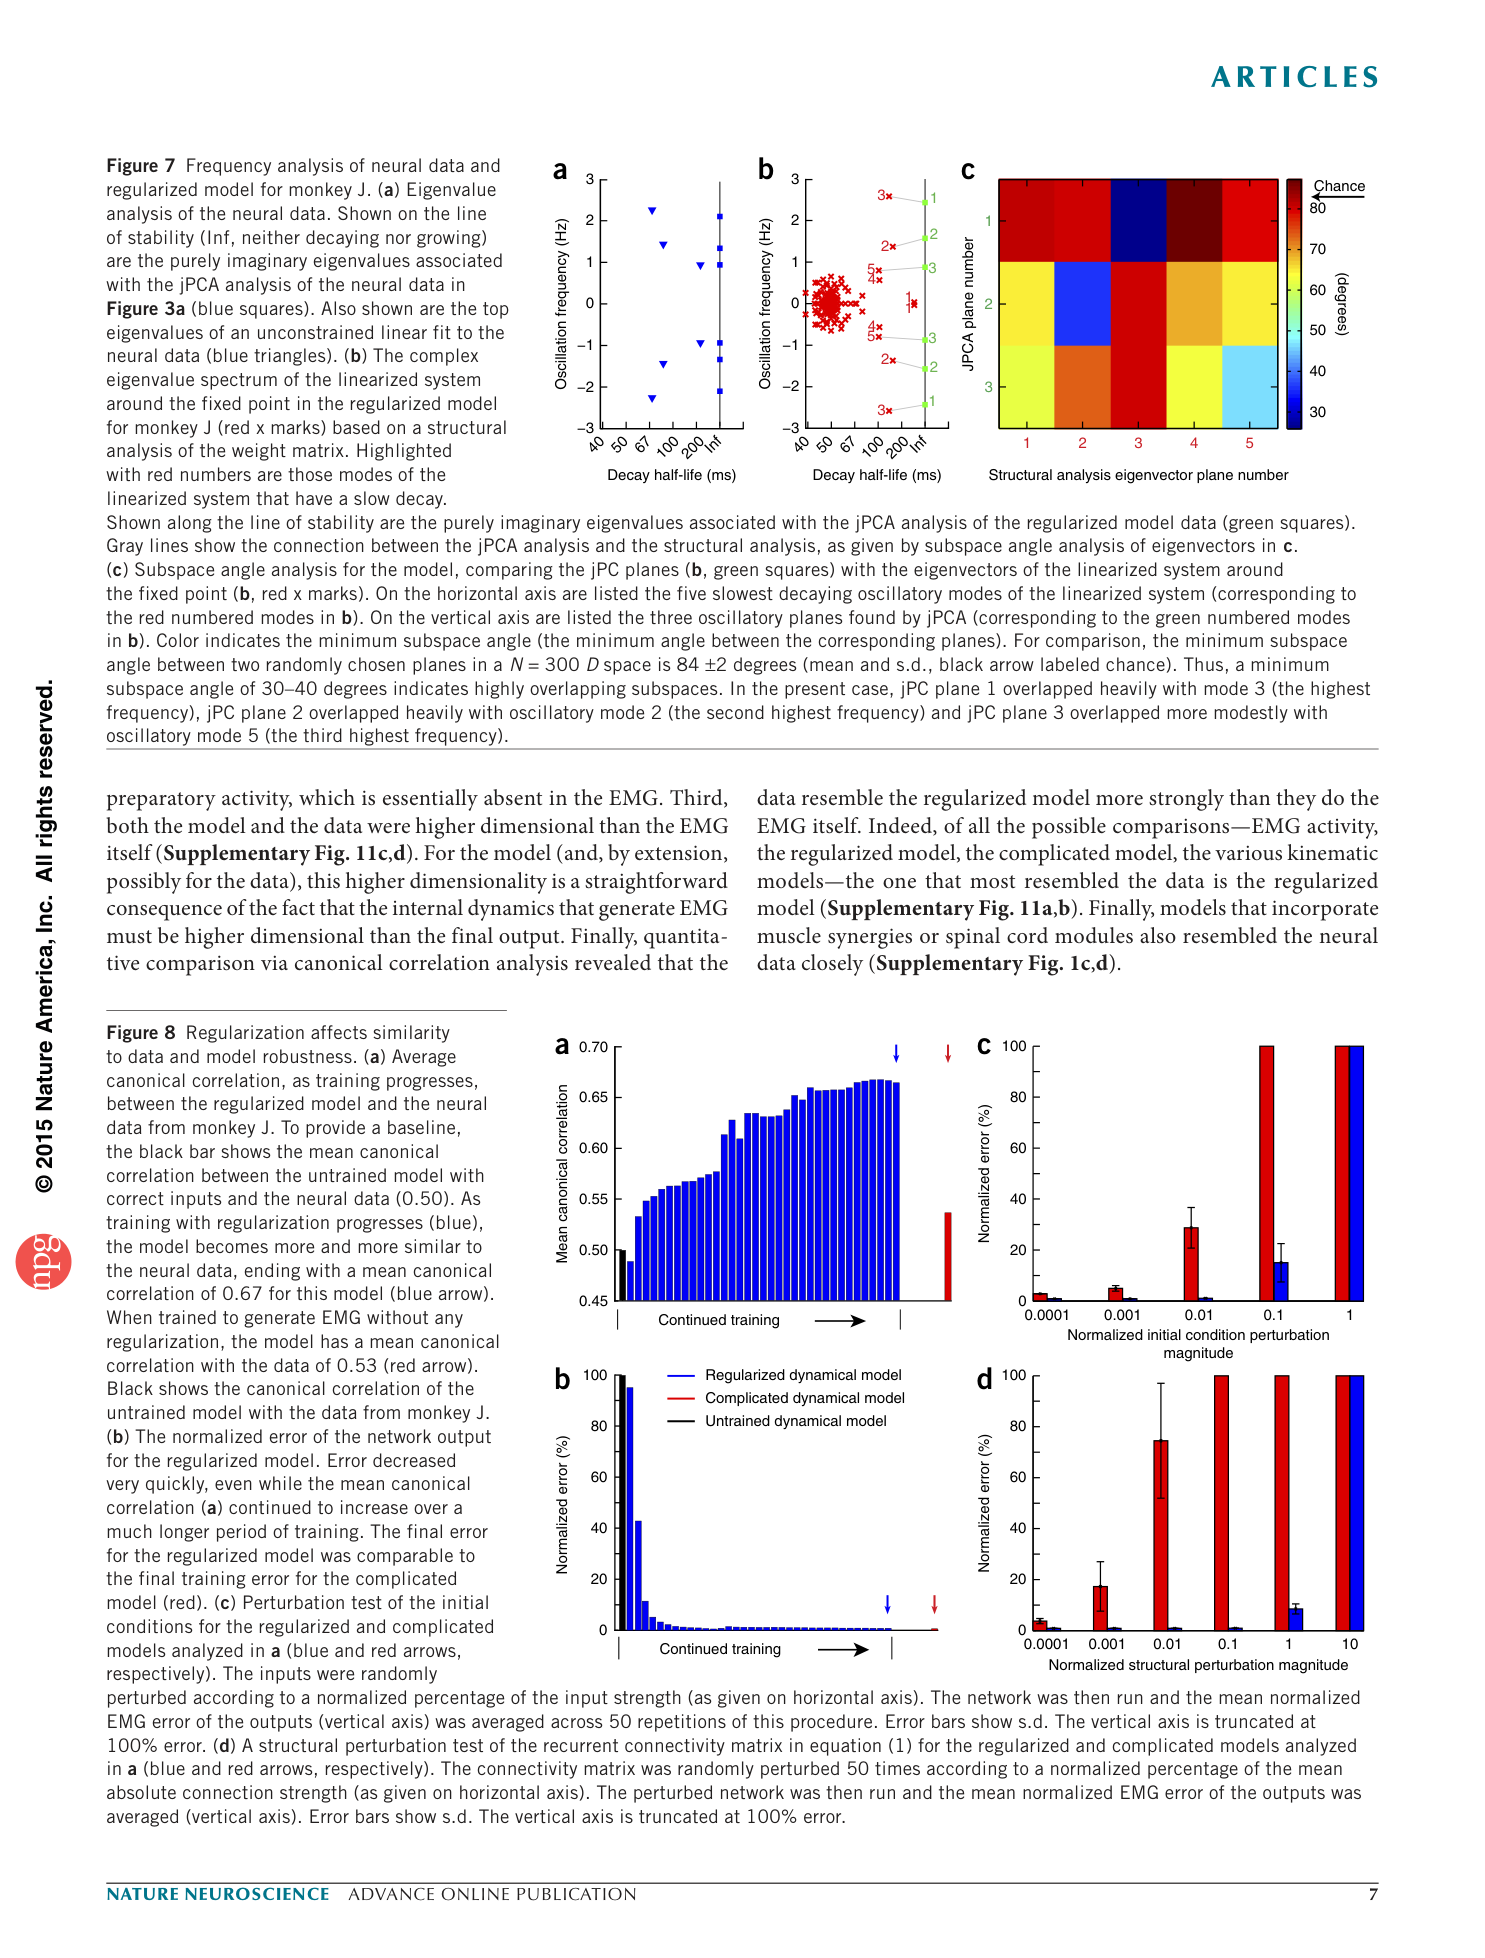 原文 Fig. 7 · PDF 第 7 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图7 · 网络局部动力学。 特征值与jPCA平面比较检验模型中结构恢复;不是实测连接组。
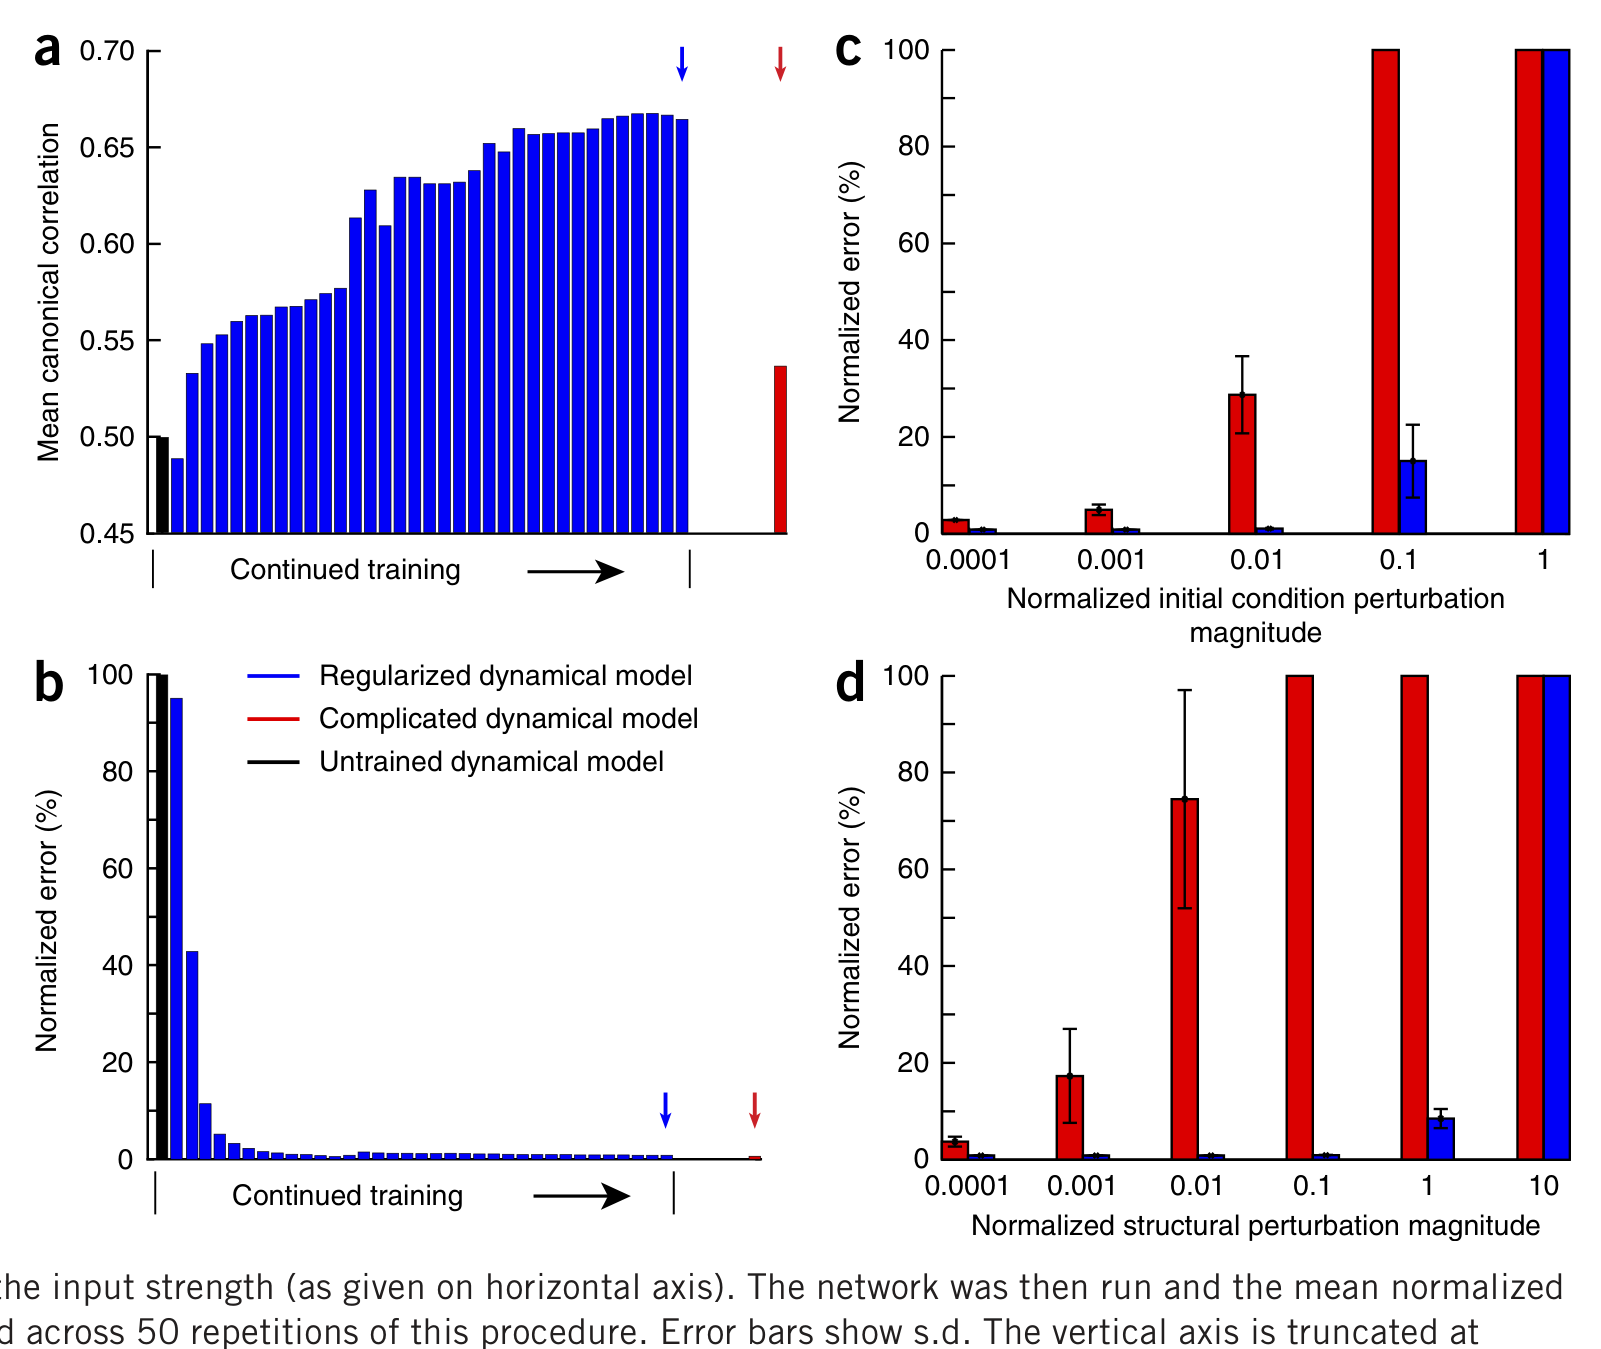 原文 Fig. 8 · PDF 第 7 页 · 原文图像 · 查看来源
图8 · 训练及稳健性。 a/b显示相似性和肌电误差,c/d为模型扰动。模型稳健性不能直接当作动物抗扰实验结果。
讨论与解读边界
作者将早期运动相关时段作为简化感觉反馈的依据,但这不能推论该时段仅存在局部自主动力学:外部任务输入、既有身体状态及跨脑区递归仍可能发挥关键作用。正则化得到的解属于一种可行解释,并不等同于全局最简或生物系统的唯一机制;表征分析与动力学框架亦非互斥关系。
思考问题
- 不用真实准备活动作为输入,在未见目标、负荷和反馈扰动下,网络还能预测哪些神经结构?
- 哪些扰动响应能区分模型内部递归、跨区输入与感觉反馈对旋转的贡献?