A01 · Relation of pyramidal tract activity to force exerted during voluntary movement
Evarts, E.V. (1968). Journal of Neurophysiology, 31, 14–28. doi:10.1152/jn.1968.31.1.14
在相近的腕屈伸运动中改变外部负载,Evarts 发现多数入选锥体束神经元的放电随出力条件而变;部分单元还与力的动态变化过程相关。这些结果限制了仅凭位移方向解释皮层活动的模型,但并未确立整个运动皮层唯一编码力。
核对依据:Zotero 条目 · 本地全文。本轮核对原文方法、关键结果、解释边界及所引主图;更新于2026-09-20。图注页码采用本地PDF文件页序,版本与未解决问题见正文及审查记录。
背景
自主运动既包含可见的肢体位移,也需要肌肉产生相应的力。早期运动皮层电生理研究发现,许多细胞会在特定方向动作前后改变放电。但在自然行为中,运动方向与肌肉用力往往同时改变:朝同一方向屈腕,若外部负载不同,所需的肌肉募集模式就可能截然相反。如果仅比对运动方向,便无法判断细胞究竟表征外部运动轨迹、关节位移,还是与输出力相关的变量。Evarts 在 1968 年面对的正是这一基本归因难题;他通过逆向激活把观察对象严格限定为锥体束神经元,使记录结果与皮层下行通路建立了更直接的解剖联系。
要分离这些因素,关键是让实验动物在不同负载下完成大致相同的腕屈伸动作。研究利用滑轮与砝码施加阻屈或阻伸负载,使同一方向的位移伴随不同甚至相反方向的净出力;同时同步记录力、位置与肌电信号,以检验负载是否切实改变了肌肉的力学负荷。不过,仅证明“加负载时放电不同”还不足以定论,因为负载也会影响感觉反馈、姿势维持与拮抗肌共收缩。因此,研究进一步考察了单周期内放电与力上升、下降的时序关系,探讨静态力大小能否解释全部神经活动,以及是否需要将力的变化过程纳入描述。
作者系统比较了无负载及多种阻屈、阻伸条件,并在运动时长相近的试次中定量分析放电率。多数入选单元随负载显著改变活动,部分单元放电调整甚至先于力的实际改变,这直接限制了单纯以位移方向解释皮层活动的主张。但这项研究也有明确边界:样本并非整个运动皮层的随机普查,力与力变化率在实验中并未完全独立操纵;少数单元对负载不敏感,快速运动中的记录也不符合慢速任务观察到的规律。Evarts 确立的是特定受控任务中力及动力学过程的重要作用,而非断言所有运动皮层神经元都唯一编码力。
研究思路
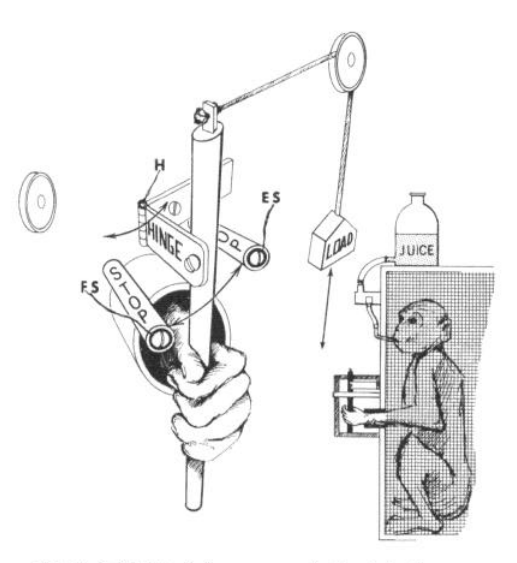
研究通过砝码经滑轮从不同方向施加负载,使相同方向的腕部运动可伴随不同方向的净出力。作者同步记录神经放电、力、关节位置与肌电,先对比单元在各负载下的响应,再对运动时长相近的位移做定量分析。
方法
三只恒河猴完成约30°的交替腕屈伸,要求相邻两次位移均在400–700 ms内完成。研究借助逆向激活电刺激识别锥体束神经元,并测试无负载以及100、200、400 g阻屈或阻伸负载。在100多个记录到的单元中,挑选出31个与腕部任务关系明确的单元纳入定量分析;负载对比主要选取位移时长在500–600 ms的试次。该样本并非对全部运动皮层神经元的随机抽样。此外,方法部分叙述仅训练猴的右手并记录对侧皮层,而图1图注在描述装置示例时则写为左手;两处文字存在出入,不能仅凭示例照片推断实际记录侧。
主要结果
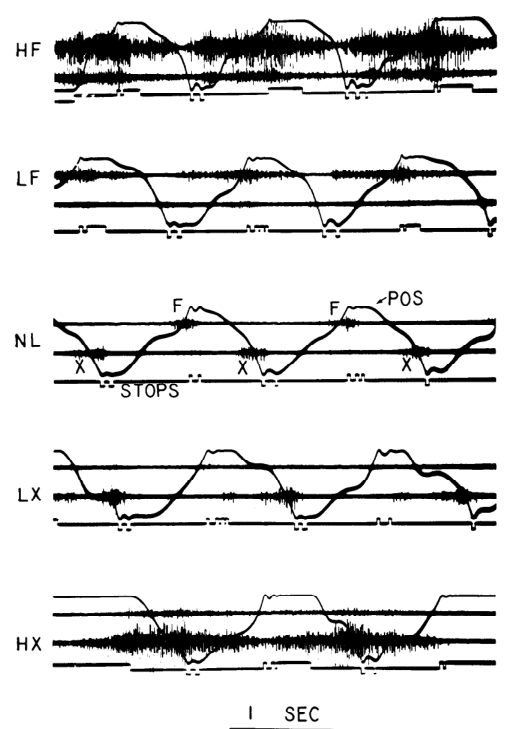
外部负载显著改变了完成相近位移所需的肌肉活动与净出力。阻屈负载下,屈伸两个位移阶段均可伴随净屈向力;阻伸负载下则正好相反。这种解耦使单纯的位移方向解释受到了更直接的检验。
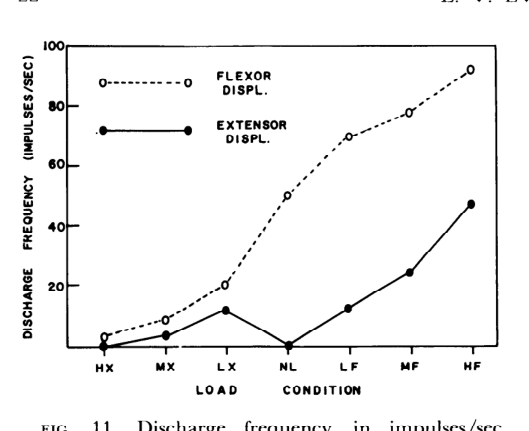
31个入选单元中,有26个随负载改变出现至少50%的放电率变化。以一个典型示例为例,其屈曲位移阶段的平均放电率从400 g阻伸时的约3次/秒,显著升至400 g阻屈时的约93次/秒。同一单元在力上升与下降阶段的活动水平并不相同;部分记录中放电变化甚至领先于力变化,支持将力的动态过程纳入解释模型。但由于实验并未完全独立操纵所有力学变量,尚无法从两种负载的对照中确定F与dF/dt各自的独立贡献或权重先后。
少数单元的放电与位移方向明显相关,却对外部负载不敏感。另有记录显示,个别神经元在速度更快、用力更大的位移中放电反而下降,说明慢速受控任务中观察到的力—放电规律不能简单外推到所有运动。作者也讨论了握杆所需的手指活动、姿势肌协同与拮抗肌共收缩等潜在因素。
逐图解读
 原文 Fig. 1 · PDF 第 2 页 · 原文图像 · 查看来源
图1 · 家笼中的腕运动训练装置。 动物操纵竖杆在屈、伸止点之间往复运动,只有相邻两次位移都达到时间要求才获得奖励。该图说明训练流程;图注所示的左手示例与方法正文中训练右手的叙述不同。
 原文 Fig. 2 · PDF 第 2 页 · 原文图像 · 查看来源
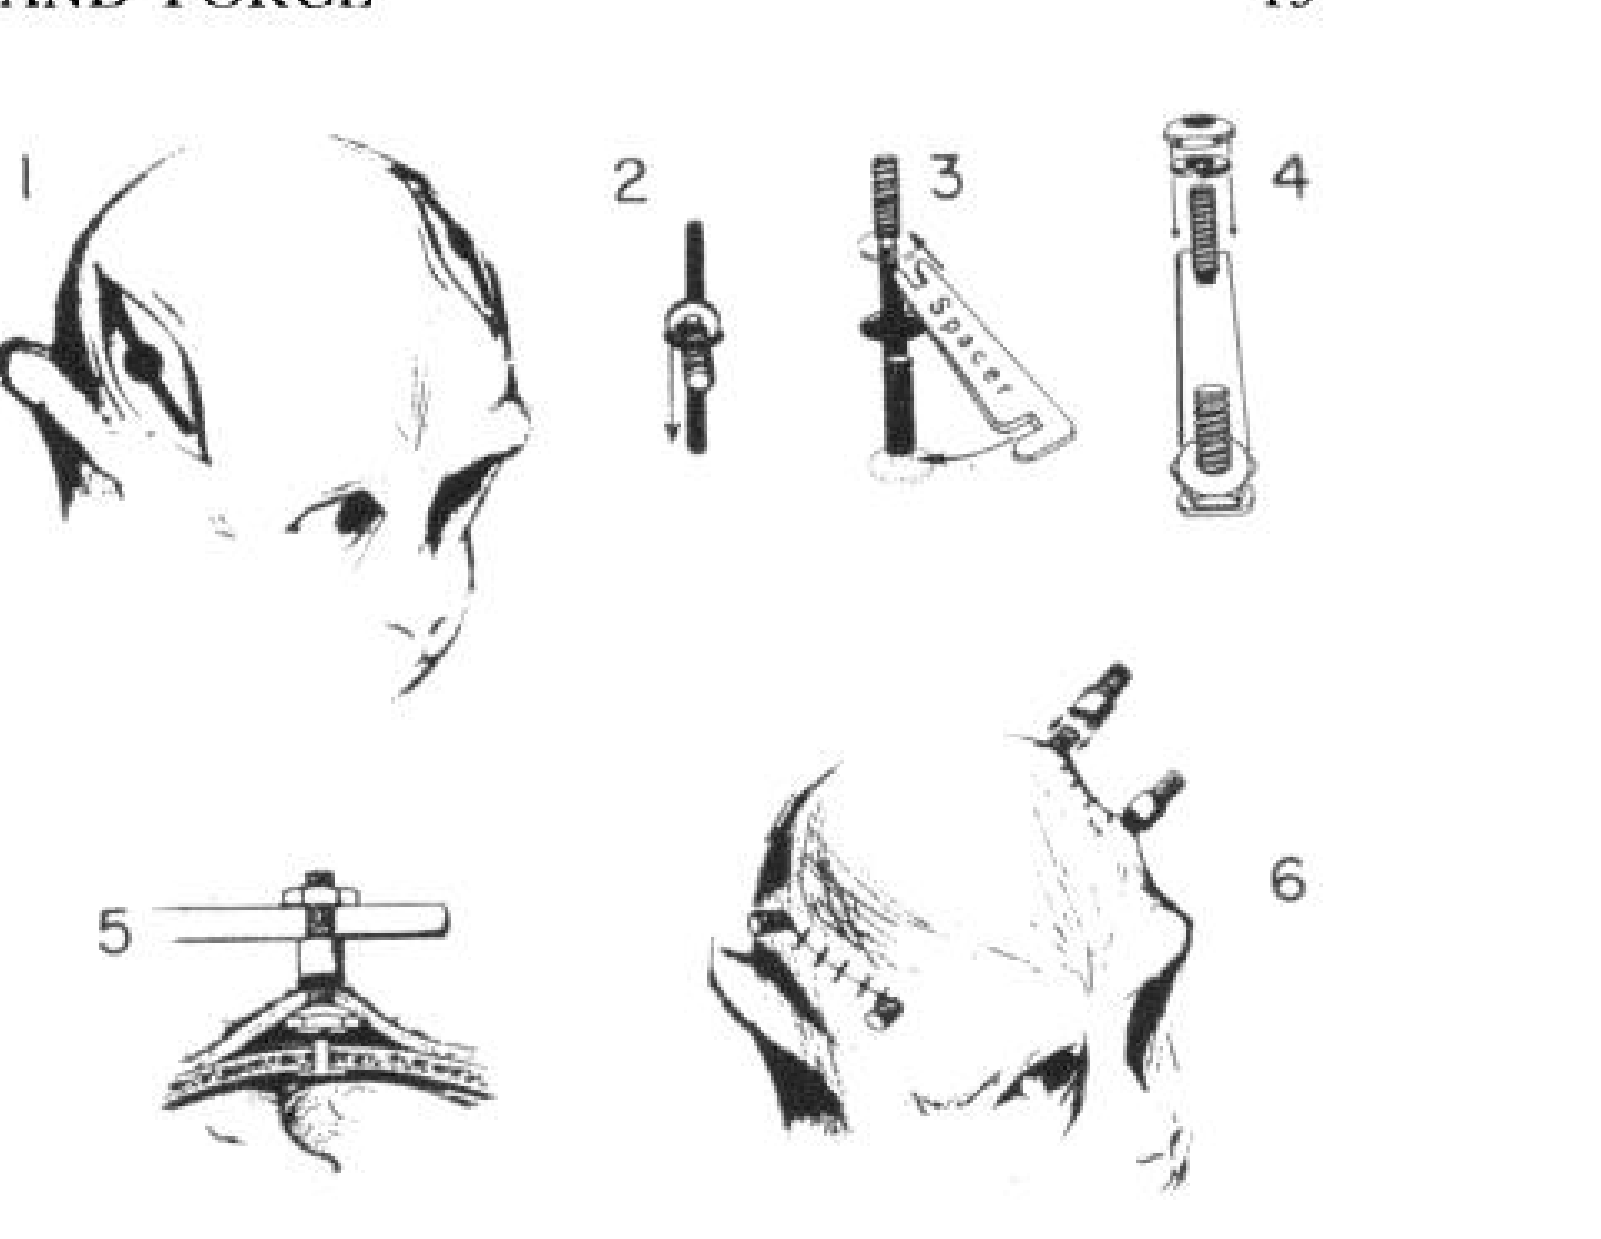
图2 · 头固定螺栓的安装示意。 六个步骤展示螺栓、垫片和皮肤缝合闭合等操作安排。这是历史实验方法说明,并非本文力相关结论的直接证据。
 原文 Fig. 3 · PDF 第 3 页 · 原文图像 · 查看来源
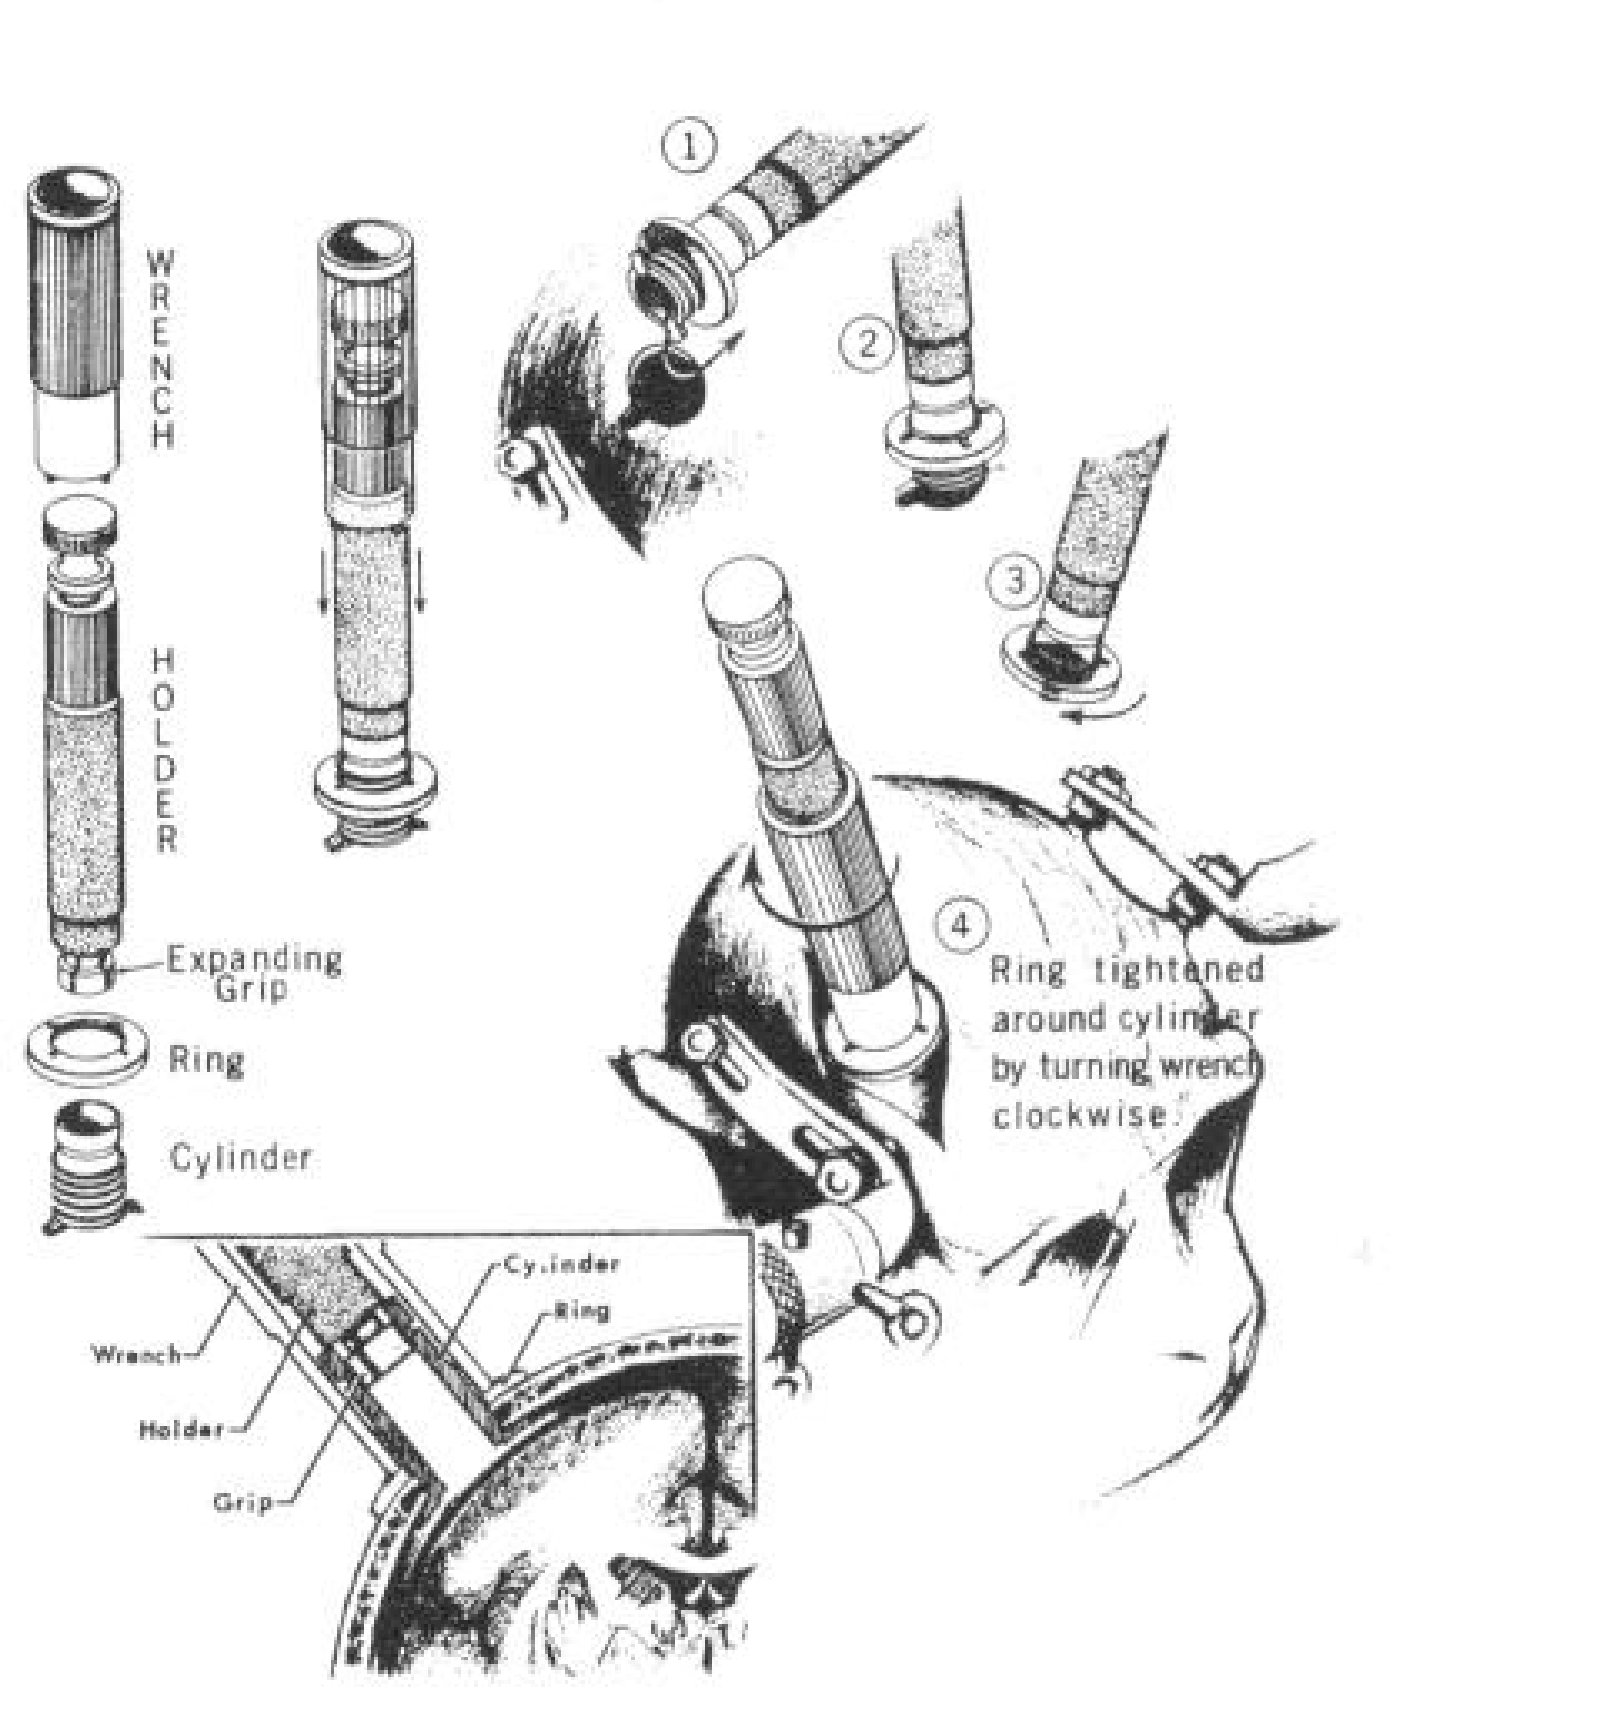
图3 · 记录圆柱与微驱动装置。 图示记录圆柱在颅骨开孔处的固定方式及下方的微驱动结构,用于说明微电极如何在目标记录区域内精确定位。
 原文 Fig. 4 · PDF 第 4 页 · 原文图像 · 查看来源
图4 · 不同负载下的肌电与位移。 POS表示位置,STOPS标记止点接触状态,X与F分别代表伸肌与屈肌活动。在幅度相近的屈伸位移下,负载改变了伸屈肌肉活动的分配模式;部分条件下仍伴随共收缩,因此不能简单归结为仅有单一肌肉在活动。
 原文 Fig. 5 · PDF 第 4 页 · 原文图像 · 查看来源
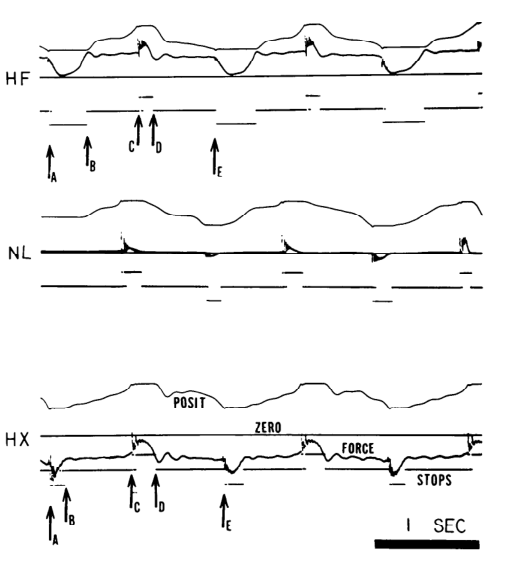
图5 · 三种负载下的力与位移。 迹线以零力线区分净屈向力与净伸向力:在HF(重屈负载)与HX(重伸负载)条件下,相同方向的位移可伴随相反方向的净出力。该对比削弱了仅凭位移方向解释神经放电的假设,但负载同时改变了肌肉募集与外周感觉反馈。
 原文 Fig. 6 · PDF 第 5 页 · 原文图像 · 查看来源
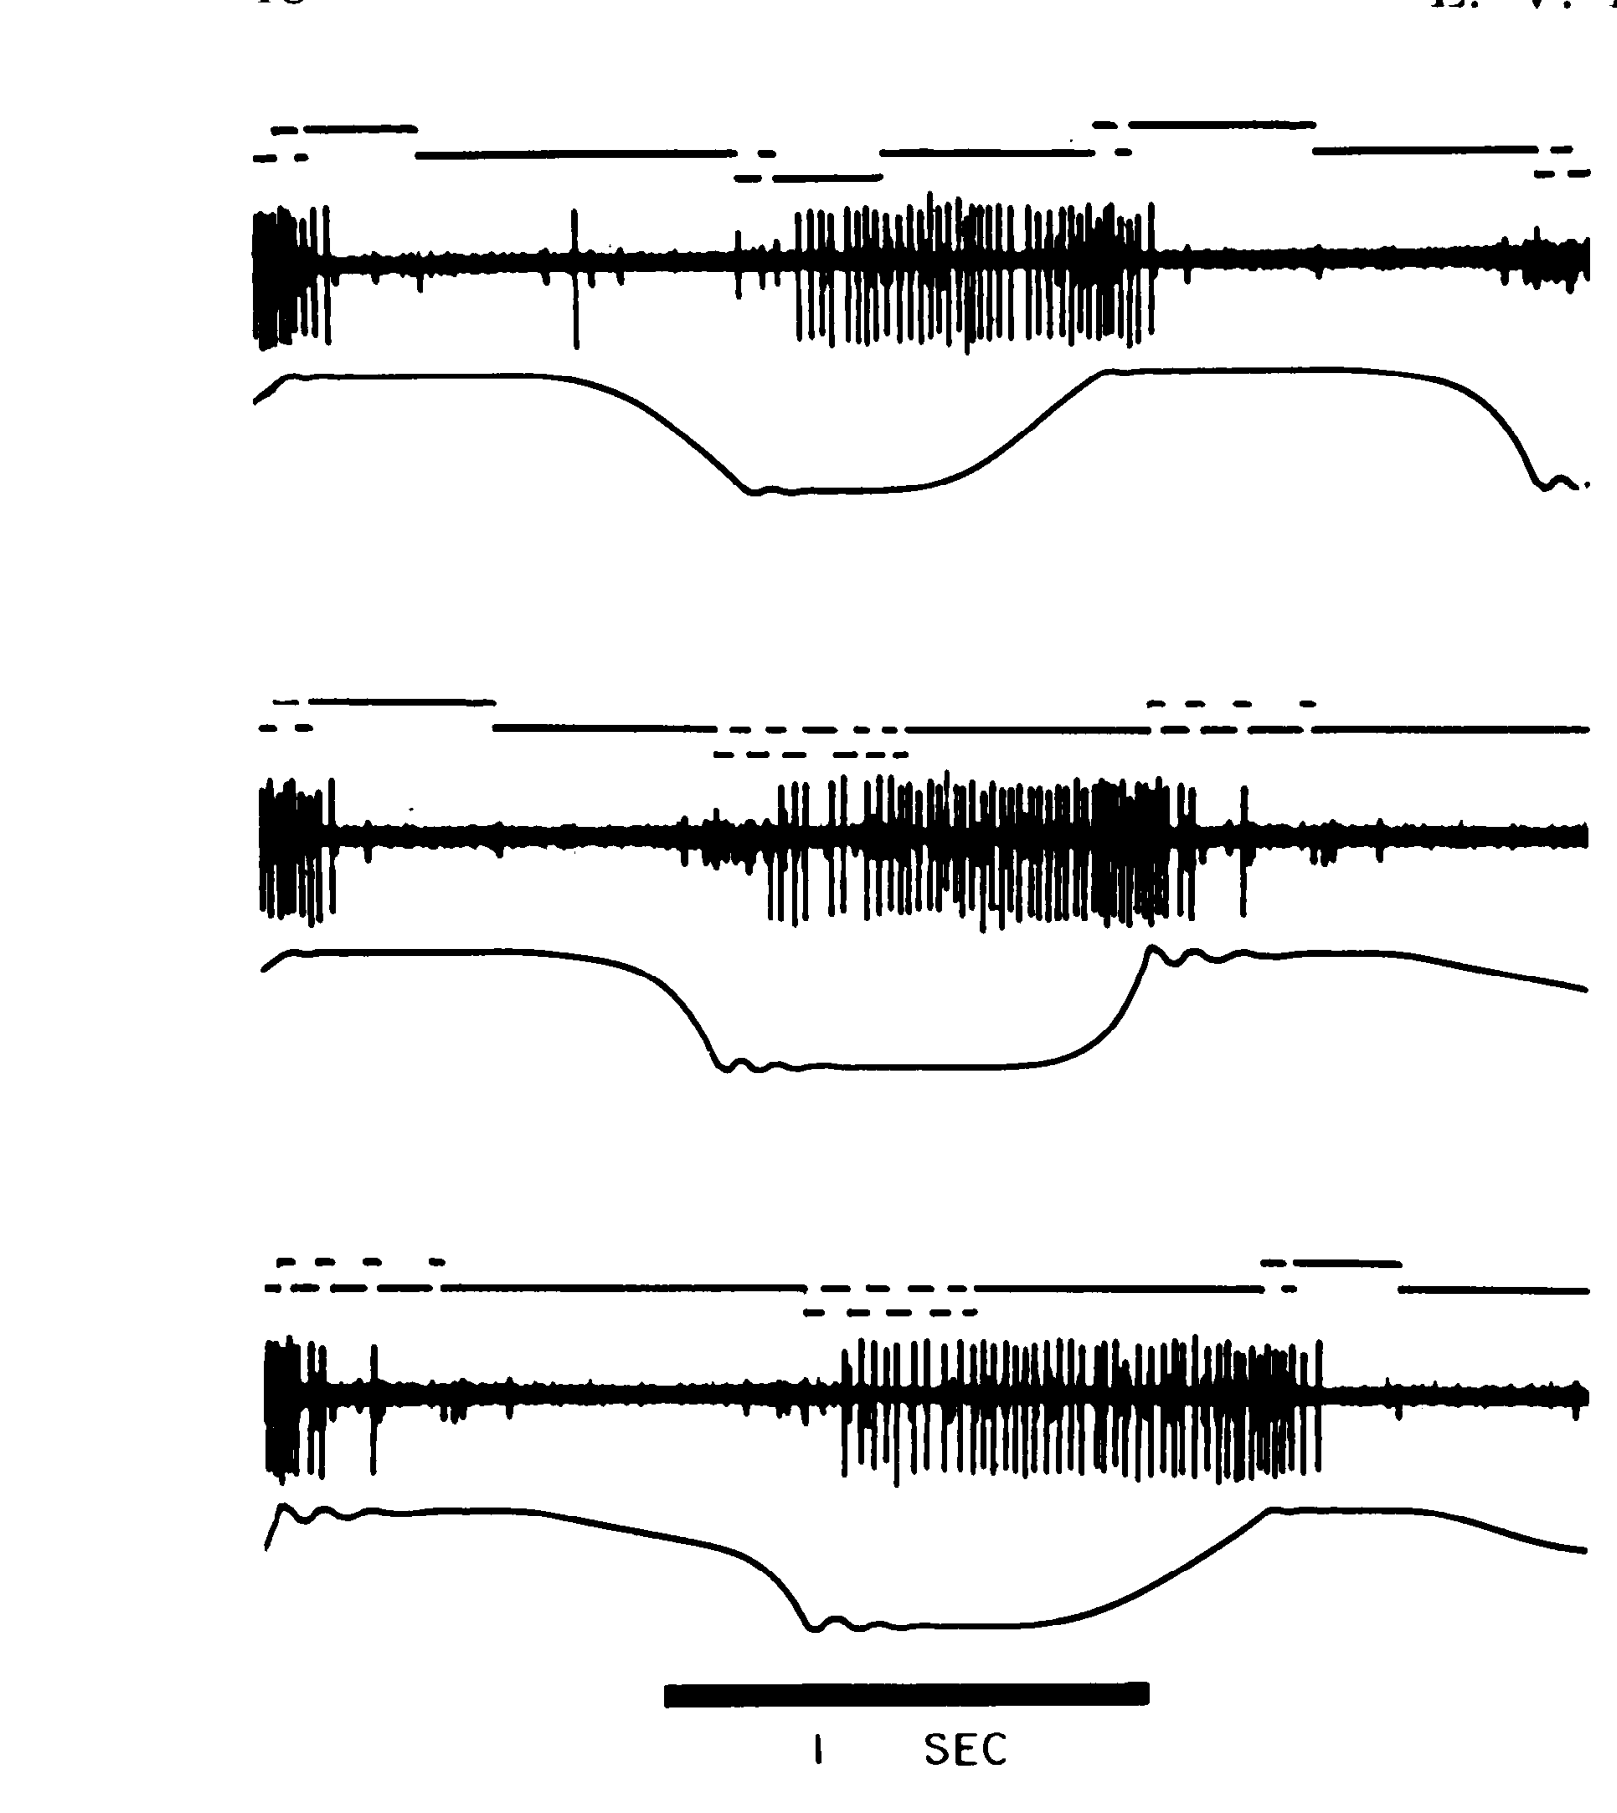
图6 · 无负载时的示例单元。 该神经元放电在重复的屈伸周期中表现出清晰的相位关系。不过,仅凭此图无法区分放电反映的是位移方向还是出力方向,因为两者在该条件下高度重合。
 原文 Fig. 7 · PDF 第 6 页 · 原文图像 · 查看来源
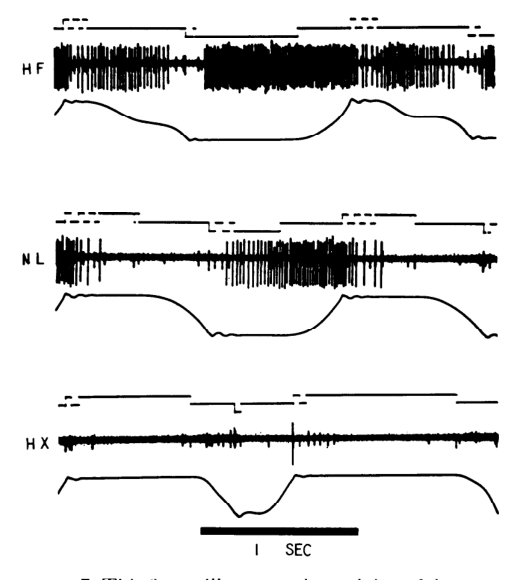
图7 · 同一单元对负载变化的响应。 上、中、下三组分别对应阻屈、无负载与阻伸条件。放电与位移之间的对应关系随负载施加而改变,表明原有的方向相关性不足以单独解释该单元的活动模式。
 原文 Fig. 8 · PDF 第 6 页 · 原文图像 · 查看来源
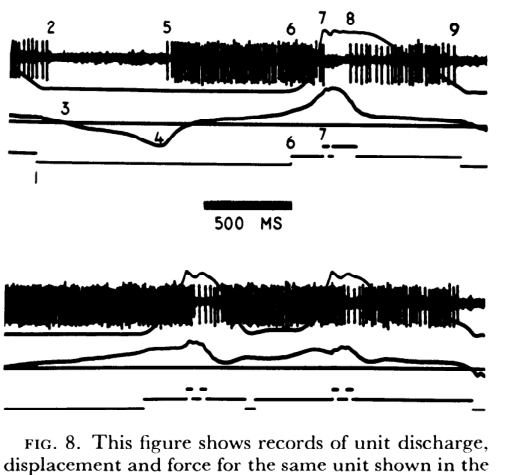
图8 · 单周期中放电、力与位移的时间关系。 标记标出单元开始或停止放电以及力与位移转折的关键节点。在力幅值较低但处于上升段时,放电可能比力幅值较高但处于下降段时更为活跃,提示单纯的静态力幅值不足以解释全部变化;不过尚不能据此定量拟合出F与dF/dt各自的独立贡献。
 原文 Fig. 9 · PDF 第 7 页 · 原文图像 · 查看来源
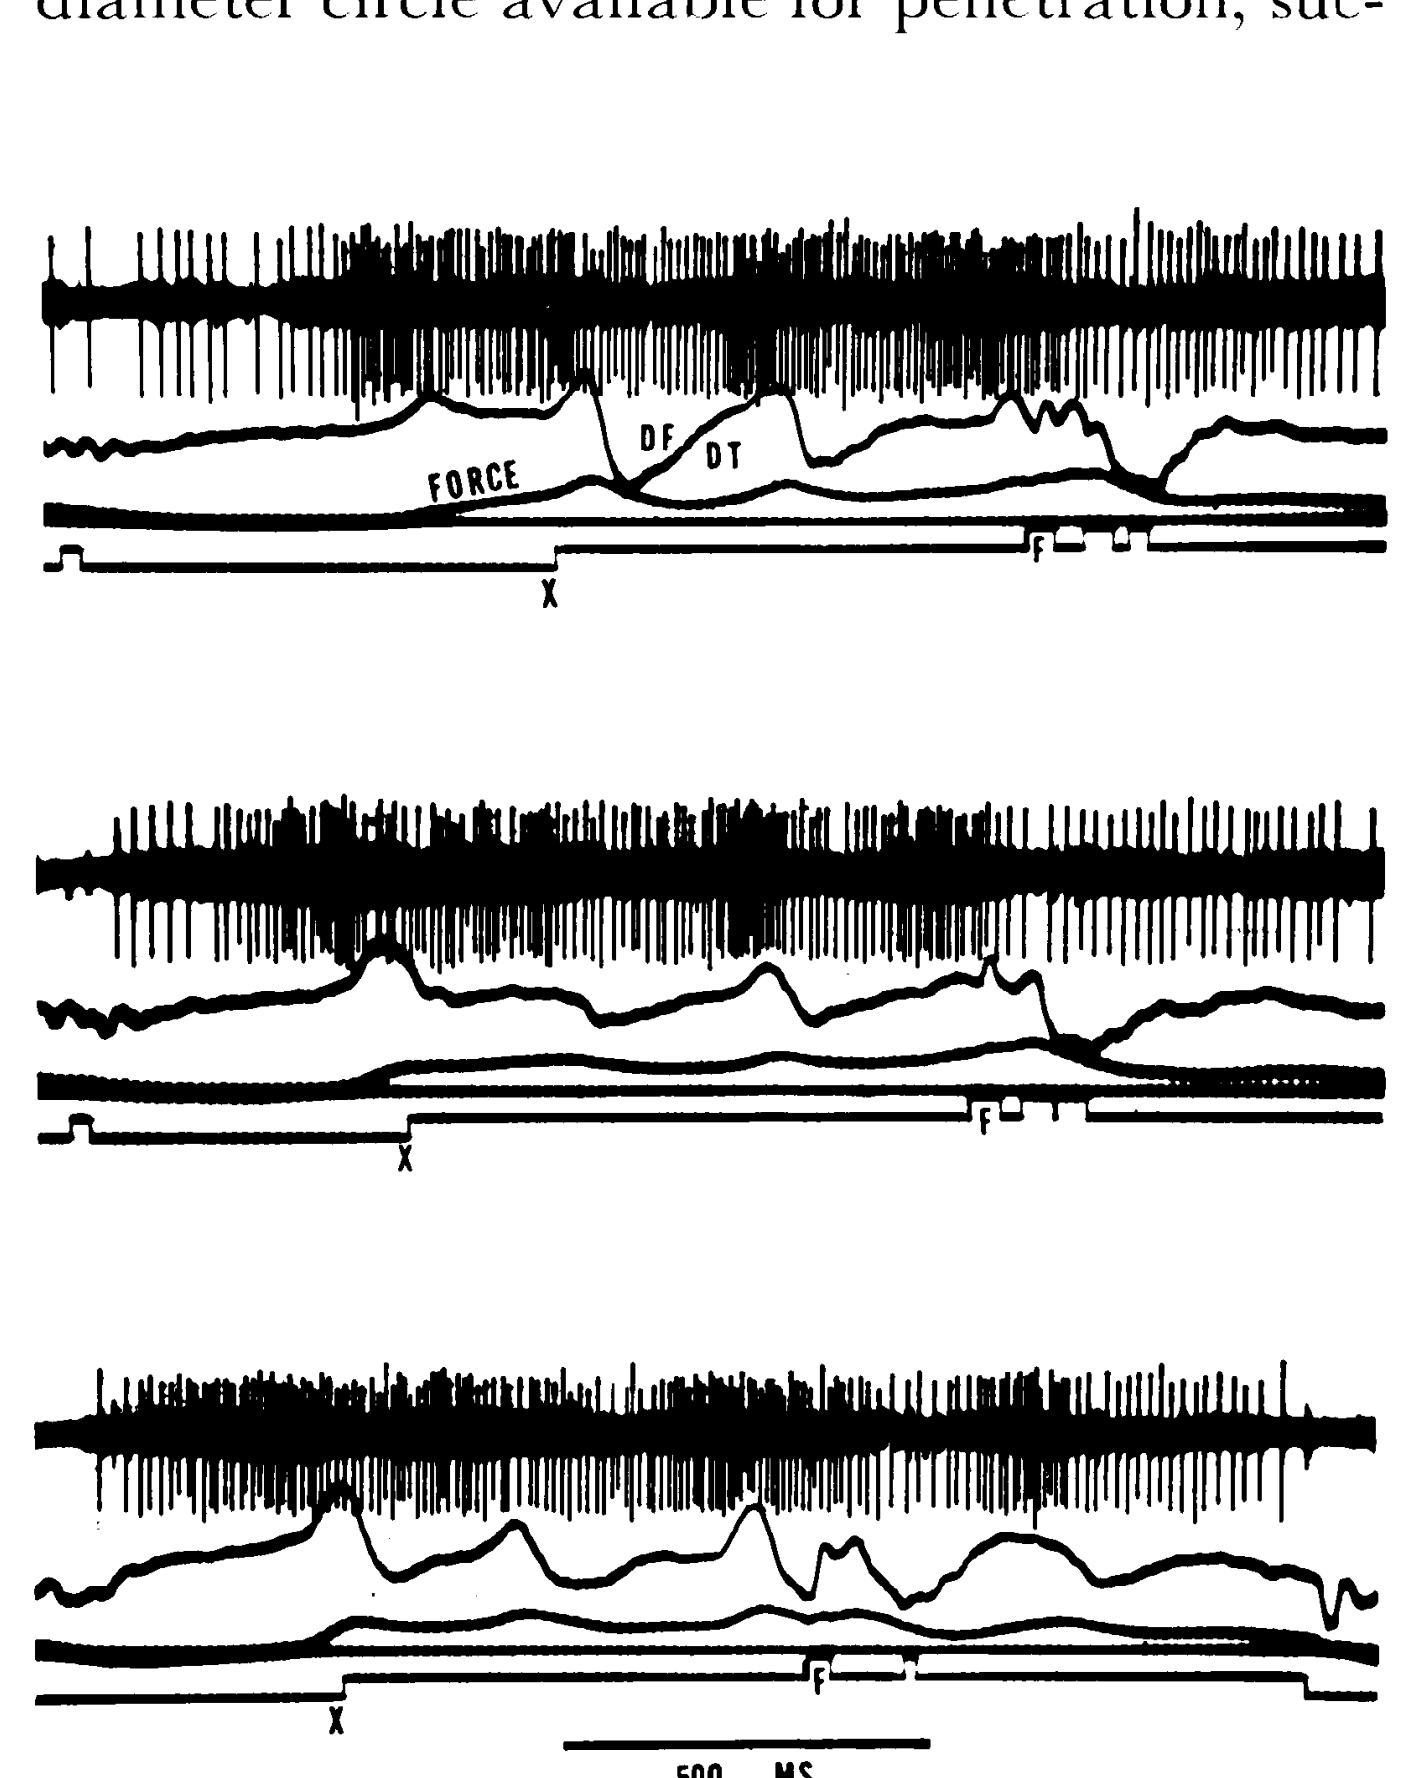
图9 · 放电与力变化率的并列记录。 微分求得的力变化率信号使神经放电与力学变化的先后关系更易比对。部分试次中放电增加确实领先于力的变化,但仅凭时间领先本身仍不能排除感觉反馈对神经活动的持续参与。
 原文 Fig. 10 · PDF 第 8 页 · 原文图像 · 查看来源
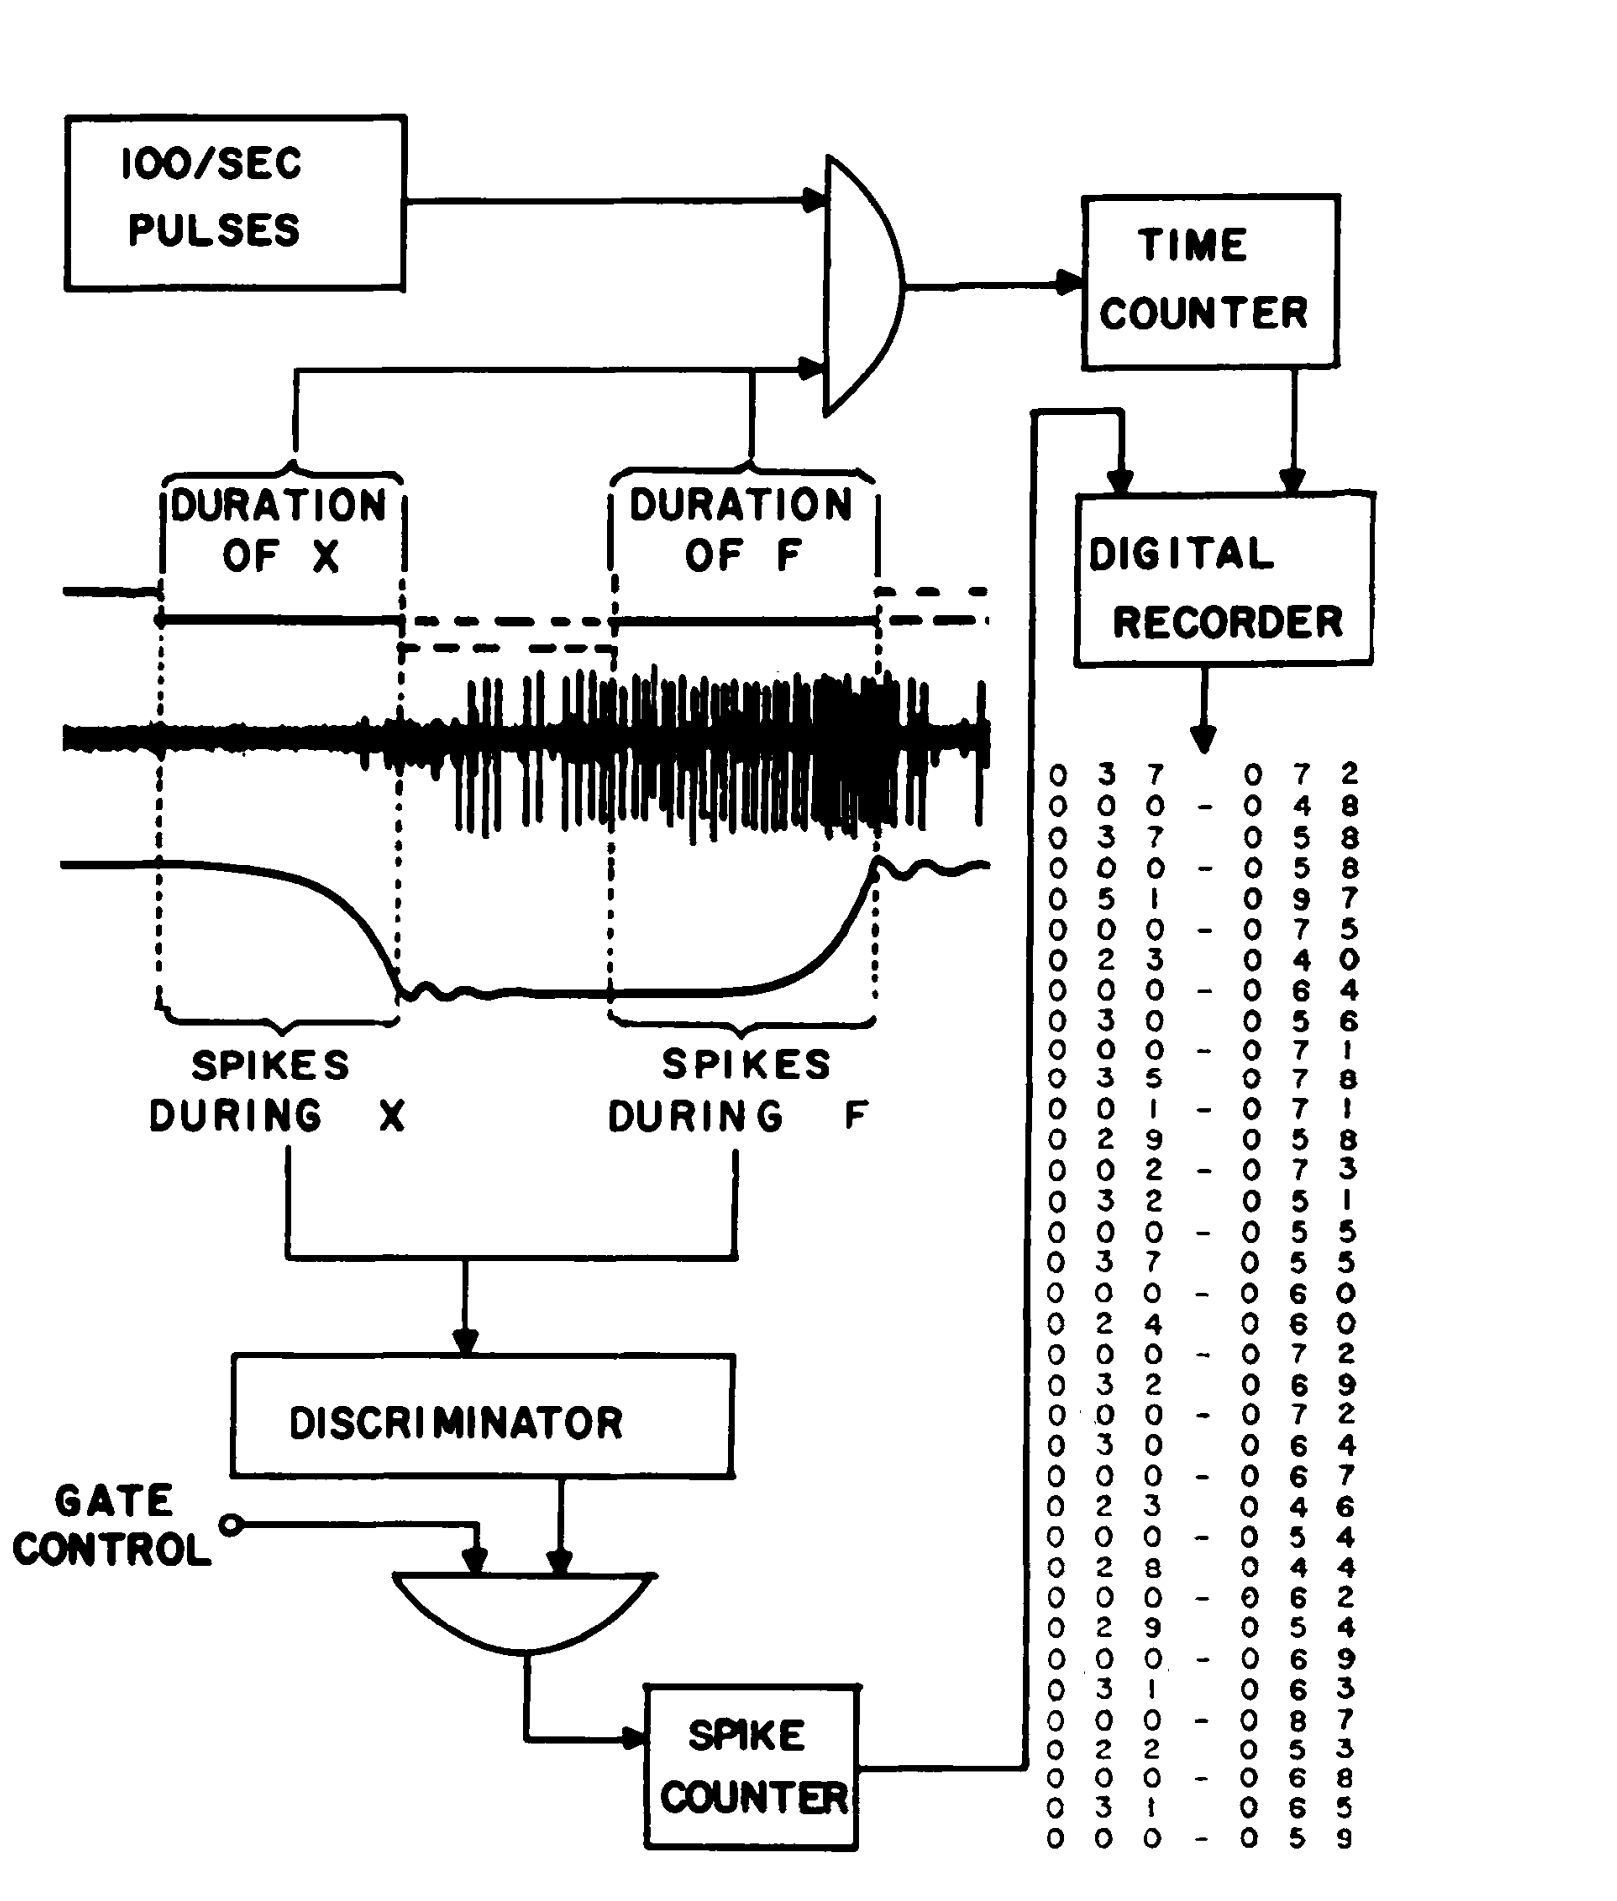
图10 · 位移期间脉冲计数的硬件流程。 脉冲计数与计时门控由止点接触状态触发控制,打印输出给出各段位移对应的脉冲总数与持续时长,构成了后续计算平均放电率的硬件基础。
 原文 Fig. 11 · PDF 第 9 页 · 原文图像 · 查看来源
图11 · 负载与平均放电率。 横轴由阻伸负载、经无负载延伸至阻屈负载,分别绘制屈曲与伸展位移中的平均放电率。示例单元在屈曲位移中的放电从约3次/秒升至93次/秒;屈伸两条曲线走势明显分离,表明运动阶段同样调控负载相关活动。
 原文 Fig. 12 · PDF 第 10 页 · 原文图像 · 查看来源
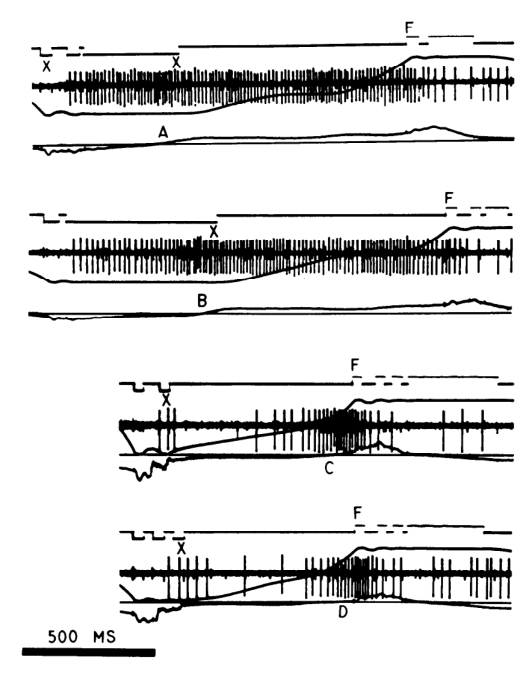
图12 · 负载改变活动在运动周期中的时序。 在不同负载下,同一单元相对于力与位移的活跃时间窗发生推移。该图呈现了放电的时序依赖性,但不能单独将力过零点或力变化率判定为唯一的驱动因素。
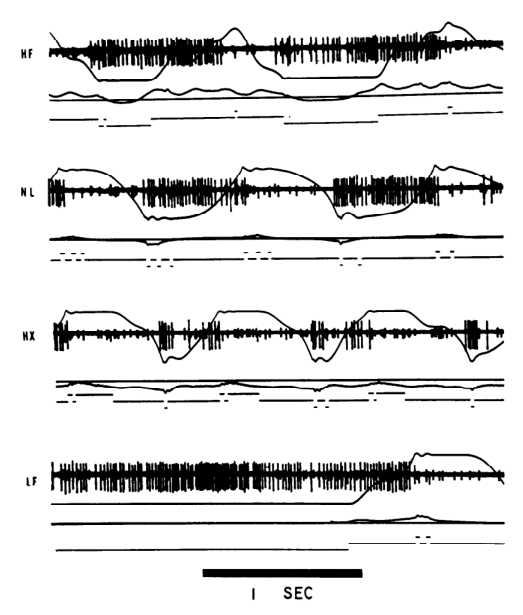 原文 Fig. 13 · PDF 第 10 页 · 原文图像 · 查看来源
图13 · 对负载不敏感的示例。 该神经元在多种负载条件下均维持相似的运动时相活动,属于少数负载效应较弱的单元之一。这一反例限制了将多数入选单元的负载规律直接推广至全部锥体束神经元。
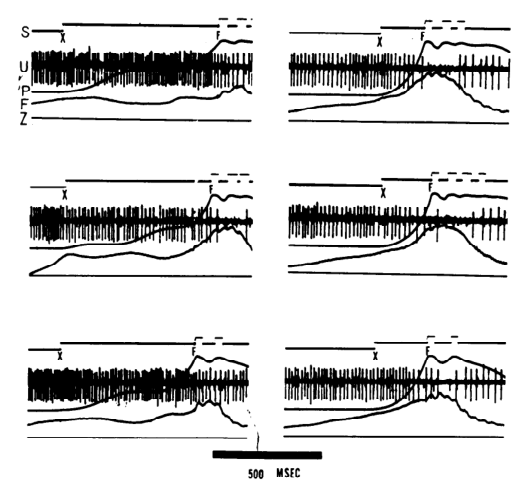 原文 Fig. 14 · PDF 第 11 页 · 原文图像 · 查看来源
图14 · 快慢运动中的响应差异。 动作更快、力变化率更陡峭的位移并没有伴随更高的放电率。结合原文表1,该例显示在受控负载下测得的力—放电关系并非跨运动速度的简单单调规律。
讨论与解读边界
本文的核心贡献在于通过严谨的负载操纵证明:仅凭位移并不能充分确定锥体束神经元的活动状态,出力条件提供了关键的额外解释。这有力支持了皮层运动输出与运动动力学负荷密切相关的观点,但“放电与力相关”不等于每个神经元只单纯表征单块肌肉的力量,也无法排除外周感觉反馈在放电维持中的作用。
神经活动先于力的改变出现,固然与自上而下的下行驱动相符,但单凭时间领先并不能把前馈运动指令、预期性感觉反馈以及脑网络共同驱动彻底剥离。此外,研究所用的是顺序单单元记录及任务相关筛选,力、力变化率、握持以及姿势协同等因素在实验中未完全解耦。本文与后世群体动力学理论的联系属于跨研究引申,研究本身并未测量或提取低维神经群体状态。
思考问题
- 若在实验中独立操纵外部负载方向、力的变化速率以及抓握负荷,哪些单元的放电效应仍能分别由静态力 F 或变化率 dF/dt 单独解释?
- 在同一批长时程稳定记录的神经元中对比慢速受控运动与快速弹道运动,负载敏感性与神经—肌电相对时序是否仍然保持稳定?