H08 · Neural geometry from mixed sensorimotor selectivity for predictive sensorimotor control
Yiheng Zhang, Yun Chen, Tianwei Wang & He Cui (2024) eLife, 13, RP100064. doi:10.7554/eLife.100064
He Cui 实验室把自家的拦截范式推到了 M1 阵列记录与群体几何的交汇处:当目标在动、手要预测性地打向未来位置时,M1 神经元把感觉与运动信号"混"在一起调谐,而群体活动在运动发起时刻排成一串按目标速度倾斜的同心环。混合选择性如何长成神经几何,这篇论文给出了从单神经元到 RNN 的完整因果链条。
核对版本:Zotero motor_control_interception_64 集合本地全文(PDF 全文提取,图注与正文互相校订,2026-09-18;图注所标页码均为 PDF 文件页序,非期刊印刷页码);Zotero 条目。
背景
运动皮层早已不是纯粹的"运动命令发生器"。A01、A06 奠定的输出编码传统之后,越来越多的证据表明 M1 携带大量感觉信息:视觉线索诱发早期视觉运动反应、体感与视觉反馈驱动快速闭环调控(C10 的分布式任务特异性处理、F05 的输出-null 隔离都是例证)。可是感觉情境究竟如何"调制"而不是"打断"运动命令,尤其在目标运动、必须预测性控制的场景下,几乎没人看过——因为以前的拦截任务要么把拦截点固定(H03 系列),要么只做行为(H05)或顶叶单神经元(H06)。
与此同时,动力系统视角给了一批新工具:准备活动在输出-null 空间里"持有而不释放"(F02),群体响应以 untangled 方式嵌入类肌肉命令(F06),旋转动力学等低维结构(F01)成为解读 M1 的通用语言。顺着 H06 的结论——PPC 在出手前已编码预测的运动目标——一个自然的问题是:当这些带感觉调制的预测信号到达 M1 并与运动命令汇流时,群体几何会长成什么样?作者提出的假说相当具体:来自目标运动的感觉调制若不打扰运动输出,就应当占据与输出-potent 维度正交的方向。
研究思路
论文要回答三层递进的问题。第一层,现象学:拦截运动目标时,M1 单神经元的伸手方向调谐是否受目标运动调制?以什么方式(PD 平移、增益、加性偏移,还是混合)?第二层,群体几何:这些被调制的单神经元拼在一起,运动发起时刻的群体状态呈现什么结构,该结构是否真的由目标运动(而非手的速度等运动学混淆)决定?第三层,也是最有野心的一层,生成机制:用三类"表征模型神经元"(分别只带一种调制)和带正确输入输出映射的 RNN 反推——什么样的单神经元混合选择性、什么样的调制间相互作用,足以长出观测到的几何?
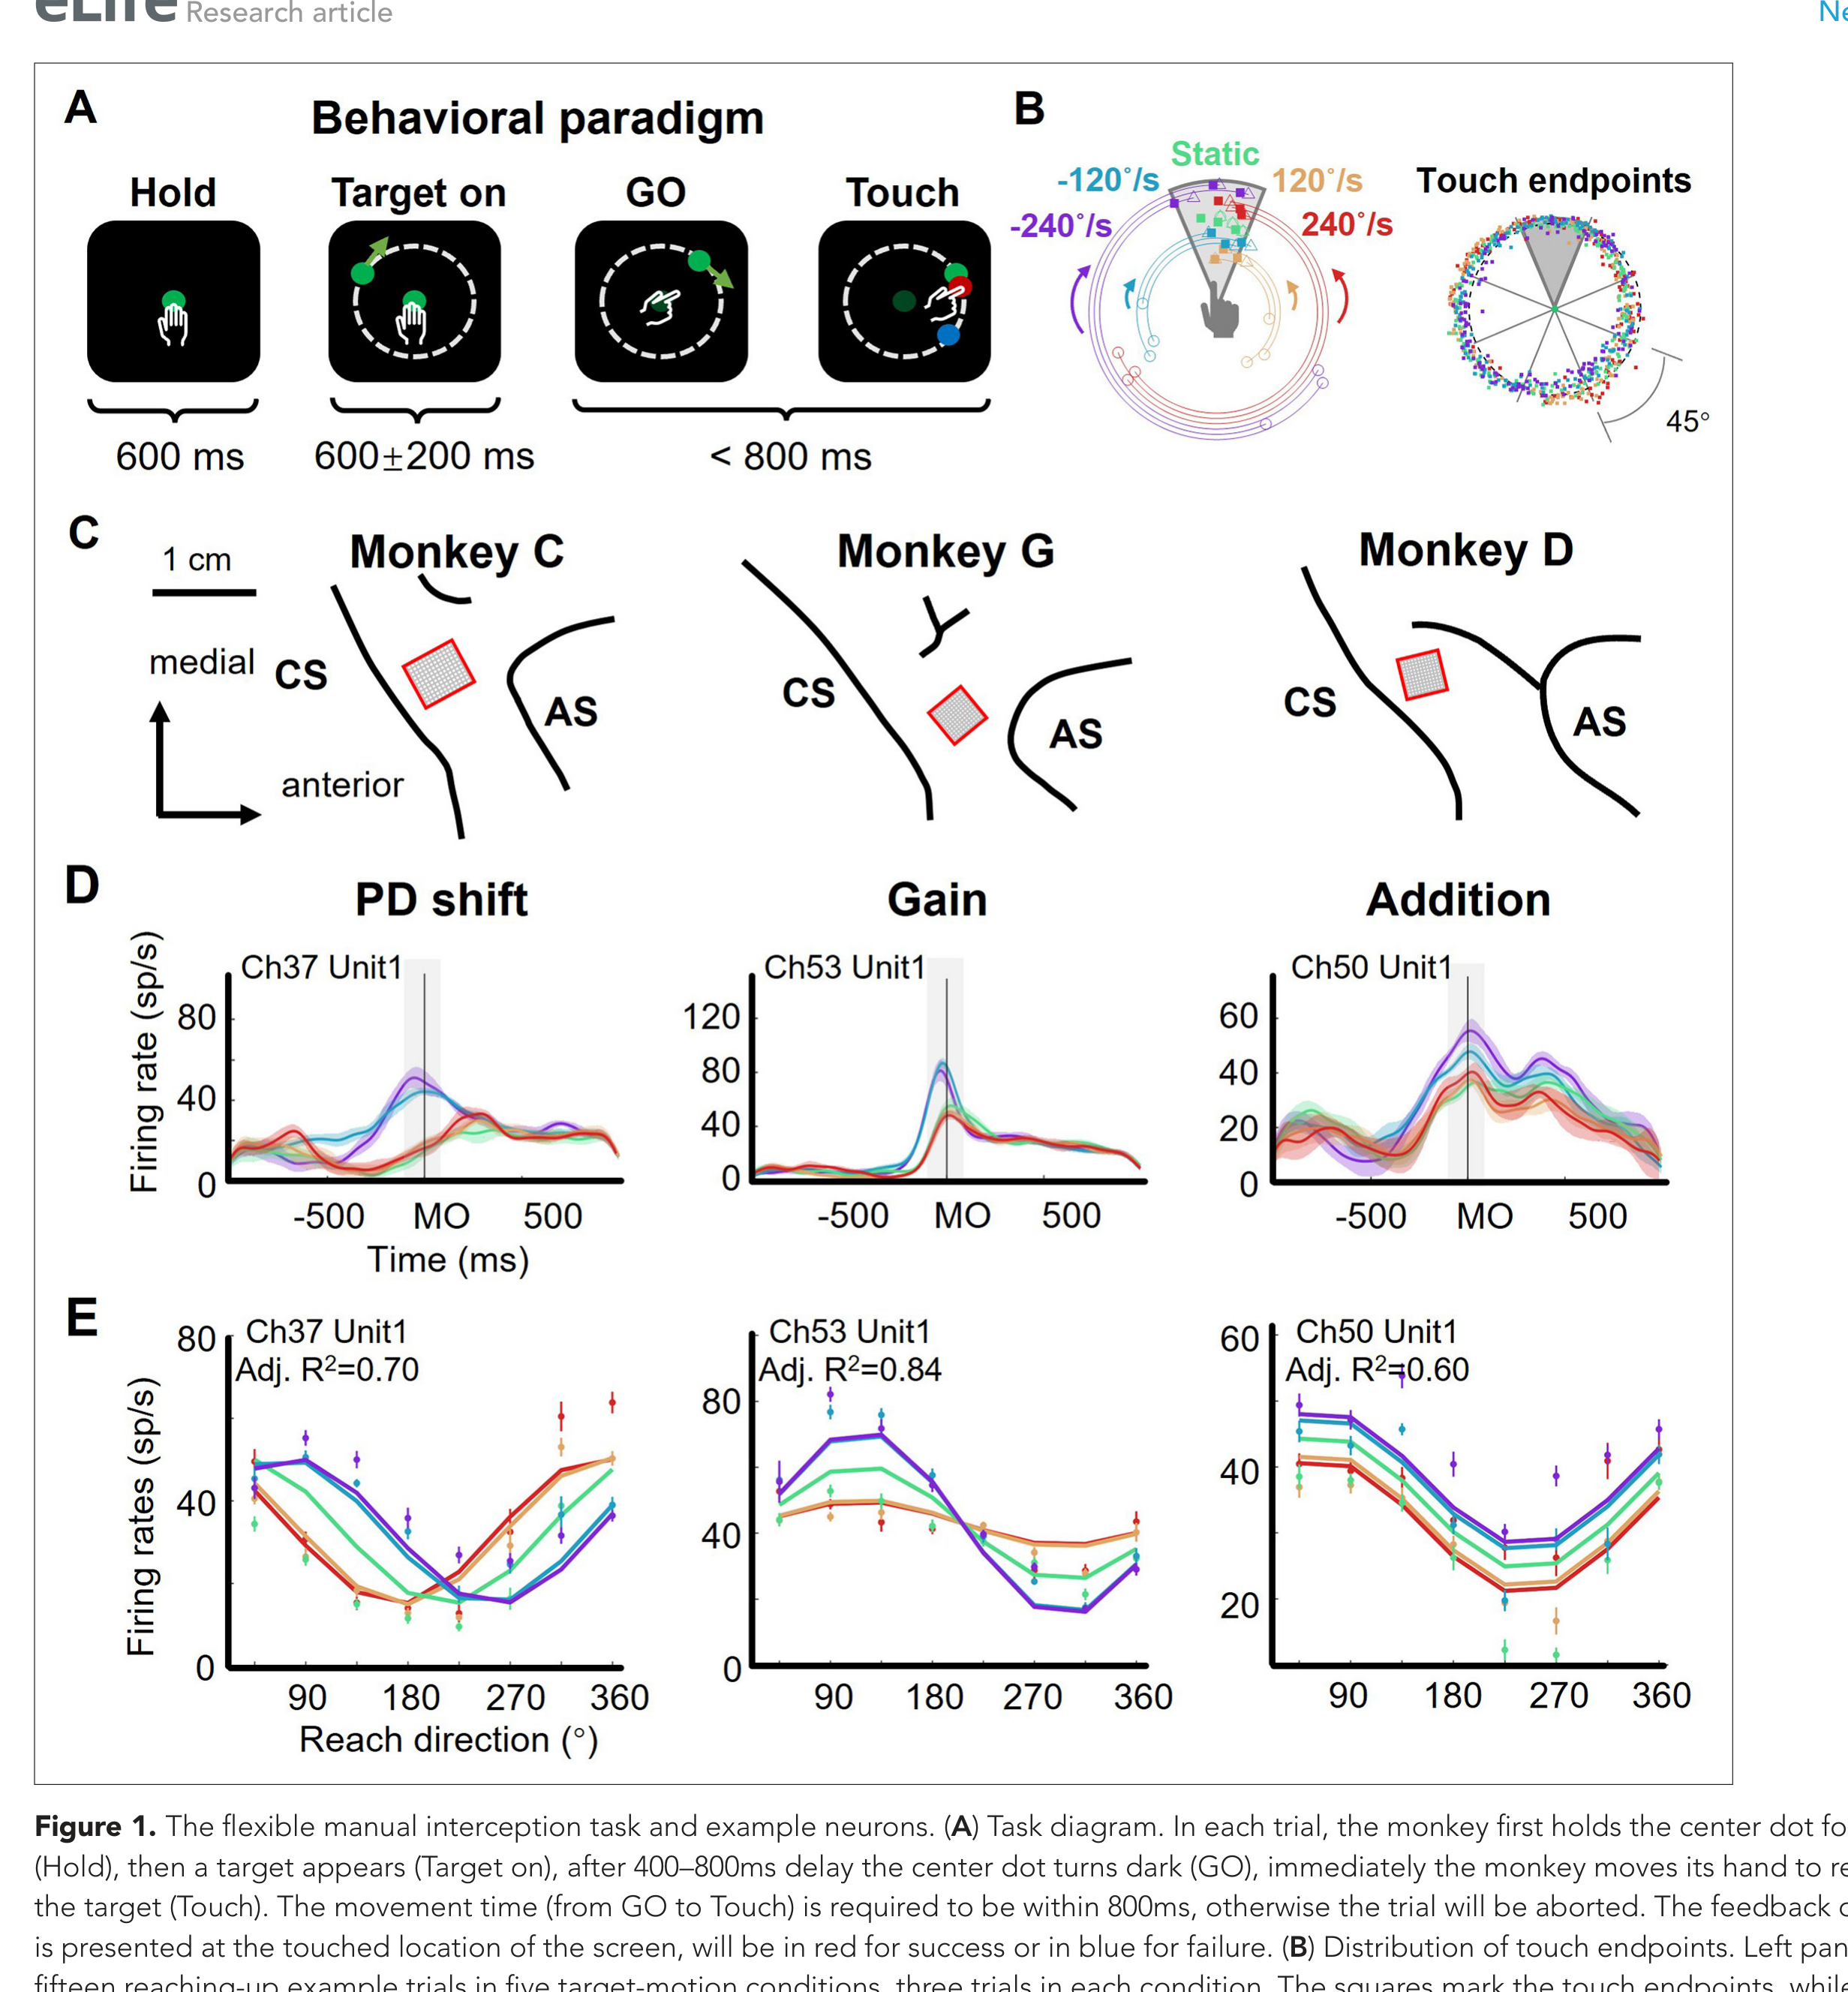
范式在 H05/H06 基础上做了一处关键改动:加入延迟。目标出现后猴子须等待 400–800 ms 的随机延迟,直到中央点变暗(GO)才能出手。这个改动把"运动计划的建立"与"运动的执行"在时间上拉开,让运动发起时刻(MO)附近的群体状态成为一个干净的快照点——作者正是在这个时刻拍下了全文最重要的一张照片。
方法
三只雄性猕猴(C、G、D,7–10 kg)在垂直触摸屏(100 Hz,分辨率 <0.1 mm)前 30 cm 完成延迟版灵活拦截:持中央点 600 ms;目标在随机位置出现,沿半径 15 cm 的不可见圆周以五种速度(−240、−120、0、120、240 °/s,后续 session 又加入 ±180、±360 °/s)运动;随机延迟 400–800 ms 后 GO;出手须在 GO 后 150–800 ms 内完成,落点距目标 3 cm 内判成功(红/蓝反馈点,果汁奖励)。40 个基本条件(8 方向 × 5 速度)逐 trial 交错。
神经数据用 Utah 阵列(C 128 通道,G、D 各 96 通道)从利手对侧 M1 采集,MRI 与沟回特征定位;Cerebus 系统 30 kHz 采样,Wave_clus 离线排序;三只猴分别获得 85±16、45±8、98±18 个分离良好的单元。手轨迹由 VICON(100 Hz,指尖红外标记)从 GO 记录到 Touch。分析把 trial 分到 40 个条件(8 个 45° 伸手方向扇区 × 5 目标速度),MO 定义为手速首次超过峰值 5% 的时刻。
单神经元层面,基于 A03 的余弦调谐框架构建三族模型:gain(目标速度以 sigmoid 乘在调谐深度上)、additive(速度调在偏移上)、PD shift(速度以 sigmoid 平移 PD),外加一个整合三者的 full model,用调整 R² 比较拟合优度;再用统计判据(PD 差异用 Watson-Williams 检验,调谐深度与偏移用 Wilcoxon 符号秩检验)给每个神经元做无互斥的分类。群体层面,对 MO 附近 100 ms 窗内的单 trial 放电做 Z-score 后 PCA,把"neural state"定义为单 trial 投影;用椭圆拟合(MatGeom 工具箱)刻画各目标速度条件下的状态分布,以椭圆法向量间的夹角定义 tilting angle(CCW 为正)。解码用 SVM(10 折交叉验证),迁移解码检验"换个条件解码器还灵不灵"。RNN 为 200 单元的连续时间递归网络(τ=50 ms,tanh 半整流),输入为运动意图(MO 前 50 ms 冻结的拦截点二维坐标)、时变目标位置与 GO 阶跃,输出为 MO 后的手速;损失为终点误差加 Sussillo 式正则(F03 的策略),训练 100 个随机初始化的网络,并做消融、连接权重操控与三类替代模型(只给运动意图、只给目标位置、稀疏初始化)对照。
主要结果
单神经元的答案是"混合得彻头彻尾"。运动发起前后(MO±100 ms),三类调制都真实存在:PD-shift 神经元的偏好方向随目标速度平移(CCW 与 CW 条件下 PD 明显分家),gain 神经元的调谐深度被目标速度相乘(CW 条件下 PD 处放电更高),additive 神经元整体基线随速度加减。三只猴的比例惊人地高:猴 C 有 79.0% 的活跃单元带 PD 平移、61.9% 带加性调制、46.9% 带增益调制,完全无调制的只有 6.5%;猴 G、猴 D 情形类似。许多神经元同时携带两种以上调制,full model 的调整 R²(0.55±0.24,1162 个神经元)显著高于任何单一调制模型(0.41–0.47)与纯伸手方向模型(0.34±0.25)。值得注意的是调制的主导维度是速度的方向(TVdir)而非大小(TVmag)——CCW 与 CW 之间的差别远大于 120 与 240 之间。
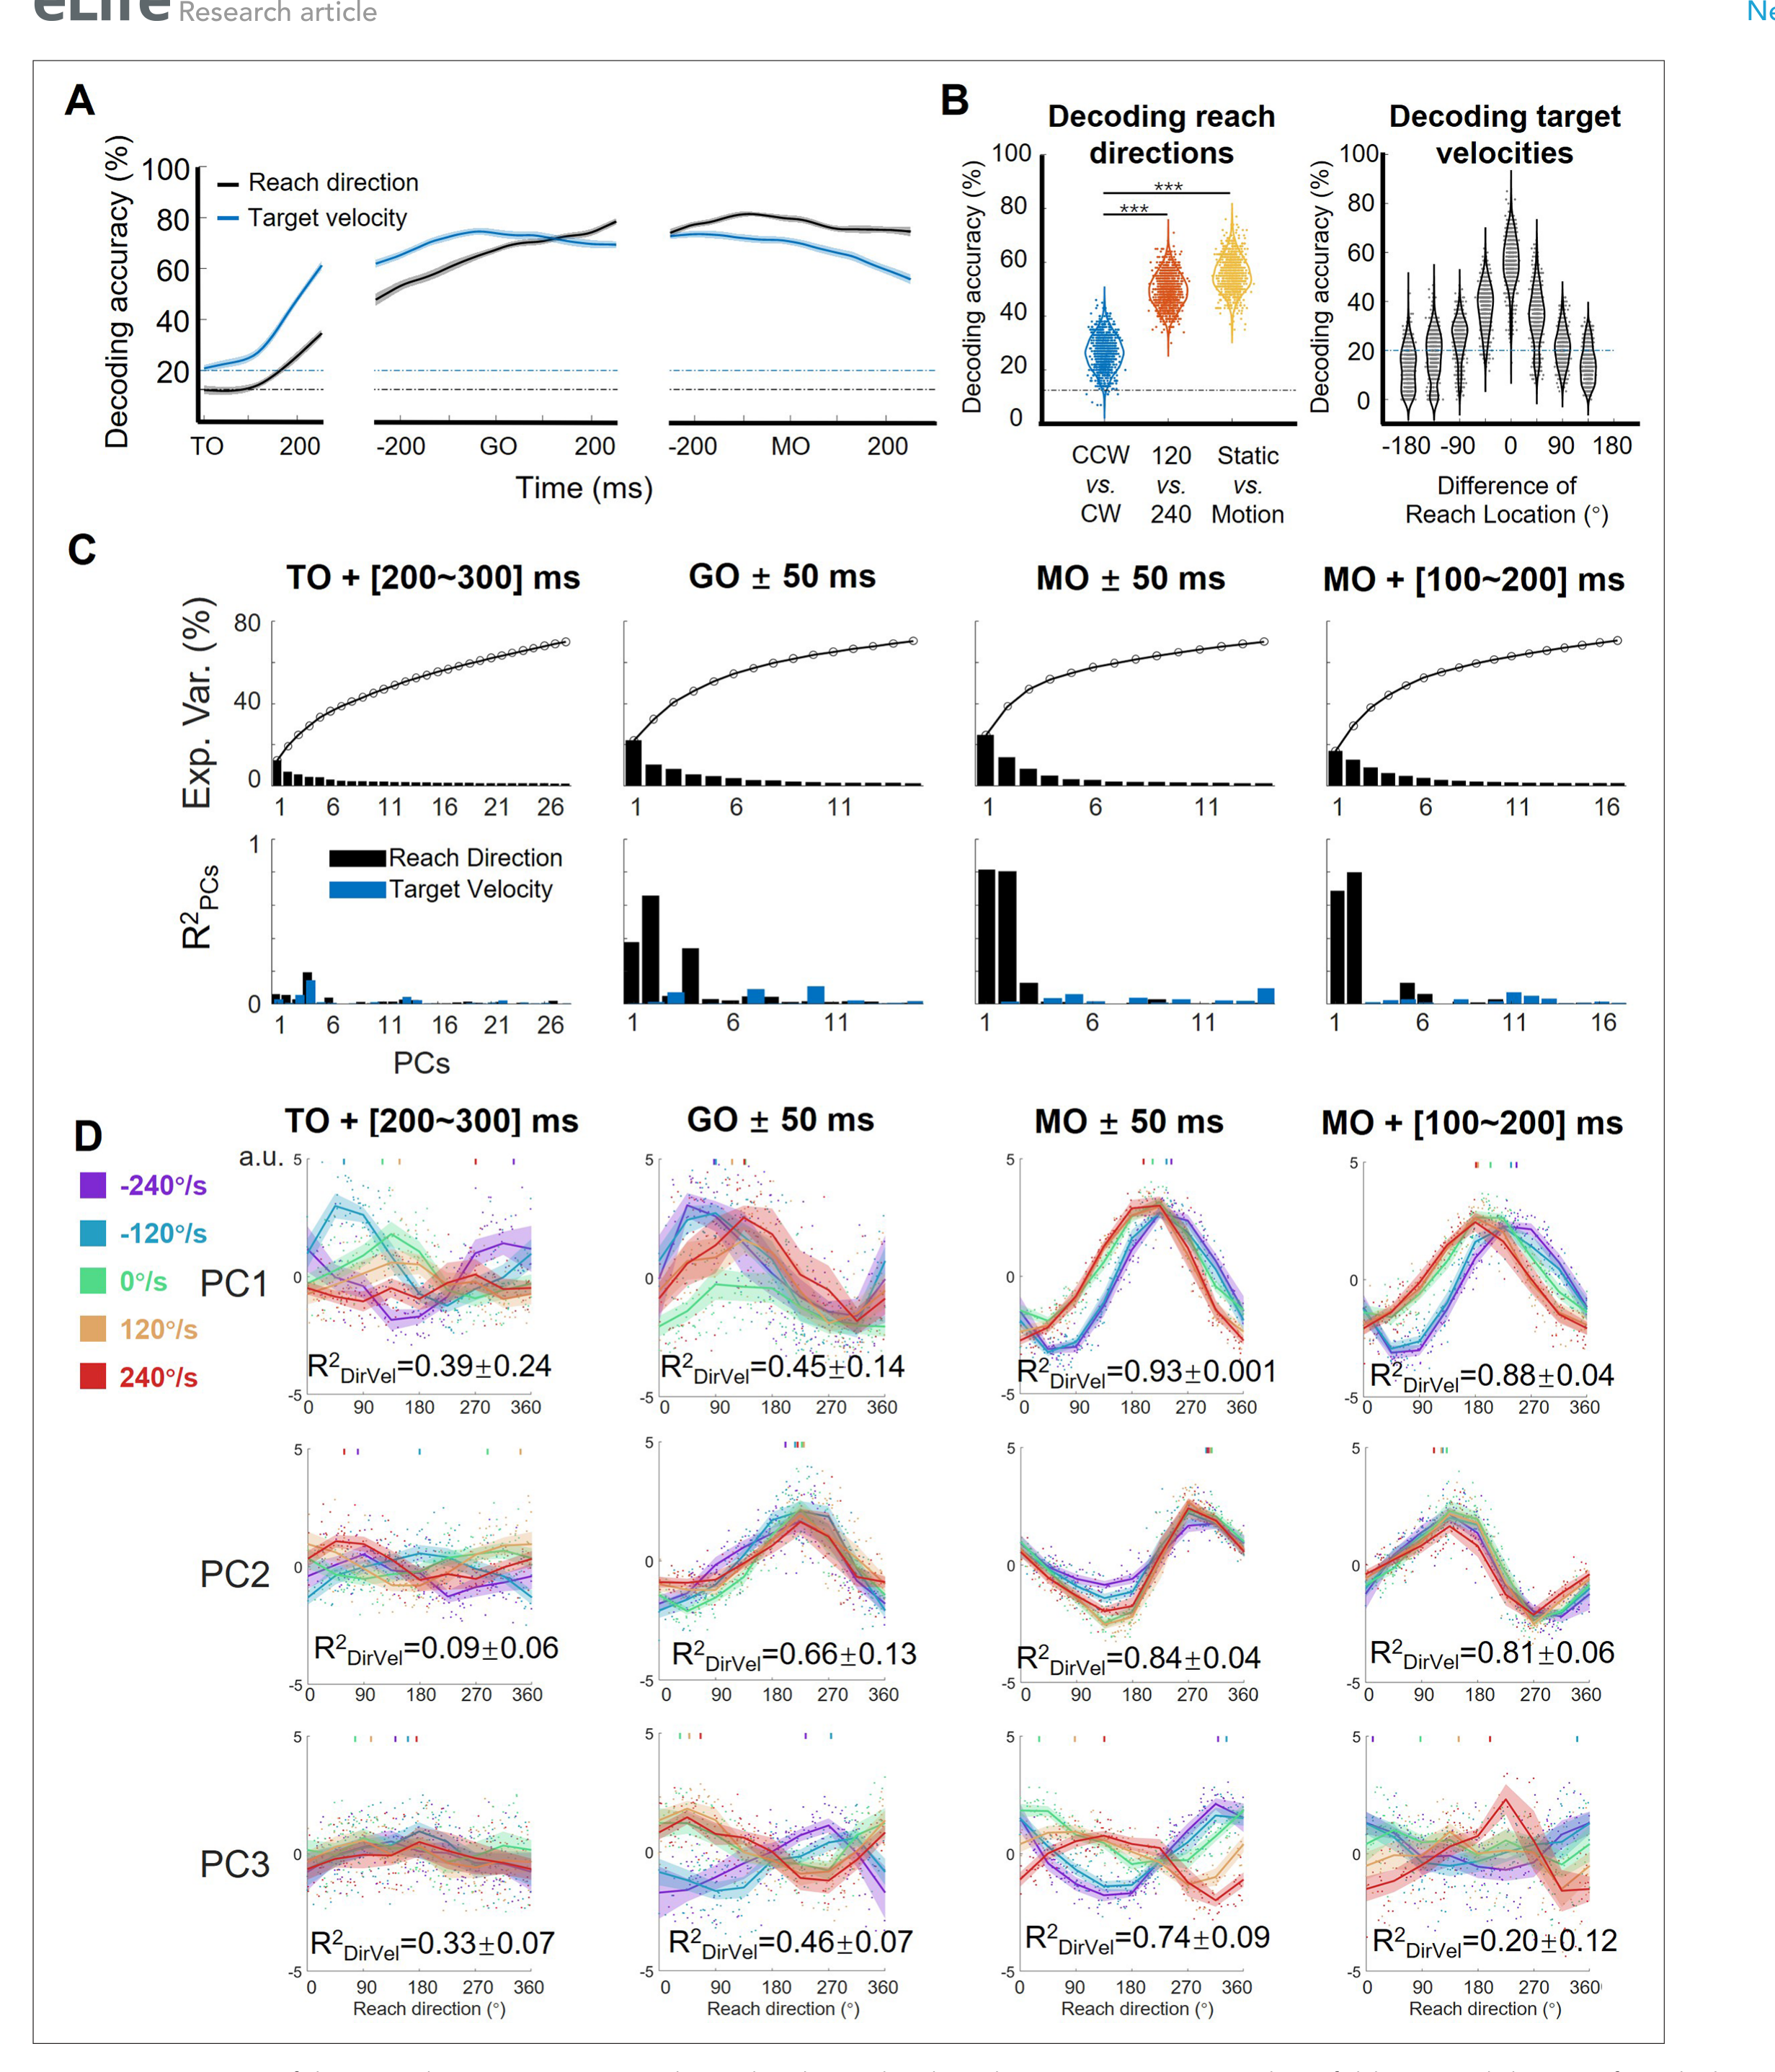
群体层面先确认信息确实在场:目标速度条件在 GO 前后就能被解码到 70% 以上(几率 1/5),伸手方向在 MO 前达到约 80%(几率 1/8)。迁移解码揭示了两套编码的纠缠:伸手方向解码器跨 TVdir 迁移时准确率掉到 0.26±0.06,跨速度大小(0.50±0.06)或动静(0.55±0.06)迁移时却好得多——伸手编码对目标方向敏感,对速度大小宽容。dPCA 同样显示目标速度信息与伸手方向信息共享子空间而非各行其道。
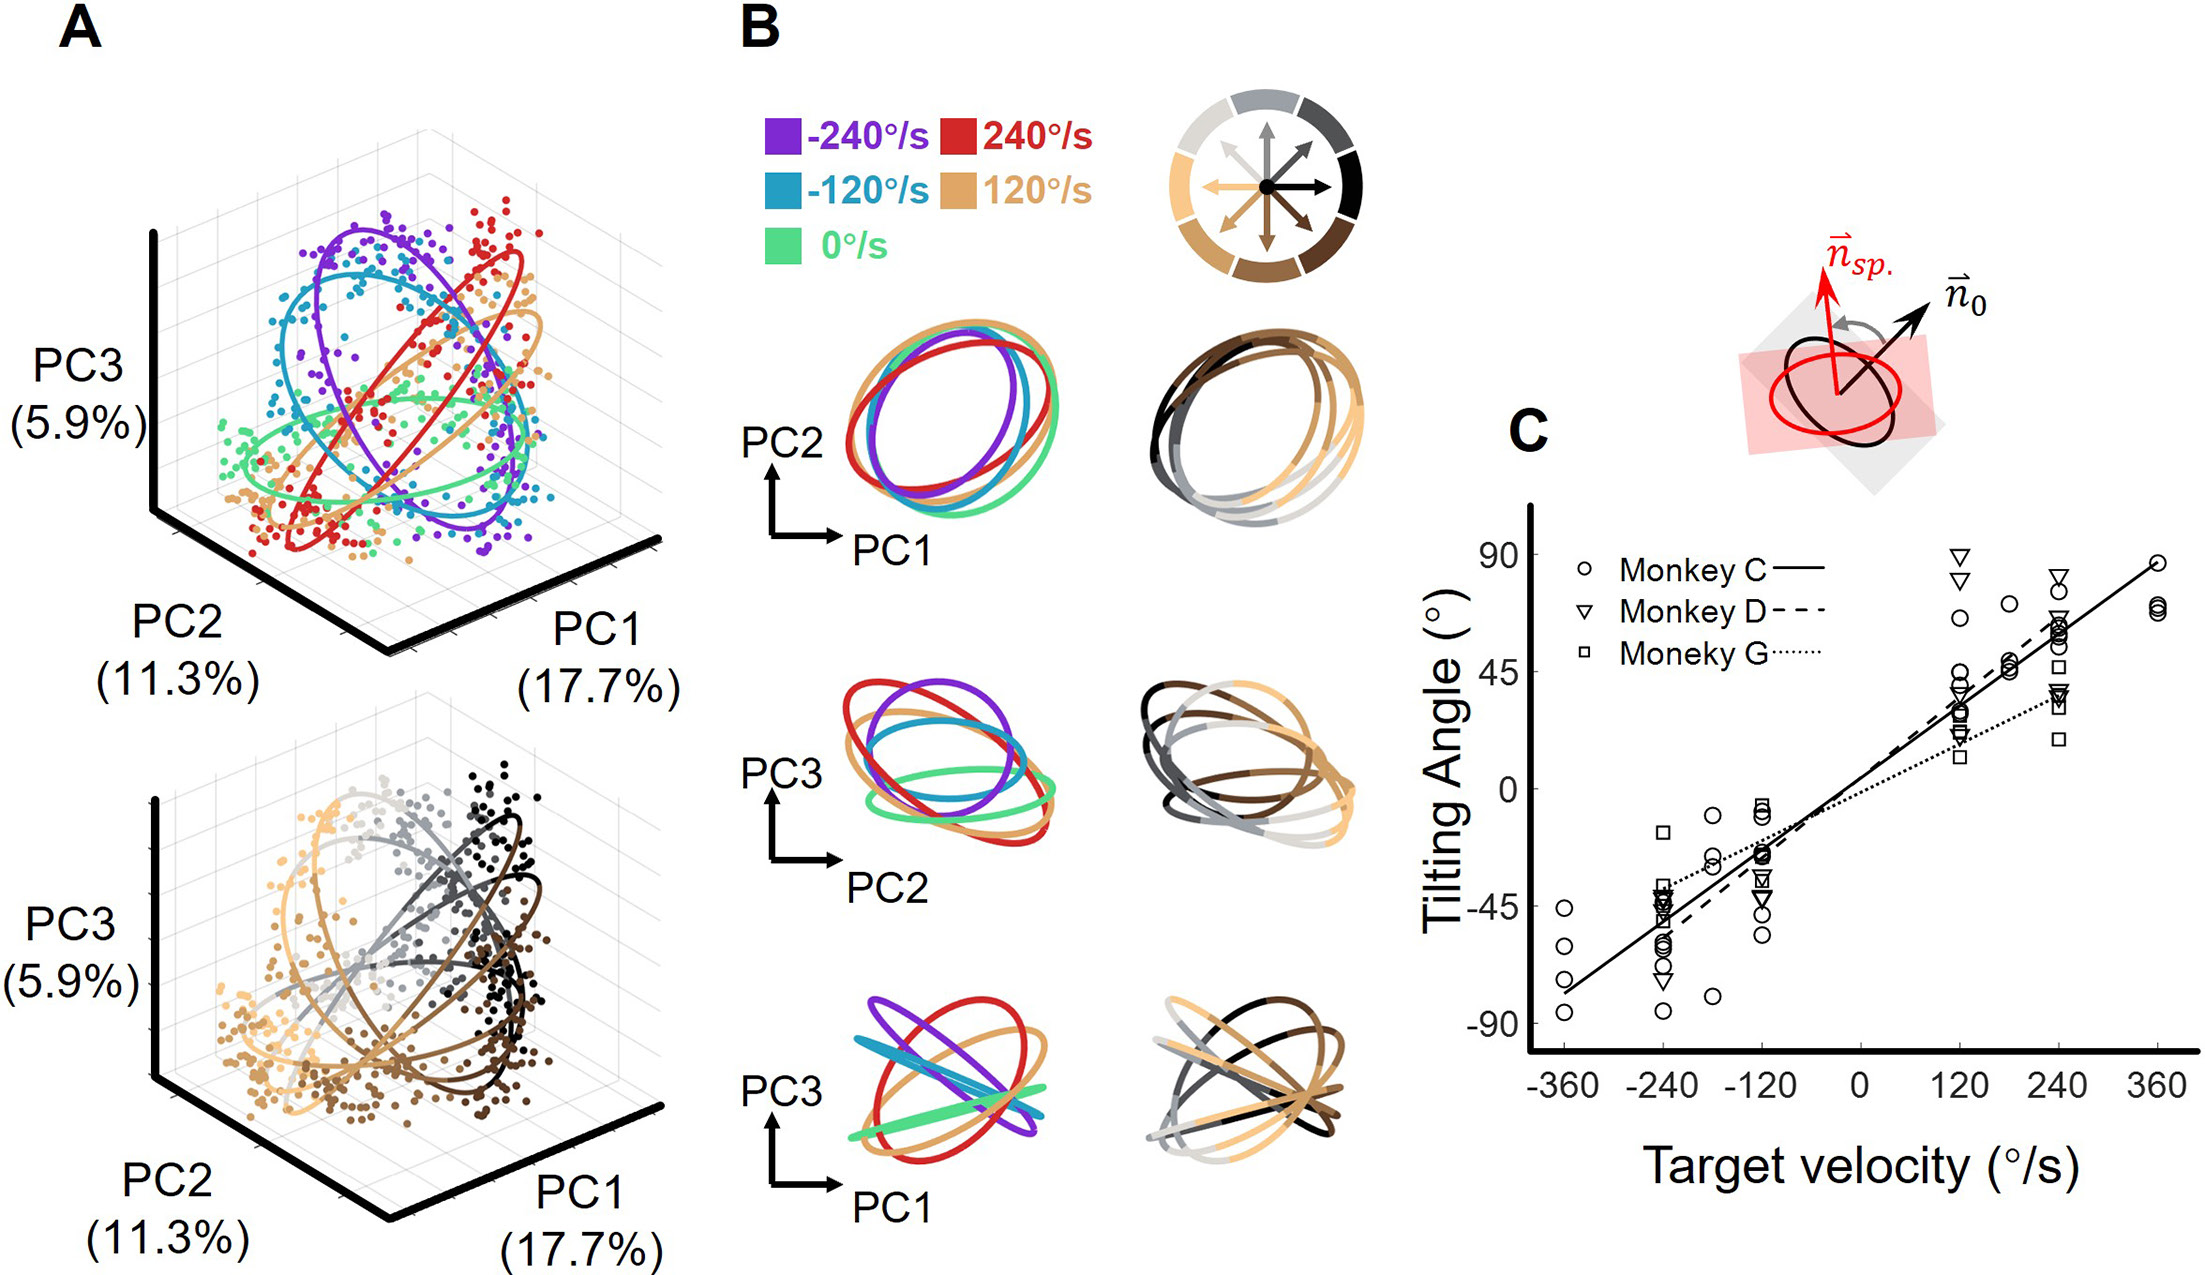
然后是那张照片。把 MO 时刻的单 trial 神经状态投影到前三个 PC(合并数据解释方差 17.7%、11.3%、5.9%;其中 PC1、PC2 对伸手方向的拟合优度达 0.82、0.81):PC1-PC2 平面上,单 trial 状态按 8 个伸手方向扇区排成整齐的环;切到三维,每个目标速度条件各自构成一枚椭圆(拟合优度 R²=0.92±0.01),五枚椭圆大体同心、共处一环带,却在 PC3 方向上按速度倾斜——静态条件的环近于水平,±240 °/s 的环朝两侧翘起。定量化之后是全文最硬的一条定律:椭圆倾角与目标速度呈线性关系,猴 C 为 θ=0.23·vel+4.2(R²=0.91),猴 D 为 0.26·vel+4.3(R²=0.81),猴 G 为 0.15·vel−1.4(R²=0.89),三只猴九个数据集全部成立。作者把这个结构称为 orbital neural geometry:伸手方向决定环的相位,目标速度决定环的倾角——感觉调制以正交于运动表征的方向(PC3)旋进群体几何,恰好对应引言里"正交维度调制而不干预输出"的假说。
两个可能的"假阳性"被逐一排除。其一是手速:手速剖面在各条件间高度相似(相关系数 0.97–0.99),且把手速分布匹配重采样后环结构不变;目标速度的 gain model 也比手速的 gain model 拟合更好。其二是"感觉表征":M1 对纯视觉刺激只有微弱调谐,而此处的调制贯穿运动发起时刻、逐 trial 存在,性质上是服务预测控制的运动前调制。
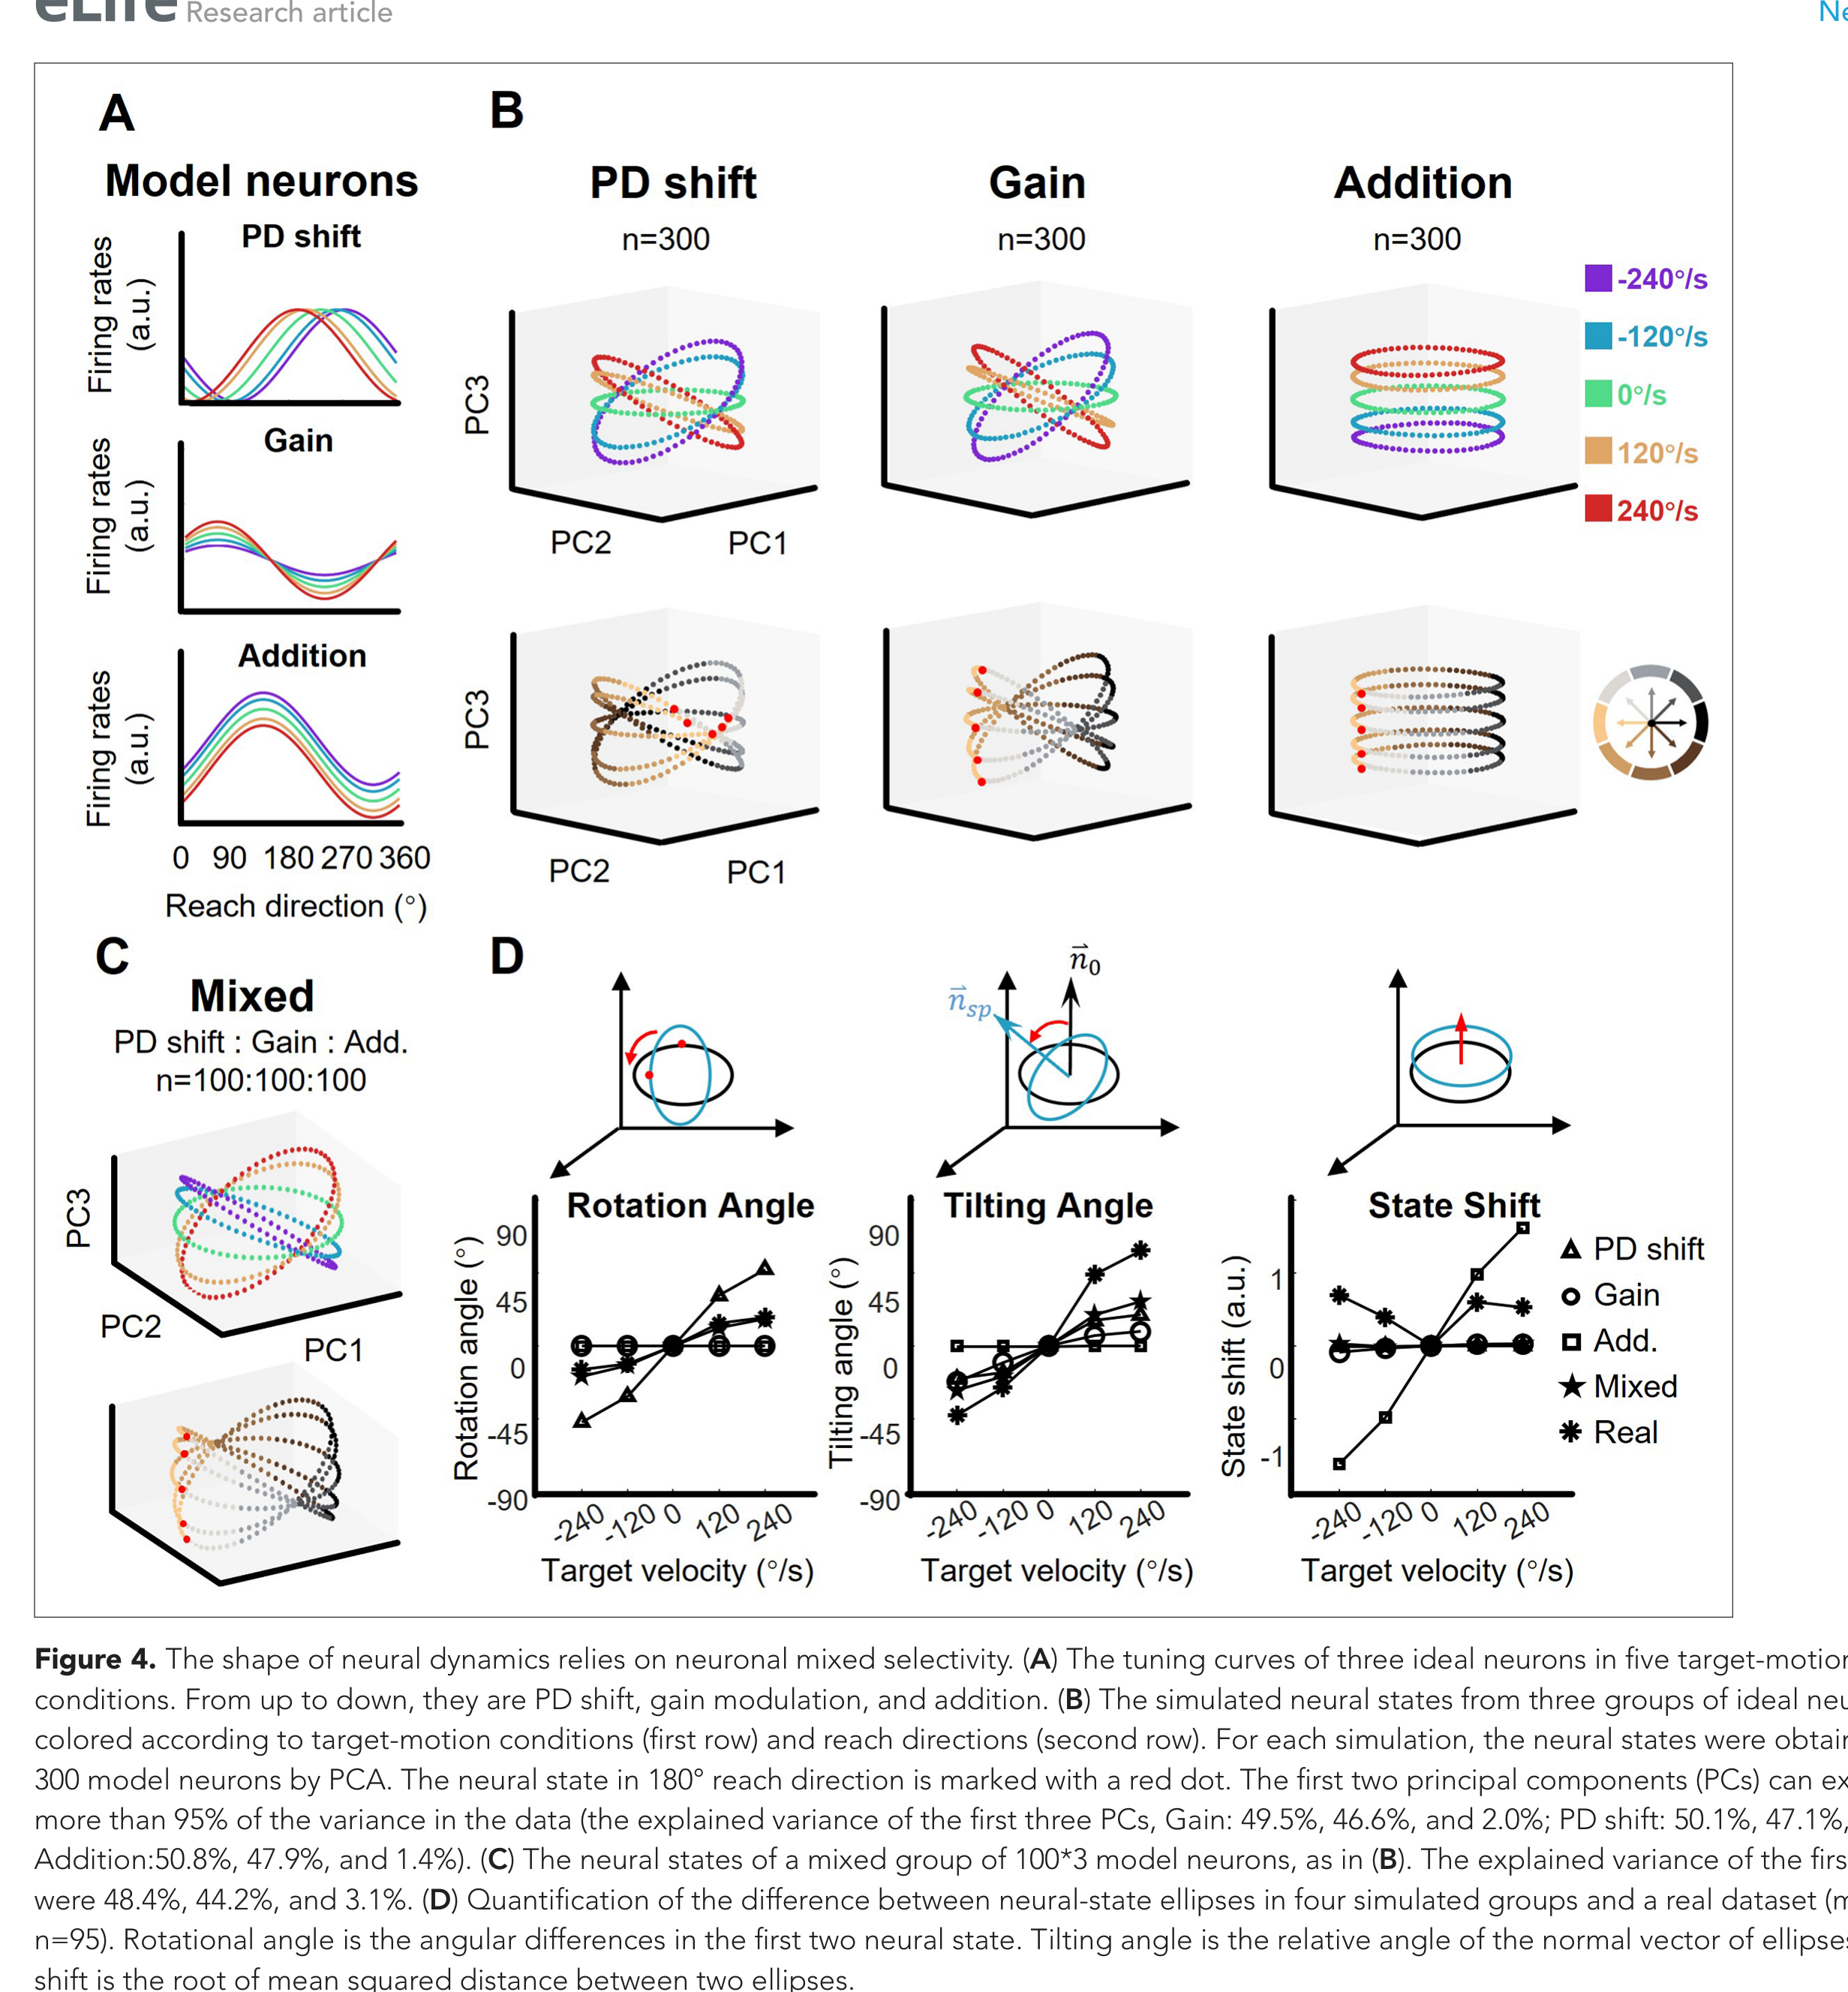
生成机制的验证分两步。表征模型(各 300 个理想神经元,PD 均匀分布):纯 gain 群体与纯 PD-shift 群体都能长出随速度倾斜的椭圆,纯 additive 群体的椭圆则平行分层不倾斜;但 PD-shift 群体在 PC1-PC2 上的伸手聚类不守恒,与真实数据不符——真实数据的几何最接近 gain 主导的群体,而 gain、PD-shift、additive 各 100 个的混合群体同样能复现几何,且倾角拟合最接近实测。RNN(100 个模型,终点误差 0.0046±0.0027,远小于轨道半径 0.15)里三种调制自发涌现(比例与真实数据同量级),节点群体状态在 MO 处排出椭圆(R²=0.98±0.05)、倾角同样随速度线性(θ=0.15·vel+0.11,R²=0.96),CCA 与 Procrustes 分析确认网络动力学与神经动力学同构。消融实验显示三种调制缺一不可——去掉任何一类节点成绩都大幅退化,仅带 PD-shift 的节点对状态结构破坏最大;连接分析发现 gain 与 additive 节点之间及各自内部的连接显著强于其他组合,而人为加强 gain→additive 或 additive 内部连接反而最伤环结构。替代模型把环路逻辑钉死:只给运动意图,环变成与 PC1-PC2 平面平行的重叠环或桶状;只给目标位置,倾斜仍在但伸手聚类溃散——环的几何需要"运动意图定环、目标运动定倾"两种输入合谋。
逐图解读
 原文 Fig. 1 · PDF 第 3 页
图 1 · 延迟拦截任务与三类调制神经元 A 图任务时间线:Hold—Target on—随机延迟—GO—Touch,运动须在 800 ms 内完成。B 图五速度条件下落点均匀分布(Rayleigh 检验 p=0.36),证明猴子无方向偏好。C 图三只猴的 M1 阵列位置。D/E 图是全文的细胞学起点:三个示例神经元的 PSTH 与调谐曲线,分别展示 PD 随速度平移、PD 处增益被速度相乘、整体偏移随速度加减——混合选择性的三种"原子形式"在此同框亮相。
 原文 Fig. 2 · PDF 第 6 页
图 2 · 群体编码的基本格局 A 图:目标速度(蓝)在 GO 附近即可解码至 70% 以上,伸手方向(黑)在 MO 前爬升至约 80%——两类信息在 M1 共存整段 trial。B 图迁移解码:伸手解码器跨 CCW/CW 迁移崩到 0.26,跨速度大小或动静尚存 0.5 上下;目标速度解码器则被伸手方向锁死。C/D 图:前两个 PC 主要承载伸手方向(R²=0.82/0.81),目标速度以各种方式搅动前三个 PC 的调谐样式。感觉与运动在 M1 不是并行通道,而是搅在一起的编码。
 原文 Fig. 3 · PDF 第 7 页
图 3 · 轨道式神经几何 全文的题图。A 图 MO 时刻单 trial 神经状态的三维散点:按目标速度着色可见五枚倾斜的椭圆,按伸手方向着色可见八扇环形排列——同一群点、两种读法。B 图把拟合椭圆投到三个二维子平面,同心结构一目了然。C 图倾角对目标速度的线性回归:三只猴、九个数据集,斜率 0.15–0.26,R² 0.81–0.91。目标速度被写进几何的倾角里,伸手方向写在环的相位里——一张图同时给出两个变量的坐标系。
 原文 Fig. 4 · PDF 第 9 页
图 4 · 几何由单神经元调制拼装 三组各 300 个理想神经元的模拟:PD-shift 组(第二行)与 gain 组(第一行)都能长出随速度倾斜的椭圆,additive 组(第三行)只有平行分层;但 PD-shift 组的伸手聚类在 PC1-PC2 上不守恒。混合组(100×3)复现几何且倾角最贴近实测。D 图用旋转角、倾角、状态平移三个量把四组模拟与真实数据放在同一标尺下——真实数据比所有模型都更倾斜,提示三种调制在真实群体中以更复杂的方式相互成全。
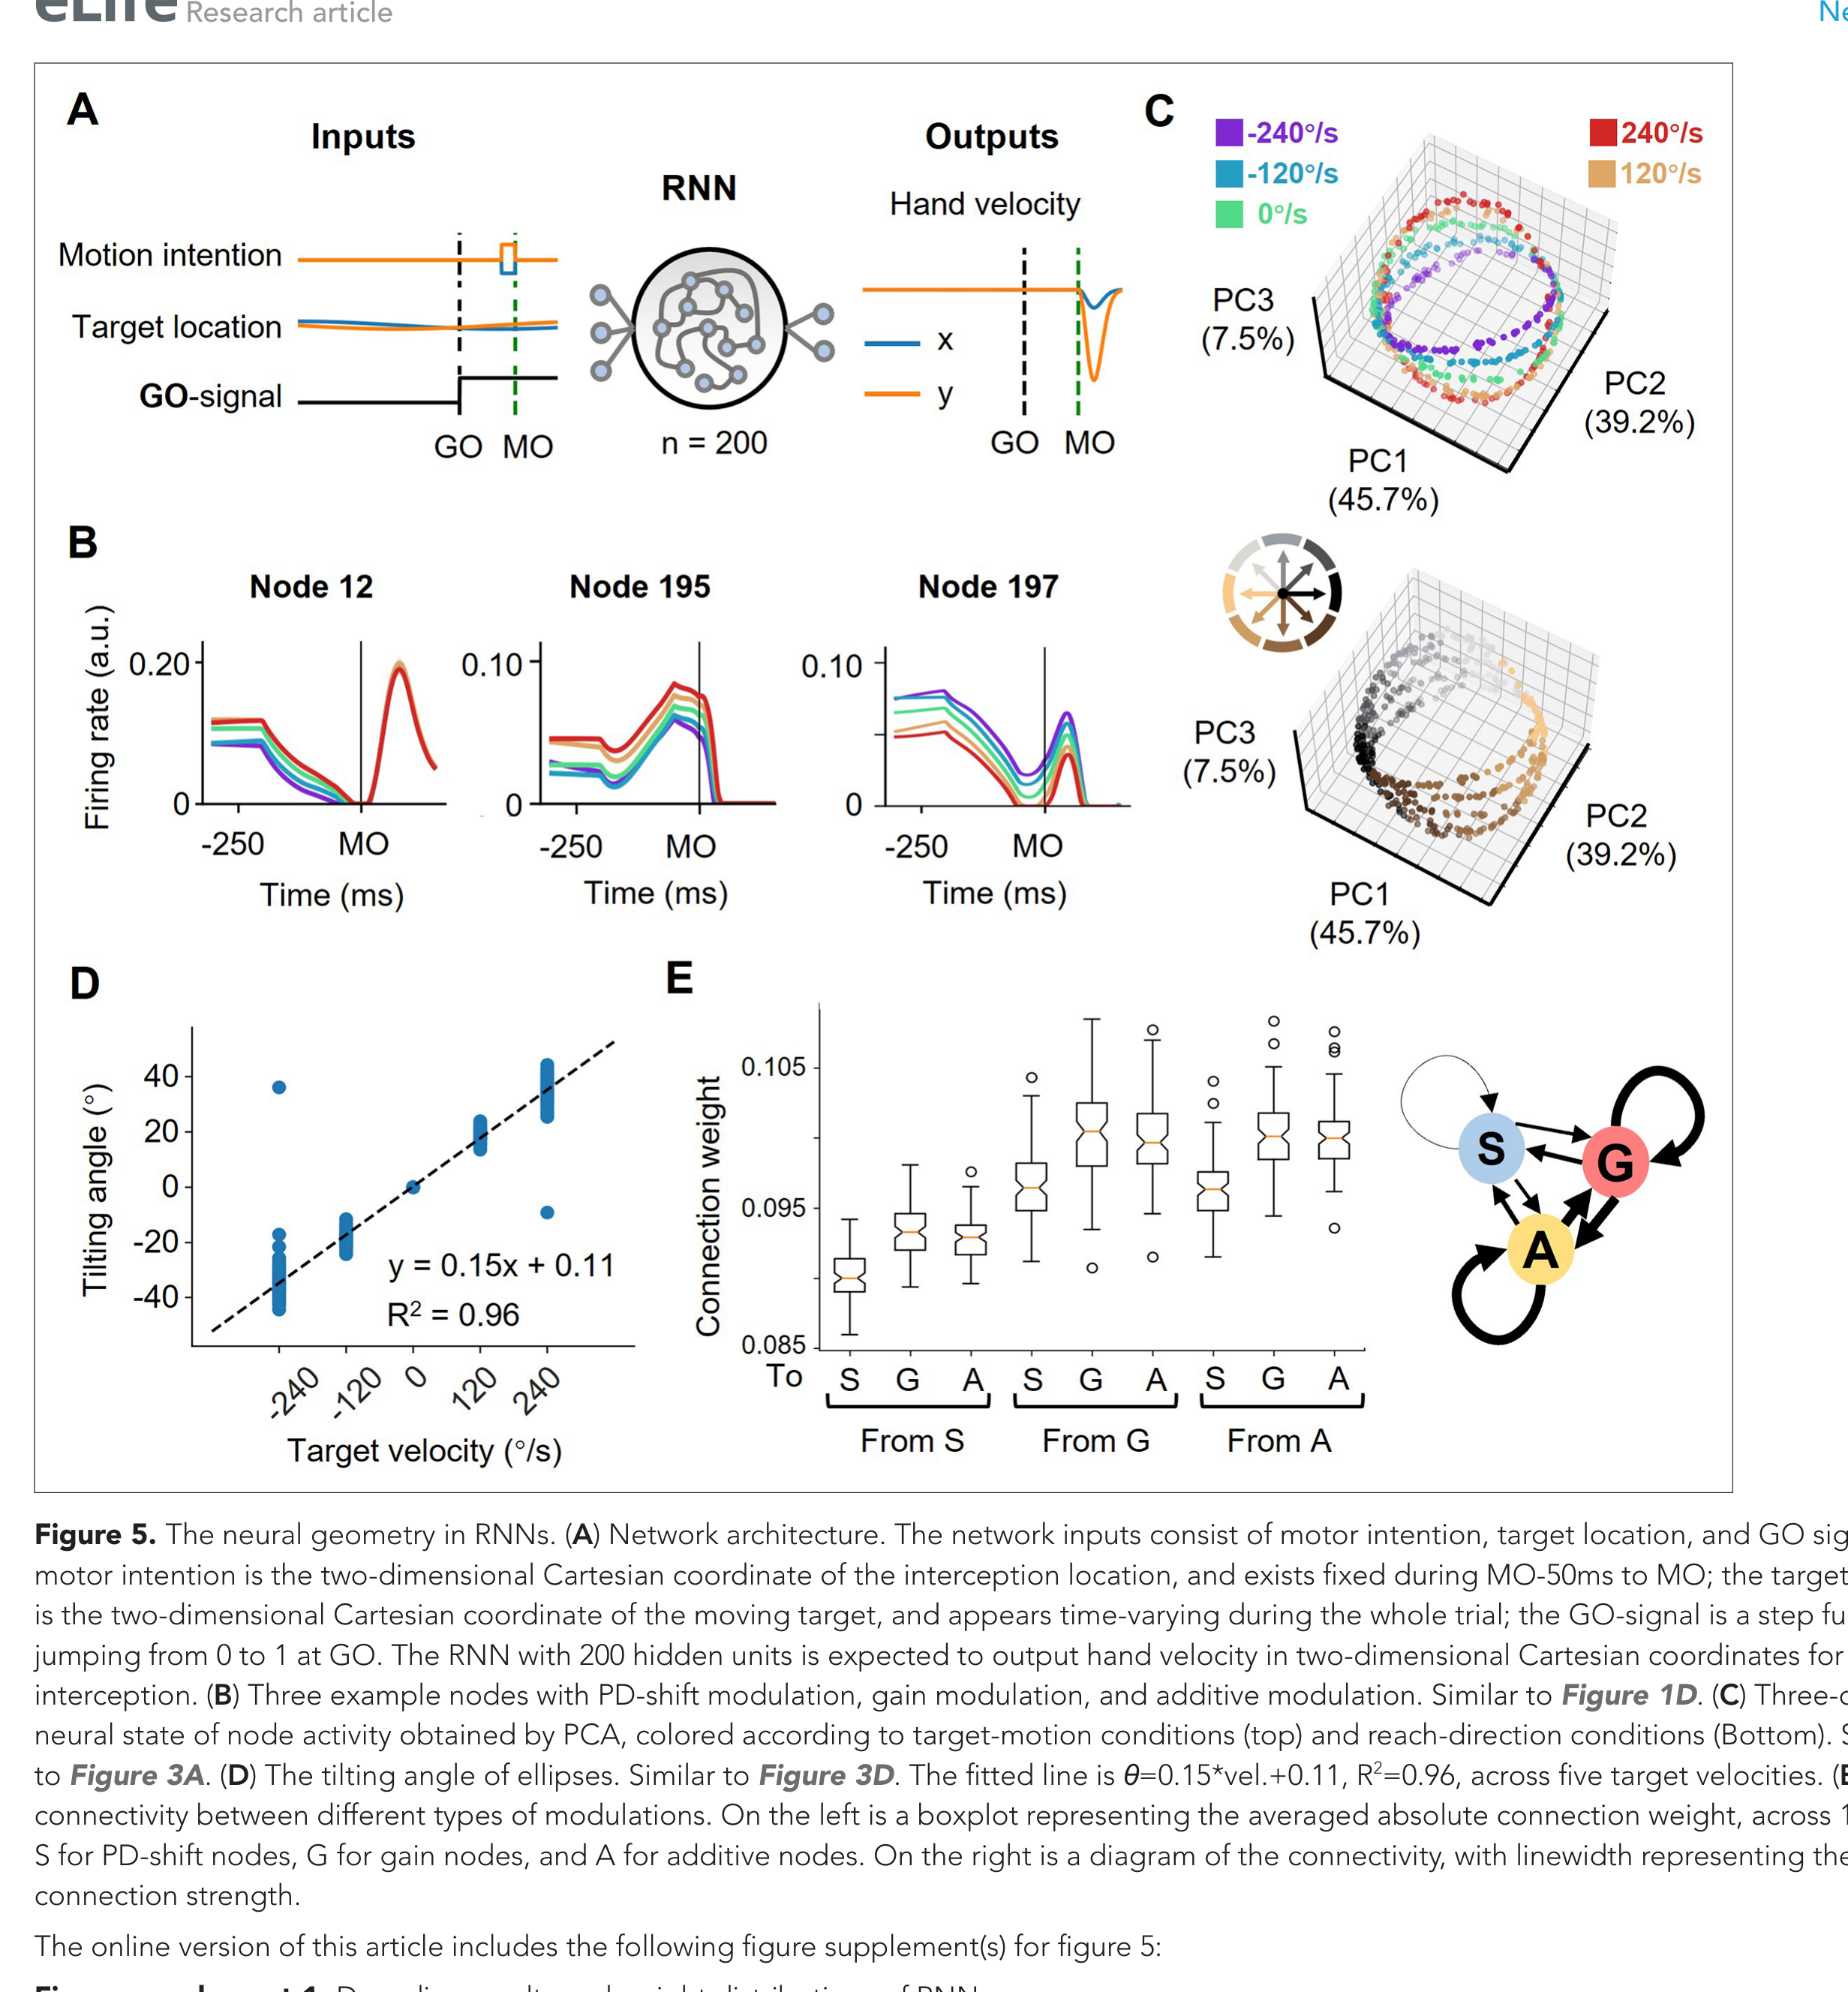 原文 Fig. 5 · PDF 第 10 页
图 5 · RNN 里的同构几何 A 图网络架构:运动意图(MO 前冻结)+ 时变目标位置 + GO 阶跃输入,200 单元,输出 MO 后手速。B 图网络节点自发分化出三种调制,比例与真实 M1 同量级。C/D 图节点群体状态在 MO 处排出椭圆(R²=0.98)、倾角随速度线性(R²=0.96),与图 3 几乎互为镜像。E 图连接结构:gain 与 additive 节点之间的连接最强。消融与操控实验则从因果侧补刀——三种调制都不可或缺,而环结构对 gain→additive 通路的加强最敏感。
讨论
这篇论文最大的贡献是把"混合选择性"从单神经元现象提升为群体几何的生成机制。此前 mixed selectivity 多被视为高阶皮层的认知需要(PFC 里的经典叙事),在这里它被赋予了具体的运动控制功能:目标运动的感觉信号通过 PD 平移、增益、加性三种方式渗入伸手调谐,恰好在群体层面以正交维度的倾斜实现"调制而不干扰"——这与 F02 的 null space 逻辑、F05 的输出-null 隔离形成了概念上的连续谱,只是这里的"null 方向"装载的不是待命的运动计划,而是对目标运动的前瞻感觉调制。
区域对话的图景也被推向具体。作者明确提出 PPC-M1 环路假说:PPC 把感觉调制转换后递给 M1(H06 的 7a 预测信号正是候选),M1 把潜在运动方向回传 PPC,递归互动生成成熟的运动意图与命令。三类调制在 PPC 与运动皮层都有先例——A07 里姿势对 M1 调谐的 gain 与 PD shift 调制、D03/D04 里 PPC 的眼位增益场——支持"三种调制共同参与预测性感觉运动计算"的判断。RNN 的输入消融则给出环路的方向感:运动意图定环、目标运动定倾,缺一几何即溃。
诚实的局限也在文中自陈:没有足够的肌肉记录排除动力学变量(力量)的解释——虽然手速的控制分析已经挡掉了运动学混淆的最大项;RNN 节点的调制与真实神经元的对应仍是结构性类比,"三种调制的具体分工尚未阐明"。另外,倾角-速度线性律虽在三只猴中稳健,其功能含义(为何倾斜幅度随速度线性增长、静态条件仍残留约 4° 倾角)尚无解释。作为"拦截的神经生理学"主线的一环,它与 H09 的连续感觉运动转换视角互为补充:H09 强调转换的连续性增强动力学抗扰性,H08 则展示了转换在几何上留下的具体形状——同一个实验室的两块拼图。
一句话总结:在延迟版灵活拦截中,猕猴 M1 神经元普遍携带 PD-shift、gain、additive 三种目标速度调制(猴 C 逾九成单元至少带一种),使 MO 时刻的单 trial 群体状态排成按伸手方向定相位、按目标速度定倾角的同心椭圆环(倾角-速度线性回归 R²=0.81–0.91),且该几何可由混合调制的表征群体与输入输出匹配的 RNN 自发复现——感觉调制以近似正交的方向织入运动皮层的预测性群体动力学。
思考问题
- 没有足够的肌肉记录排除力量解释——补肌肉与力量记录,把三种调制(PD-shift、gain、additive)分别对肌肉变量回归,看几何在控制肌肉后是否存活:存活,“前瞻感觉调制”的读法坐实;被肌肉变量吸收,同心环是输出动力学的侧影——作者自陈的最大软肋,值得正面补一块数据。
- 静态条件残留约 4° 倾角、倾角随目标速度线性增长——功能含义没解释:把倾角与同一时刻的拦截误差空间分布对质:倾角大的时刻预测误差更小,几何是功能性的;与误差无关,倾角只是调制的副产品——先回答“值不值得增长”,再回答“为何线性增长”。