H03 · Neural responses during interception of real and apparent circularly moving stimuli in motor cortex and area 7a
Hugo Merchant, Alexandra Battaglia-Mayer & Apostolos P. Georgopoulos (2004) Cerebral Cortex, 14(3), 314–331. doi:10.1093/cercor/bhg130
圆周拦截中,M1和7a的活动与目标、力及剩余时间的关联随连续显示和离散闪现而变化。结果支持情境依赖的感觉运动处理,但不构成两条专属通路的因果双重分离。
核对依据:Zotero 条目 · 本地全文。本轮核对原文方法、关键结果、解释边界及所引主图;更新于2026-09-20。图注页码采用本地PDF文件页序,版本与未解决问题见正文及审查记录。
背景
拦截既依赖对目标运动状态的知觉估计,也依赖及时的肌肉力矩输出,但不同呈现方式提供的“运动线索”在物理本质上存在差异。屏幕上平滑连续移动的目标提供连续视网膜运动流,而离散位置规律闪烁的目标则同时提供离散空间跳变与固定的时间间隔线索。两类刺激均能引导成功的拦截,但神经系统可能动用了不同的感觉运动整合途径。此前关于运动皮层拦截活动的研究表明感觉与动作表征在局部环路中共存;核心问题在于,当输入线索由连续变为离散闪烁时,后顶叶皮层(7a区)与初级运动皮层(M1)的功能耦合及编码权重是否发生动态重分配。
两只恒河猴通过操作半等距操纵杆输出等长力脉冲,在圆周轨迹的固定底端位置截击平滑运动(real)或五点离散闪现(apparent)的目标;实验同步设置静态目标拦截与NOGO保持控制,并在7a区与M1开展微电极记录。注意文中的real与apparent特指屏幕光标的呈现模式,非真实物理实体与虚拟画面的对比。作者采用包含自回归误差结构的时变多元线性回归模型,分析目标瞬时角度位置、到达会合点的剩余时间(tau)、手部垂直拦截力及其时间变化率(dF/dt)对放电率的调制,并辅以严格的注视点控制与肌电记录,剖析两皮层区域的表征偏好。
结果显示,连续运动与离散闪烁条件诱发了显著不同的神经编码倾向:连续运动下7a区主要编码目标空间角度,M1主要编码手部力输出;在离散闪现条件下,M1中表征剩余到达时间tau的神经元比例显著上升。该结果支持感觉运动整合随任务线索动态调整的理论,但未确立两条孤立并行的专属通路。由于目标角度、时间与手部发力在时序上高度自相关,回归中多时滞网格搜索获取的最优时移仅为拟合统计量,不能解释为皮层间的直接轴突传导时延;表观运动条件下动物亦可采用基于时间间隔的节律估计策略。本文明确了皮层信息编码对视觉运动呈现方式的情境依赖性。
研究思路
在拦截、NOGO与静态目标任务间比较,再用含自回归误差的时变回归分析目标角度、tau和手力,检查固视与肌电对照。
方法
两只恒河猴以半等距操纵杆产生力脉冲,在圆环6点钟方向拦截目标。real指屏幕上平滑显示,apparent指五个位置依次闪现,均非真实物体。分析M1的776和7a的766个细胞;肌电在独立时段记录。
回归先处理眼位相关项,再拟合角度正余弦、目标到会合点的tau、竖直力及其变化率。每个运动条件搜索405个时移组合并取最大R²,不是留出数据预测。方法中角度和tau时移为−160至160 ms,力的共同移位为0至160 ms,步长40 ms;结果段概述范围不够准确,解释力领先效应必须注意搜索边界。
主要结果
拦截中有任务效应的M1细胞为502/776,7a为450/766;NOGO分别为347/776和436/766。不同统计窗口、检验与筛选产生不同分母,不能交叉混用。
显著时变模型对应M1的515个细胞、7a的356个,显著模型R²中位数约0.138和0.125。real时M1首要项较常为力,7a为角度;apparent时M1的tau重要性增加。表2中38/459=8.3%和270/868=31.1%是各条件显著参数项总计中的构成比例:459与868是该列四项计数之和,后者甚至超过M1细胞总数,不能称为8.3%和31.1%的全部M1神经元。
图8显著关联的phi均为负,意味着两个显著效应倾向分属不同细胞,不能写成超机会地在同一细胞共现。某些细胞仍有多项效应,这与负关联不矛盾。
最优时移显示M1力项较常领先、7a刺激项较常滞后;这些是受搜索范围、时序相关和模型选择影响的统计结果,不能当作传导时间或7a到M1的因果路径。固视对照保留主要模式,但部分细胞仍受固视条件影响。
逐图解读
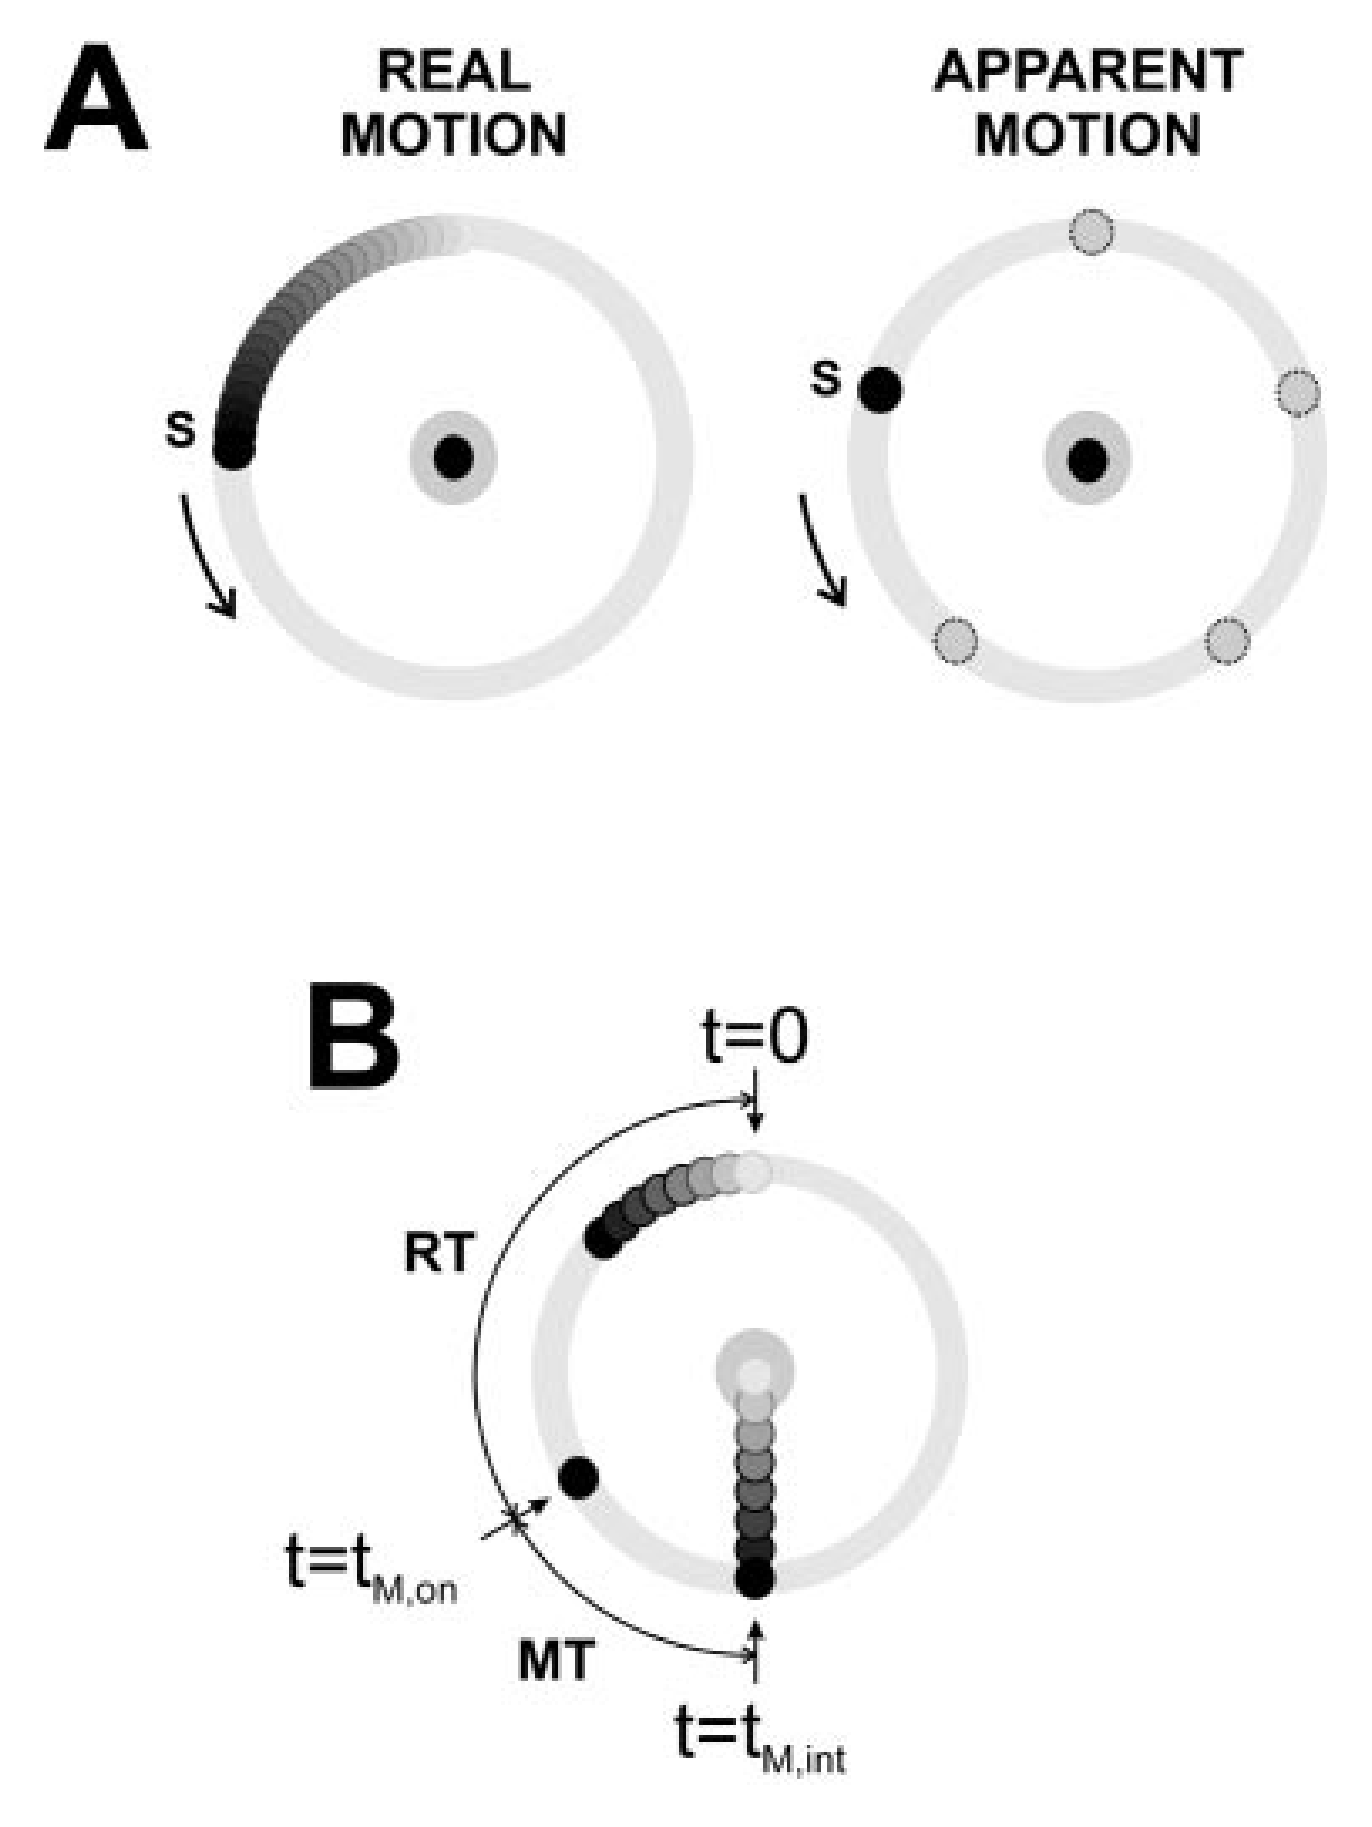 原文 Fig. 1 · PDF 第 2 页 · 原文图像 · 查看来源
图1 · 两种显示与力脉冲任务。 real仍是屏幕显示,光标由力控制。
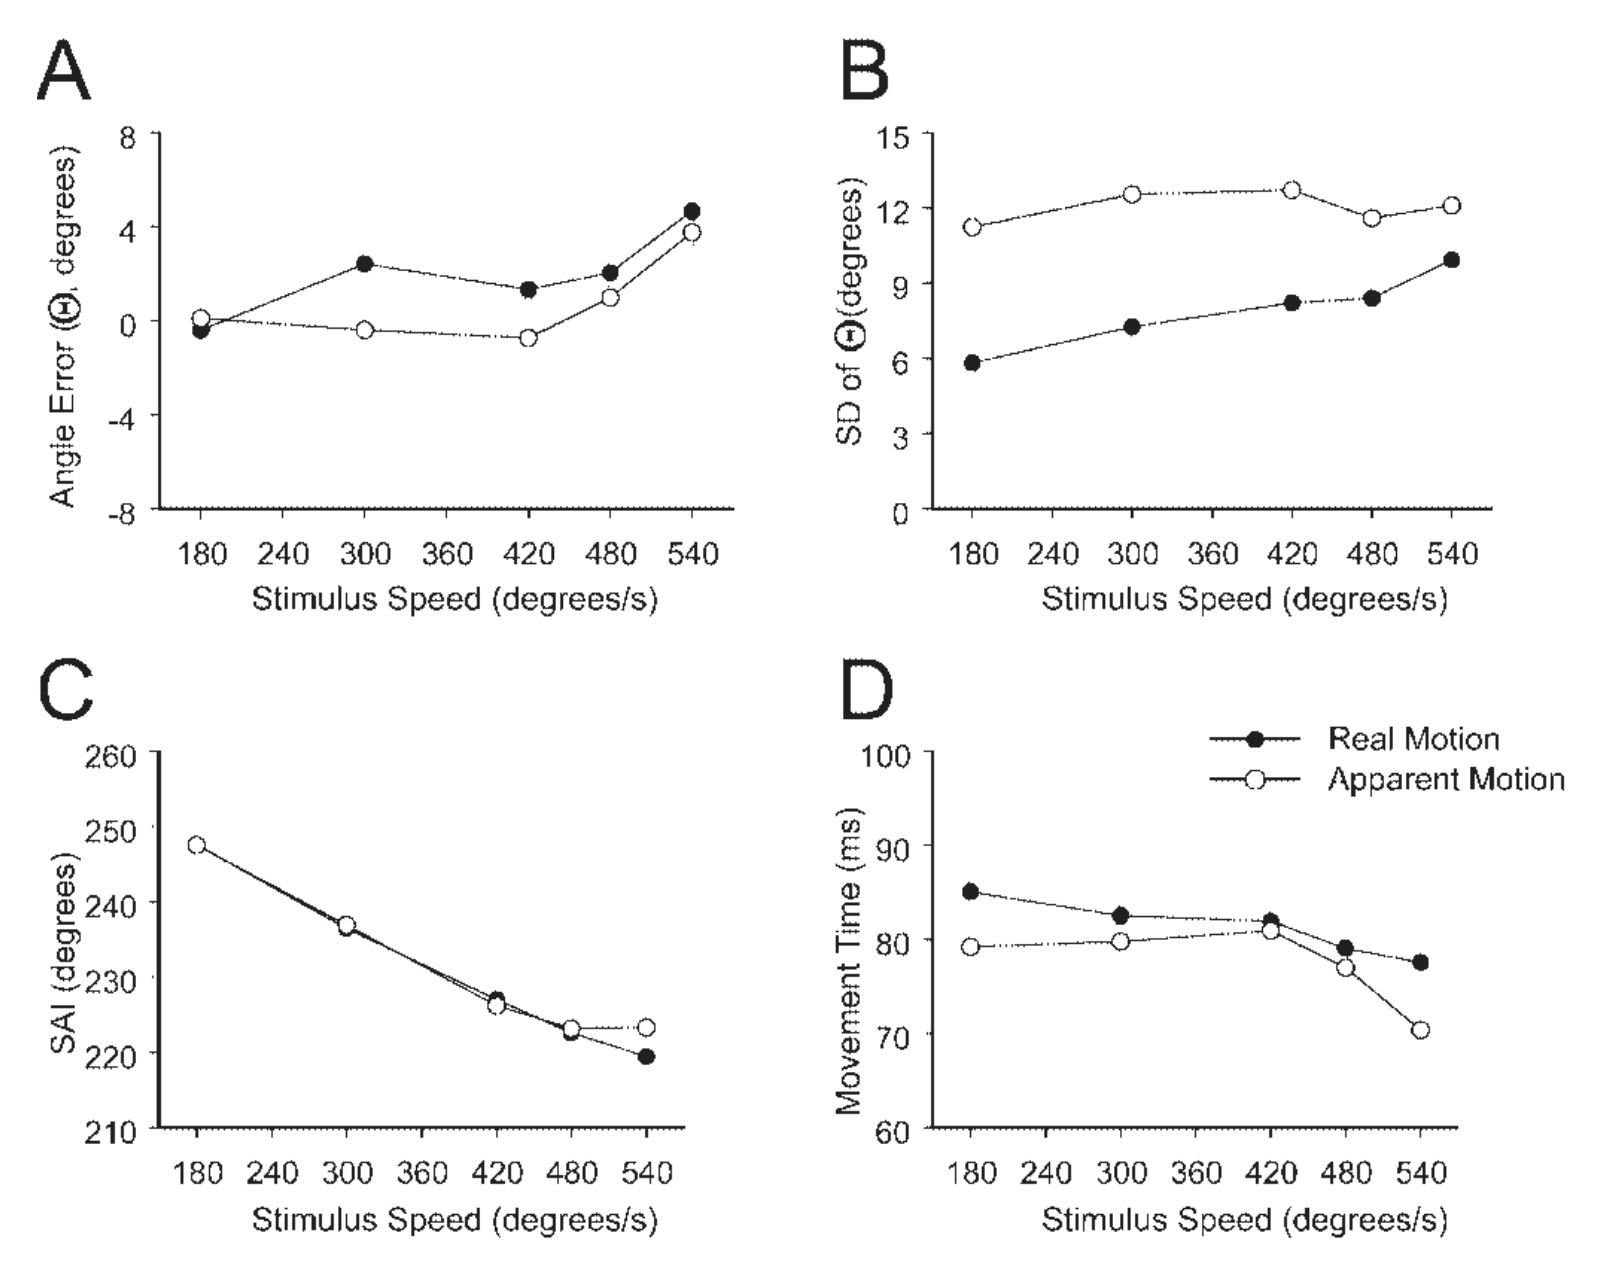 原文 Fig. 2 · PDF 第 4 页 · 原文图像 · 查看来源
图2 · 行为误差与时程。 apparent的变异较大;不能只凭启动角和运动时长确定唯一策略。
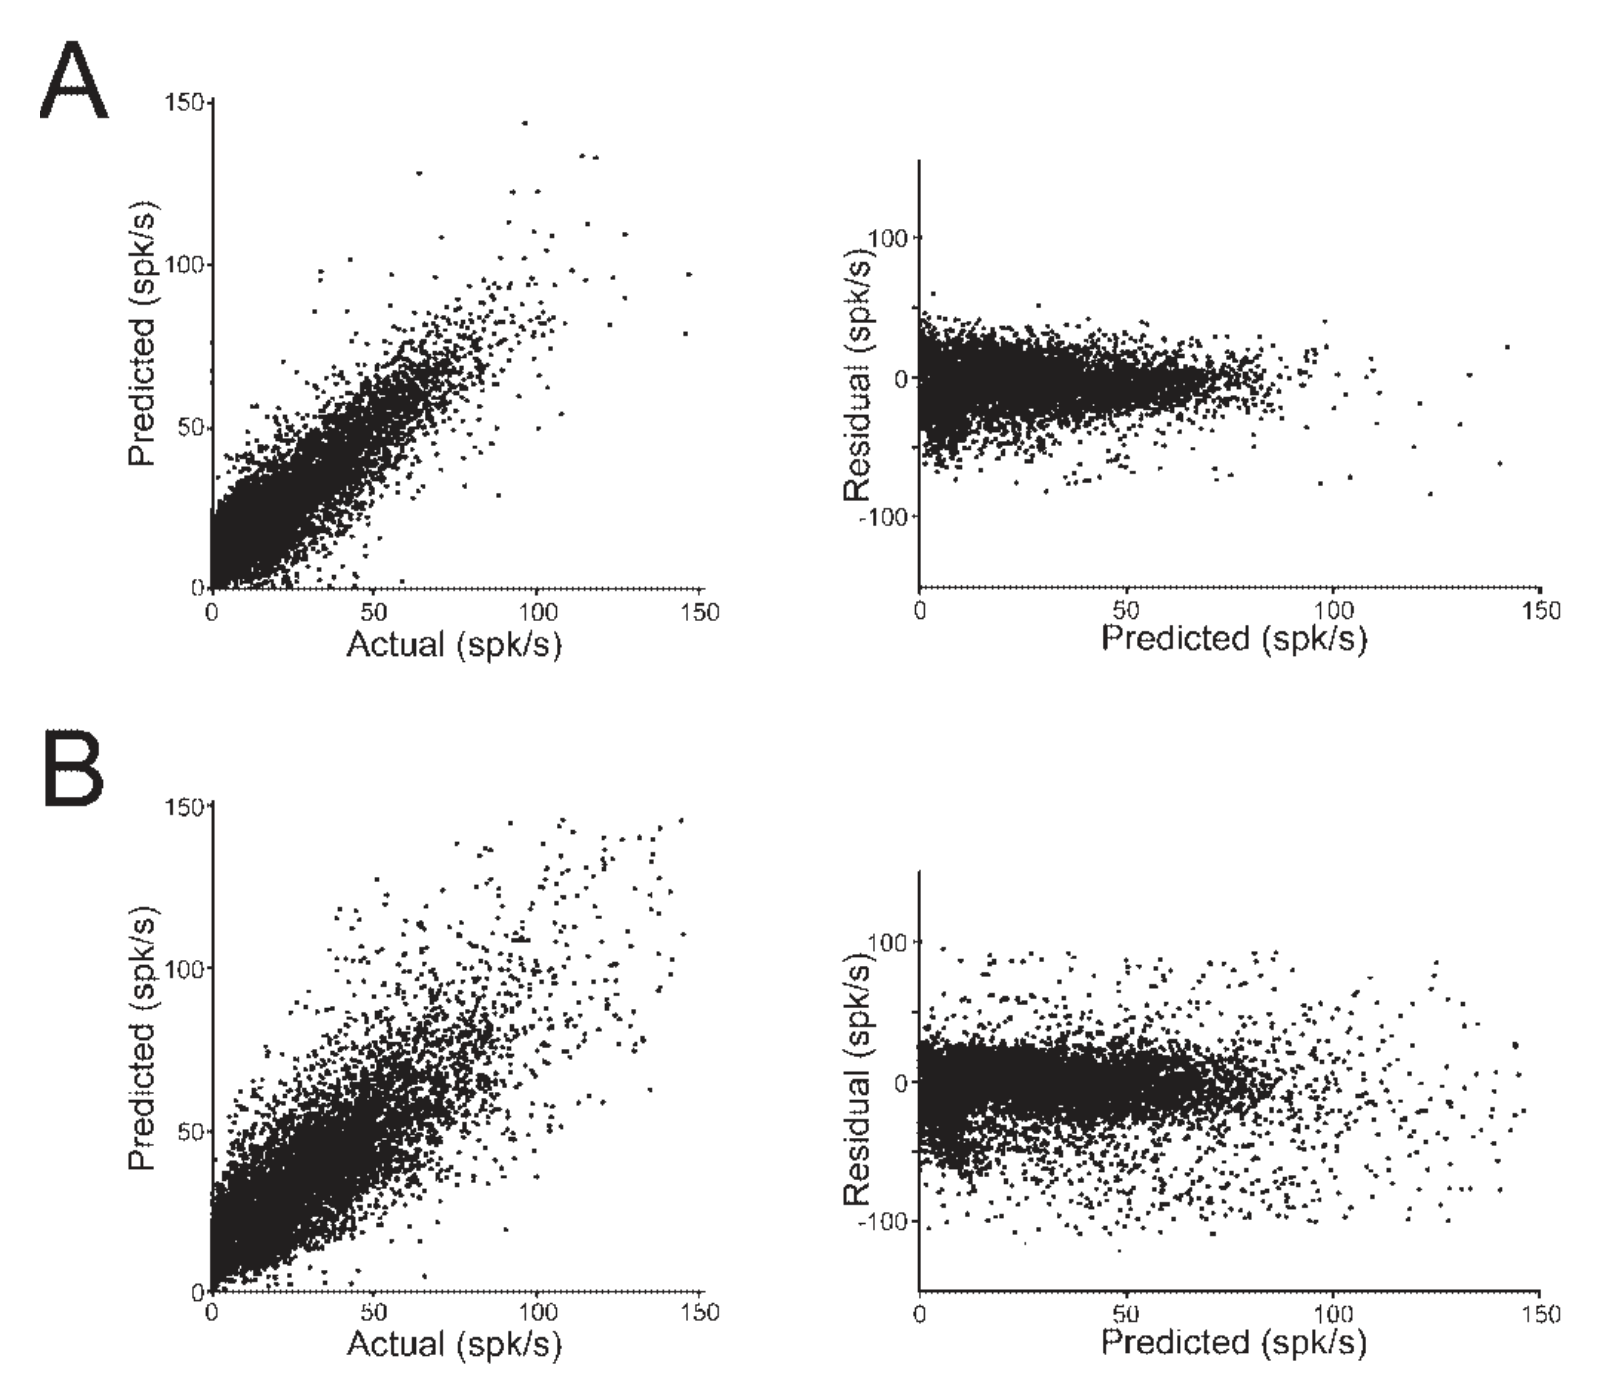 原文 Fig. 3 · PDF 第 5 页 · 原文图像 · 查看来源
图3 · 拟合与残差。 左为实际与预测,右为预测与残差,以坐标轴为准,原图注左右有误。
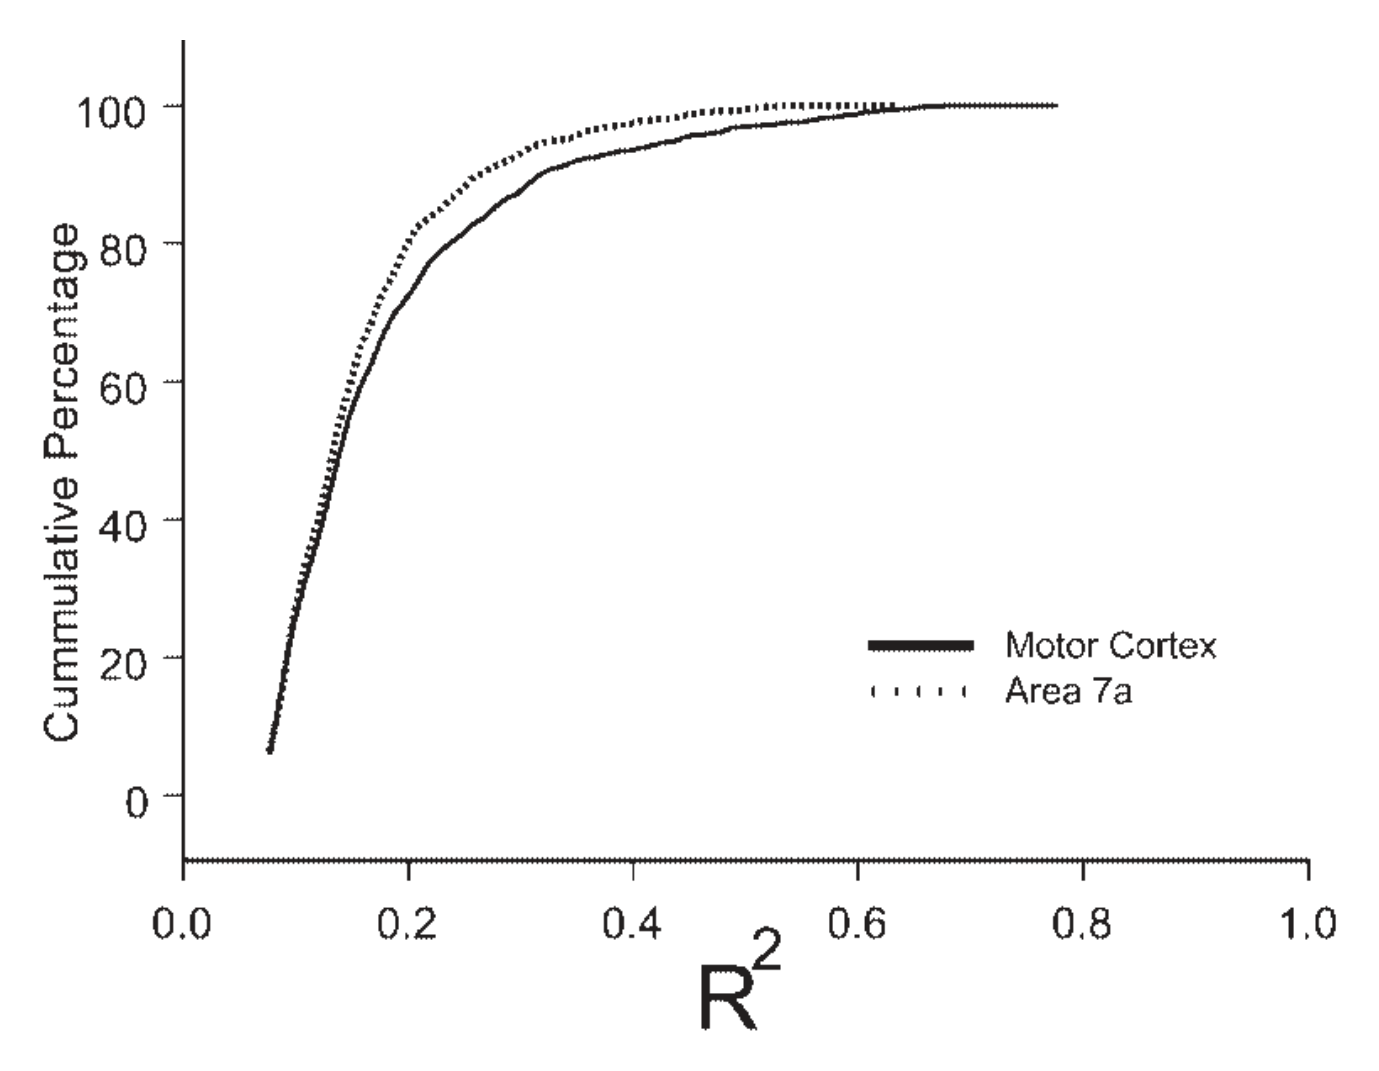 原文 Fig. 4 · PDF 第 5 页 · 原文图像 · 查看来源
图4 · R²分布。 显著模型不等于高解释率或泛化预测。
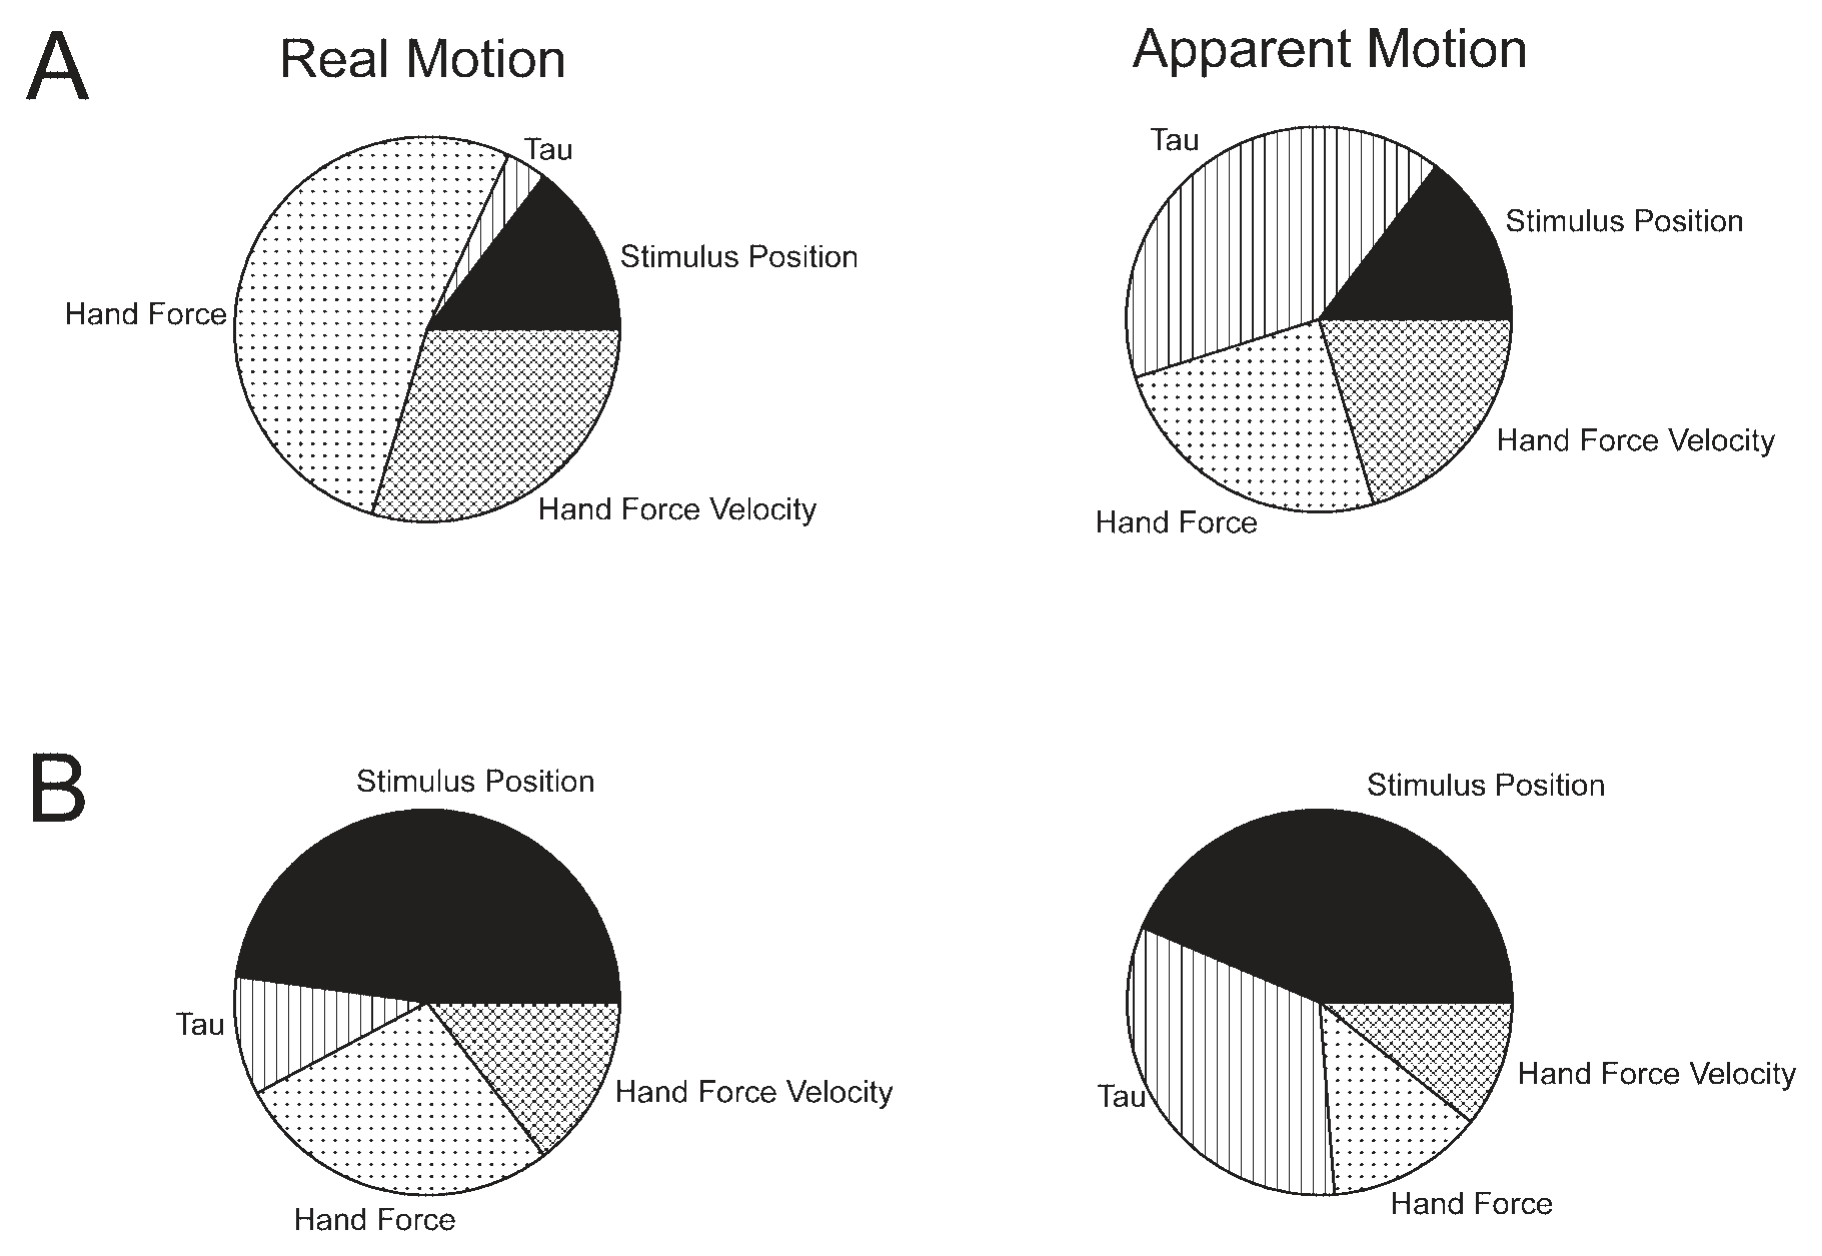 原文 Fig. 5 · PDF 第 6 页 · 原文图像 · 查看来源
图5 · 无固视时的首要回归项。 是标准化系数排名,区别于表2各显著项计数。
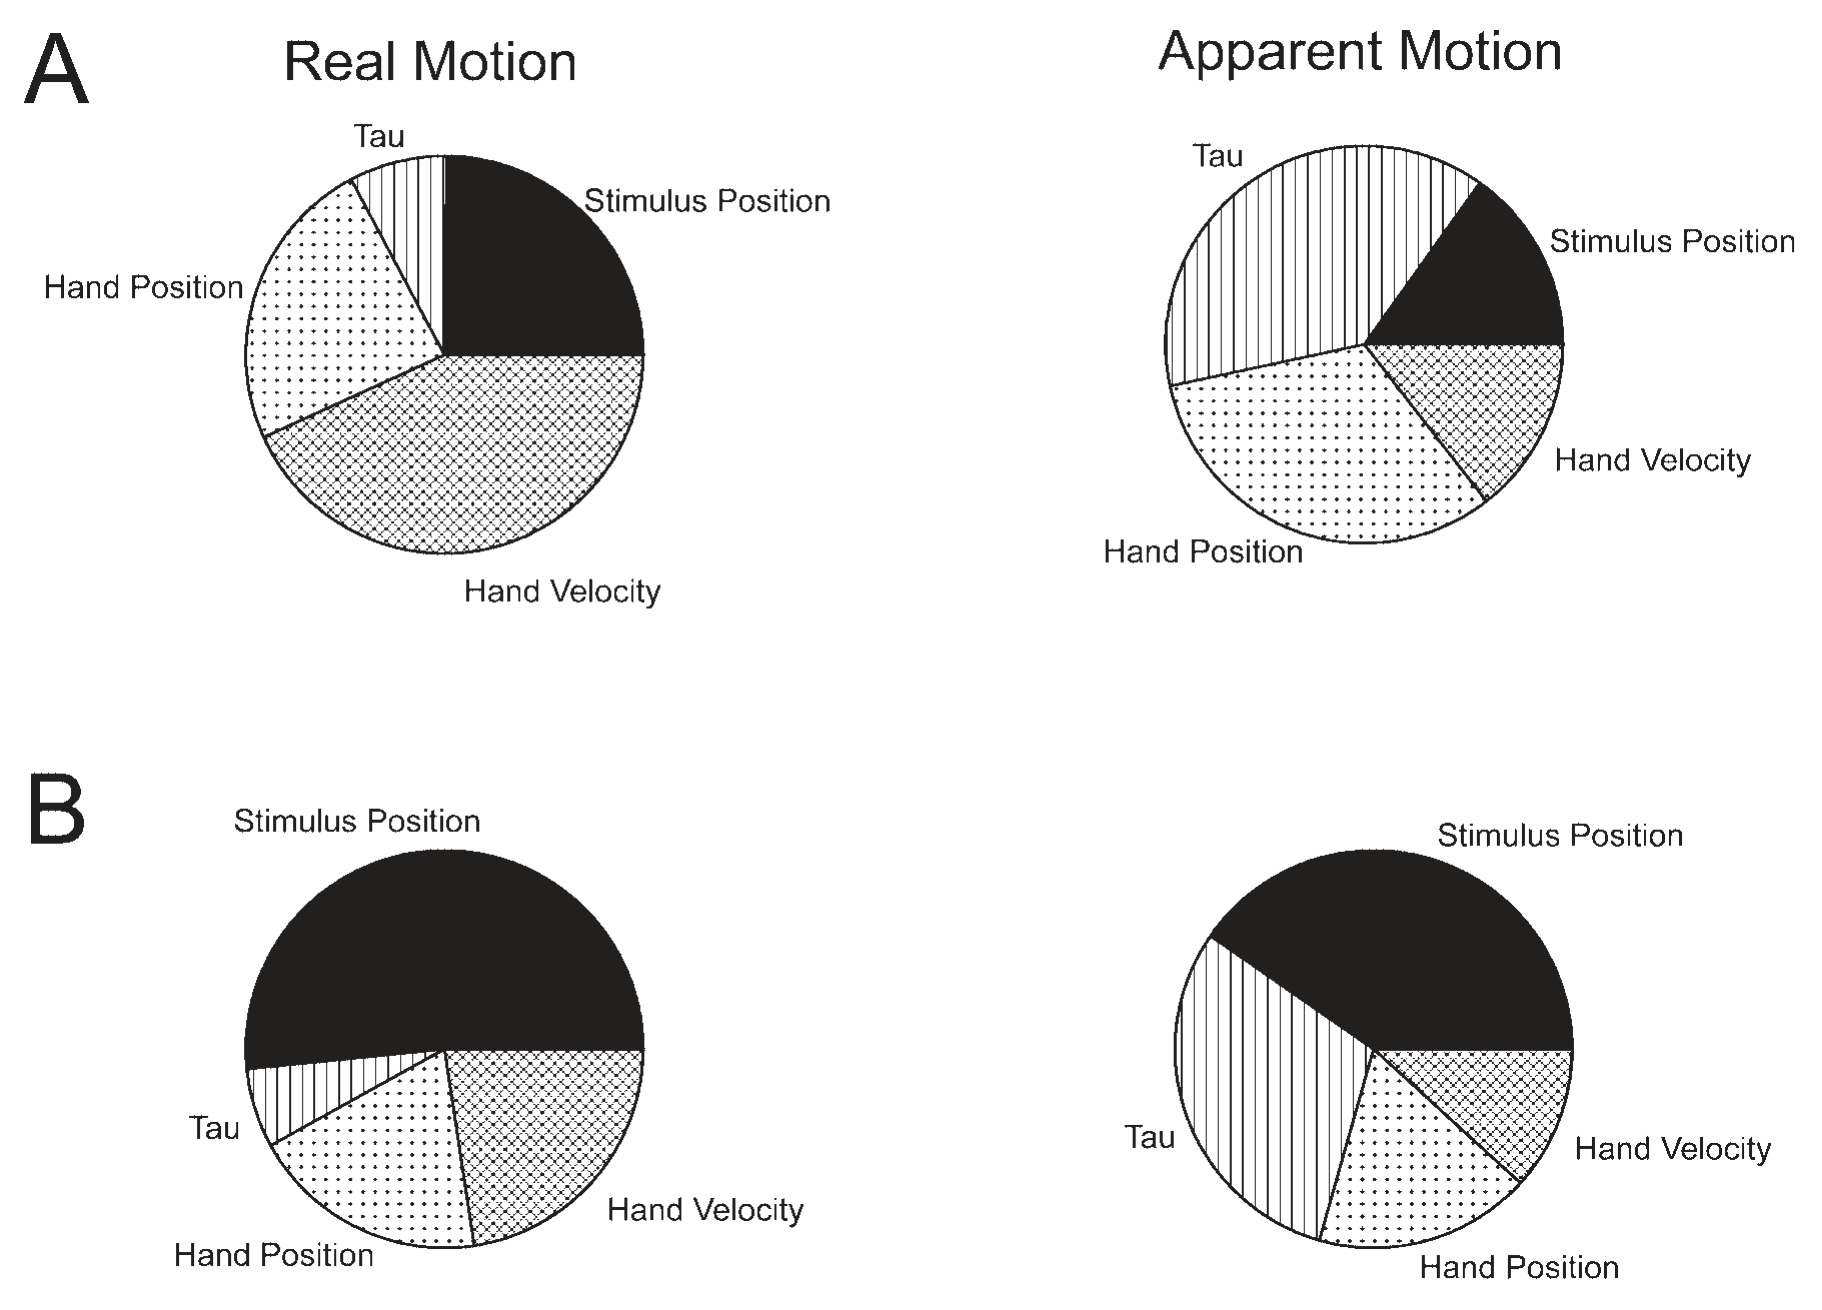 原文 Fig. 6 · PDF 第 7 页 · 原文图像 · 查看来源
图6 · 固视时的首要项。 主要模式相近,不能据此完全排除眼动或注意影响。
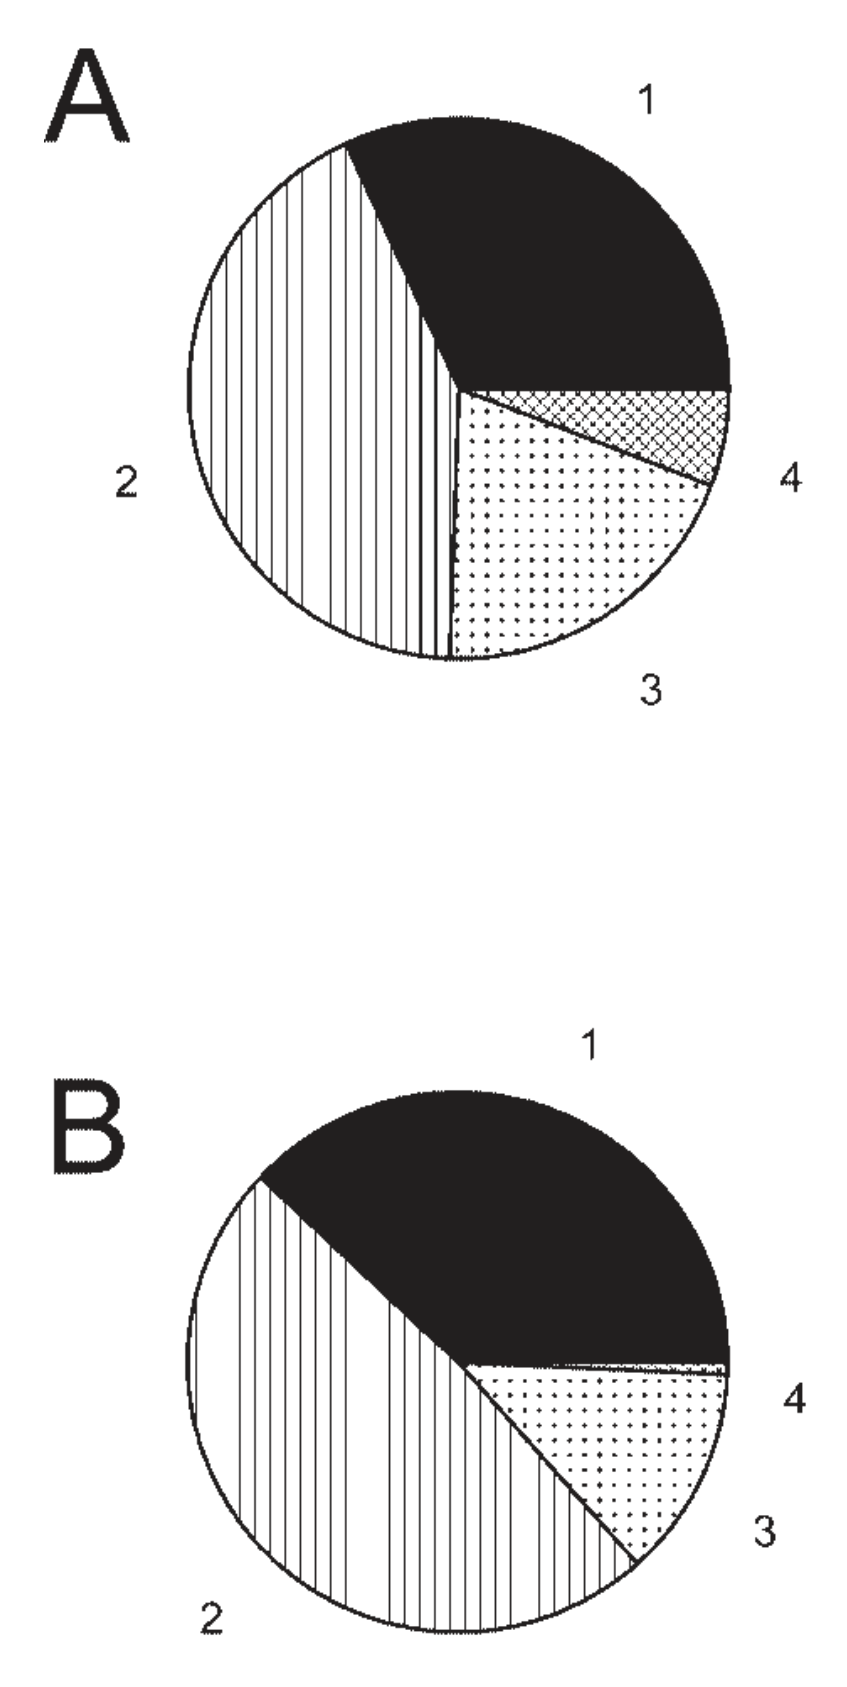 原文 Fig. 7 · PDF 第 8 页 · 原文图像 · 查看来源
图7 · 显著项数。 多项效应支持混合关联,不定义独立功能细胞类型。
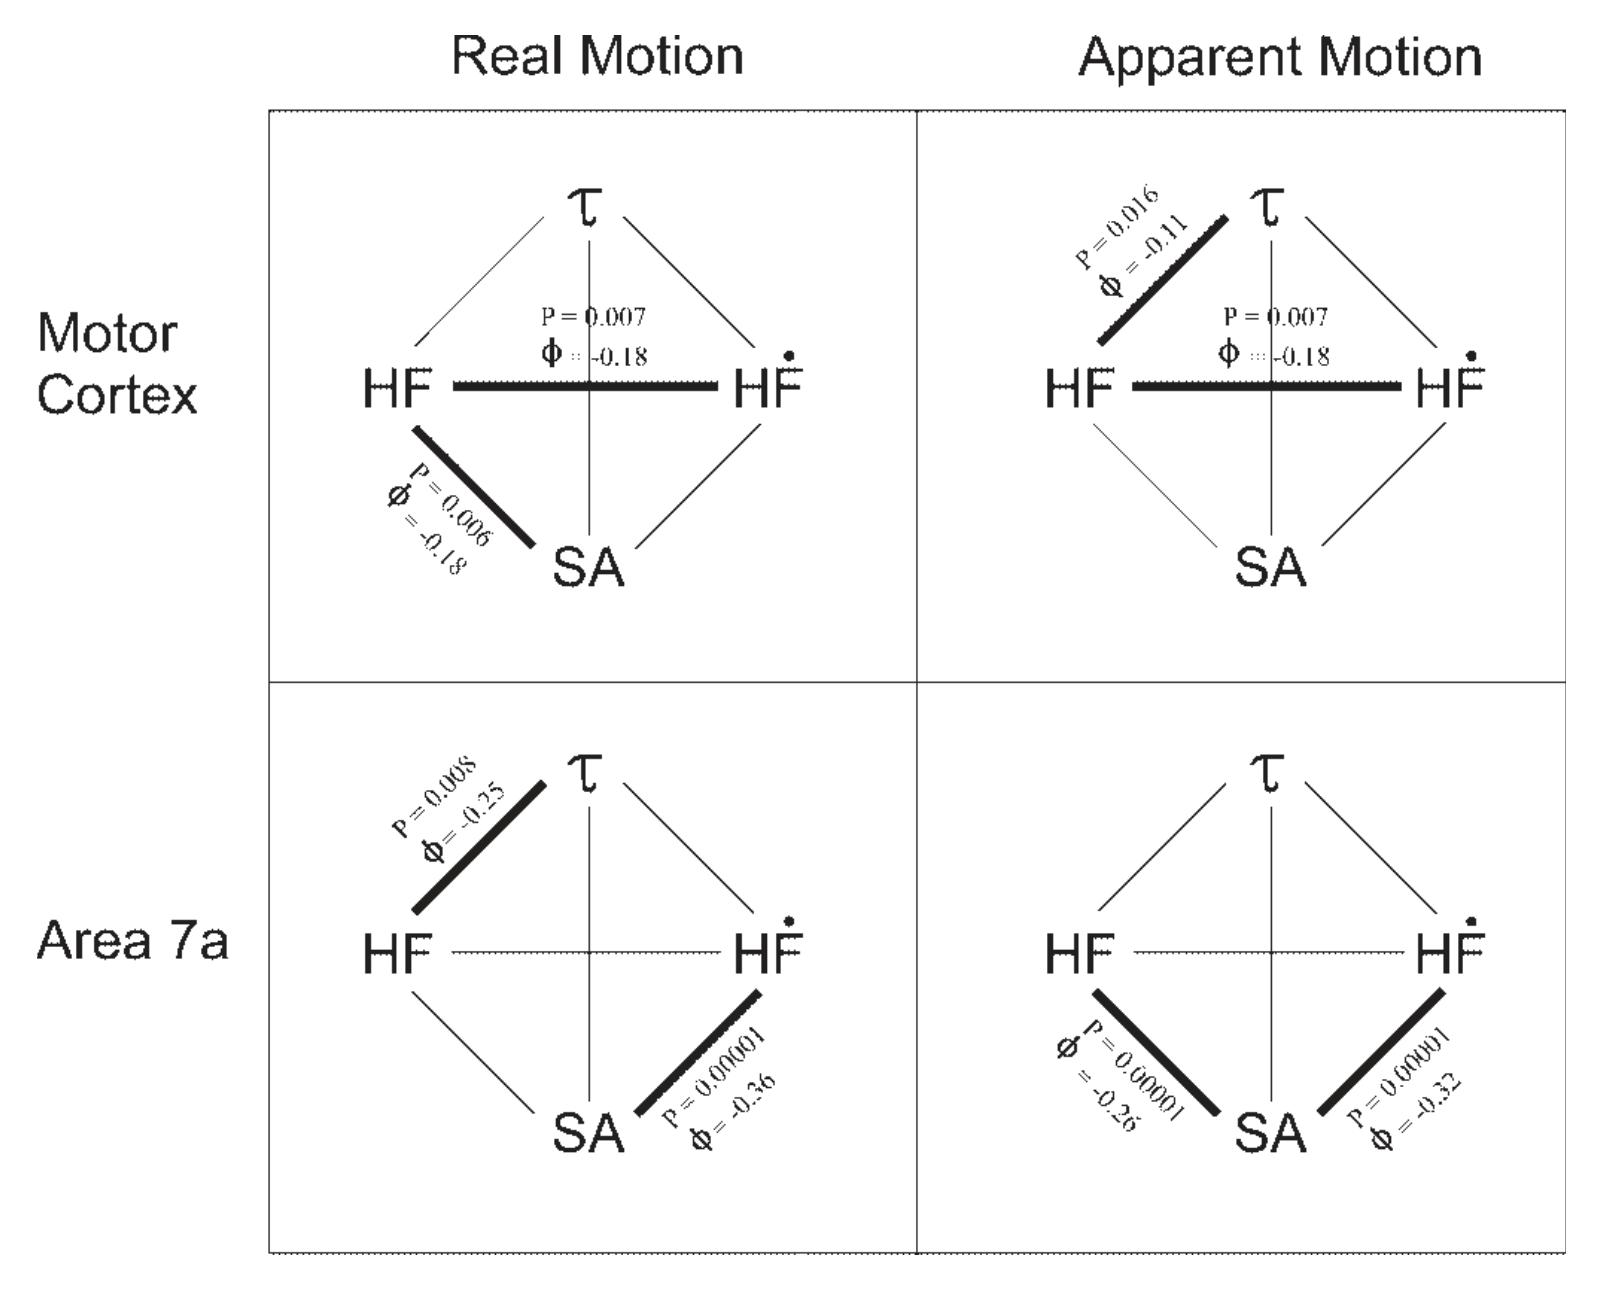 原文 Fig. 8 · PDF 第 8 页 · 原文图像 · 查看来源
图8 · 参数效应关联。 粗线表示显著,负phi表示倾向分离,不能解作正共现。
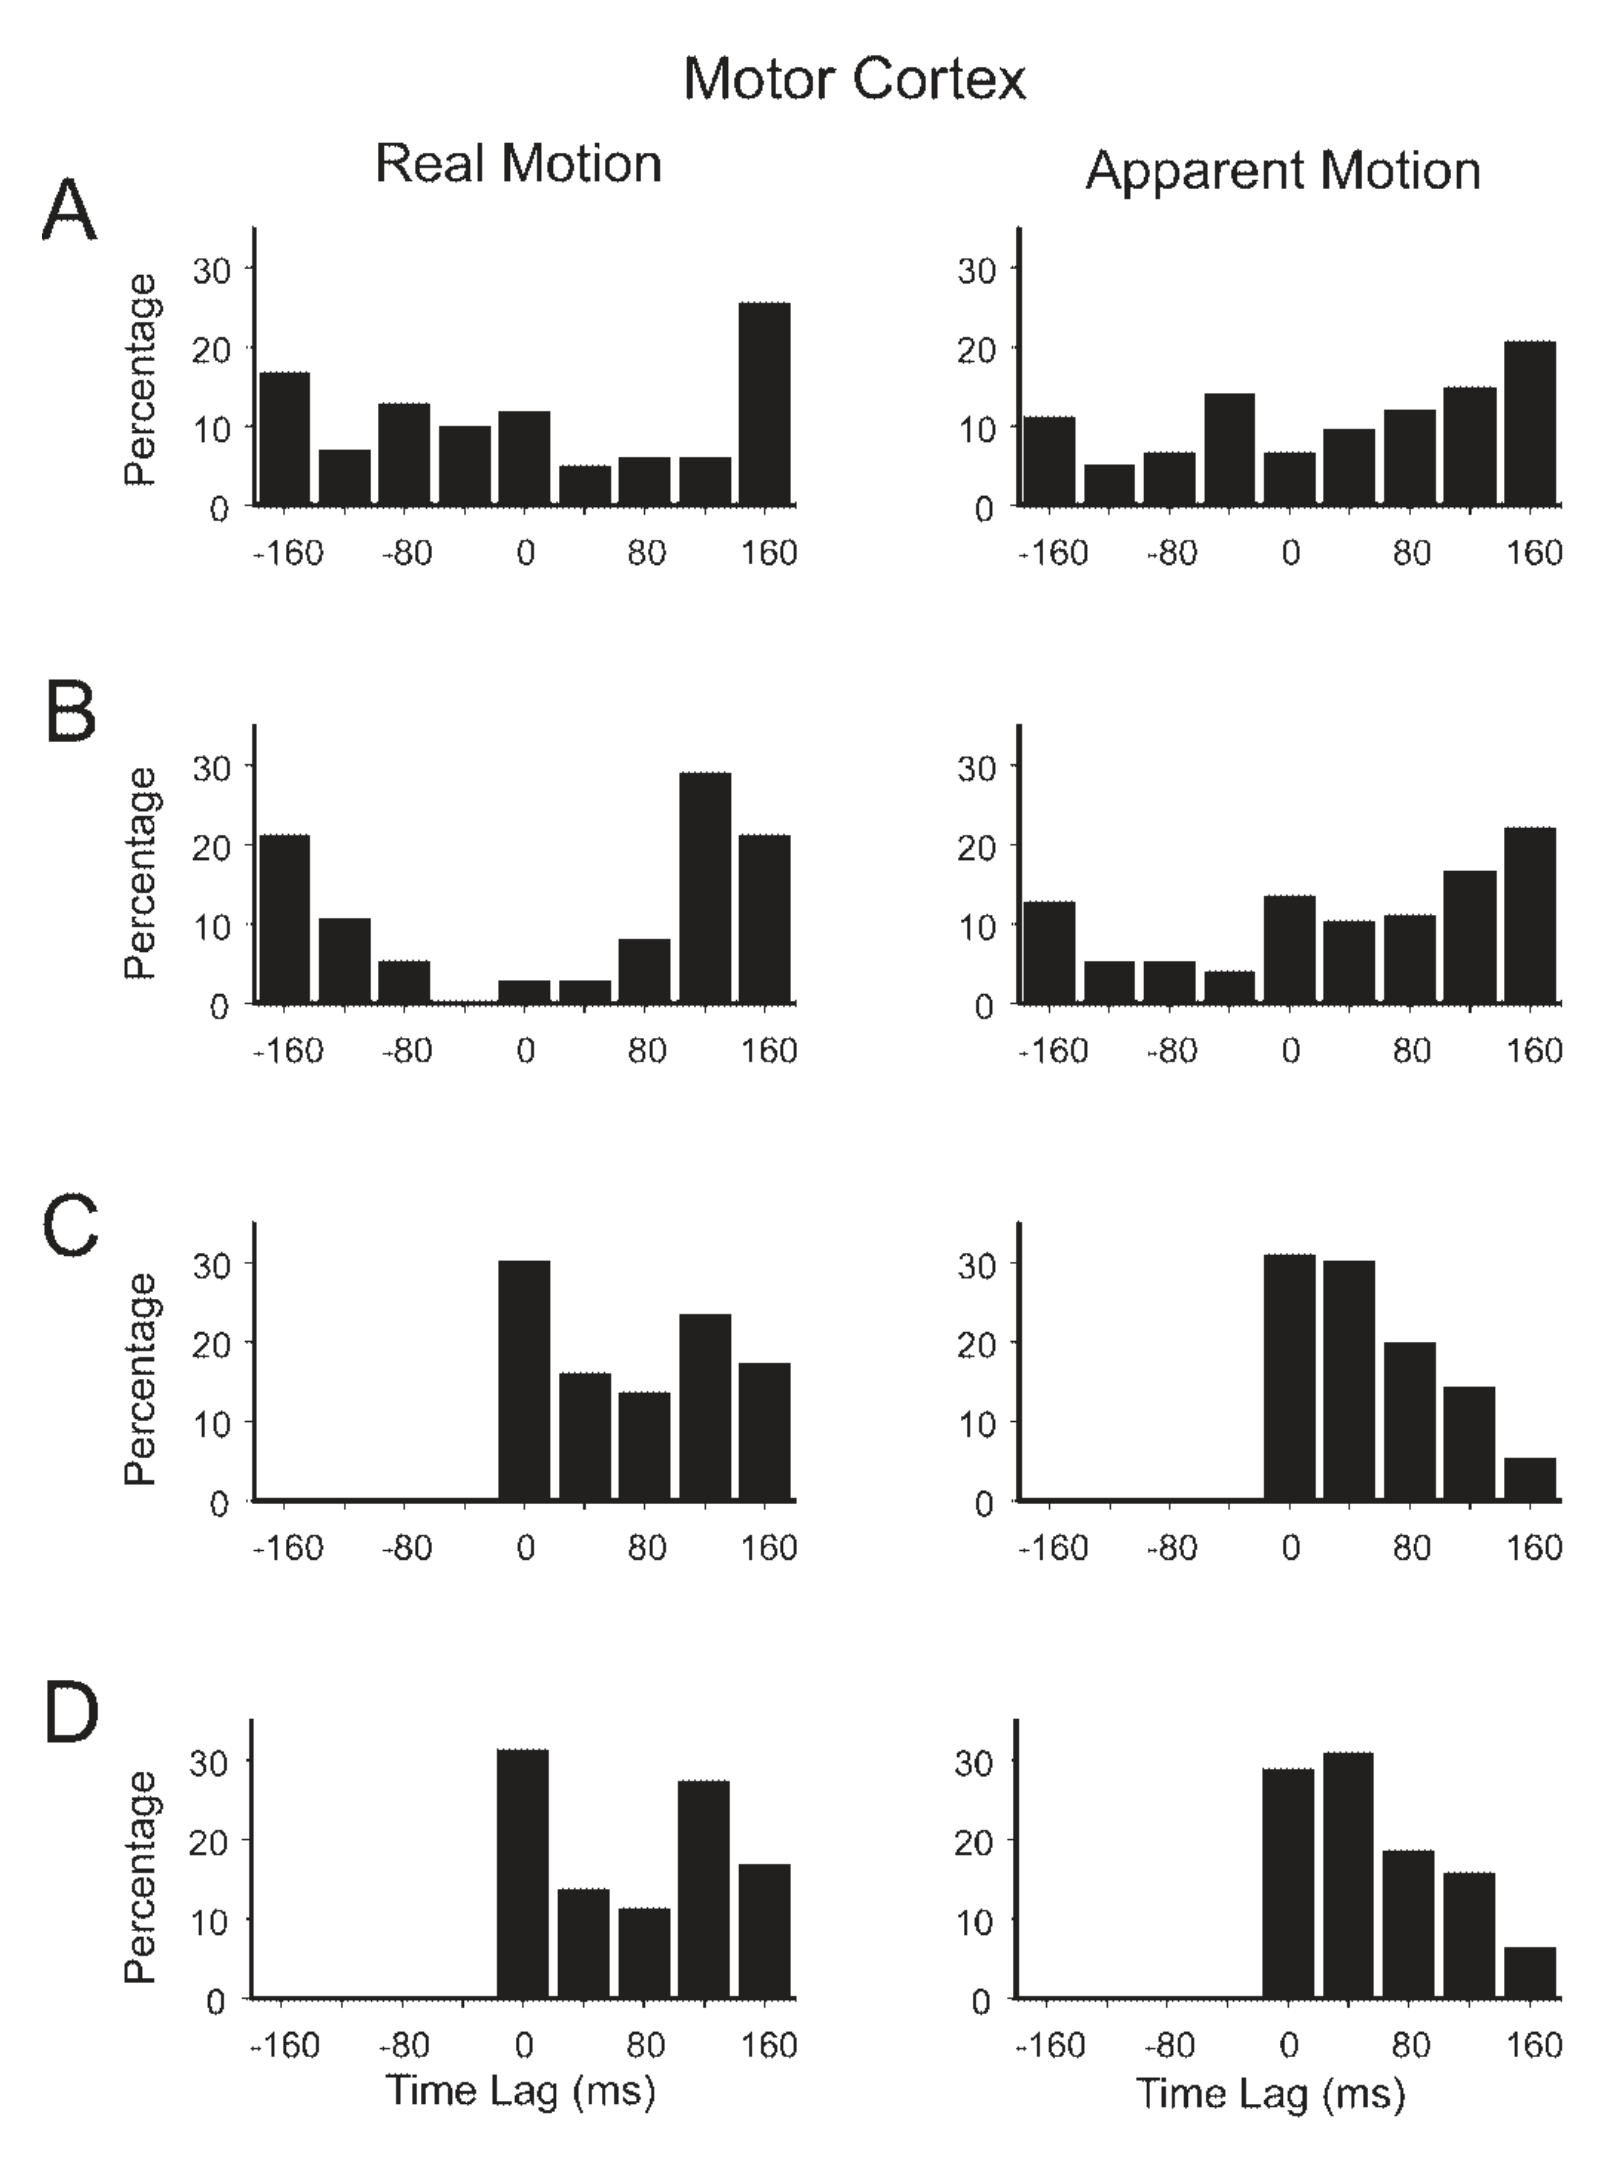 原文 Fig. 9 · PDF 第 8 页 · 原文图像 · 查看来源
图9 · M1最优时移。 力项搜索范围受限,领先不直接证明预测计算。
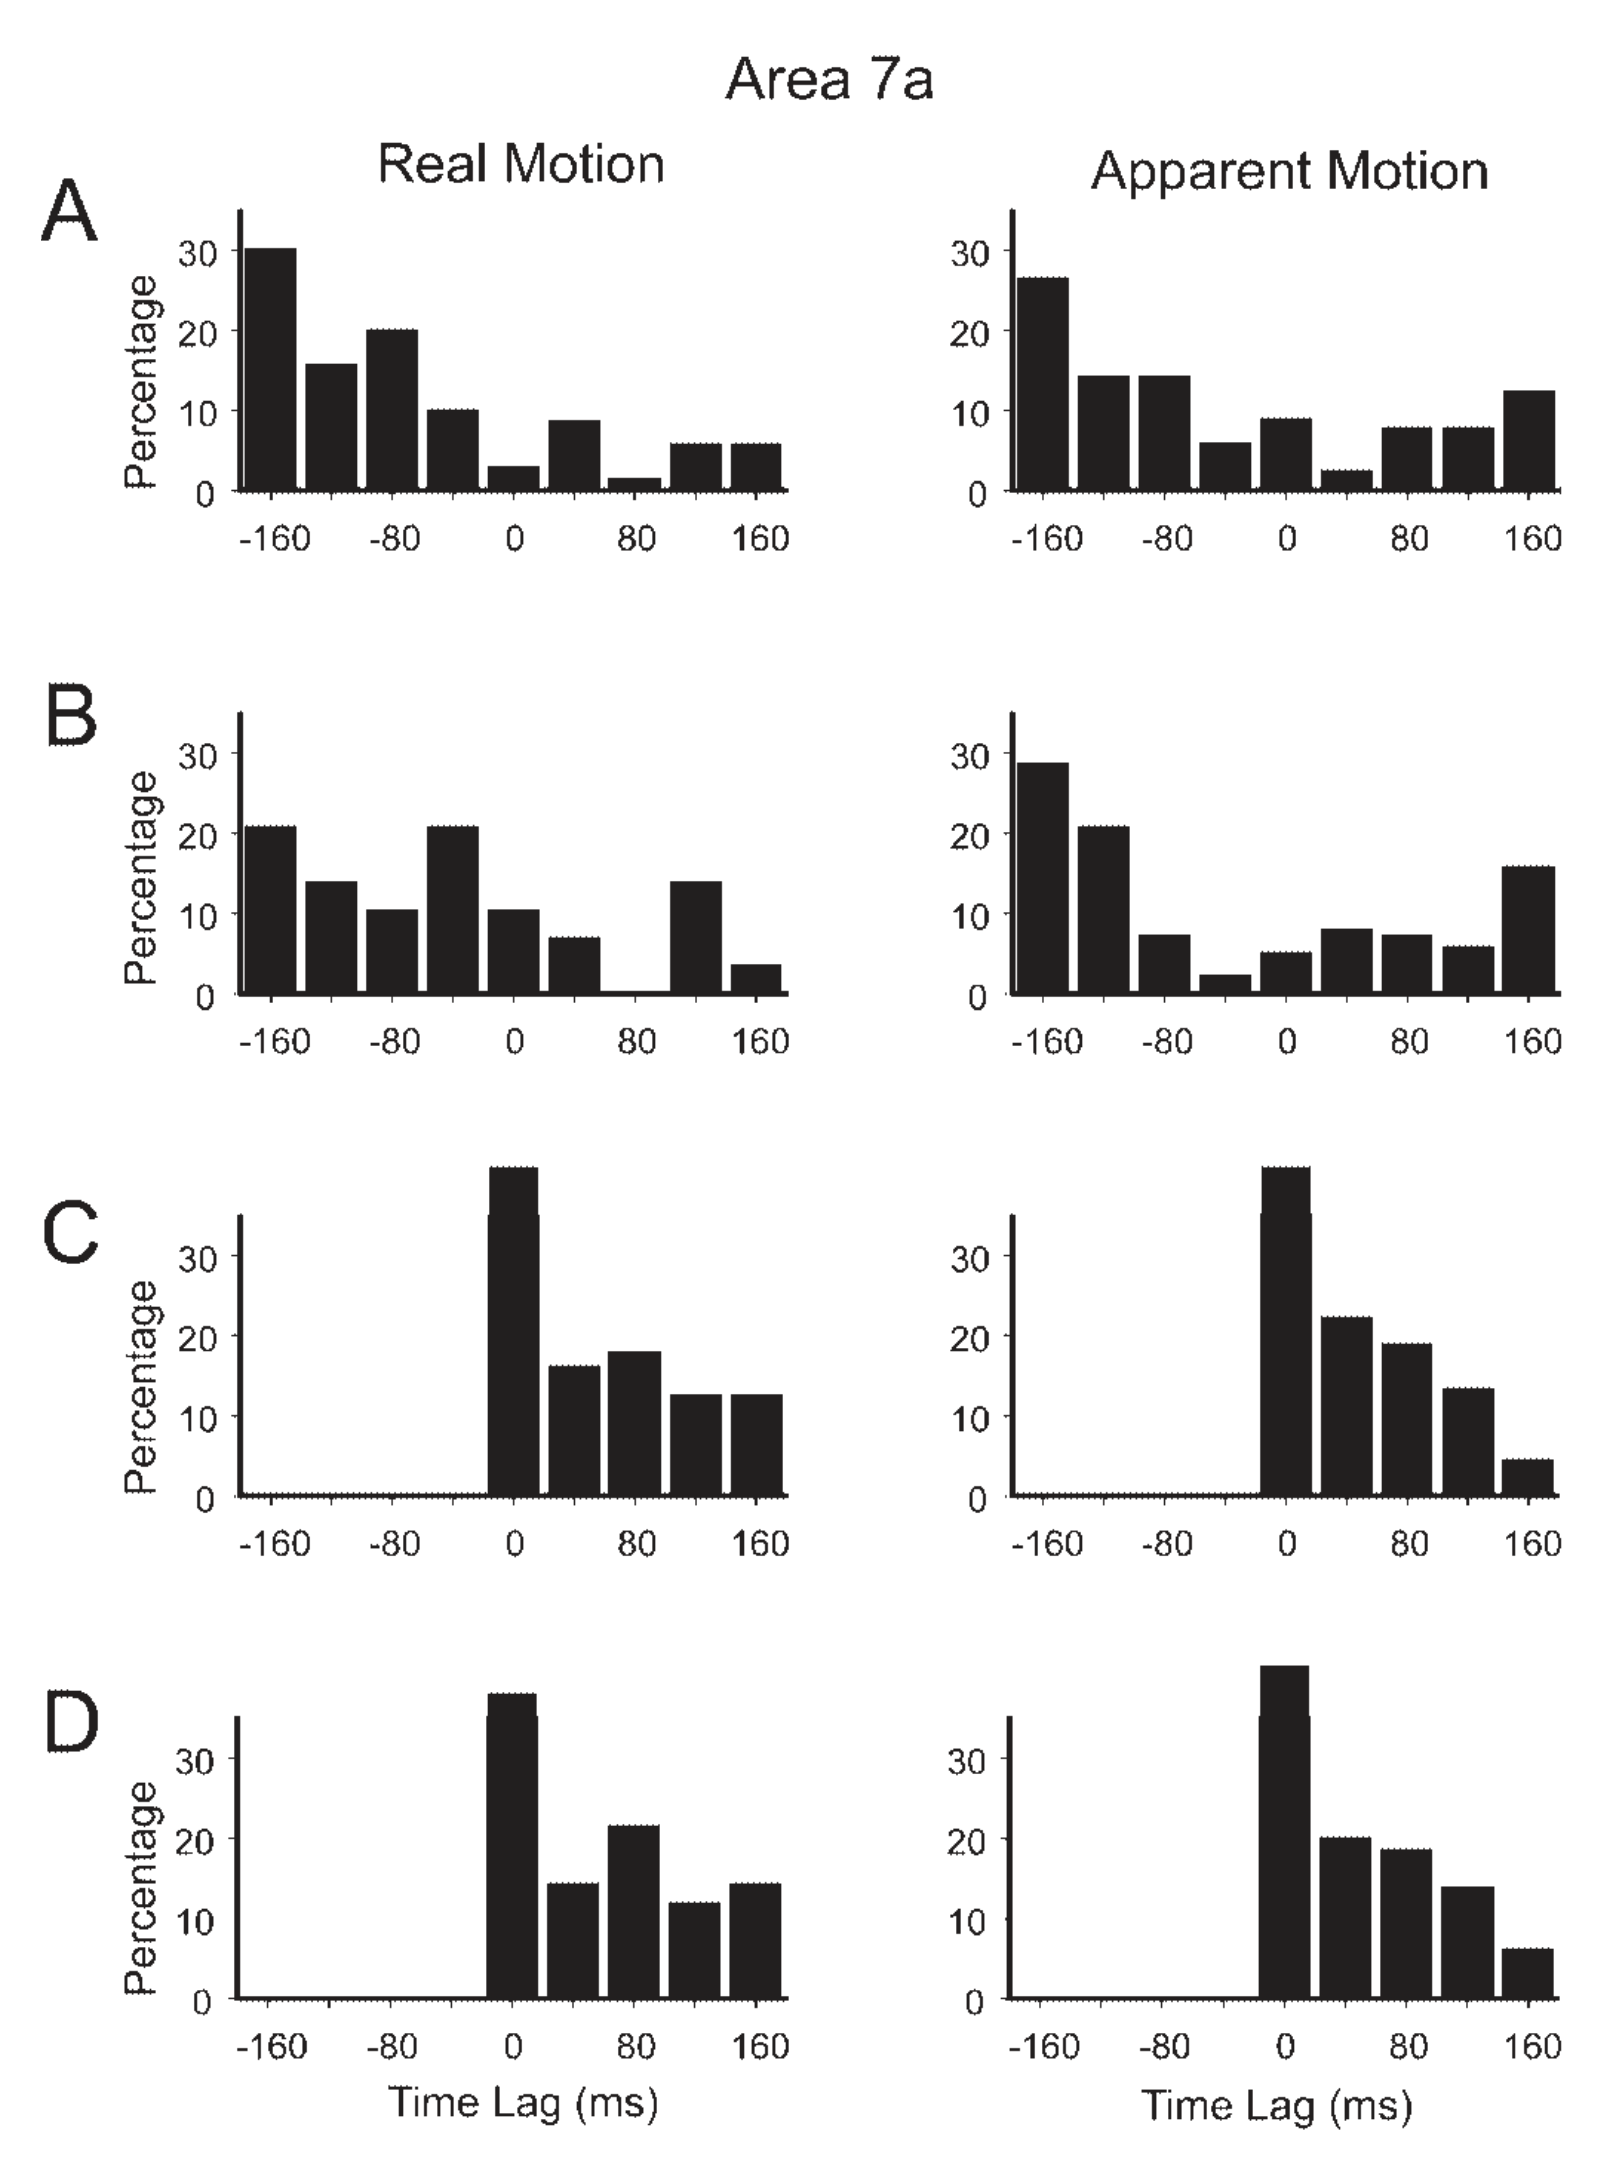 原文 Fig. 10 · PDF 第 9 页 · 原文图像 · 查看来源
图10 · 7a最优时移。 刺激项整体偏滞后,是统计时序关系。
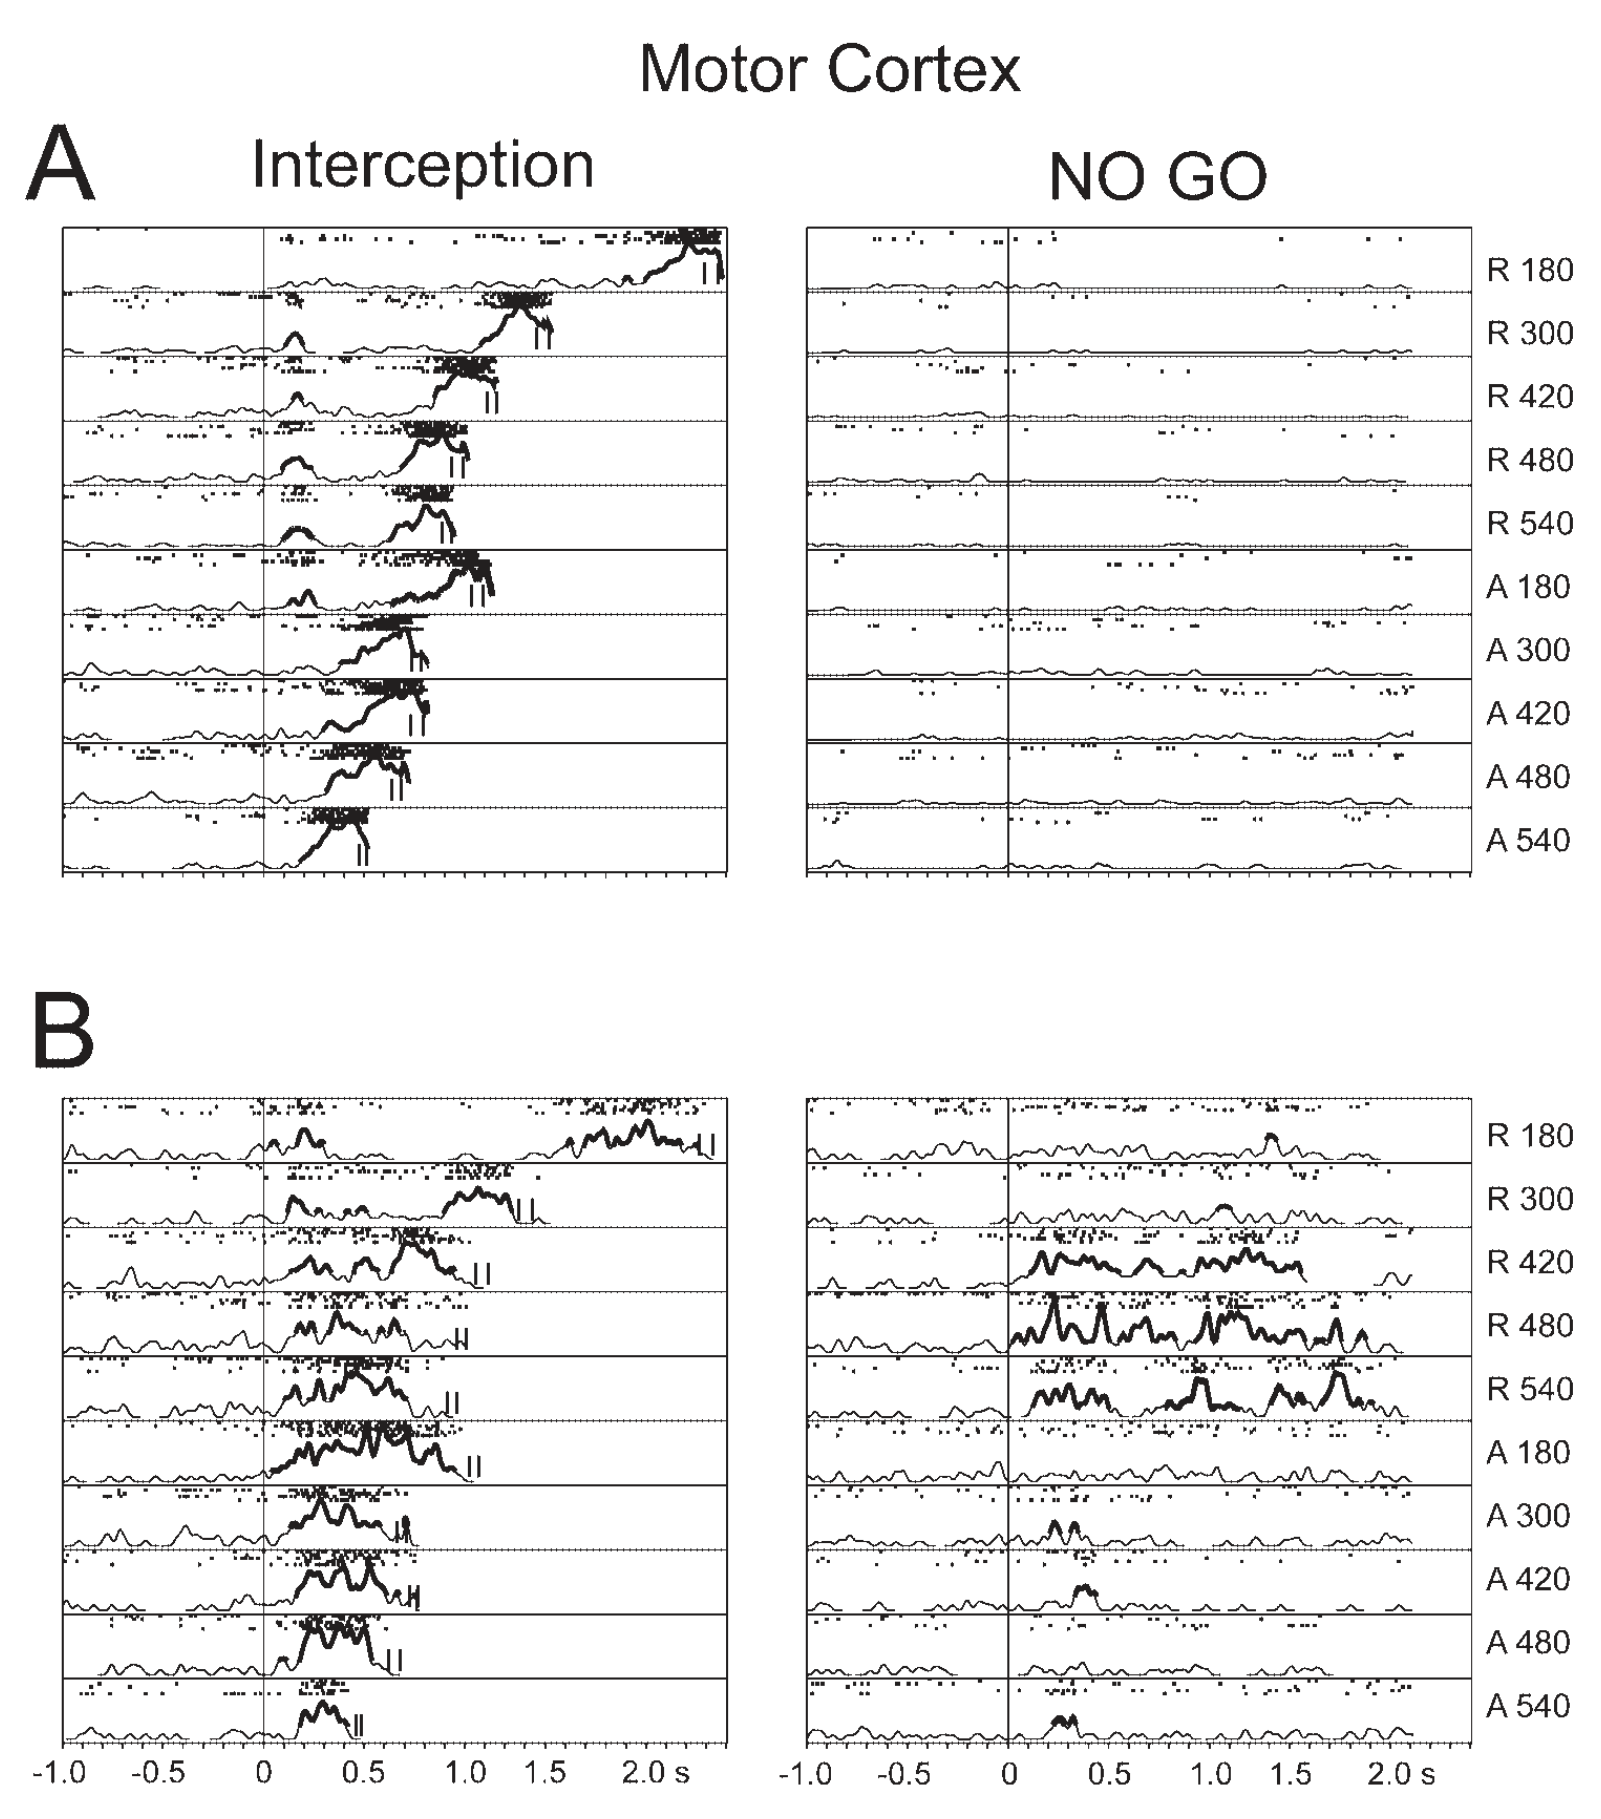 原文 Fig. 11 · PDF 第 10 页 · 原文图像 · 查看来源
图11 · M1双任务示例。 分别展示拦截特异和兼有NOGO响应的细胞。
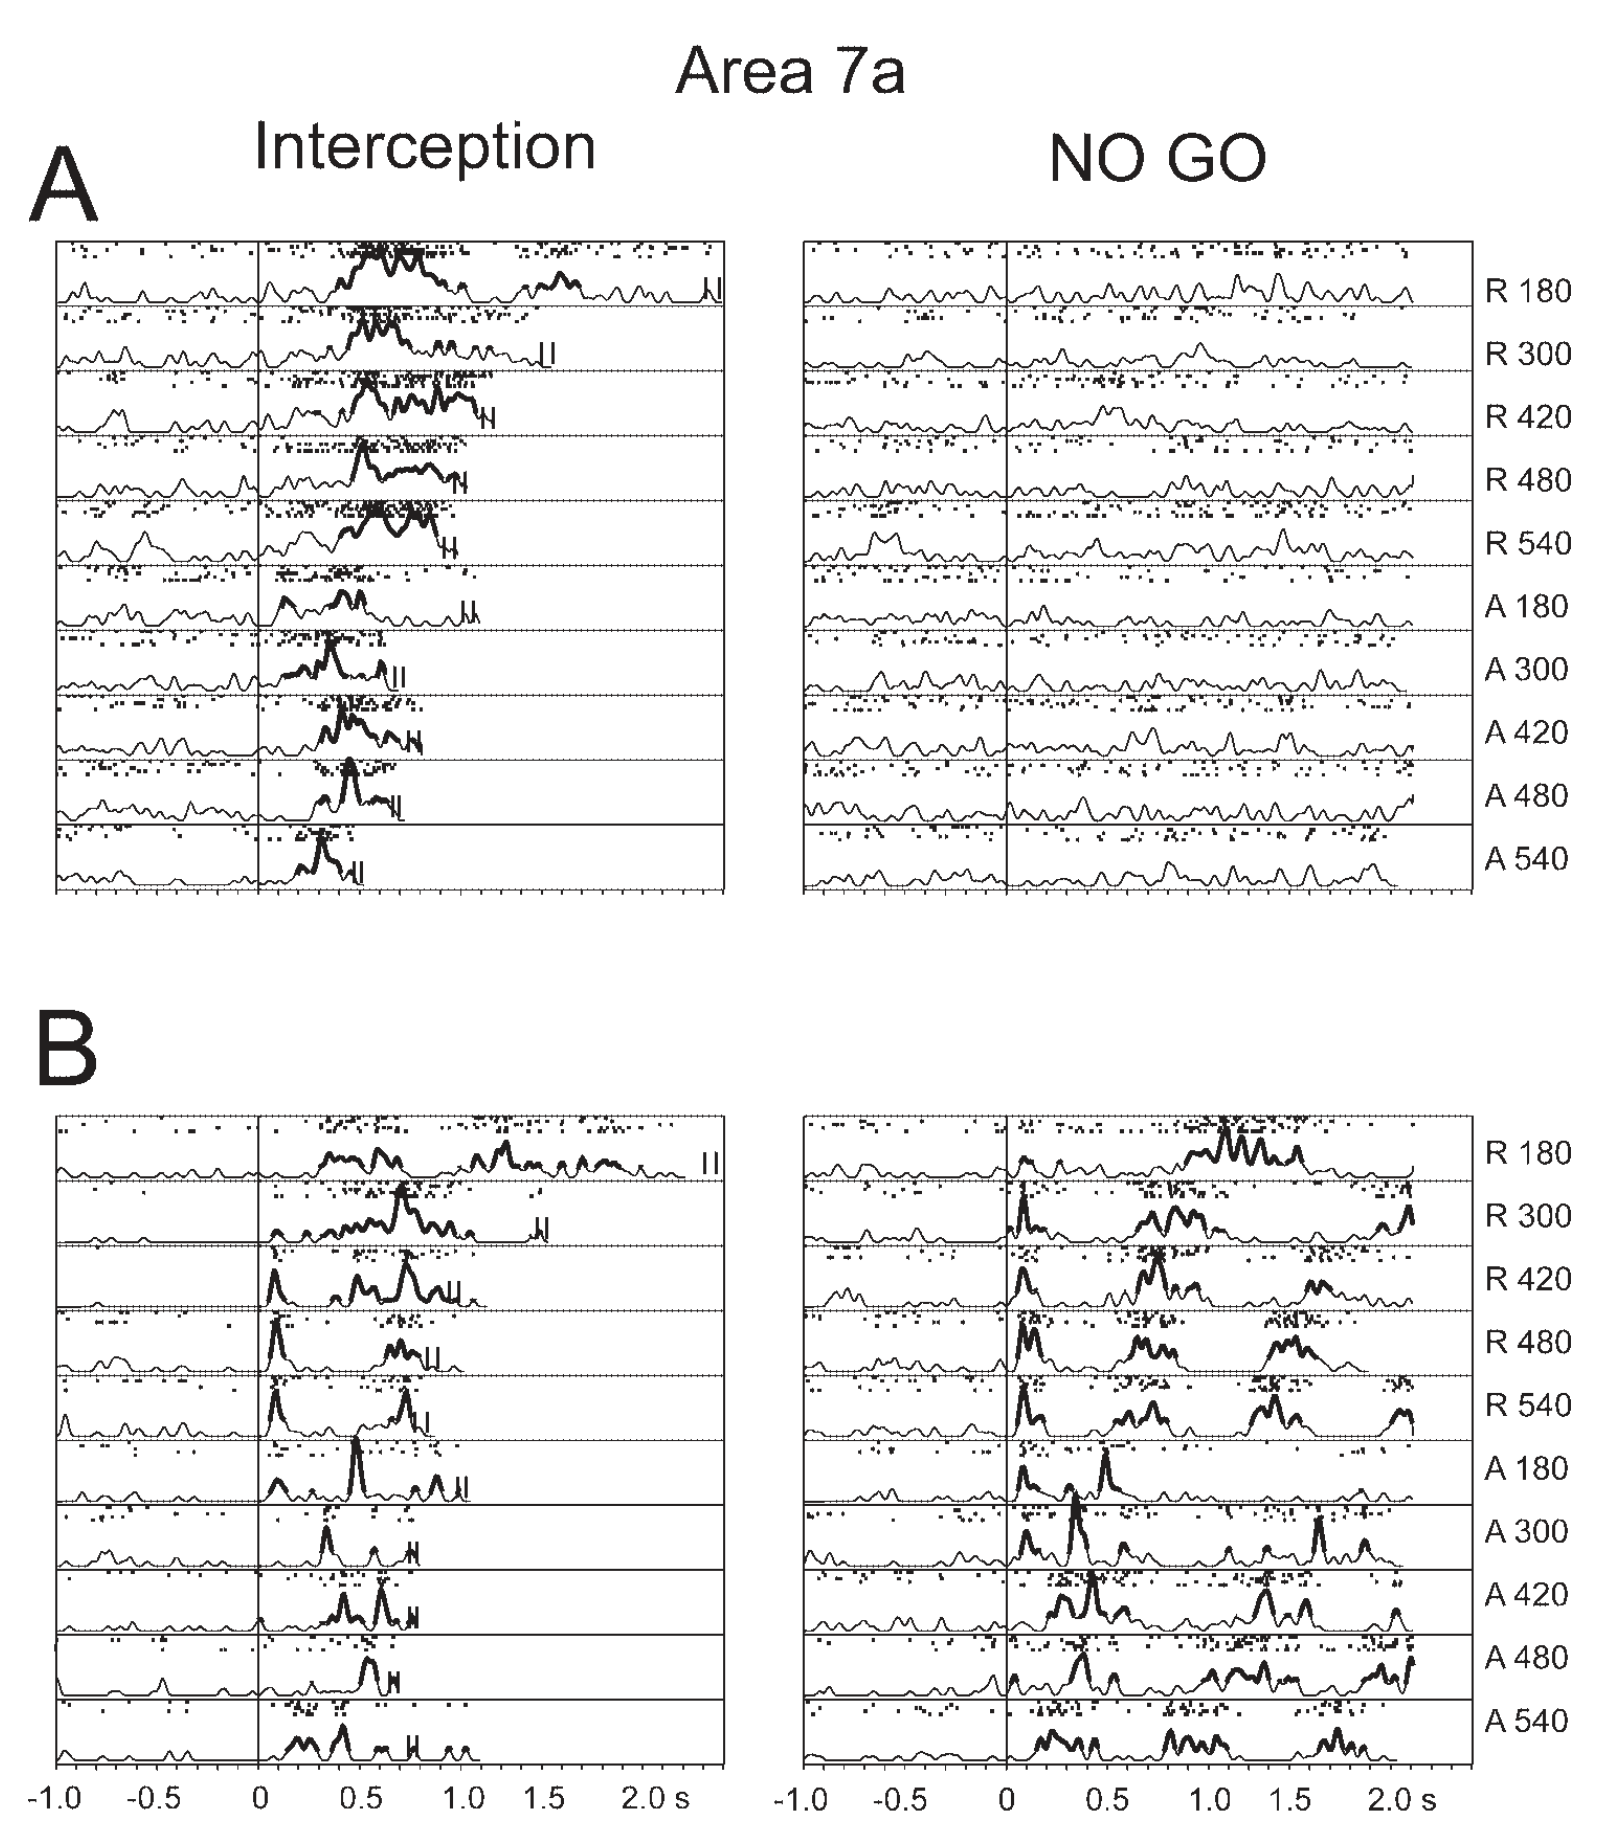 原文 Fig. 12 · PDF 第 11 页 · 原文图像 · 查看来源
图12 · 7a双任务示例。 展示任务依赖性,不能直接划成纯感觉与纯运动通路。
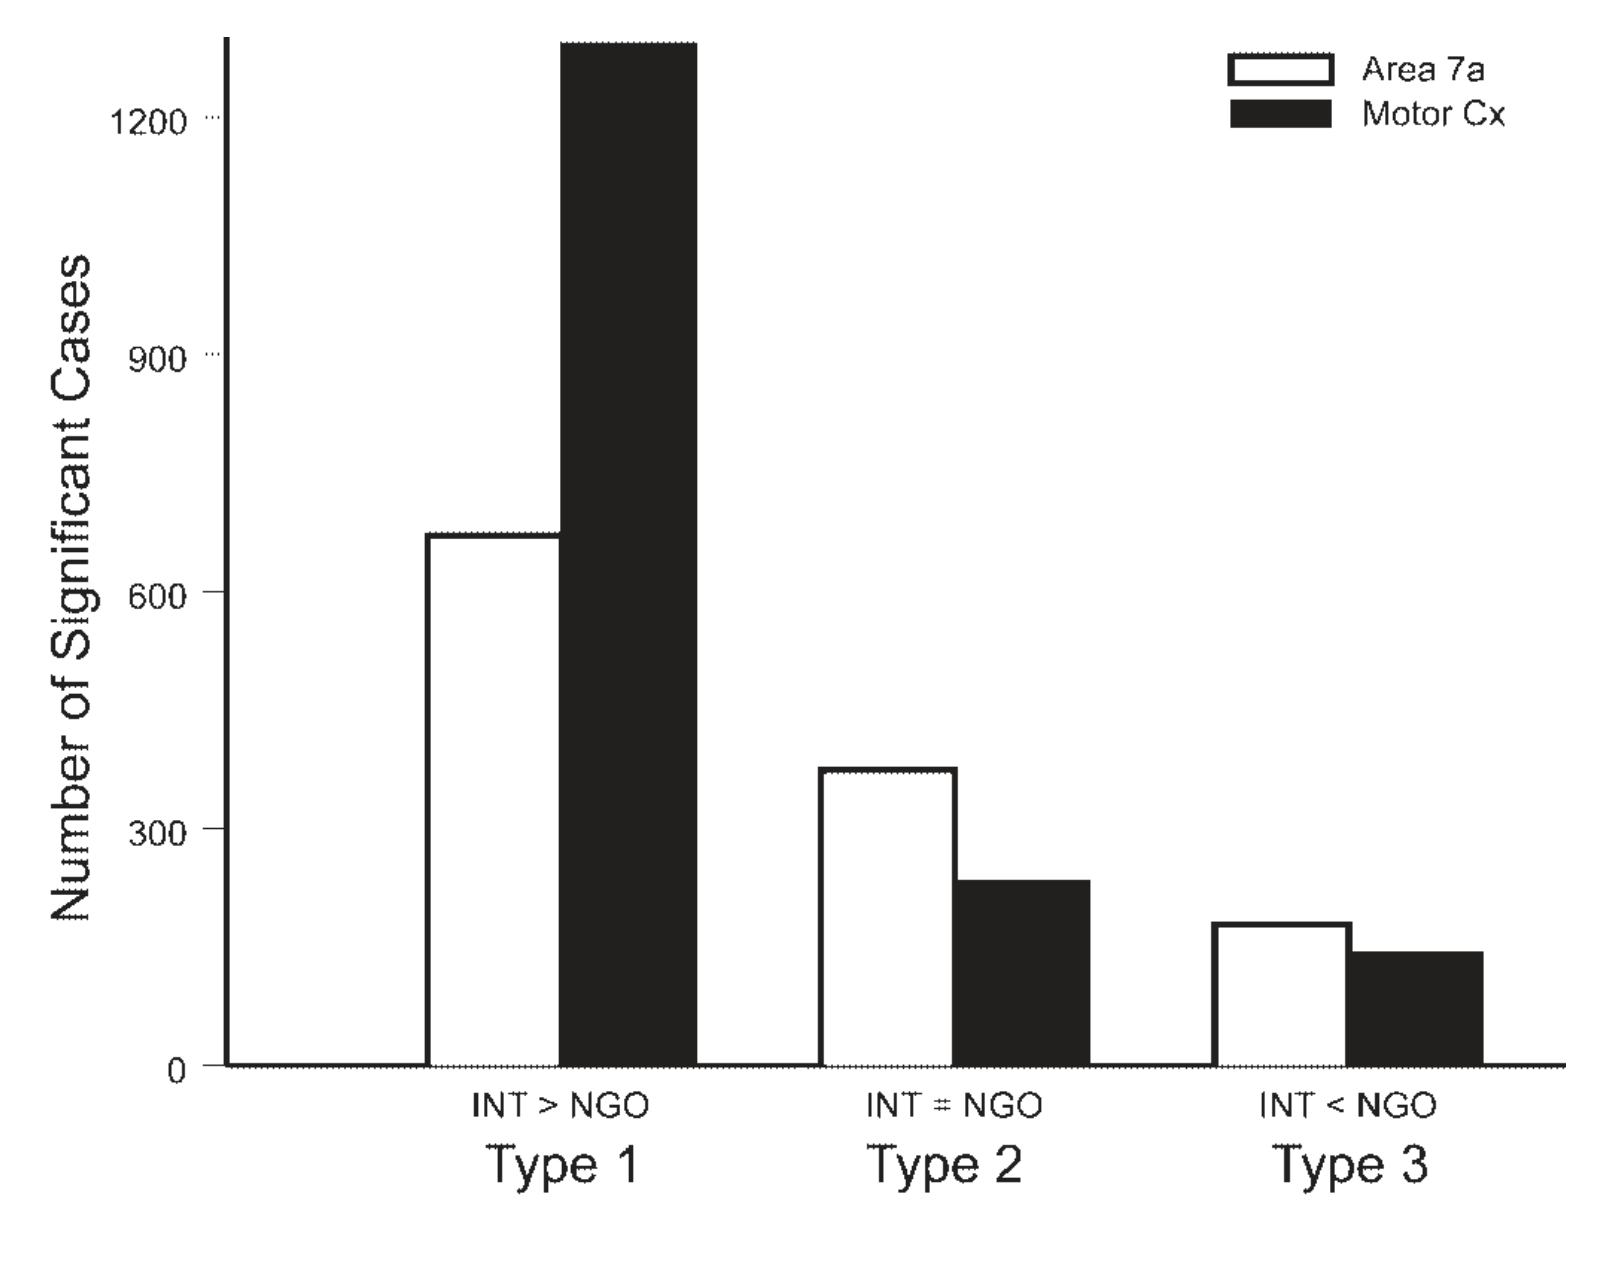 原文 Fig. 13 · PDF 第 12 页 · 原文图像 · 查看来源
图13 · 激活期比较。 计数单位为细胞×条件的case,每个细胞可贡献多项。
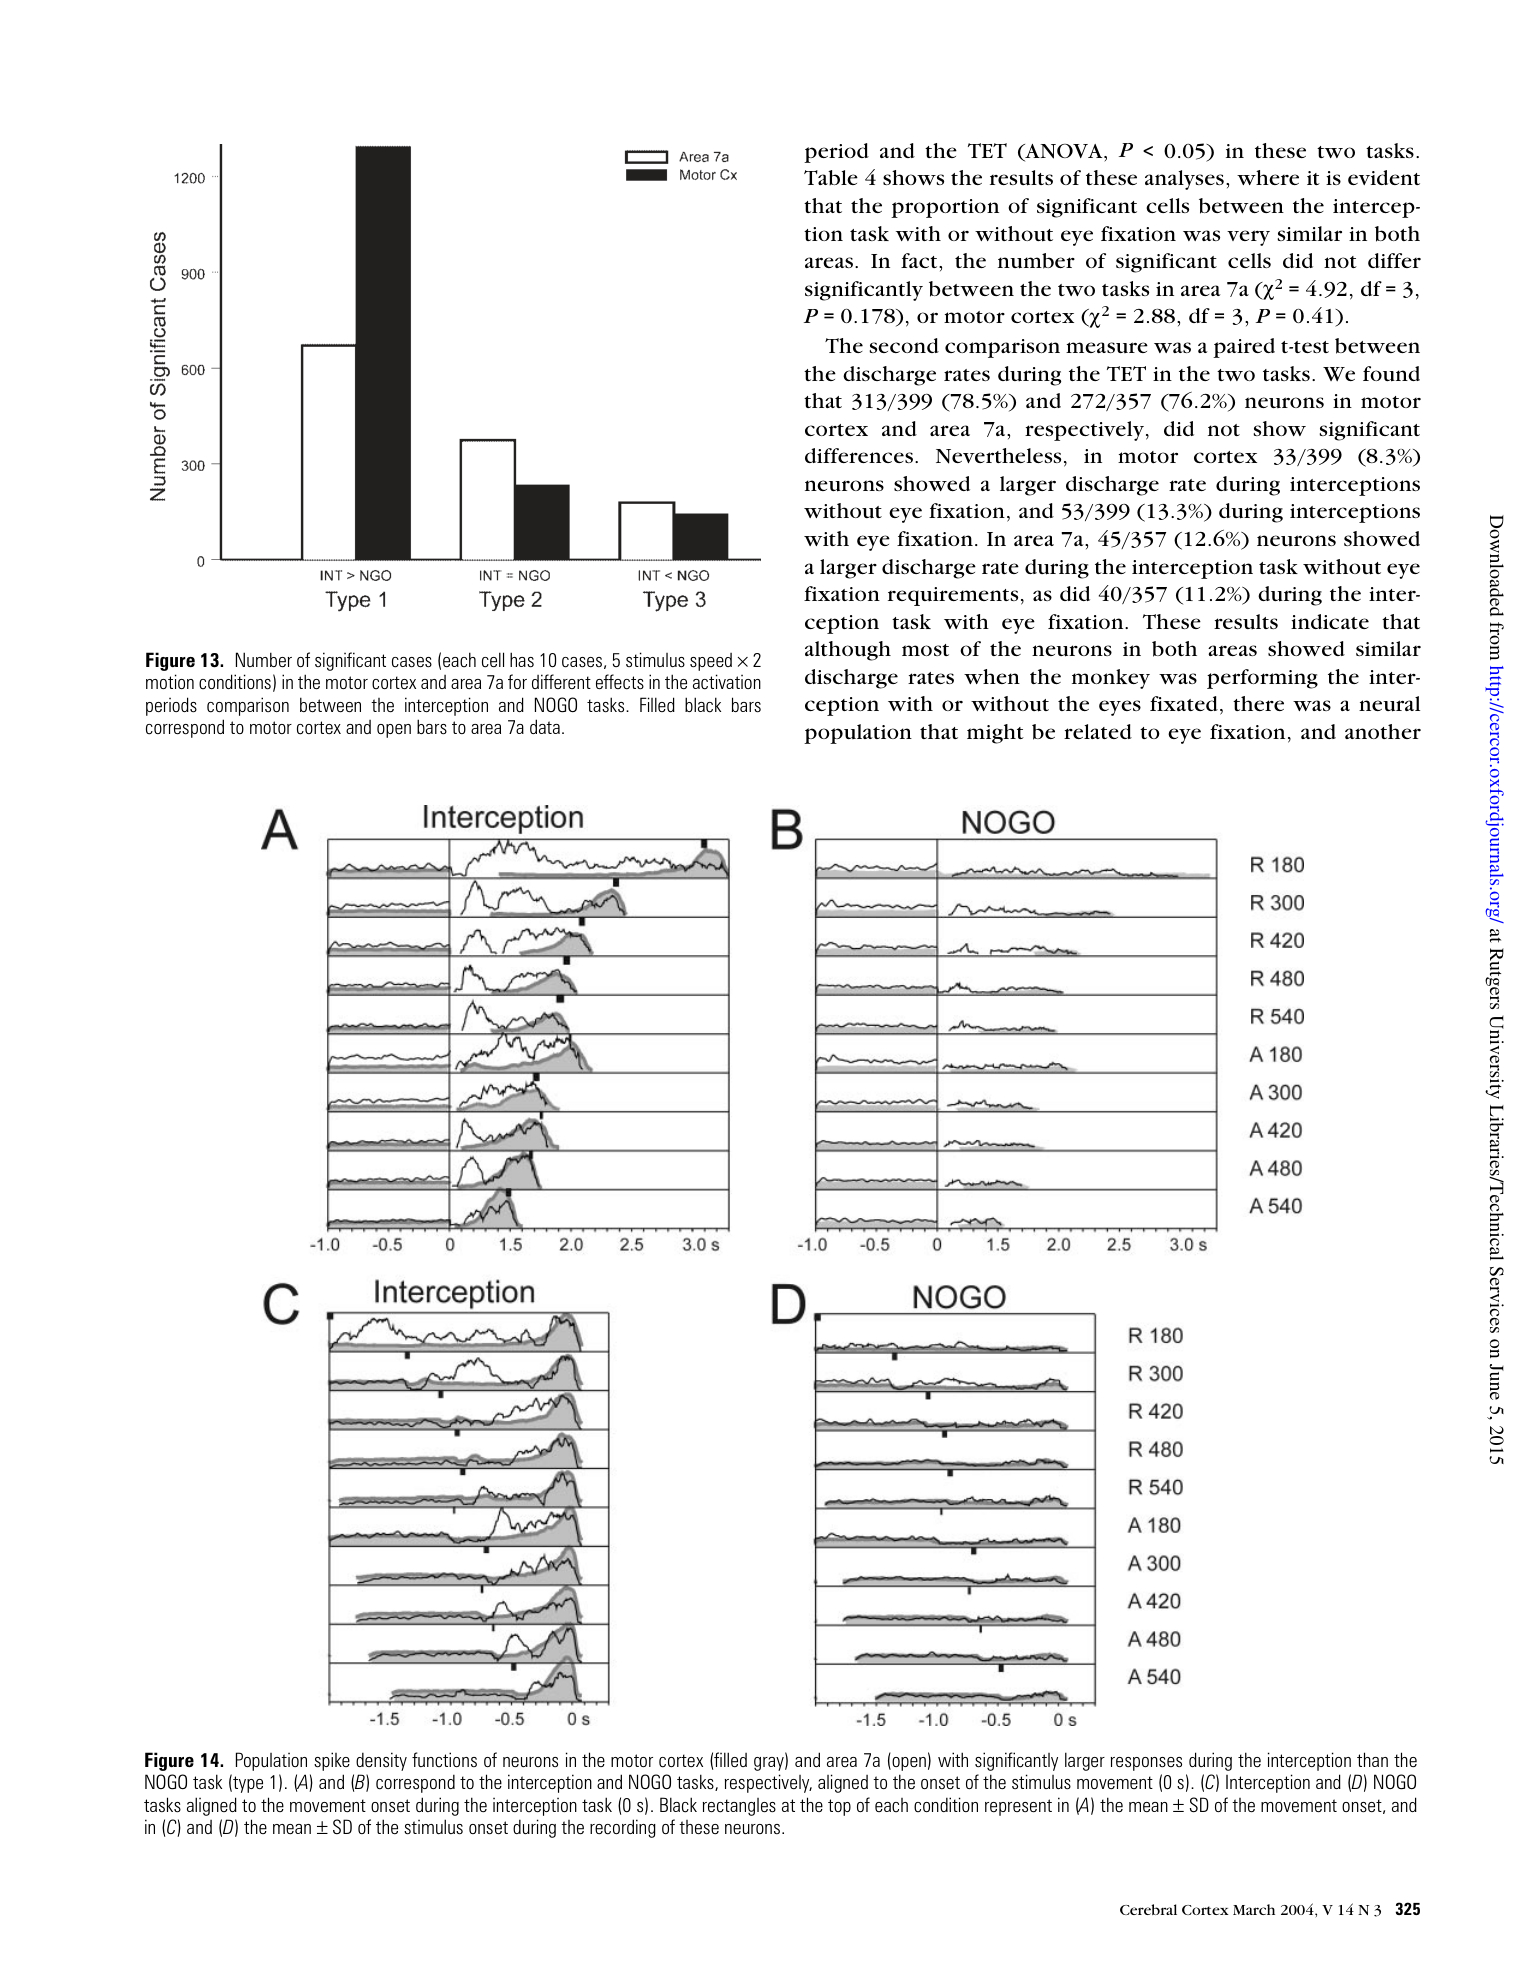 原文 Fig. 14 · PDF 第 12 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图14 · 拦截较强群体的时程。 按刺激或动作对齐比较;原图片部分面板倒置,已重新渲染。
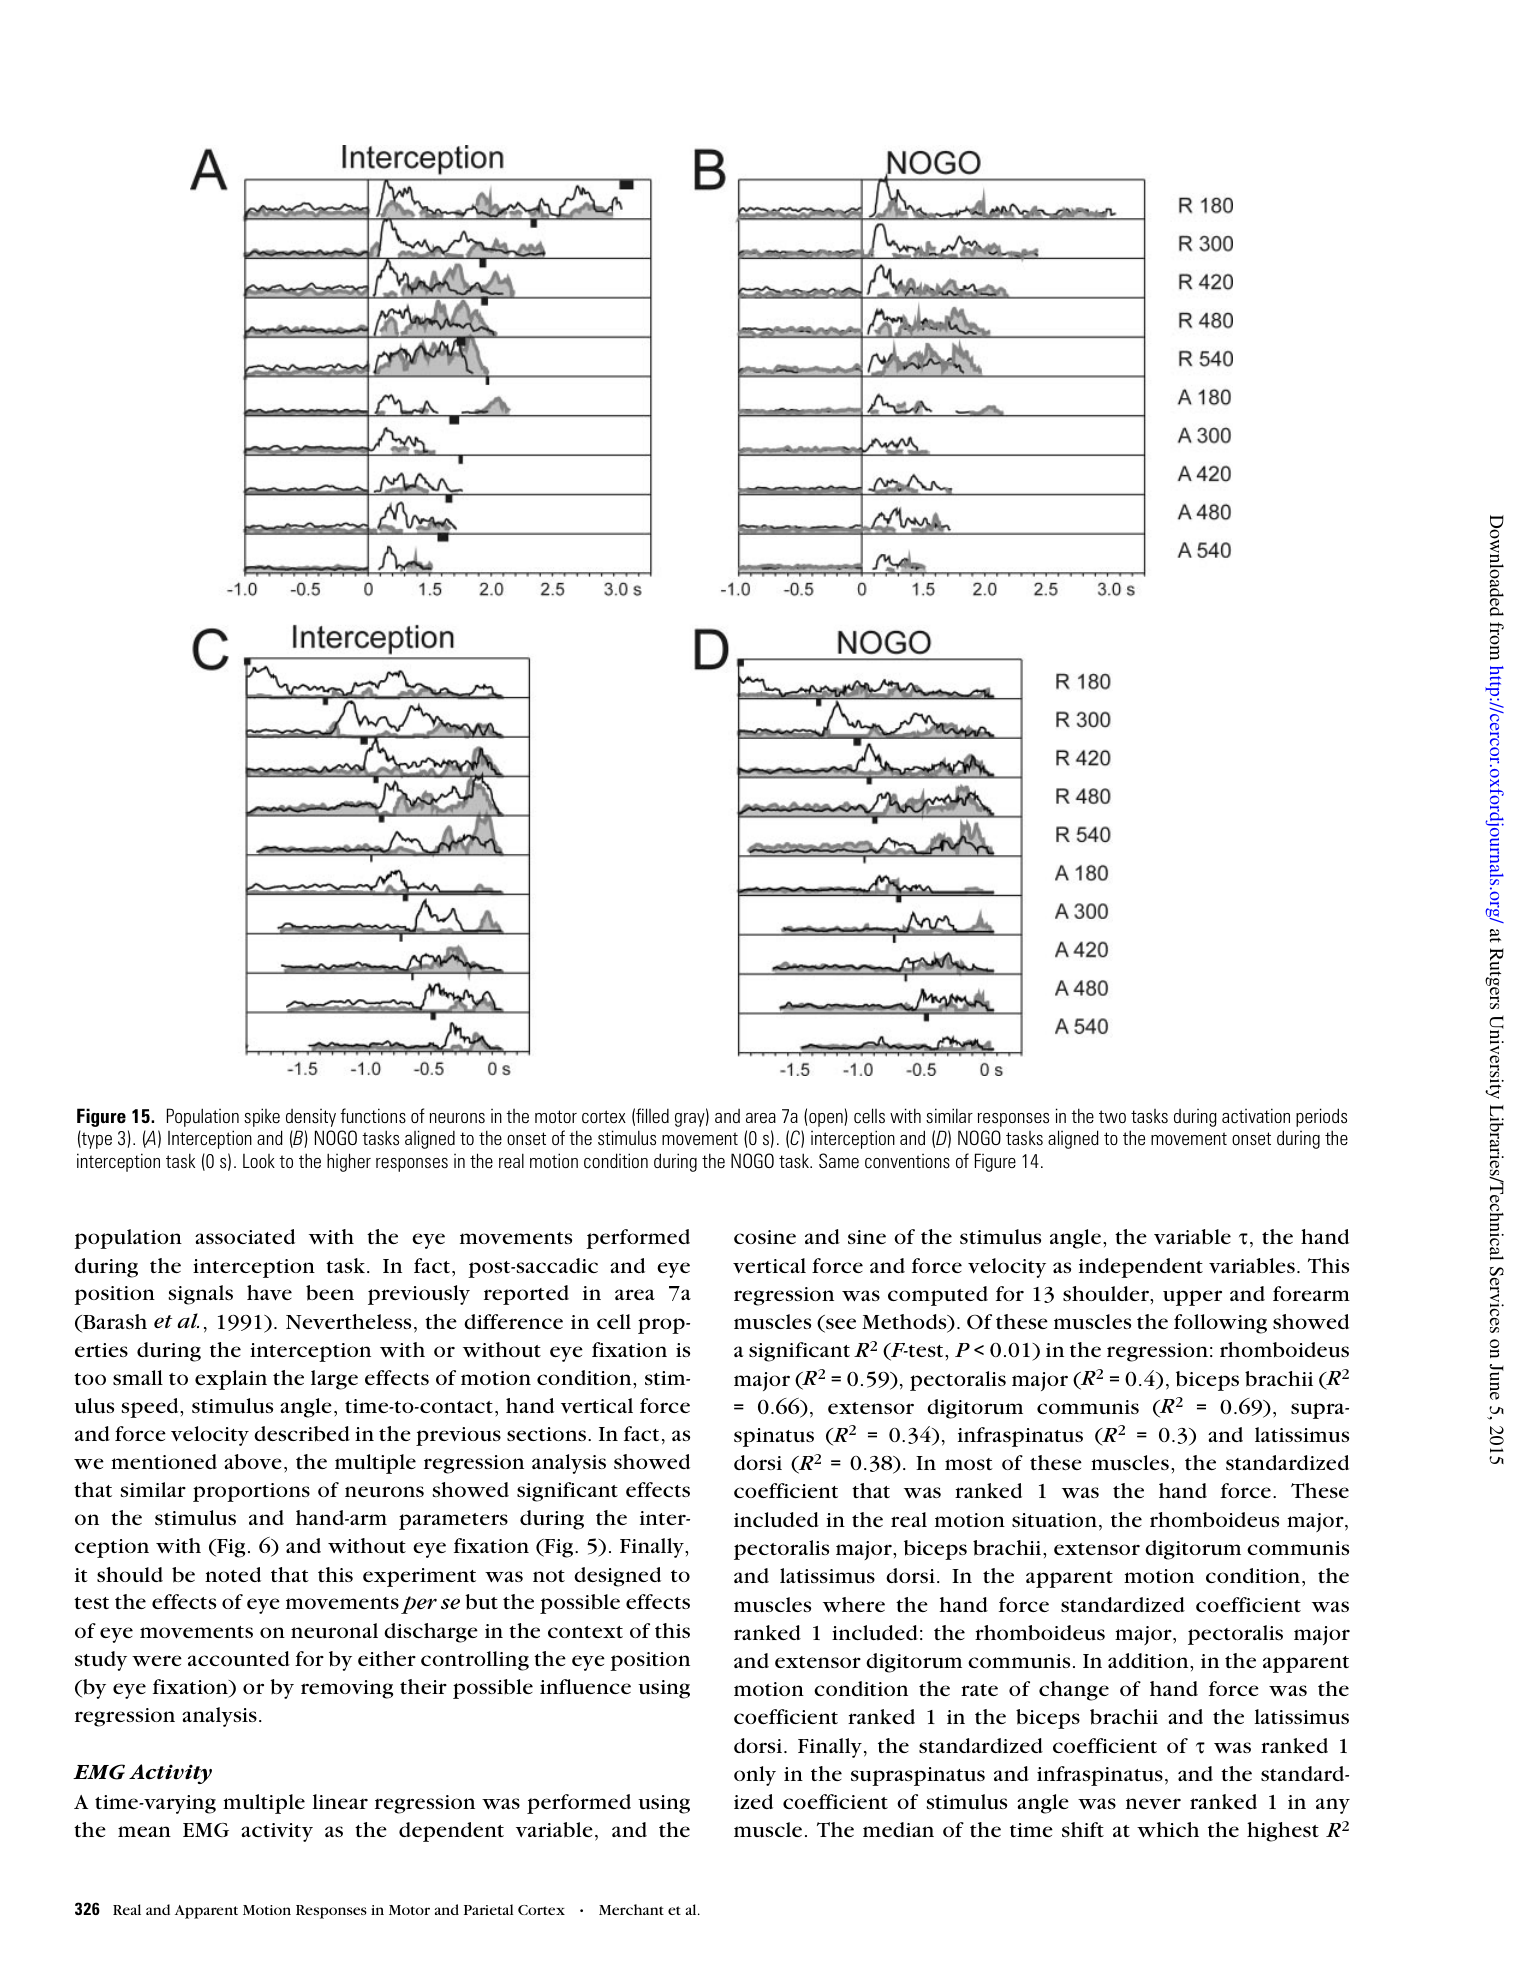 原文 Fig. 15 · PDF 第 13 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图15 · 双任务响应相近群体。 原图倒置已修复,保留全部条件与坐标。
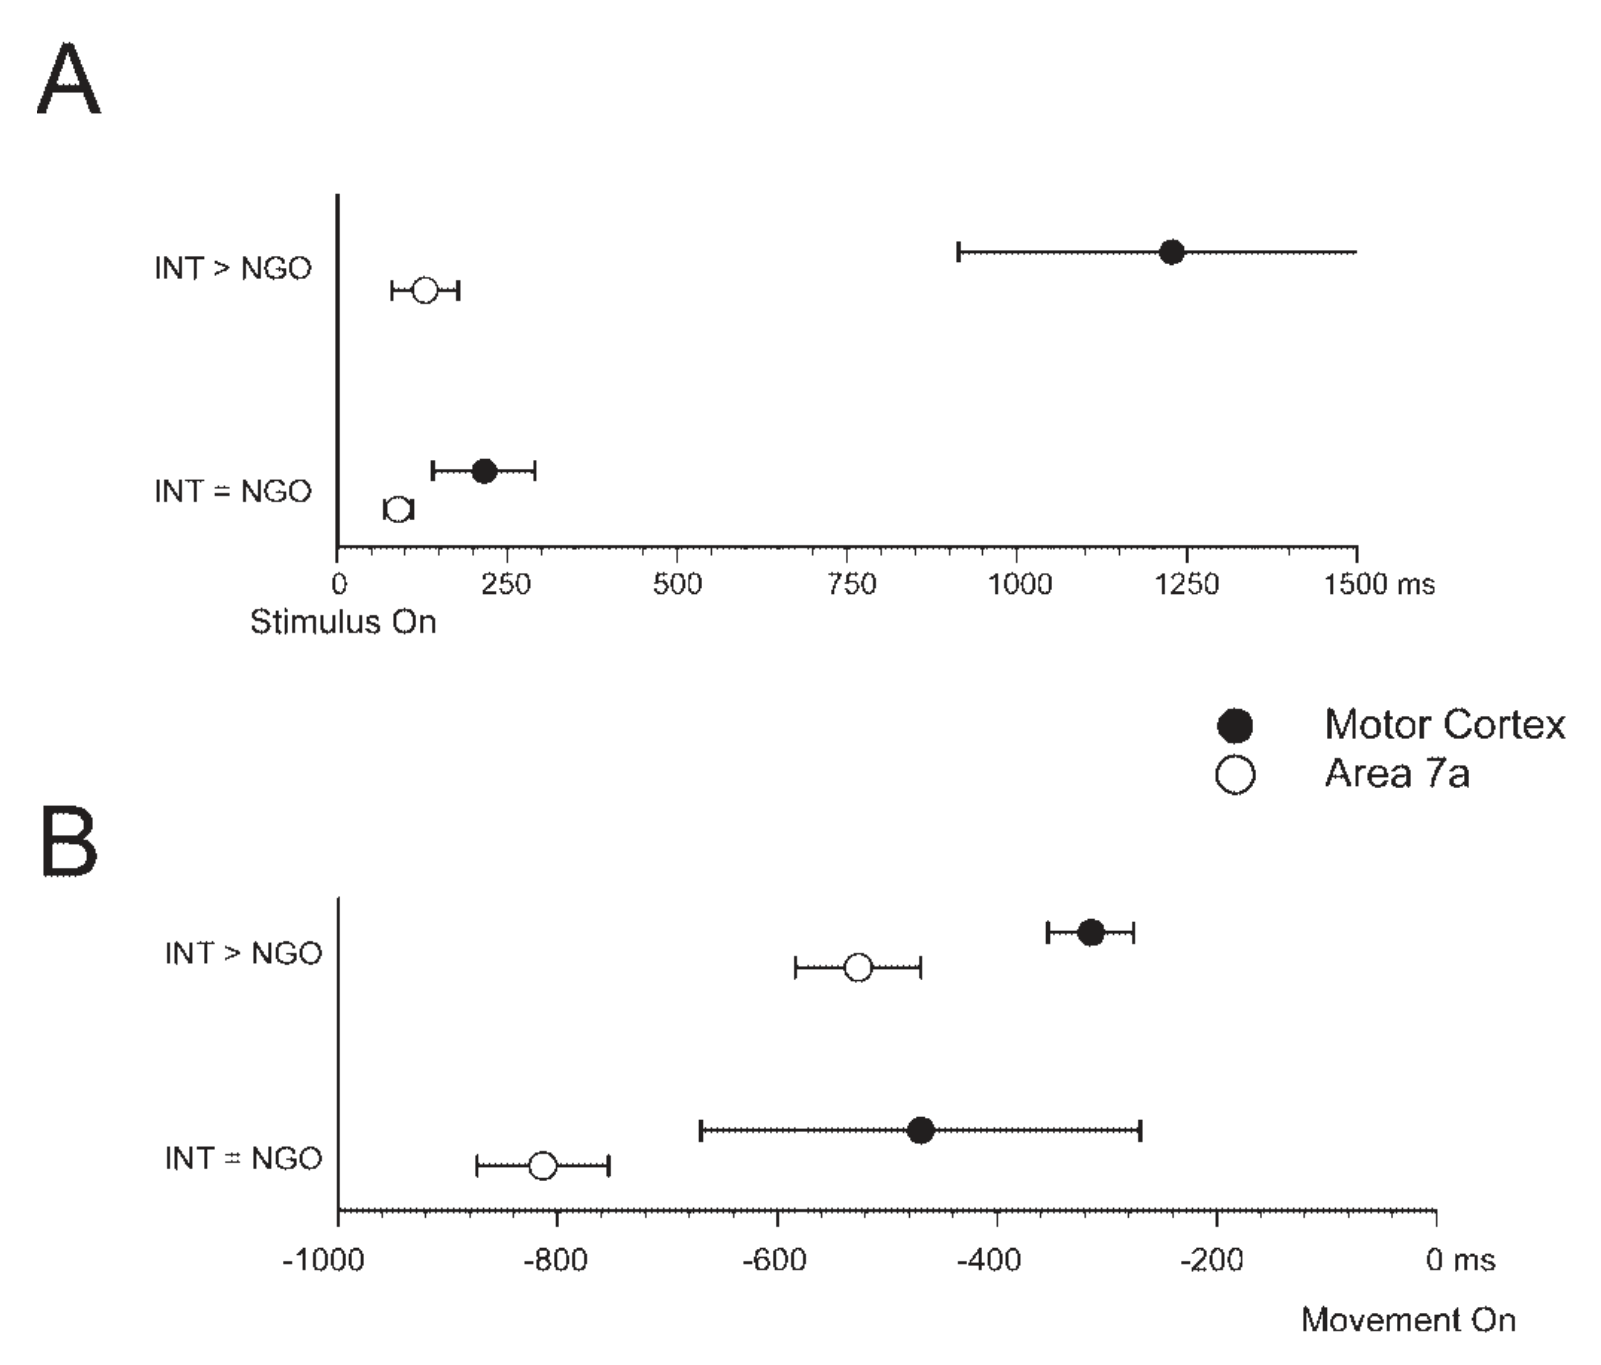 原文 Fig. 16 · PDF 第 14 页 · 原文图像 · 查看来源
图16 · 起始时刻汇总。 对齐方式、筛选和变异影响脑区差异,不能直接推断单向传递。
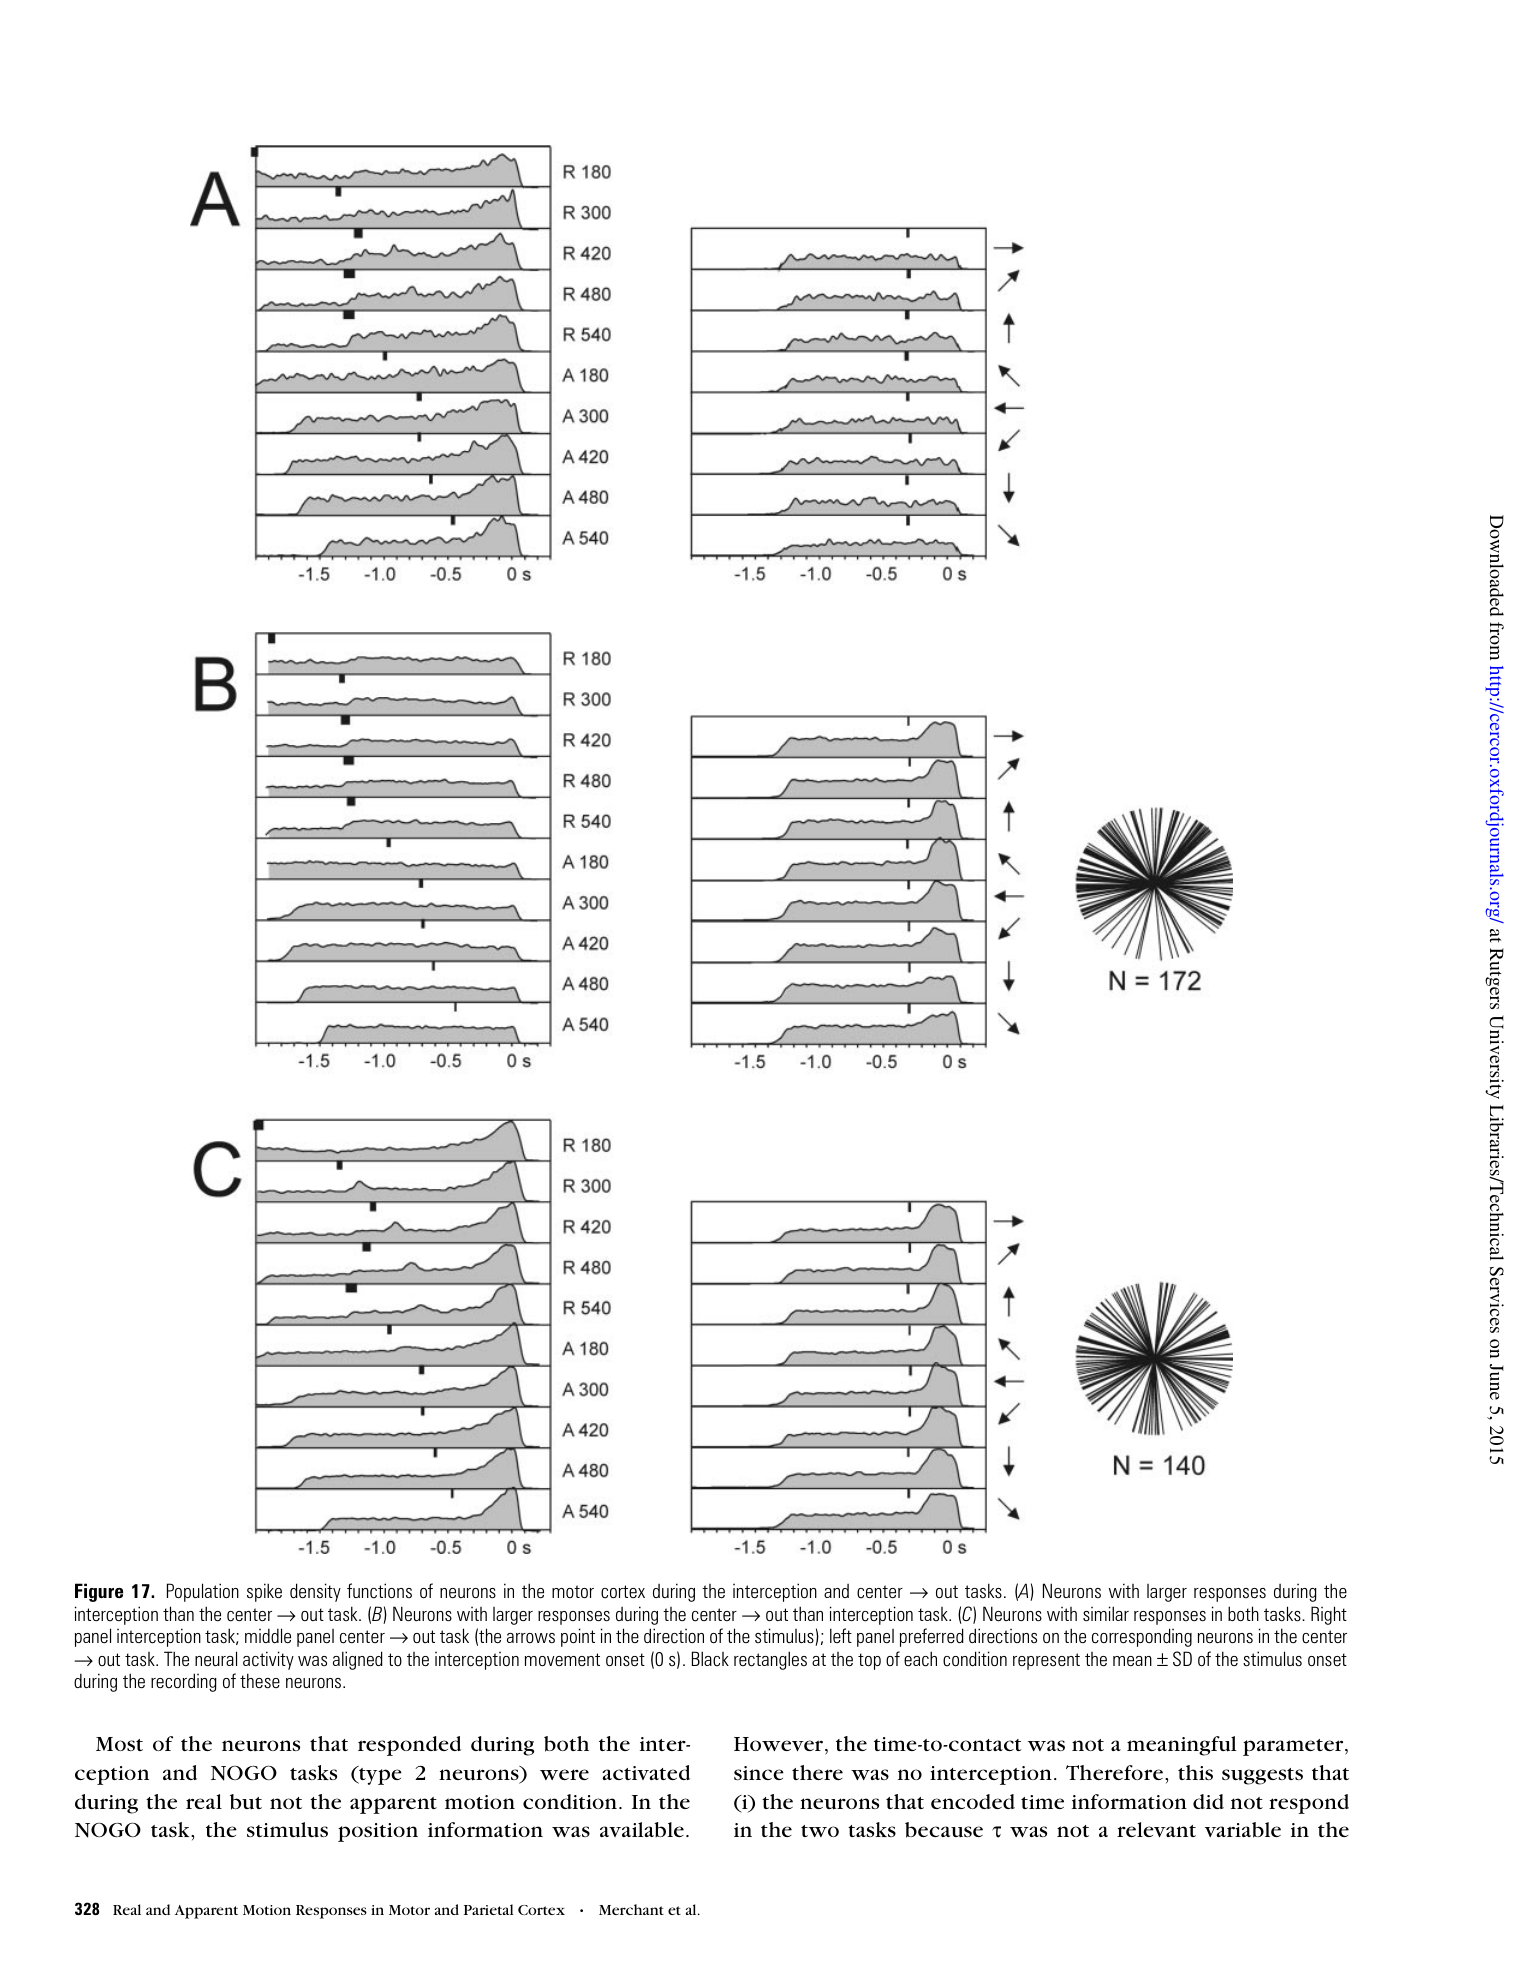 原文 Fig. 17 · PDF 第 15 页 · 原图所在完整页面;可能含正文或邻图 · 查看来源
图17 · 静态与拦截对照。 方向分布帮助解释任务差别,未排除全部运动学或准备混淆;原图倒置已修复。
讨论与解读边界
行为没有清楚支持单一固定阈值模型,神经相关也不能替行为“裁决”策略。apparent条件可使用闪现间隔,猴是否具有与人相同的运动知觉未直接测量。H01的tau基于手运动,本篇tau基于目标到达,不能把两文百分比当作同一编码的增强。原文图3图注把左右写反,应按轴标签读;图6的手位置/速度标签也应结合方法中的力变量理解。
思考问题
- 打乱闪现节律并独立改变目标到达时间,能否区分运动重建与间隔计时?
- 在对称时移范围和留出试次检验下,参数重要性、领先关系与负关联是否仍成立?