F08 · Rotational dynamics in motor cortex are consistent with a feedback controller
Hari Teja Kalidindi, Kevin P Cross, Timothy P Lillicrap, Mohsen Omrani, Egidio Falotico, Philip N Sabes & Stephen H Scott (2021) eLife, 10, e67256. doi:10.7554/eLife.67256
带感觉反馈的手臂控制网络即使删除层内循环连接,也可出现旋转群体轨迹。旋转与闭环控制相容,因此单靠jPCA旋转不能确定动力学来自局部递归还是系统输入。
核对依据:Zotero 条目 · 本地全文。本轮核对原文方法、关键结果、解释边界及所引主图;更新于2026-09-20。图注页码采用本地PDF文件页序,版本与未解决问题见正文及审查记录。
背景
在离散、非周期性伸手任务中观测到的神经群体旋转轨迹,将运动控制领域的研究重心引向了动力学视角:多样化的单细胞放电可由少数低维拟周期成分的线性组合生成,无需为每个细胞独立映射具体的运动学参量。然而,若直接从旋转轨迹的几何存在推断运动皮层必然是自主模式发生器(CPG),则跳过了对动力学物理来源的因果审视。运动控制实质上是一个闭环物理过程:运动神经输出驱动肌肉收缩与关节转动,肢体状态改变又经感觉传入通路以特定时延反传至控制回路。即便仅观测皮层电生理,这一感觉运动闭环本身就足以在网络中雕刻出高度规律的时序相关性。因此,必须将神经旋转置于外周肢体与感觉反馈闭环中重新审视,严格检验局部层内循环连接是否构成产生旋转轨迹的充要条件。
单纯在神经记录中寻找与运动学的统计相关,无法厘清动力学的内生与外生属性。感觉神经传导具备物理时延,肌肉与骨骼具有粘弹性动力学,多模态反馈信号又在皮层网络中深度整合;这些闭环环节的非线性耦合完全能在局部电生理记录中投射出难以剥离的时间模式。该研究构建了一个包含骨骼肌肉动力学与延迟感觉反馈的生成性反馈控制模型,在完成姿势维系与延迟伸手任务的约束下,对保留层内循环连接(REC)与彻底剥离层内循环连接(NO-REC)的控制网络展开了对称性比较。其核心检验标准在于:当剥离所有局部侧向循环连接后,网络若依然能控制肢体并展现出统计显著的jPCA旋转轨迹,便能确立一个明确的理论反例,证明神经旋转动力学与纯粹的反馈控制器高度相容,而非自主振荡回路所独有。
研究团队训练了控制两连杆、六块肌肉力学模型的神经网络,系统比对了皮层模拟单元、感觉反馈通道、合成肌电及外周关节运动学,并以猕猴运动皮层及躯体感觉顶叶皮层的电生理记录作为实证锚定。这项工作探讨的是“神经旋转来源的非唯一性”,而非量化真实大脑中反馈动力学与局部递归动力学的绝对比例份额。需强调的是,剥离层内侧向连接的网络依然保留了神经元的内在漏积分时间常数、前馈层间信息传递以及跨越外周手臂的感觉运动大闭环,因此不能将其称作“无动力学系统”或“不存在任何宏观循环”。此外,旋转模式的显著性对任务范式、反馈延迟与力学阻抗高度敏感,表明旋转轨迹并非任意反馈系统的必然副产物。在生物大脑中,局部递归回路与外周输入极可能深度交织,准备期的早期神经模式亦不能被尚未发生的外周感觉反馈所解释。这项工作的核心贡献在于将可观测的低维状态几何与底层的具体布线机制解耦。
研究思路
训练保留与剥离层内侧向循环连接的生物力学反馈控制网络执行姿势维系与伸手任务,系统比对神经、感觉、肌电与运动学信号,并以猕猴实测数据为基准进行参照。
方法
受控对象为包含非线性几何动力学与六块单/双关节肌肉的两连杆手臂模型,控制器由两层各500个漏积分人工神经元构成,实时接收目标坐标、含传导时延的关节运动学以及肌肉本体感觉反馈。无循环网络(NO-REC)完全移除了同层内部的侧向连接权重矩阵,但严格保留了单个单元的时间常数衰减、前馈层间传递以及神经—肢体—感觉外周闭环,不可等同于无动力学或全静态系统。
动力学评估采用jPCA算法,计算反对称矩阵相较于无约束线性动力学拟合的拟合优度,并利用张量最大熵(TME)替代数据作为零假设检验旋转结构的统计显著性;电生理参照数据集涵盖了猕猴M1、S1以及顶叶Area 5的已公开记录,多个动物及脑区的汇聚样本不应混同为单一回路内的同步监测数据。
主要结果
在保留层内循环的REC姿势网络中,控制器隐层及部分外周感觉反馈输入均展现出清晰的旋转几何,而合成肌电的旋转拟合较弱;猕猴M1以及体感皮层S1/Area 5记录同样展现出类似的低维旋转,但这并不代表肌肉活动在数学上绝对不存在微弱的旋转投影。
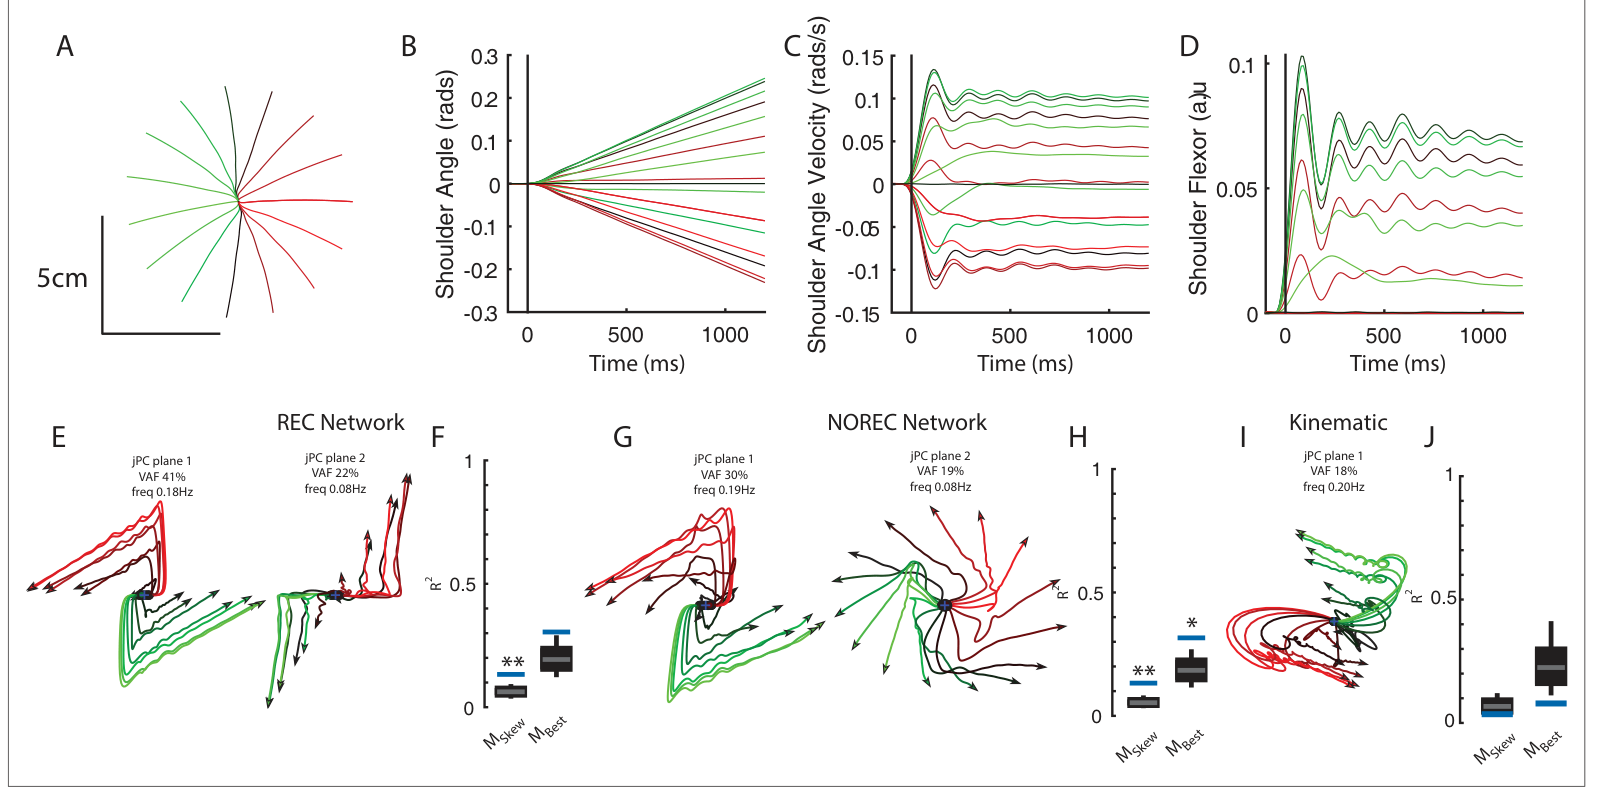
彻底剥离层内循环的NO-REC网络依然成功稳定了肢体并展现出强劲的低维旋转轨迹,构成了对“神经旋转必须由局部皮层循环连接生成”这一主流推论的有力反例。论文正文指出,NO-REC网络在姿势维系任务下的jPCA旋转拟合R²约为0.43、伸手任务约为0.46(无约束线性拟合R²分别约为0.54与0.56),但在TME零假设检验下其反对称优势并未达到统计显著,不能将绝对拟合优度的高低与动力学显著性划等号。
需如实保留原文中的图文数据分歧:在图8伸手任务面板中,标注的拟合频率为1.7 Hz与0.88 Hz,前两个平面解释方差分别为36%与19%;而在正文叙述中对应数值表述为1.4 Hz与0.85 Hz,解释方差为82%。文本如实记录该文献内部差异,不作主观拉平处理。此外,改变感觉延迟长度、控制坐标系以及任务范式(如连续追踪)均会显著重塑旋转动力学的具体形态。
逐图解读
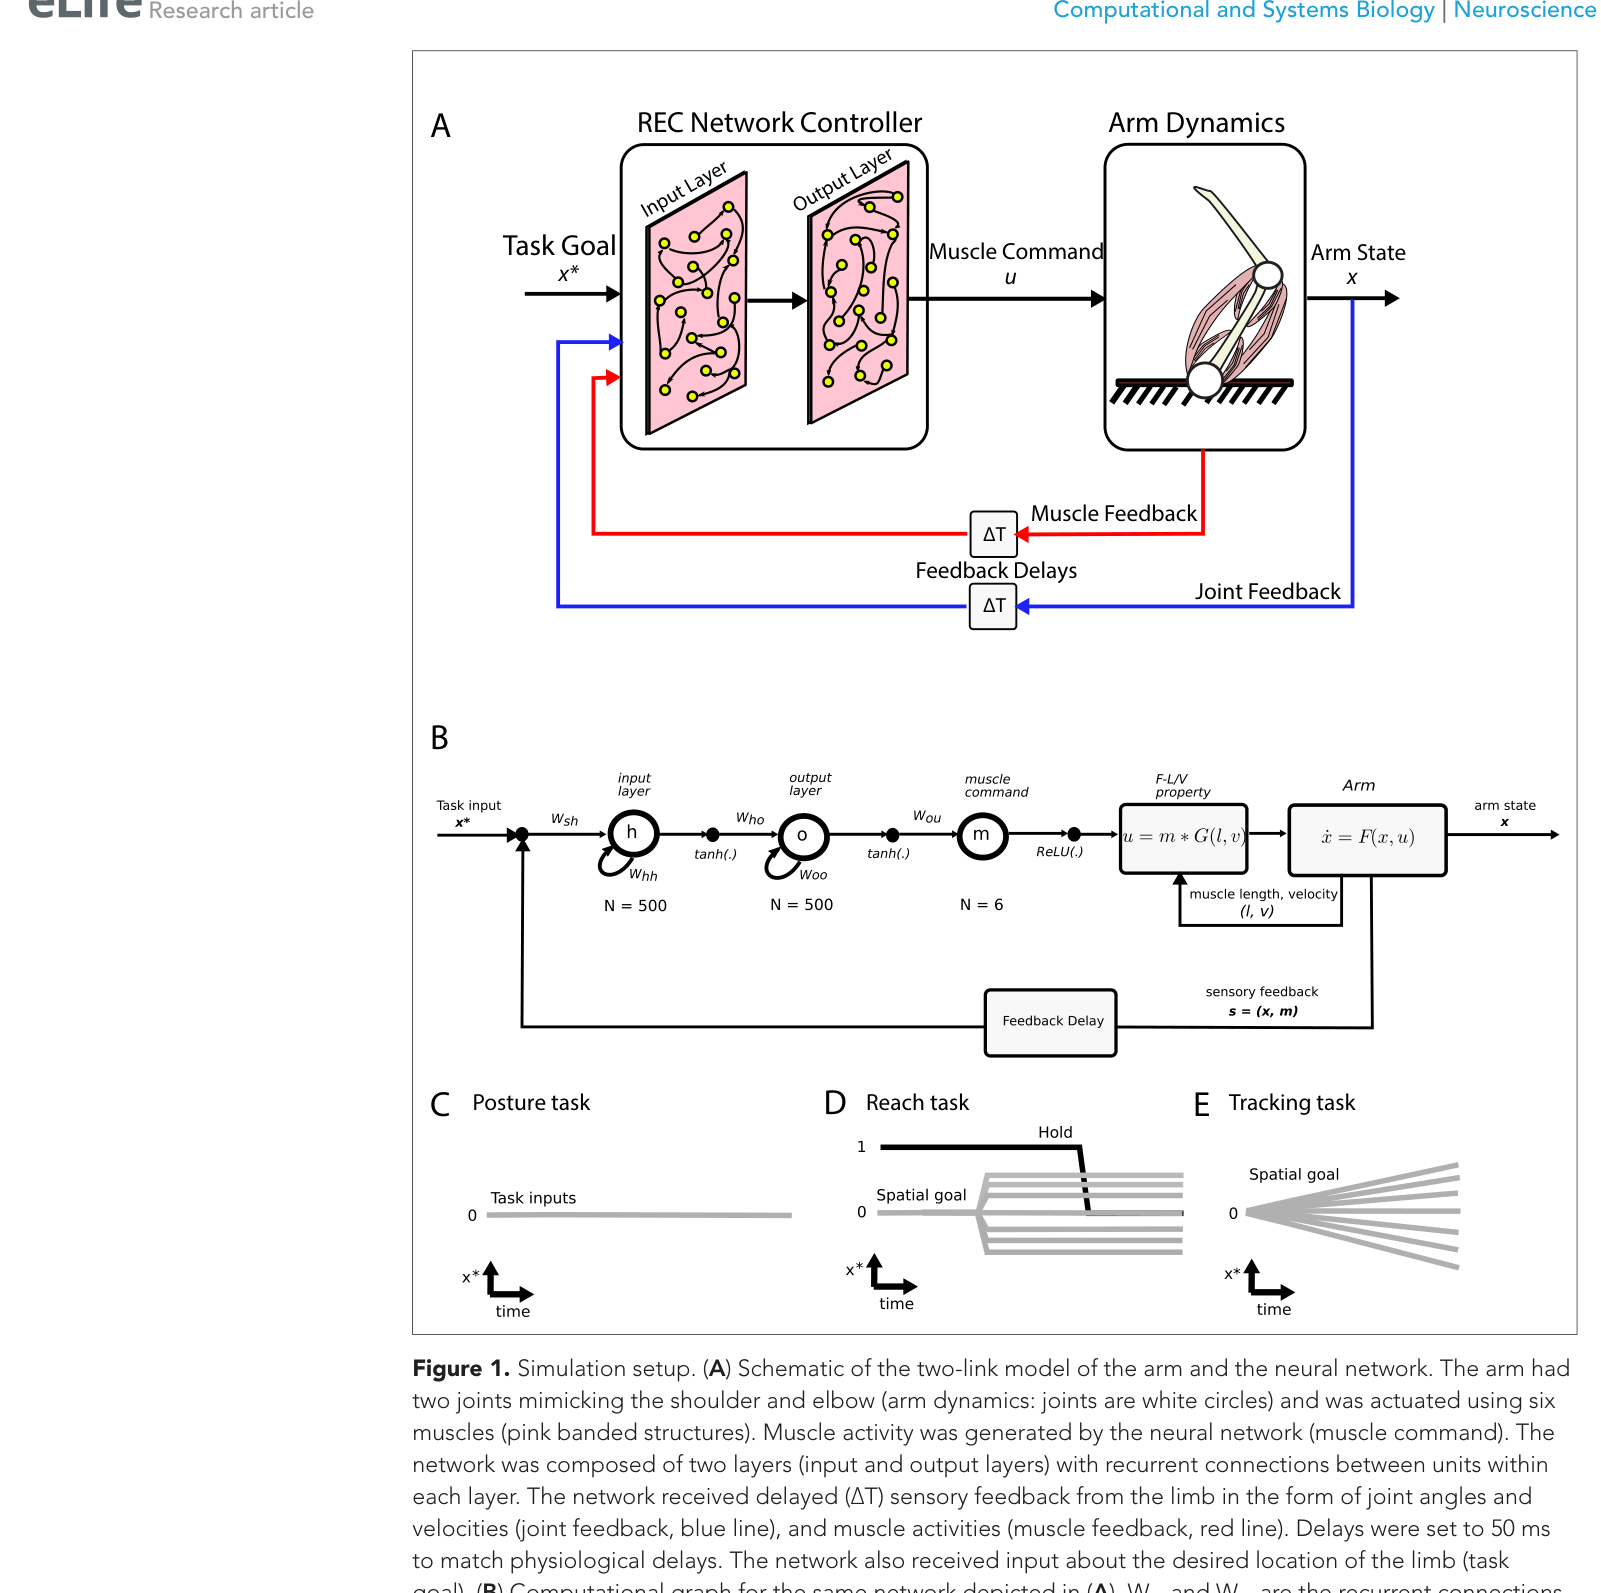 原文 Fig. 1 · PDF 第 4 页 · 原文图像 · 查看来源
图1 · 完整闭环模型。 包含网络、手臂及延迟反馈;NO-REC不等于整个系统开环。
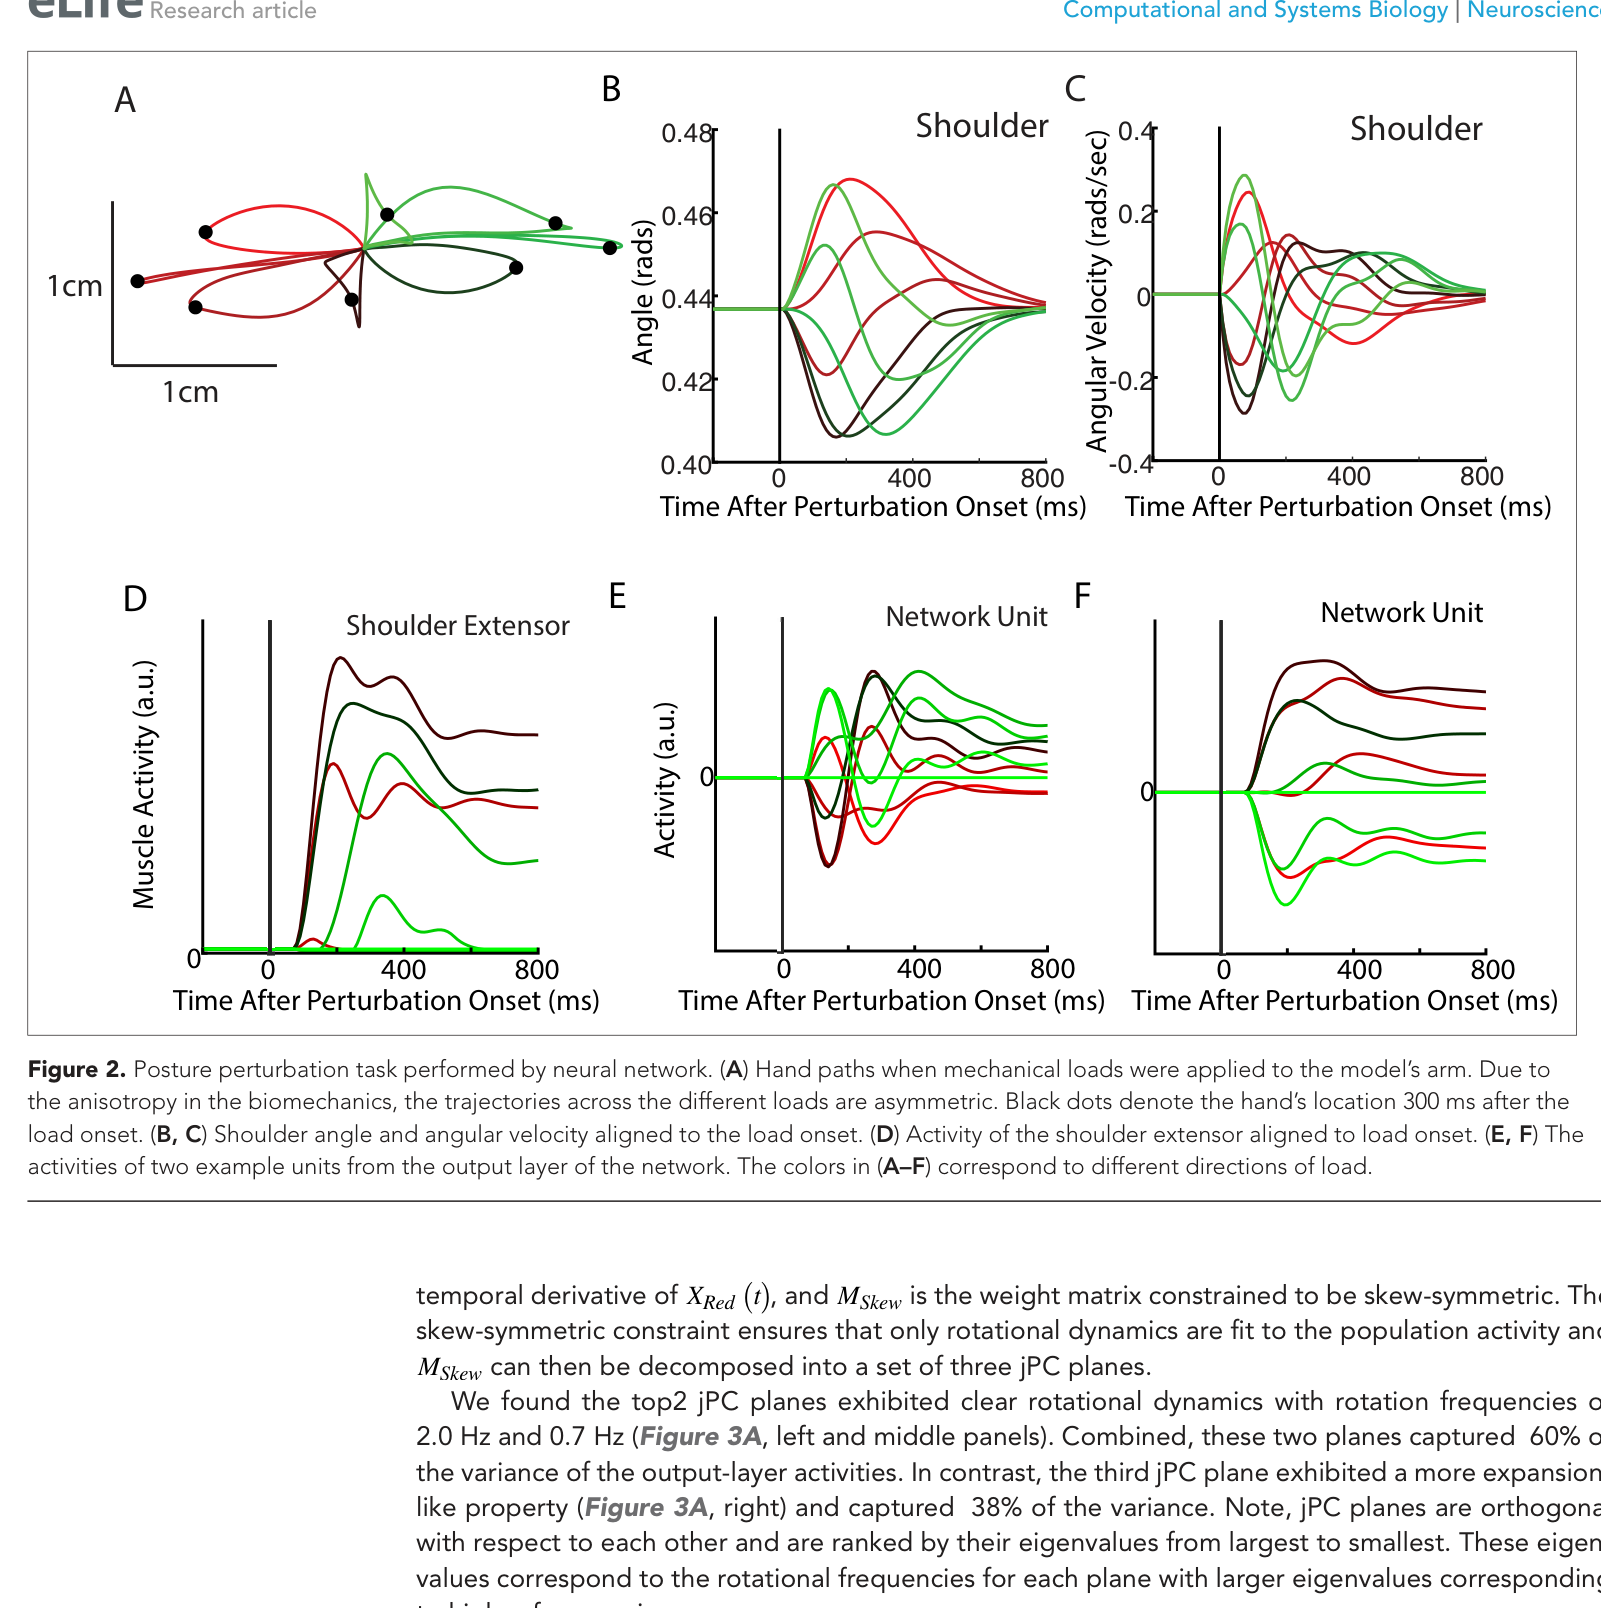 原文 Fig. 2 · PDF 第 5 页 · 原文图像 · 查看来源
图2 · 模型姿势纠正。 关节、肌肉和网络时程用于检查行为与控制。
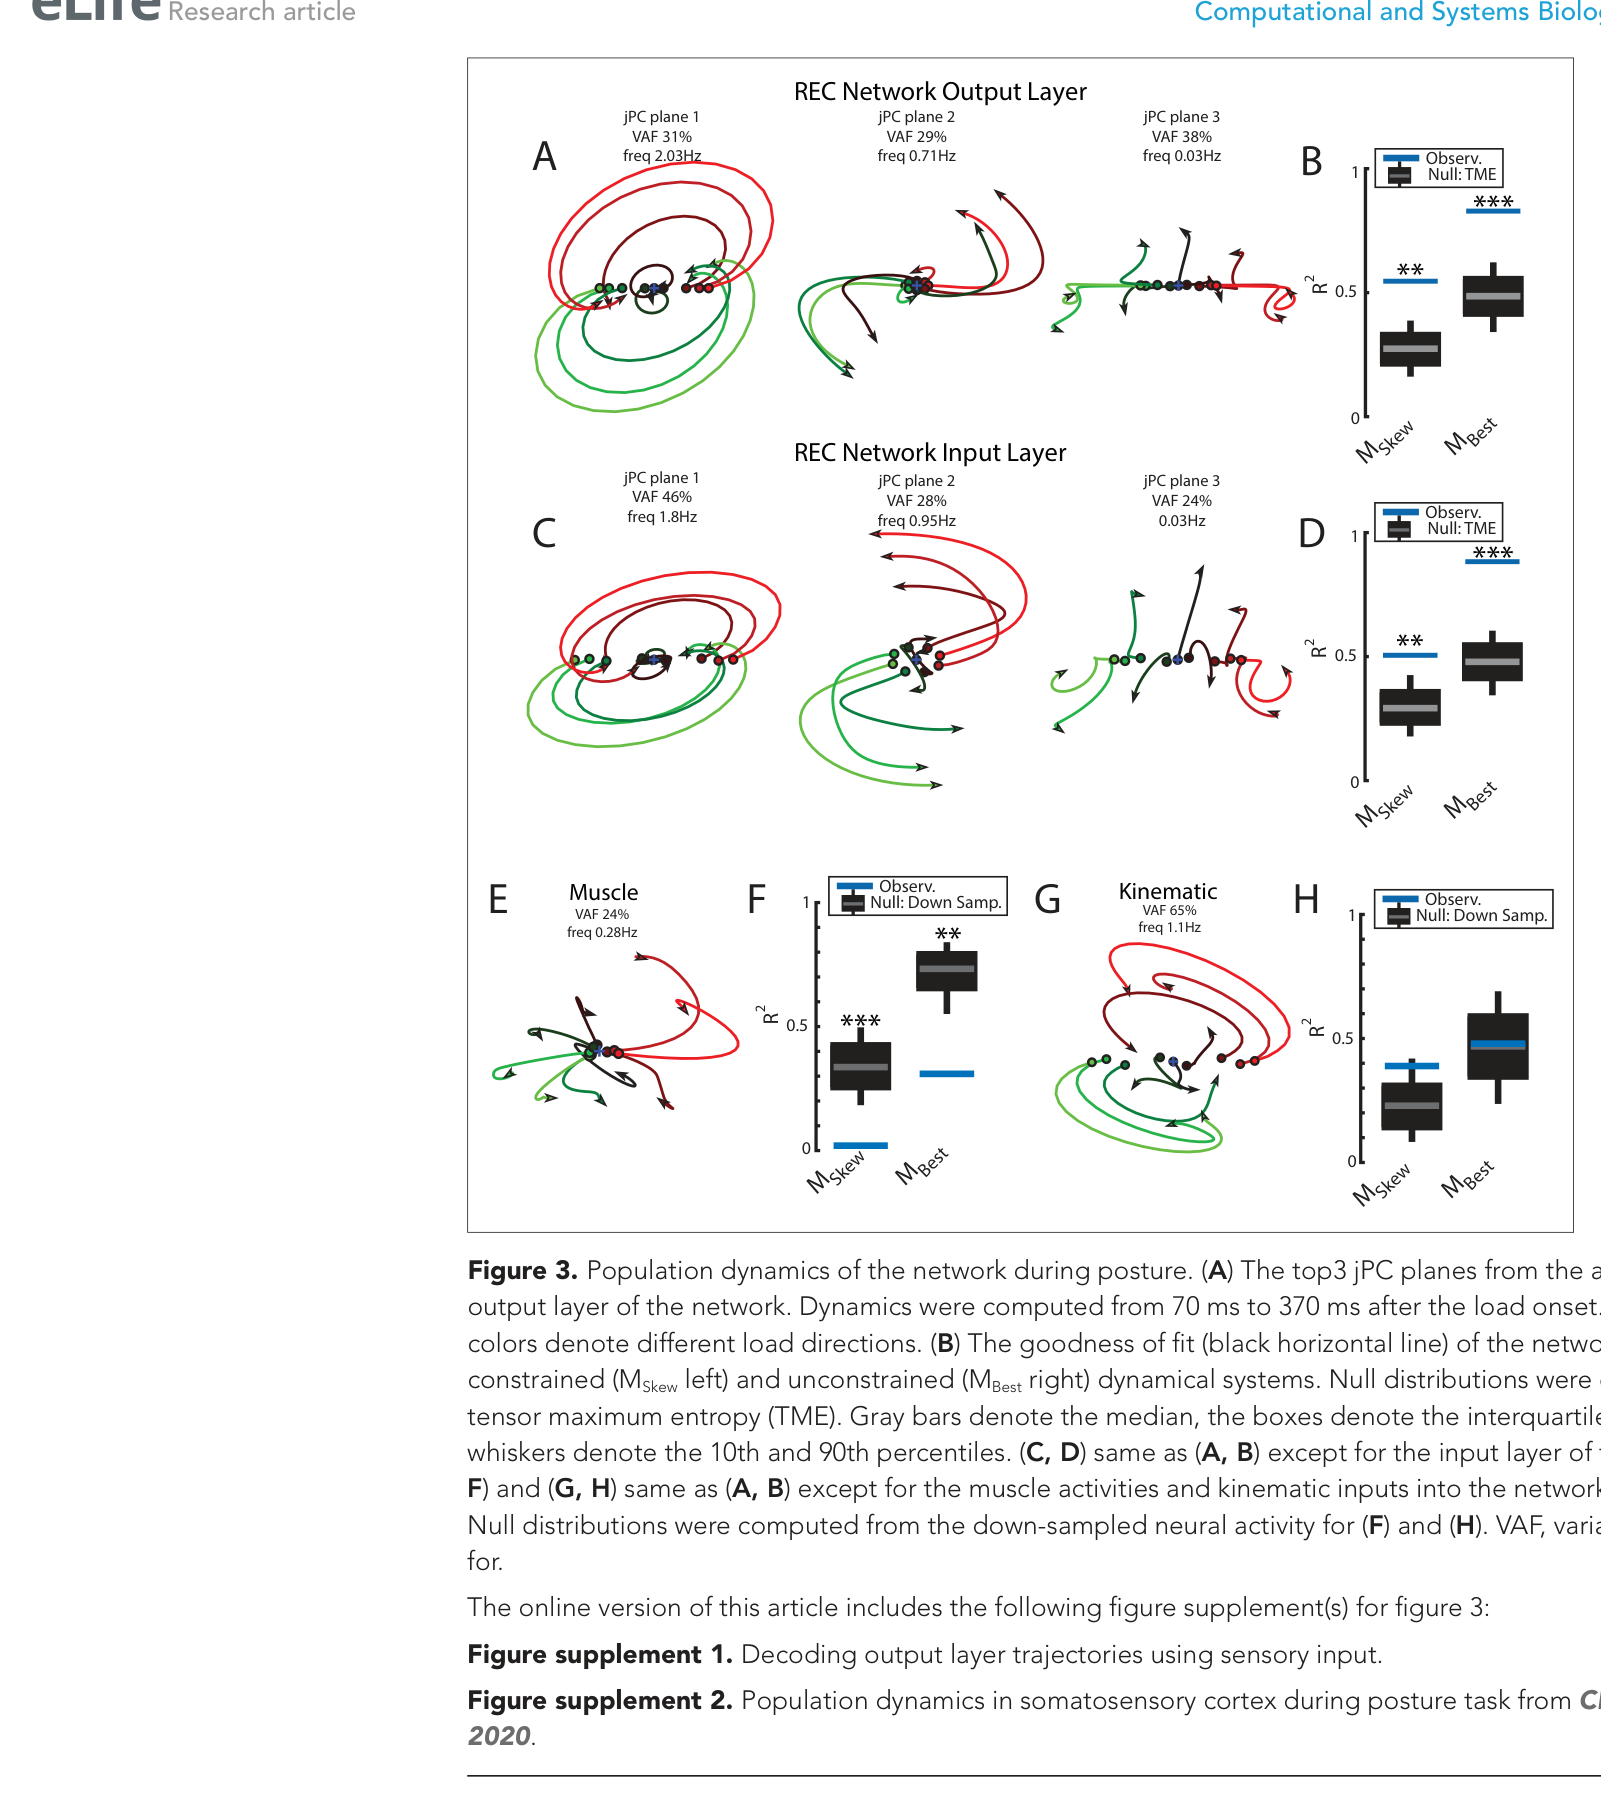 原文 Fig. 3 · PDF 第 6 页 · 原文图像 · 查看来源
图3 · 模型旋转分析。 神经、肌肉和运动学的维数及对照不同,比较时不能只看圆形外观。
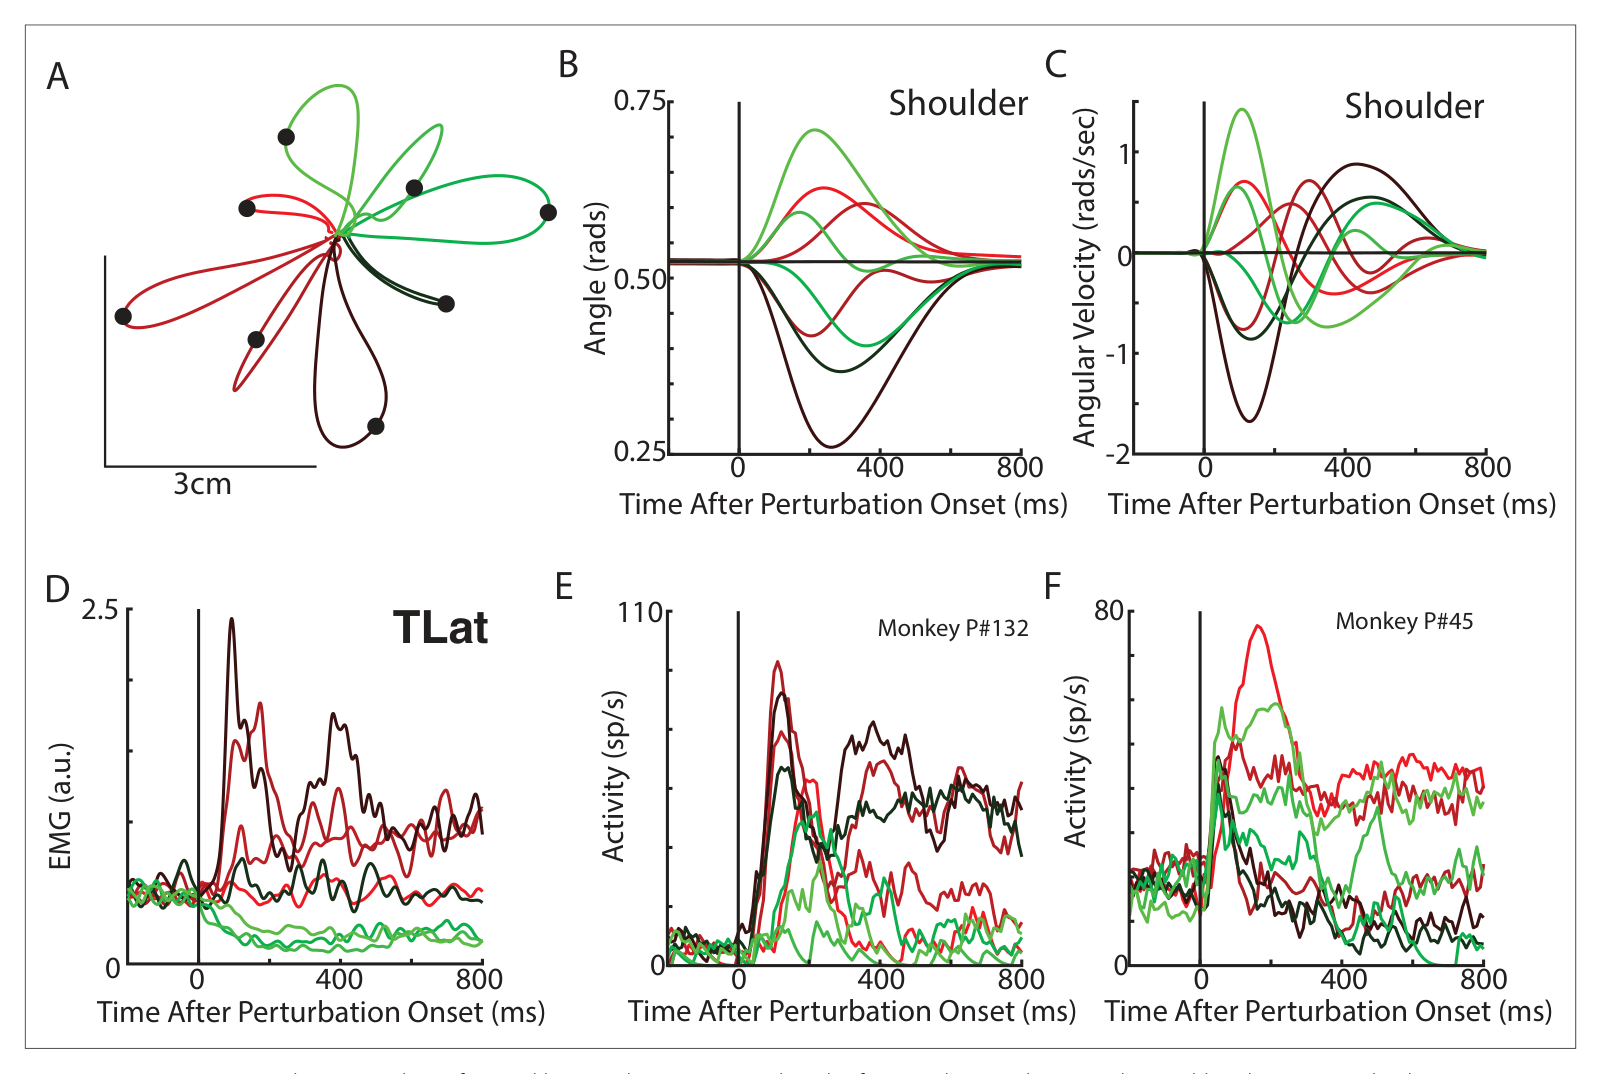 原文 Fig. 4 · PDF 第 7 页 · 原文图像 · 查看来源
图4 · 猴姿势扰动数据。 手轨迹、关节、肌电与示例细胞为后续群体分析提供背景。
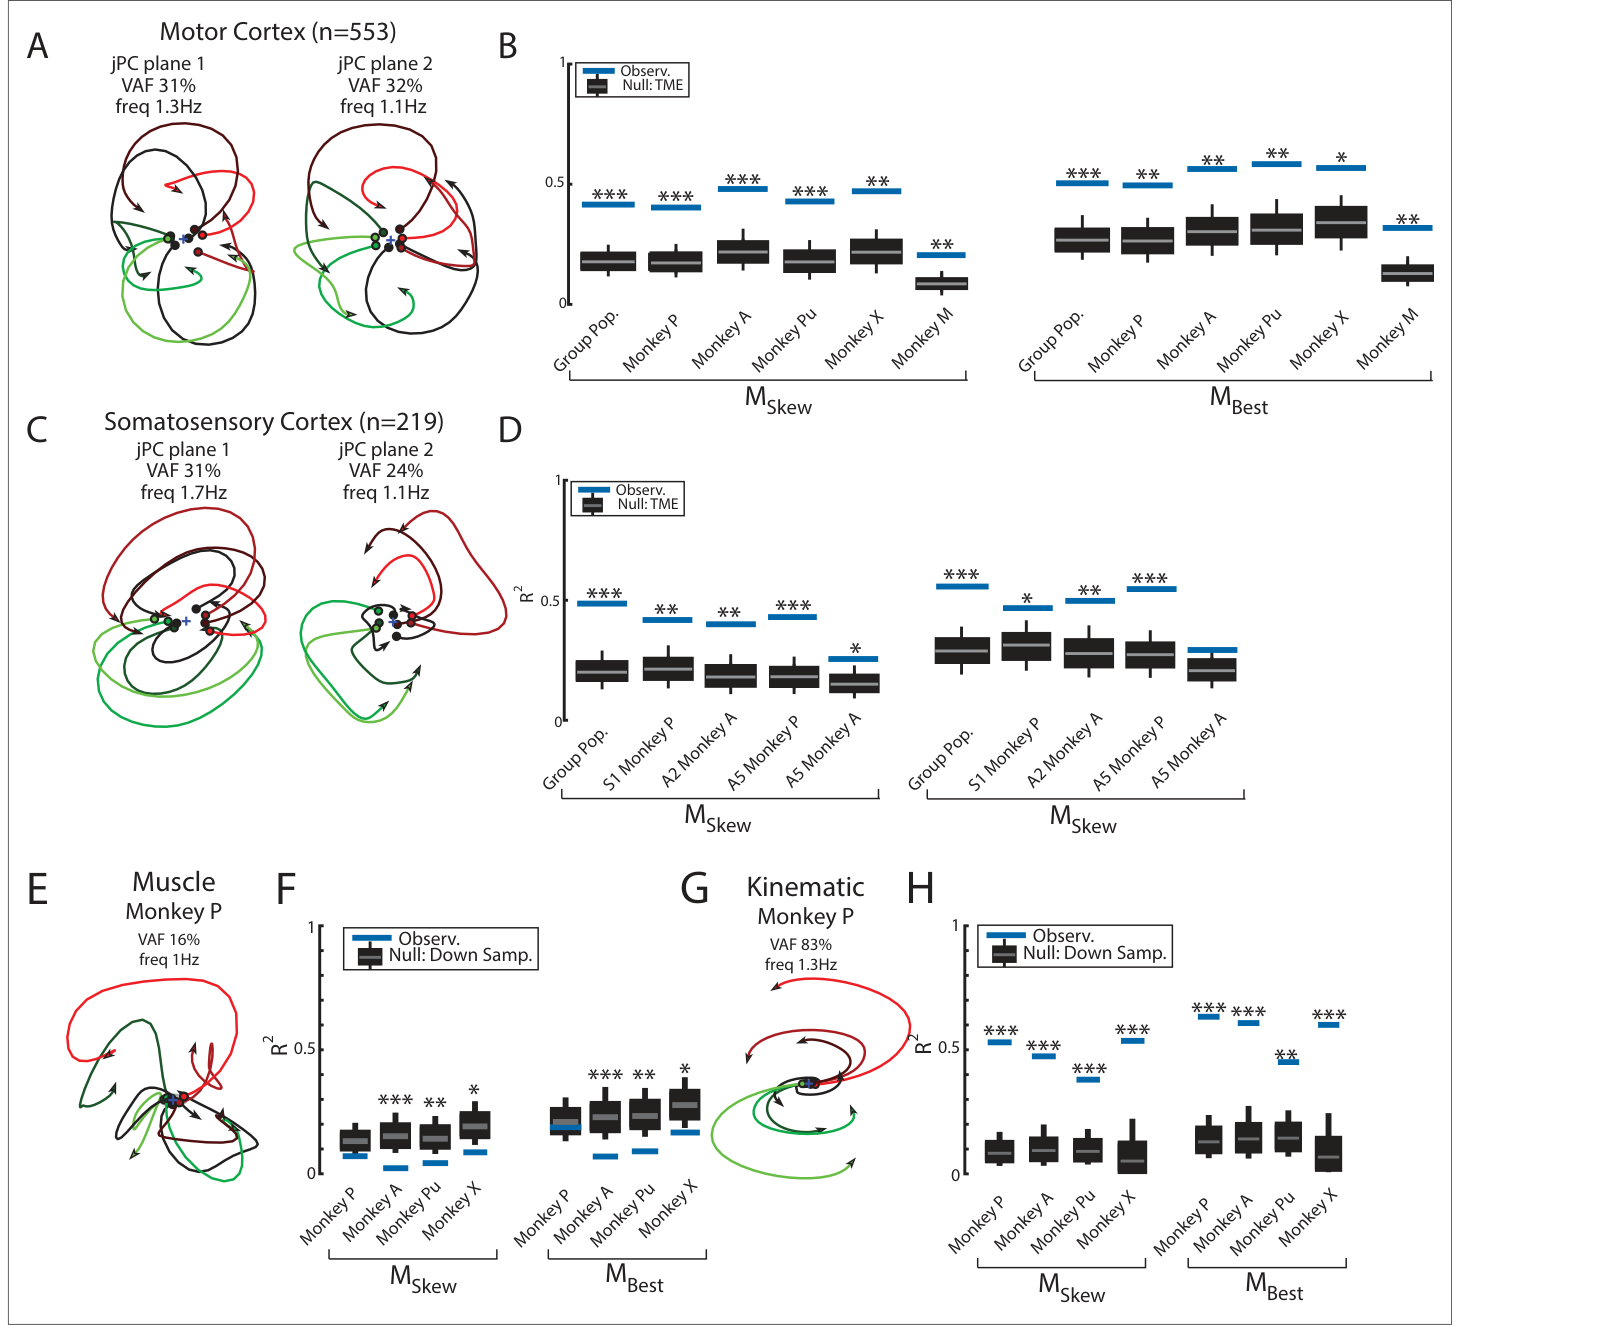 原文 Fig. 5 · PDF 第 9 页 · 原文图像 · 查看来源
图5 · 猴群体比较。 MC及体感/顶叶群体显示旋转;池化样本与单猴结果应区分。
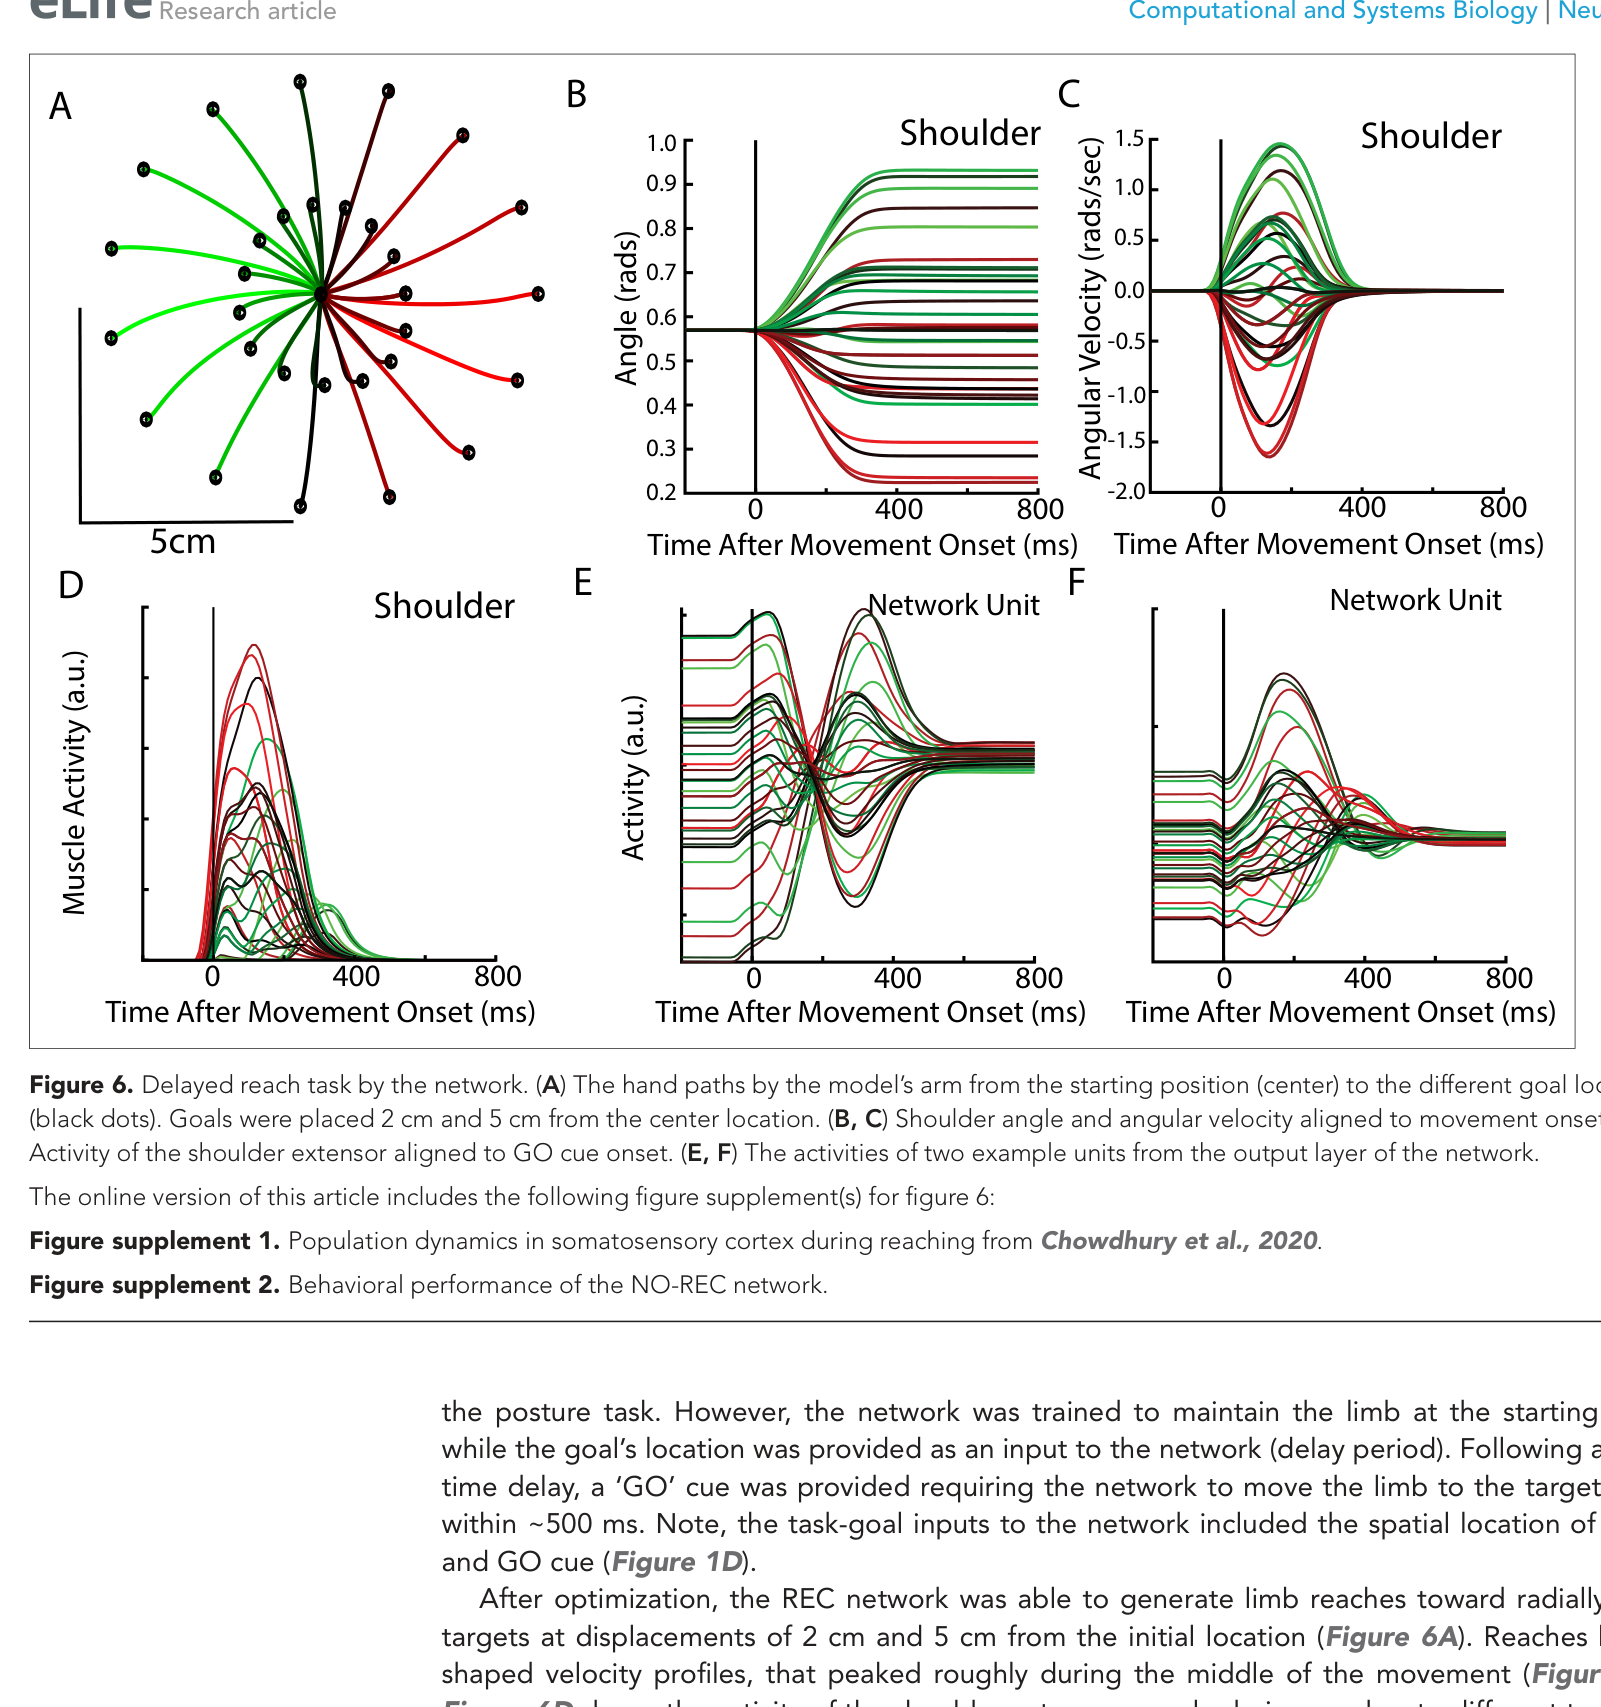 原文 Fig. 6 · PDF 第 10 页 · 原文图像 · 查看来源
图6 · 模型伸手。 行为和神经时程展示任务实现,并非新猴实验。
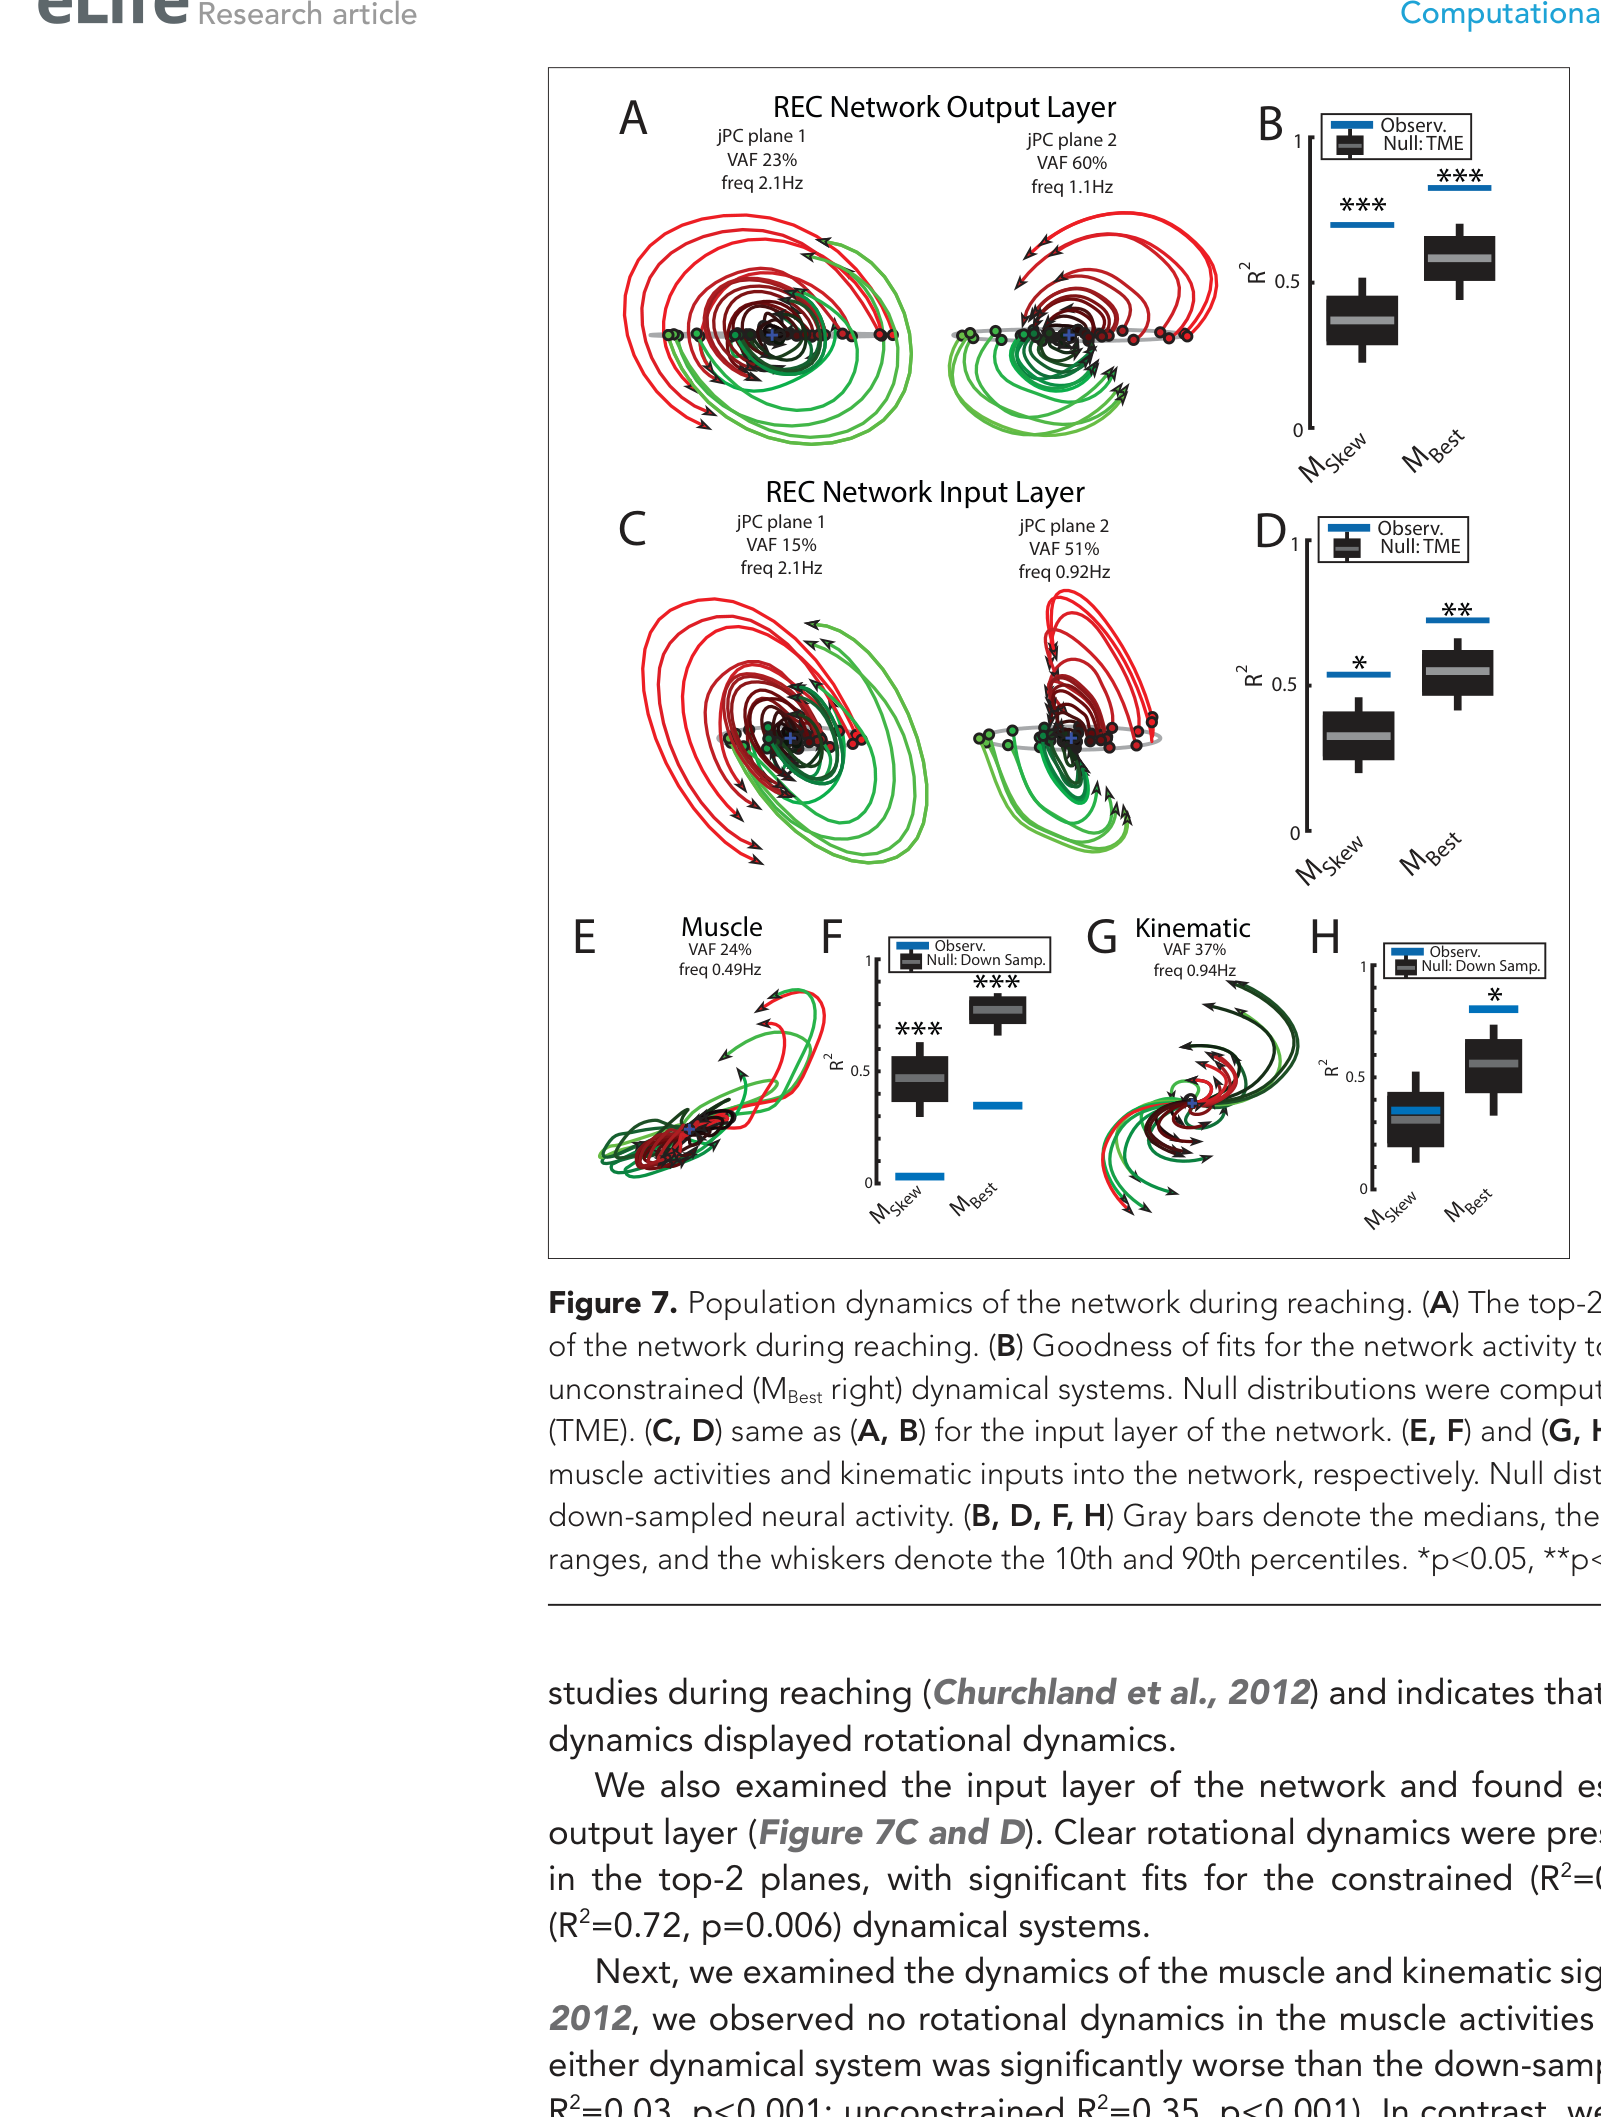 原文 Fig. 7 · PDF 第 11 页 · 原文图像 · 查看来源
图7 · REC伸手旋转。 比较两层、肌肉及运动学的投影与拟合。
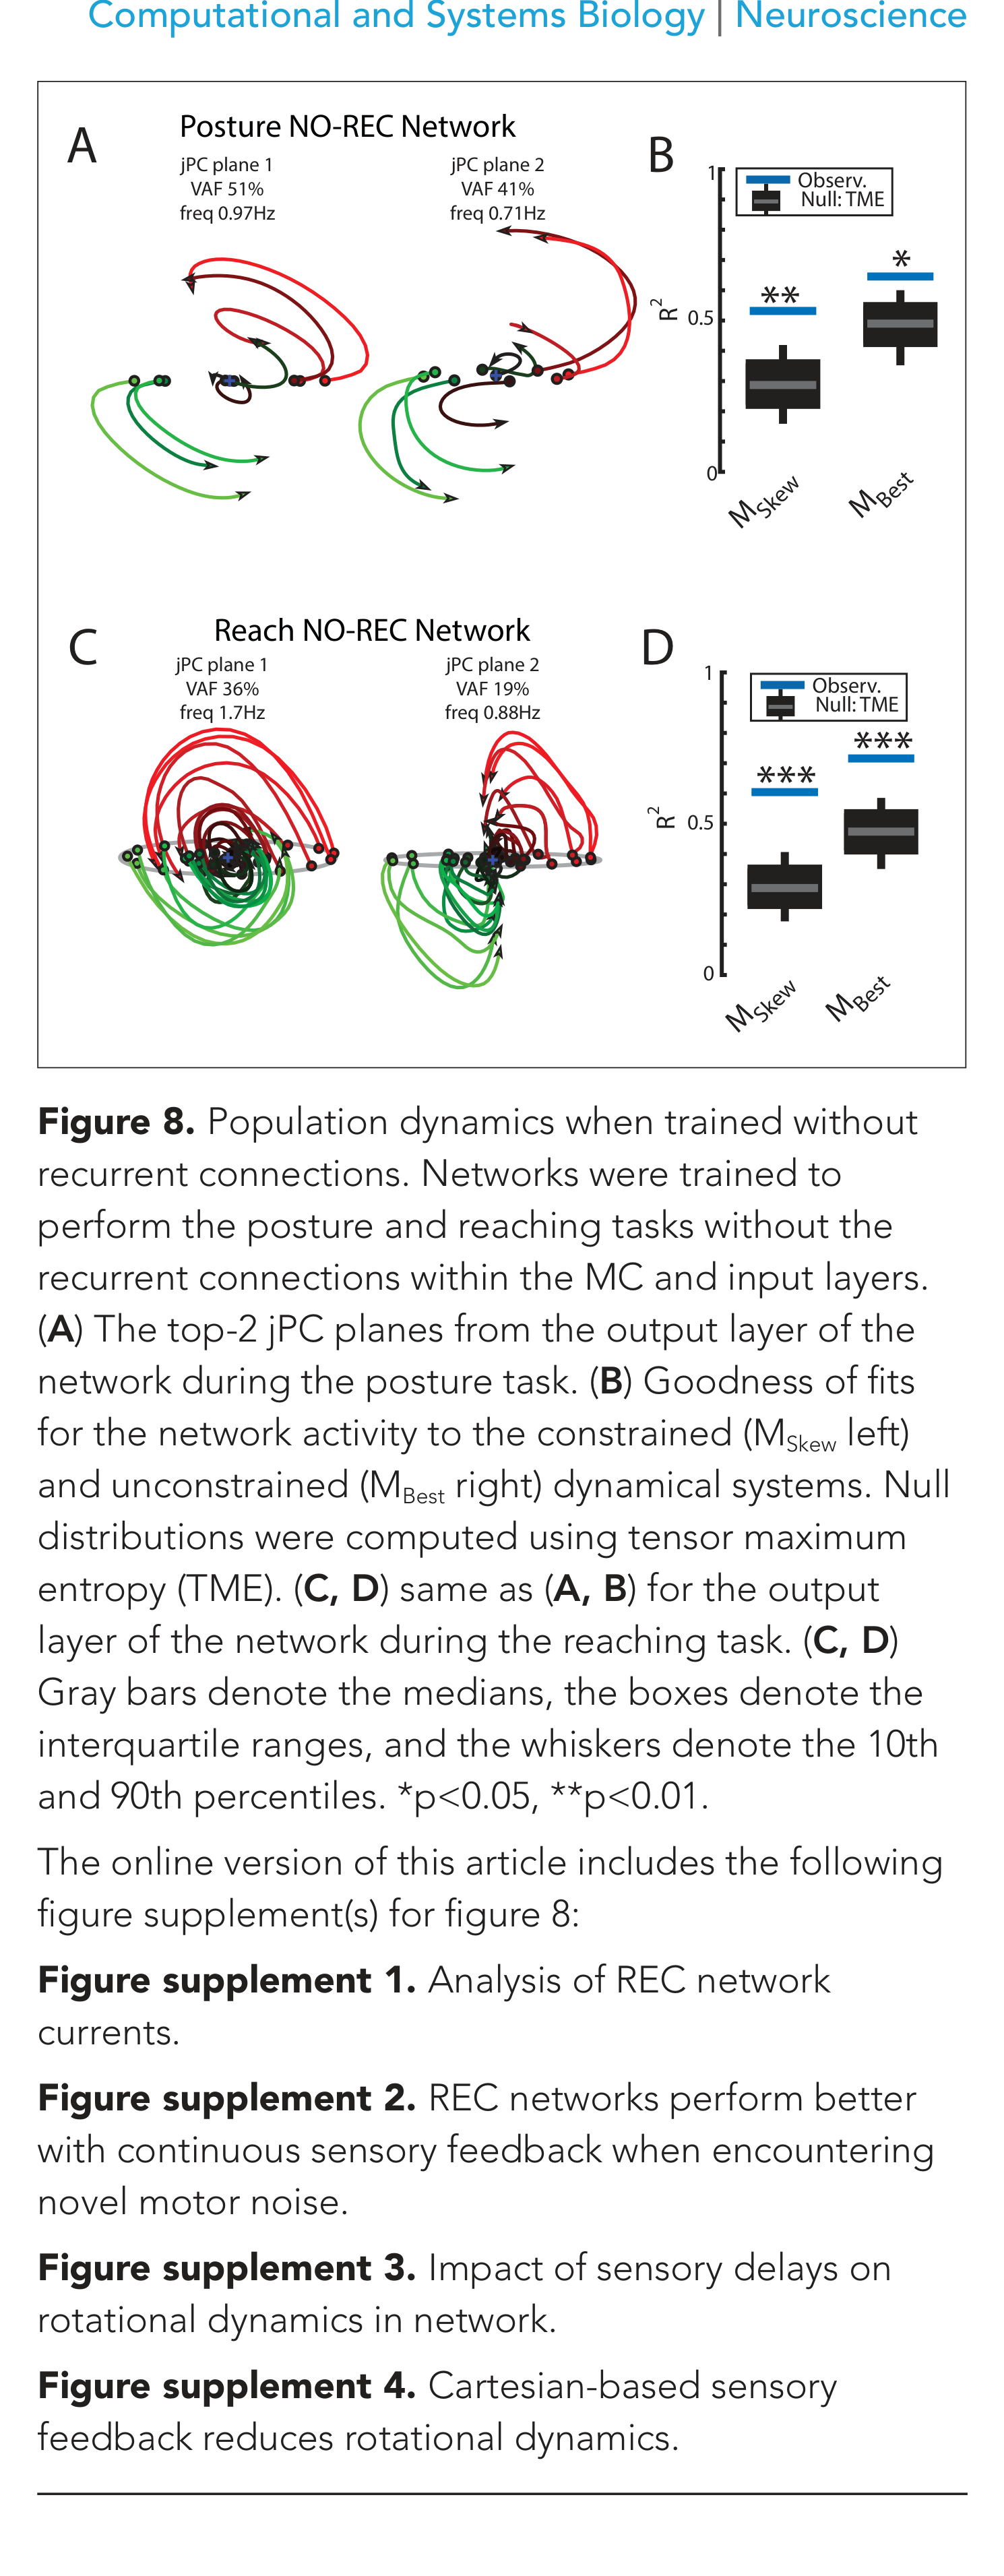 原文 Fig. 8 · PDF 第 12 页 · 原文图像 · 查看来源
图8 · 删除层内循环后的结果。 姿势与伸手均显示旋转;图内和正文数字差异见主要结果,不能从正文数字覆盖图中标签。
 原文 Fig. 9 · PDF 第 15 页 · 原文图像 · 查看来源
图9 · 匀速追踪。 该任务旋转较弱,说明其依赖任务和输入结构,而非所有控制器都必然旋转。
讨论与解读边界
计算模型确立了神经旋转的外源性相容路径,但无法据此断定真实运动皮层中局部递归动力学与外周闭环反馈的精确物理配比。模型中感觉驱动电流占比较大属于特定最优控制目标函数的数值解特征;且准备期的复杂空间重组显然无法用动作发生后才产生的本体感觉反馈来解释。在生理现实中,模式化输入与内生循环高度可能协同运作,群体旋转既非自主模式发生器的充分判据,亦非一切闭环反馈系统的固有标志。
思考问题
- 匹配轨迹与输出后,改变反馈延迟能否产生可区分局部递归和闭环输入的相位响应?
- 在等长、伸手和追踪任务中,哪些旋转差异可由运动学及分析窗口解释,哪些仍需神经机制?