A04 · Neuronal population coding of movement direction
Georgopoulos, A.P., Schwartz, A.B., & Kettner, R.E. (1986). Science, 233, 1416–1419. doi:10.1126/science.3749885
把宽方向调谐细胞的偏好方向按放电变化加权求和,可以重建猴三维伸手的目标方向。224个入选细胞的八方向平均角误差为15.8°;这是一种群体读出结果,不是下游神经回路实际执行该算法的证明。
核对版本:Zotero motor_control_interception_64 集合本地全文(PDF 全文提取,图注与正文互相校订,2026-09-18;图注所标页码均为 PDF 文件页序,非期刊印刷页码);Zotero 条目。
背景
宽调谐意味着一个细胞在多个运动方向上都可能放电。本文考察怎样汇集这些不专属于单一方向的响应,得到更明确的运动方向估计。
研究思路
先用三维方向余弦拟合每个细胞的平均响应,确定其偏好方向,再以相对拟合常数项的放电变化为权重,计算所有细胞方向向量的和。最后比较群体向量与实际目标方向的夹角。
方法
猴从肩高的中心按钮伸向距离12.5 cm的八个空间目标,多数细胞记录每方向八次重复。主要样本的282个细胞中,41个未检出显著方向差异,224个符合所用回归模型,17个有方向差异但不符合该模型。群体分析使用224个入选细胞,放电统计窗口从目标出现至运动结束;这是顺序记录汇集的群体分析,不是224个单元同步记录的在线解码。
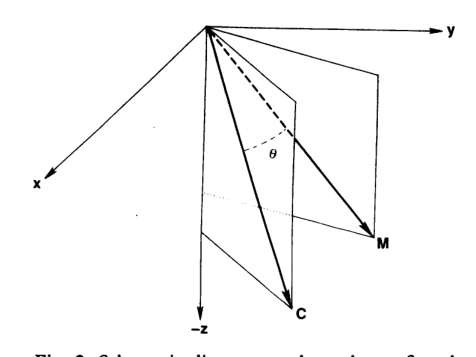
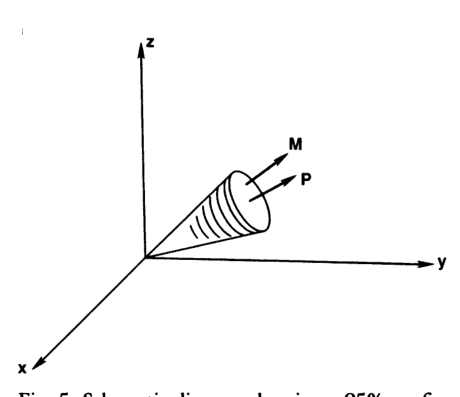
每个细胞的模型为d(M)=b+bₓmₓ+bᵧmᵧ+b_zm_z,其系数确定偏好方向C;贡献为[d(M)−b]C。负权重使贡献向量反向。作者还用重抽样评估群体向量的稳定性和方向置信锥。
主要结果
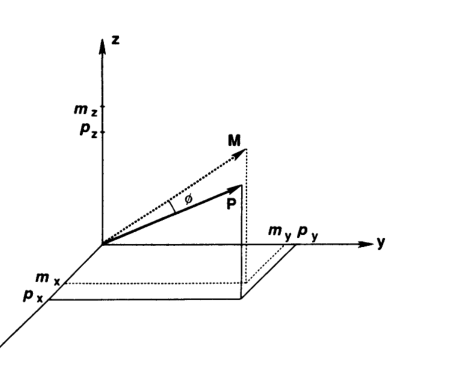
八个方向的群体向量均接近目标方向,平均夹角15.8°,范围7.2°–21.9°。图3–4示例夹角为8.3°。作者报告运动方向通常落在围绕群体向量构建的95%置信锥内。置信锥描述所用估计的变异,不能当作独立测试集的解码准确率。
第二只动物17个细胞中有12个符合模型,其平均角误差为30.4°;第一只动物随机取12个细胞时约为29.7°。这支持样本量可能影响误差的解释,但不能把两只动物的所有差异都归因于细胞数。
正文还提到改变起点和新方向的初步研究,以及反应期、延迟期群体向量的相关工作。这些报告提示推广方向,应与本文主要八方向数据的正式结果分开。
逐图解读
 原文 Fig. 1 · PDF 第 2 页
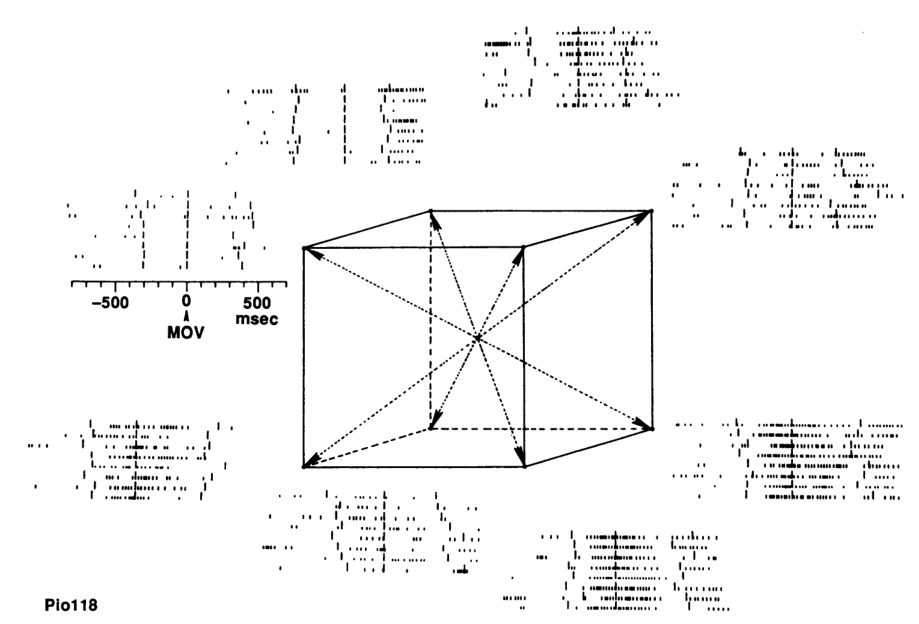
图1 · 单细胞在八方向的放电。 栅格对齐运动开始,每方向八次试次;长线依次标出目标出现、运动开始与结束。该细胞在多个方向都有活动,但平均放电明显不同,三维方向模型的示例R²为0.929。
 原文 Fig. 2 · PDF 第 3 页
图2 · 偏好方向与运动方向的几何关系。 C和M为单位向量,两者夹角的余弦决定拟合响应相对常数项的变化。它解释模型的几何含义,不是额外的实验条件。
 原文 Fig. 3 · PDF 第 3 页
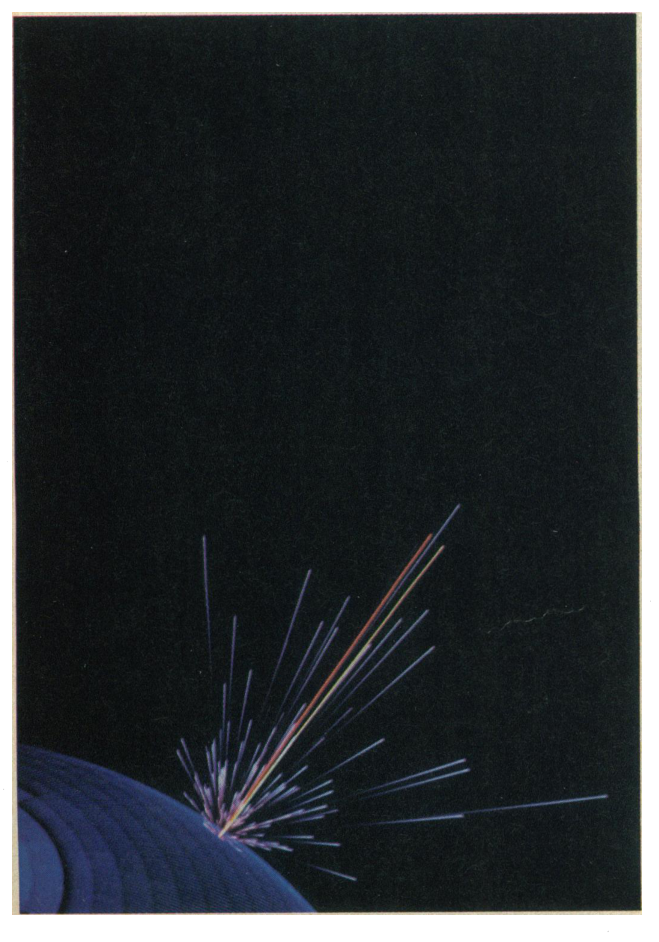
图3 · 224个细胞的向量贡献与群体向量。 原图用浅紫色表示单细胞贡献,黄色表示运动方向,橙色表示群体向量;扫描件中颜色辨识有限,应结合图4阅读。贡献向量由偏好方向和放电变化共同决定,包括负权重带来的反向贡献。
 原文 Fig. 4 · PDF 第 3 页
图4 · 群体向量与目标方向。 图中把P与M归一化后比较,示例夹角为8.3°。该图显示方向估计接近目标方向,不是分类正确率,也不表示所有方向没有误差。
 原文 Fig. 5 · PDF 第 4 页
图5 · 群体向量的95%置信锥。 重抽样考虑试次间放电变异,M位于示例置信锥内。这支持在该样本及估计方法下方向结果具有一定稳定性;置信锥不检验生物回路是否采用向量求和,也不能替代独立数据验证。
讨论与解读边界
群体向量说明,宽调谐并不妨碍群体包含较明确的方向信息。单个细胞本身也包含方向相关信息,只是单一放电率一般不足以唯一确定方向;不能把群体读出的成功写成单细胞毫无信息。
主要分析在有限方向集合上建立调谐并评估群体读出,不能直接等同于未见目标、起点或动力学条件下的泛化性能。统计窗口同时包含反应与运动阶段,也不能单凭该分析就断言已经独立解码纯准备期。更关键的是,可由某种算法读出方向,并不证明脑内采用完全相同的下游加权机制。
思考问题
- 若在部分方向拟合调谐,只在未用于拟合的新方向、起点和负载上评估,群体向量的误差会如何变化?
- 怎样区分群体向量作为可用的数学读出,与下游神经回路实际采用这一读出规则?需要什么干预或连接证据?