猕猴上肢运动控制:从群体表征到反馈、学习与情境泛化
这 47 篇文献最值得放在一起讨论的问题,是运动皮层如何在身体、任务和反馈共同变化时维持有效控制。它们给出的不是一条从“单细胞编码”直达“统一动力学机制”的线性故事,而是一组相互约束的证据:单元活动可以同时反映多种变量;群体结构有助于解释协调与学习;这种结构的稳定性又取决于所测行为、训练阶段和分析定义。
本综述以 Zotero VR 集合中本次核对的 47 份 PDF 为范围,引用编号连接到逐篇笔记和原图页。它不是系统检索或元分析,未重新计算原始实验数据。组内包含原始实验、方法、数据论文、综述及计算模型;涉及其他物种和导航的结果,将作为比较证据使用。
本文目录
1. 表征什么,取决于如何让变量分开
自然伸手中,位置、速度、方向和肌肉活动高度相关。Wang 等通过改变三维起终点减少位置与速度的绑定,观察到 M1 对两者的调制及其相对权重随运动阶段变化。加性模型可以描述这些条件中的部分关系,但偏好方向与位置梯度不完全重合,并不意味着存在统计独立的两套控制系统。Inoue 等进一步说明,速度的加性放电项和偏好方向采样偏差可共同影响特定解码器:采样与模型假设本身就是实验结论的一部分。A01 A06
规划期也不能只用一个固定的“方向码”概括。绕障任务中,PMd 群体活动反映已知目标、可用路径及动物采用的计划策略;不同动物可以先形成直达计划再修正,也可以等待障碍信息。自然伸手中的前运动皮层位置场则提示,在更广的行为采样下,空间相关结构仍值得研究。不过,位置场的稳定性和较少单元的离线解码能力,不能直接推出脑内使用某一种空间坐标,或在新环境中仍保持相同性能。A02 D06
更合理的阅读方式是同时问:哪些变量被独立操纵,哪些仅在统计模型中分开?解码是否在留出的试次、时间或行为条件上检验?从放电中读出一个变量,首先证明数据携带预测信息,距离确认该变量的因果控制作用仍有一步。
2. 反馈是神经活动的组成部分,也受到任务目标调节
Suway 和 Schwartz 将视觉运动旋转与光标可见性结合,发现部分运动末期的 M1 调制依赖可见反馈。这限制了把全部 M1 活动都解释为下行运动命令的做法;它也不意味着这些活动对纠正运动无用。运动学与 EMG 控制有助于缩小解释范围,但未使所有感觉与输出因素完全独立。A04
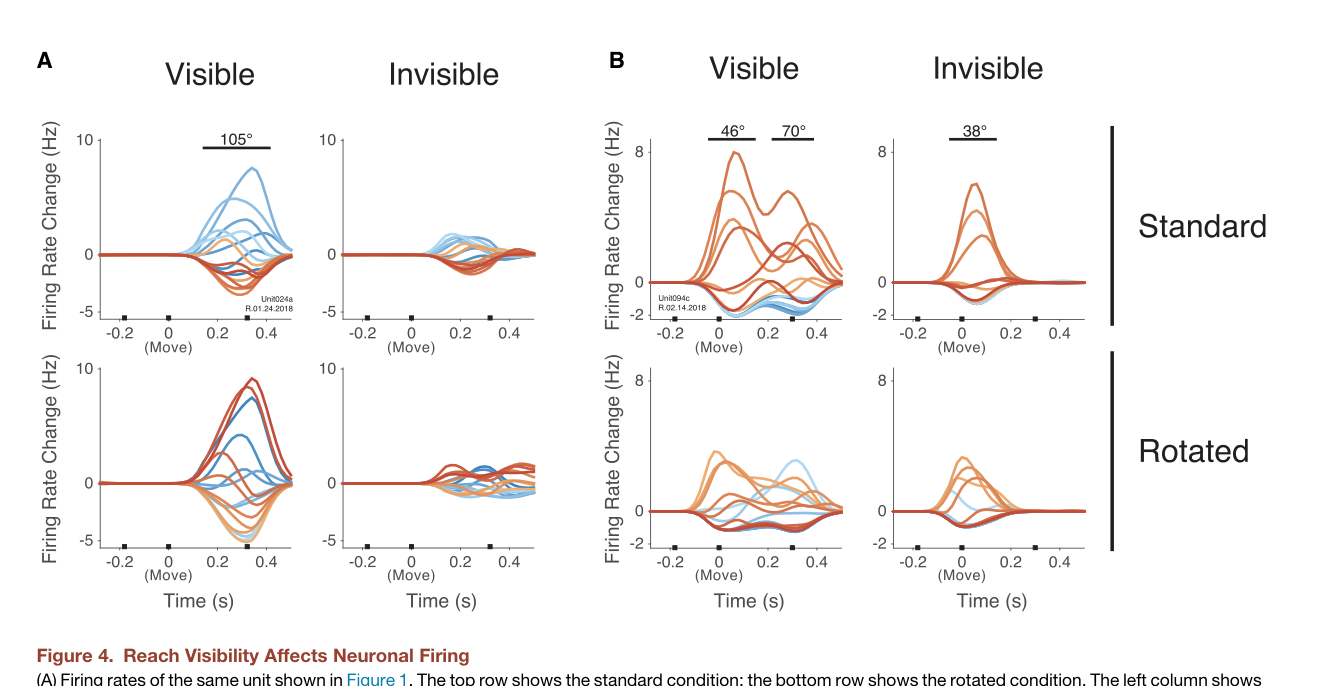
光标可见性改变了部分末期神经响应。图中比较必须同时考虑运动时段、旋转条件与动物,不能推广为所有 M1 活动都由视觉驱动。 来源:A04,原文 Fig. 4,PDF 第 6 页。
Amann 等比较目标不确定性与效应器反馈不确定性,显示两者对方向表征的影响阶段不同,而且反馈不确定性的影响与控制方式有关。这里的 BCI 缺少与受控光标运动对应的本体反馈,并非动物失去全部本体感觉;手控和脑控之间也存在时程等差异。Stavisky 等发现目标出现前的群体状态与近期视觉增益及下一次速度相关,为研究内部状态提供了入口,但相关轴和离线补偿不能直接确认为内模型的唯一神经实现。A05 A03
目标对反馈的约束,在 Cross 等的实验中更直接:宽目标允许某一方向上更大的终点误差,视觉和机械扰动后的纠正通常随之减小,肌电也表现出目标依赖的时间过程。这与最优反馈控制的任务相关纠错观点相容,却并未唯一确定该理论,或定位产生响应的神经回路。Scott 的综述提供了状态估计、代价函数和反馈控制的概念框架;它应帮助提出可区分的预测,而不是替代原始实验的证据。F03 E02
虚拟身体还可改变感觉关联。同步视觉与触觉配对后,Shokur 等记录到仅有虚拟触碰时的 S1/M1 响应改变。该结果支持跨感觉关联可塑性,但动物的主观身体拥有感没有被直接测量,不能把响应出现等同于已证实“橡胶手错觉”。A07
3. 低维结构有解释力,但不是跨任务不变的控制定律
Churchland 等在伸手数据中提取出群体旋转结构,使准备状态与后续活动演化可以放在统一的状态空间中描述。Gallego 等进一步发现,在若干运动行为之间、以及行为较稳定的跨日记录中,经过适当对齐的低维活动比原始单元活动更稳定。这些结果支持群体层面的分析价值,但旋转本身不能区分自主动力学、感觉输入与反馈;CCA 对齐后的相似性也不等于记录单元未变,或 BCI 已实现长期免校准。D01 D02 D03 E01
伸手与抓握的比较给出了重要边界。Suresh 等发现,适用于所测伸手数据的低维自主动力学描述,在其抓握数据上表现较弱。这个差异不能表述为抓握“没有动力学”:任务、样本和输入结构均可能影响模型表现。Abbaspourazad 等则从 spike 与 LFP 中提取多尺度潜在状态,用于预测较自然的伸手抓握;模型模态的时间常数与预测能力相关,但对模型参数的扰动不是对动物回路的同等因果操纵。D04 D05
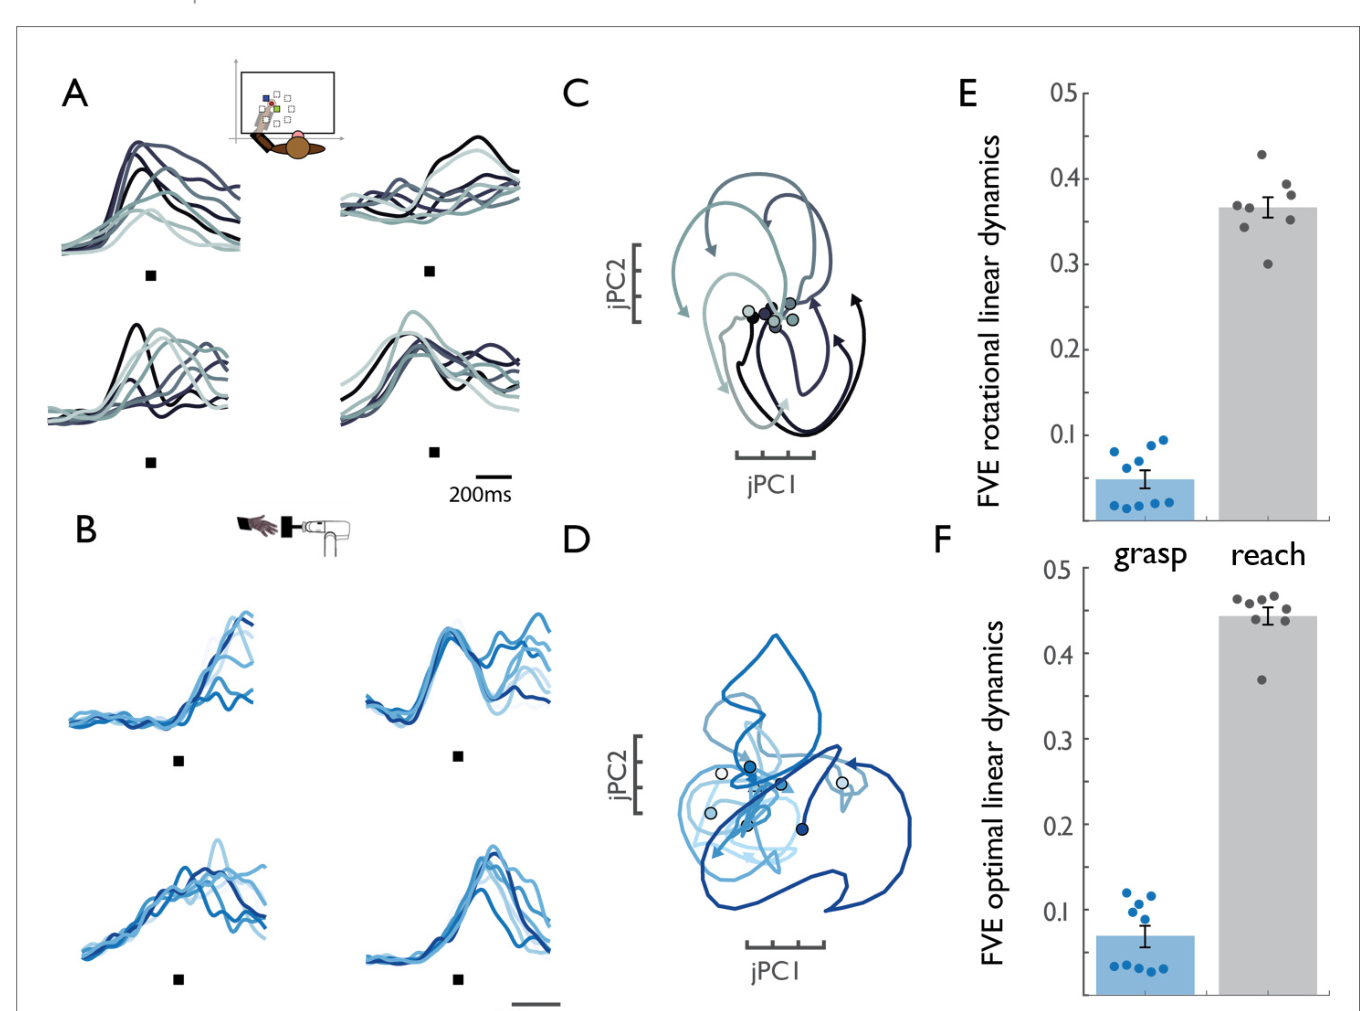
所测伸手与抓握数据在旋转和动力学拟合上存在差异。这是比较模型适用边界的证据,不是把一种任务判定为“有动力学”、另一种判定为“无动力学”。 来源:D04,原文 Fig. 1,PDF 第 3 页。
更直接的神经干预来自 Zheng 等:运动目标情境中的群体状态对 ICMS 扰动呈现不同恢复特征。网络模型支持持续输入可能提高鲁棒性,但具体反馈来源及其生物学必要性仍需独立操纵。总体而言,群体动力学与反馈控制可以相互约束;现有证据并不要求将二者写成互相排斥的解释。D10
4. 学习既可利用既有活动,也可在更长时间尺度上改变活动范围
早期单元研究已显示,视觉运动或力场适应后,准备期活动、偏好方向及其他调谐参数会发生不同形式的变化。Paz 等的局部泛化与 Li 等的“记忆细胞”分类,是特定任务和统计规则下的操作性结果;不能据此认定已找到固定记忆细胞类型,也不能由第二天未见某种后效推断全部记忆消失。C01 C02
Perich 等将 PMd 活动分为相对于 M1 线性读出的 potent 与 null 成分:力场适应期间,相关模型的泛化变化支持准备活动调整经相对稳定读出影响执行的一种解释。这里的 null 只针对所估计的 PMd→M1 映射,不能扩展为对全部下游输出都没有作用;稳定预测也不能等同于突触连接没有变化。该文的视觉运动旋转对照与 Feulner 等的网络模型进一步提出可区分的预测,但模型中少量、相关的权重更新不等于已测得真实脑内突触如何学习。C03 C10
BCI 的优势在于可以明确规定神经活动到光标的映射。Sadtler 等发现,单日内在既有低维活动范围中重新组合的映射较容易学习;Golub 等在相应条件下观察到学习符合既有活动模式再关联的预测。Oby 等使用多日渐进训练,记录到新活动模式及其对输出改善的贡献。因此,短时间学习困难与长期可塑性并不矛盾:结论取决于扰动、训练安排和时间尺度。新模式的定义还涉及基线采样及经验边界,不能把统计阈值当成不可逾越的生物极限。C04 C05 C06
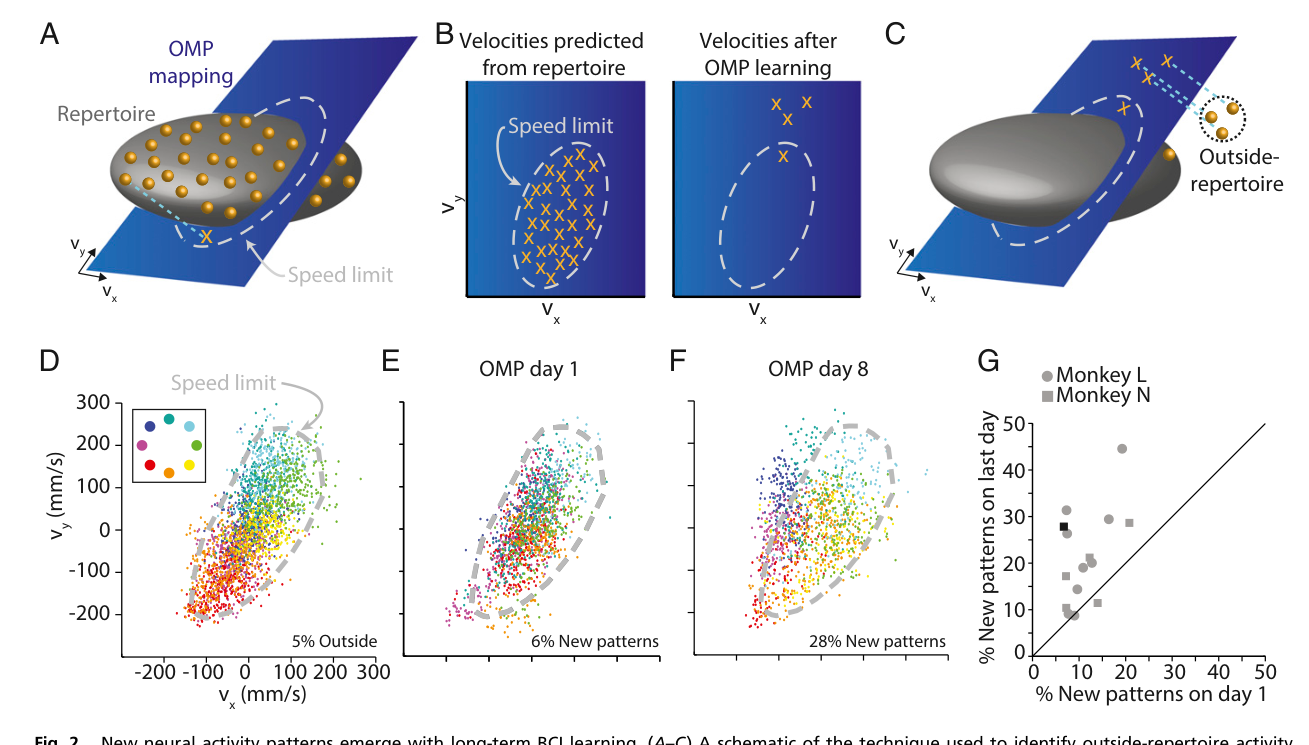
多日训练后,部分活动超出由基线样本估计的既有范围,并通过已知 BCI 映射影响输出。新模式判定依赖本文的操作性边界,不能简单理解为出现了全新的神经回路。 来源:C06,原文 Fig. 2,PDF 第 3 页。
学习如何迁移与被重新调用,是另一层问题。Vyas 等比较脑控与实际运动间的适应迁移,发现准备态变化与迁移有关,但脑控并非没有感觉输入的纯心理模拟。Sun 等发现学习后准备态的平移与记忆保持、干扰及后续重学相关;与力预测子空间正交,不等于对全部运动输出无效,也不足以证明该平移是记忆存储的必要载体。C07 C08
5. BCI 表现来自动物、解码器和反馈的共同作用
Carmena 等的伸手抓握 BMI、O’Doherty 等利用 S1 微刺激的主动纹理探索,以及 Ifft 等的双臂虚拟控制,分别扩展了输出参数、感觉输入和效应器数量。这些工作证明了各自任务中的闭环可行性;它们并没有恢复所有自然抓握自由度、全部触觉,或复杂的双手协同操作。必须把受控变量、刺激信息和真实机械自由度分开描述。B06 B01 B02
Orsborn 等表明,有限的解码器初始化和必要时的短时适应,可以与长期神经学习共同支持控制。Rajeswaran 等的再分析与网络模型进一步提示,辅助策略可能改变任务信息在单元及群体维度中的分布:高方差模式未必最有利于读出。动物数据中的固定与自适应条件存在跨研究差异;模型内的因果比较增强了解释,却没有消除动物比较中的所有混淆。B07 B05
较新的 PMv BCI 与立体 VR 导航研究,为不同信号源和任务结构提供了验证。PMv 能支持控制不意味着它在所有动物、视觉形式和辅助条件下都优于 M1;同一阶段保持固定映射,也不意味着整个研究无需重新训练。评价此类系统,应该同时报告观察初始化、在线再训练、共享辅助和固定映射阶段的表现。B03 B04
对实验设计而言,最有价值的比较不是只看最终成功率,而是在相同训练量、目标容差和反馈条件下,分别估计动物学习与算法更新的贡献,并用新方向、新目标或跨日测试检查泛化。
6. 伸手抓握的整合需要把物体、位置、握法和力分开
Rouse 和 Schieber 发现 M1 中位置与物体效应广泛共存,时序有所差异;物体效应同时伴随手形和操作差异,不能直接视为抽象物体身份。Intveld 等在 AIP、F5 和 M1 中分析握法与力,发现与任务阶段及脑区有关的调制,但方差分解比例不等于信息量,更不等于各区域具有相同功能。D07 D08
Fathian 等的额顶混合选择性分析,以及 Chen 等对 PMd 伸手与握法信息交互的研究,支持群体同时表示多个动作要素,并可随提示顺序和准备阶段重组。Chatzimichail 等比较执行与观察时的动态群体结构,为共同读出提供线索,但部分分析基于伪群体,运动学也并非全部同步记录。通过 CCA 找到共同结构,首先是统计对应;不能据此认定同一生物读出已经跨情境使用这些维度。D12 D13 D11
因此,VR 抓握任务若只改变物体外观,却没有匹配指间距离、腕姿态、接触顺序和施力,很难区分视觉物体与动作要求的贡献。把这些因素做成可独立变化的条件,比直接给神经元贴上“物体”“握法”或“位置”标签更有解释力。
7. 技术精度与生态有效性需要分别验证
de Haan 等的眼手共参照平台、DeepLabCut 和 OpenMonkeyStudio 分别解决坐标对齐、可定义身体点的视觉追踪以及自由运动猕猴的多视角三维重建。它们提供可复用的方法,但原始 DeepLabCut 演示并非猕猴验证;OpenMonkeyStudio 的全身点集也不等同于精细手指追踪。减少相机数量的比较使用完整相机系统的重建作为伪真值,不能当成独立的三维绝对精度测量。A08 E04 E05
MonkeyLogic 的采样与刷新测试有助于理解软件架构,但采样率、输入轮询间隔、画面刷新和刺激到神经记录的端到端时延是不同指标。Diomedi 等的公开顶叶数据适合验证事件对齐、读取与分析流程;单元质量仍需结合波形、ISI 和记录设计检查,六个文件也不能一概视为所有单元同时记录。E06 E07
自然行为会暴露标准任务难以看到的约束。Jana 等发现长期练习后轨迹并未在某个空间中一致变直,模型估计的机械动能及其对曲率的敏感性有助于解释变化;这不是直接测量代谢能耗,也不是能量唯一决定动作的证据。Mitchell 等以狨猴捕食讨论快速预测性追踪,提醒我们关注动态目标和身体自由度,但跨物种、跨范式的潜伏期不能直接相减来解释猕猴 VR。F04 F05
真实与虚拟导航的直接比较也值得谨慎借鉴。Yan 等发现 HPC/OFC 表征在两种环境间存在差异,但自运动、奖励和起点重置等因素并未全部匹配,尚不能把差异单独归因于“缺少身体参与”。Noel 等在虚拟导航中发现前额叶统计耦合变化与跨情境读出相关;功能连接模型和计算打乱不是对突触的生物操纵。这两项导航研究最可靠的启示是:行为目标相近或成绩接近,并不能自动保证相同神经表征。F01 F02
8. 对猕猴上肢 VR 研究的三个可检验问题
- 反馈改变了哪一部分活动? 在匹配手轨迹、速度与 EMG 的基础上,分别操纵视觉延迟、可见性和不确定性。比较准备态、执行态与纠错响应,检验共同结构是否随反馈变化;不要只报告整体解码准确率。
- 学到的是映射、策略,还是可迁移技能? 分开安排固定解码器、自适应解码器与对照训练,并在新目标、不同反馈及跨日条件下测试。记录辅助强度和更新时间,区分即时算法收益、行为适应、保持及迁移。
- 哪些 VR 结果可以推广到真实抓握? 先建立运动学与接触过程尽可能匹配的成对任务,再逐项增加真实触觉、物体动力学或身体自由度。用同一验证流程测量表现、群体结构和跨情境解码,判断差异来自测量、任务还是控制策略。
这些问题把群体几何、闭环行为与实验约束联系起来。最有解释力的结论应同时说明:在什么任务和时间尺度下,哪种操纵改变了哪些可测量量,以及哪些机制仍无法由现有比较区分。