D01 · Neural population dynamics during reaching
Churchland, M.M., Cunningham, J.P., Kaufman, M.T., Foster, J.D., Nuyujukian, P., Ryu, S.I., & Shenoy, K.V. (2012). Nature, 487, 51–56. doi:10.1038/nature11129
伸手期间的运动皮层群体活动具有短暂而一致的旋转成分。jPCA 揭示了单细胞复杂响应背后的群体结构,简单动力学模型能复现其中若干特征并拟合肌电。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
复杂单细胞响应是否可以由较简单的群体时间结构解释,是本文的核心问题。研究特别关注非周期性伸手中是否存在可重复的旋转成分。
研究思路
作者以降维和jPCA分析运动期群体轨迹,并与肌电及若干调谐模型对照。旋转成分对响应与肌肉信号的重建,用于评估这一描述的解释力,不能单独证明皮层是不依赖输入的自主振荡器。
方法
四只恒河猴(A、B、J、N),延迟伸手范式(instructed delay,运动前有准备期),直线伸手(A、B)或绕障弯曲伸手(J、N)。核心数据是 9 个 data set:7 个用传统单电极记录(共 469 个单神经元隔离),2 个用双 96 通道阵列(146 和 218 个隔离),外加猴子在跑步机上自由行走时的 32 通道无线记录、以及每个 data set 6–12 条 EMG(三角肌、肱二头肌等 6 组肌肉)。平均每个神经元 810 个 trial——这个 trial 数是后面能看到精细时间结构的关键。
分析上的核心发明是 jPCA:先对群体活动做 PCA 降维(保守地只取前 6 个 PC),再在这 6 维空间里拟合一个斜对称矩阵 M_skew(ẋ = M_skew·x),取其最大本征值对应的一对本征向量张成的平面(jPC1/jPC2)投影。直观说,就是在最强的主要成分里找出"旋转最猛"的那个平面。并与多个 shuffle 对照比较。单神经元放电率在分 epoch(target/go/move)对齐后做跨 trial 平均,高斯平滑去噪。
主要结果
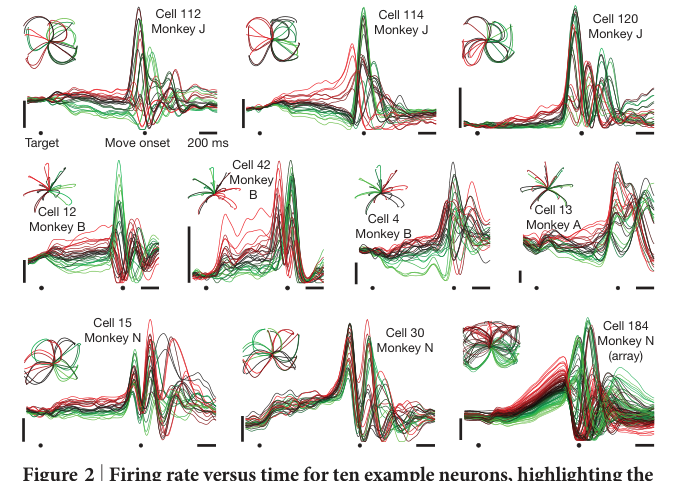
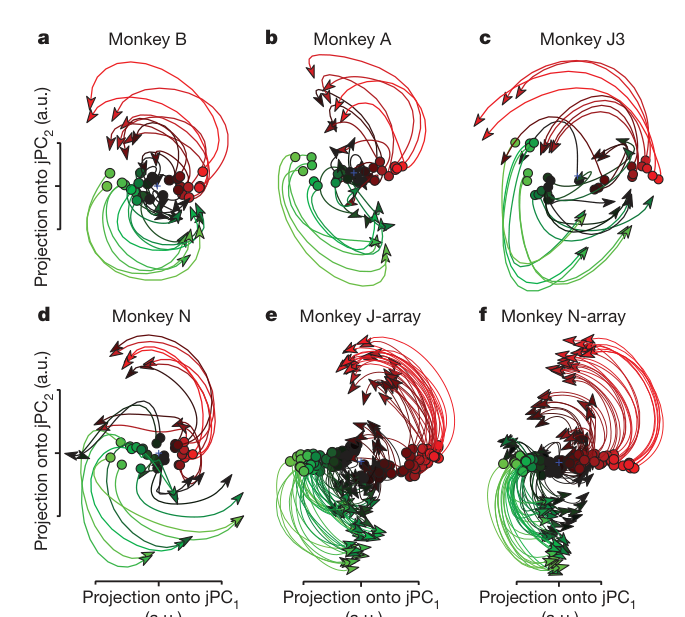
单神经元层面还是那副熟悉的乱象(图2),但群体层面出现了非常干净的旋转:在运动相关分析窗口内,神经状态在 jPC 平面上呈现一致方向的短暂旋转;图3主要展示最初200 ms,不能将完整响应的周期数直接套入这一窗口,而且旋转的相位由准备期状态直接决定——不同条件的轨迹从不同的初始点(圆圈标记)出发,转出平行的圈。这个结构在 M1 和 PMd 中独立存在,单是第一个 jPC 平面就平均解释 28% 的总方差(作为参照,PC2+PC3 也才 29%),加上其他旋转平面可达 50–70%——旋转是群体响应的主导结构,不是边角料。
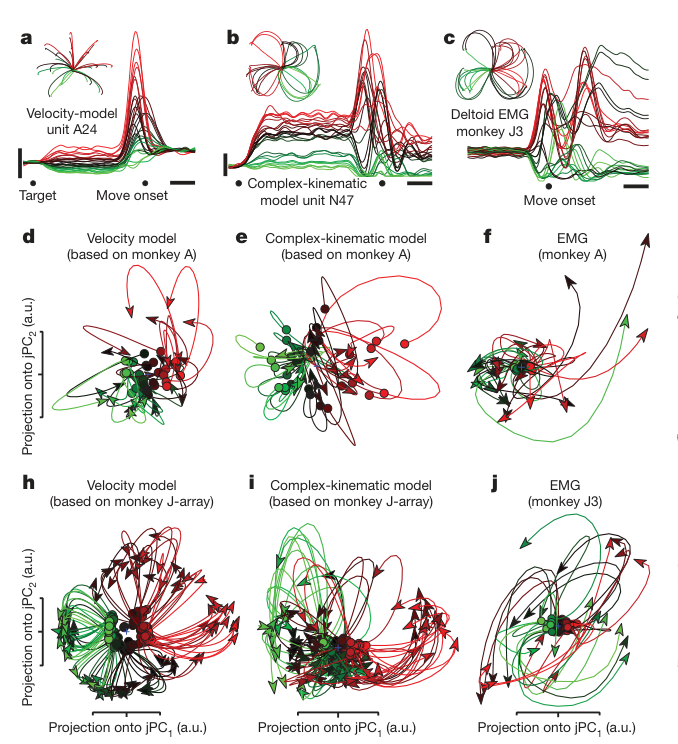
两类对照与一个生成模型共同约束解释:速度调谐模型和复杂运动学模型都能产生多相位响应,但都没有一致旋转;真实 EMG 群体同样没有。而"generator model"(两个固定频率的旋转,2.8 Hz + 0.3 Hz,相位幅度由初始状态决定)不仅能以 0.97–0.99 的相关拟合三角肌 EMG,其模拟神经元也复现了真实神经元那些"怪癖"(preferred direction 翻转、准备期与运动期调谐几乎不相关)。值得关注的预测——快速和慢速伸手的旋转角速度相同、只有幅度不同——也被数据证实(快慢条件分开拟合时 M_skew 最大本征值甚至略小,8.8 vs 9.8 rad/s)。这支持以群体动力学描述运动相关活动,但旋转结构本身不能区分自主动力学、外部输入或反馈的贡献。
逐图解读
来源:原文 Fig. 1,PDF 第 2 页。
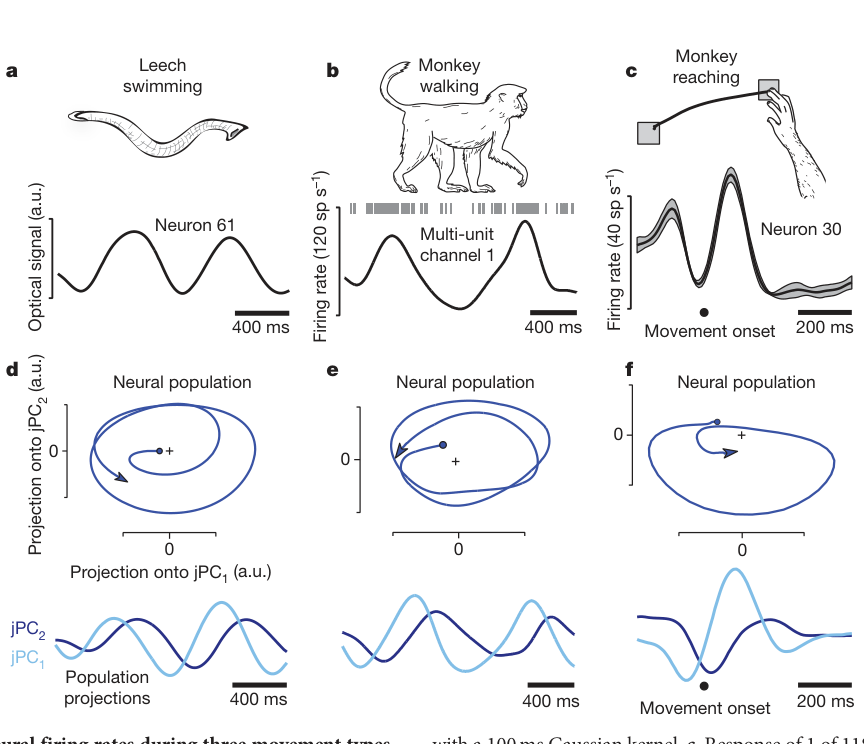
图 1 · 三种运动类型中的振荡与群体旋转。 这是全文的"定调图",左列单神经元/场电位,右列对应的 jPCA 群体投影。(a, d) 水蛭游泳(164 个电压敏感染色记录的神经元):~1.5 Hz 的放电振荡,群体状态转出干净的圈——节律系统里这一切不出所料。(b, e) 猴子在跑步机上行走(PMd 32 通道无线记录):~1 Hz 振荡匹配手臂运动节律,同样旋转。(c, f) 是关键结果:伸手运动(非节律!)中单个 M1 神经元在运动开始后出现短暂的放电振荡,群体投影同样转圈——虽然只有 1–1.5 圈。注意 (f) 里时间轴拉到 400 ms,旋转集中在前 200 ms。这张图的叙事是"从预期到意外":前两行展示节律运动中的分析结果,第三行将其扩展到非节律的伸手运动。
来源:原文 Fig. 2,PDF 第 2 页。
图 2 · 十个示例神经元的多相位响应。 图中展示十个示例神经元;中排左侧并列展示 Cell 12 和 Cell 42。示例来自不同动物和记录方式;曲线展示跨越目标出现、go cue 和运动起始三个阶段的平均放电率。可以看到响应形式五花八门——有的先升后降,有的双峰,有的准备期活跃运动期反而沉默。右上角小图是各自的伸手轨迹。颜色编码很讲究:按准备期响应从红到绿排列,方便追踪"准备期调谐好的条件在运动期发生了什么",可见准备期与运动期的条件排序并不简单保持不变。这些复杂的单元响应为进一步考察群体共同结构提供了动机。
来源:原文 Fig. 3,PDF 第 3 页。
图 3 · 核心结果:六组数据的 jPC 平面投影。 六个面板对应六个 data set(B、A、J3、N、J-array、N-array),每条轨迹是一个条件(27–108 个),从圆圈标记的准备期状态出发,展示运动开始后 200 ms 的演化。四件事可以看出:(1) 旋转无处不在;(2) 所有条件转向相同——包括方向完全相反的伸手(J、N 的直线+顺时针弯+逆时针弯混合条件);(3) 起点分布(相位)由准备状态决定,知道初始状态就能大致预测后续轨迹;(4) 旋转与运动轨迹曲率无关。第 (2) 点最关键:如果皮层只是在"表征"运动学,反向运动的群体轨迹没有理由同向旋转——同向旋转支持共享的动力学结构,但不能据此排除外部输入或全部编码模型。
来源:原文 Fig. 4,PDF 第 4 页。
图 4 · 对照:模拟群体与肌肉群体都没有旋转。 三列分别是速度调谐模型(上排 a 示例单元,d、h 投影)、复杂运动学模型(b、e、i)、真实 EMG 群体(c 三角肌示例,f、j 投影)。每个模拟都基于真实记录的运动学/EMG 生成,神经元数、trial 数、噪声水平全部对齐,所以"没有旋转"不是因为数据质量差。注意多相位响应三者都有(这正是单神经元响应复杂性的来源),但相位相差恒定 90° 的"成对模式"只有真实神经群体才有。这一图堵住了"多相位响应自然导致旋转"的漏洞。
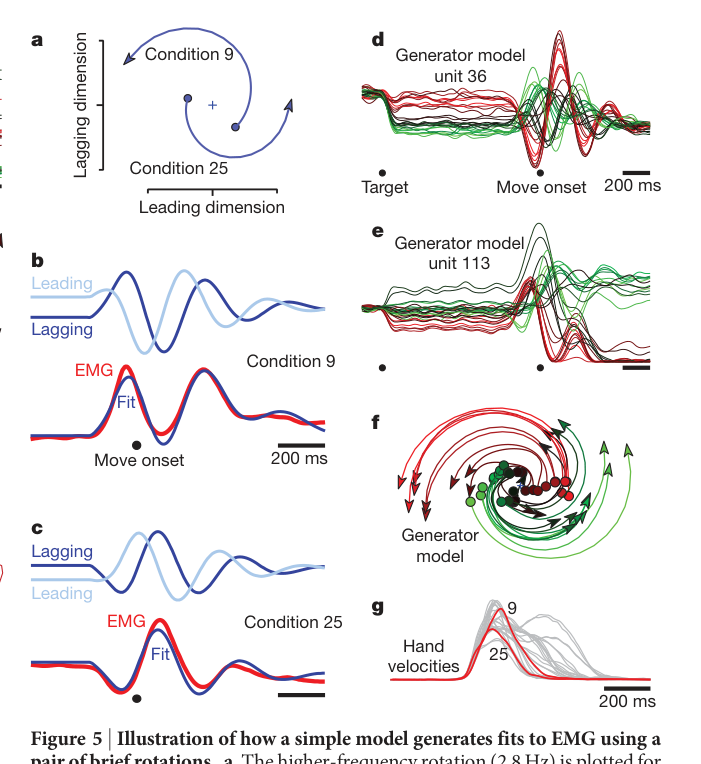
来源:原文 Fig. 5,PDF 第 4 页。
图 5 · Generator model:两个旋转就能生成 EMG 和"乱七八糟"的单神经元响应。 (a) J3 数据集拟合三角肌 EMG 的高频旋转(2.8 Hz),条件 9 和 25 从不同初始状态出发、相位差约 180°;(b, c) leading/lagging 两个维度的时间过程(蓝线),lagging 维度直接叠加出 EMG 拟合(低频 0.3 Hz 旋转补齐慢成分)。(d, e) 从模型状态空间随机加权采样出的"模拟神经元"——乍看和图 2 的真实神经元一样凌乱,连 preferred direction 翻转都有。(f) 对模拟群体做 jPCA,干净地还原出 (a) 的旋转——验证 jPCA 在该模拟中的结构恢复能力。(g) 27 个条件的手速度:快慢、长短差异巨大,但都用同一对固定频率的旋转拟合。这张图是全文逻辑的收口:旋转不但是真实结构,能够生成本文所示的若干复杂响应特征。
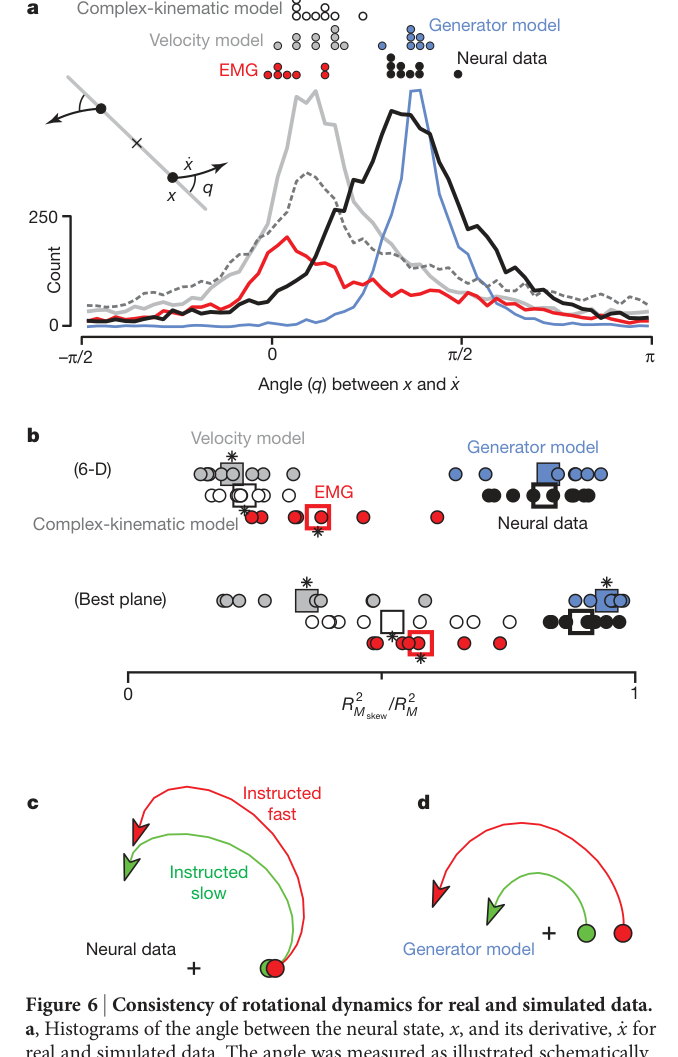
来源:原文 Fig. 6,PDF 第 5 页。
图 6 · 定量汇总:旋转强度与速度实验。 (a) 群体状态 x 与其导数 ẋ 的夹角直方图(schematic 见插图):纯旋转对应 π/2。神经数据(蓝)和 generator model 在 π/2 处尖锐成峰;速度模型、复杂运动学模型、EMG 都在 0 附近——即纯粹的增长/衰减。(b) M_skew 相对于无约束矩阵 M 的拟合质量(6 维和平面各一行):只有神经数据与 generator model 的斜对称拟合几乎不吃亏(RM²/RT² 接近 1),星号标出与神经数据显著差异的对照。(c, d) 快/慢伸手指令下的平均轨迹(真实数据 c,模型 d):两组旋转角速度几乎相同,幅度不同。这不符合简单按运动速度缩放神经时间过程的预测,却正是动力系统的签名:同一个系统,不同的初始能量。
讨论与解读边界
论文的主要证据是条件平均群体活动的结构,以及它与所检验运动学模型、肌电和生成模型的比较。jPCA 寻找斜对称动力学解释较好的投影;在多个数据集和对照中出现一致结构,使旋转值得解释,但投影本身不是神经回路机制的直接测量。
旋转不能单独证明皮层是自主振荡器,也不能排除输入、反馈或更丰富的编码模型。生成模型说明一种实现具有解释能力,不是唯一机制或必要性检验。200 ms的展示窗与整个响应约1–1.5周期应区分,不能写成200 ms内完成1–1.5圈同时频率约2.5 Hz。
思考问题
- 在控制感觉反馈时延后,旋转的速度、相位和强度是否改变?
- 用单试次而非条件平均活动估计动力学,旋转结构能解释多少行为变异?