F01 · Divergent neural representations of space and task between physical and virtual navigation in macaques
Yan, W., Huang, Y., Cao, X., & Mao, D. (2026). Nature Communications, 17, 5365. doi:10.1038/s41467-026-72141-0
两只猕猴在视觉相近的虚拟和真实导航环境中均能学习隐藏目标位置,但HPC和OFC的空间选择性与任务表征存在差异。研究直接提醒我们:行为目标相近,并不能保证两种环境调用相同的神经表征。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
虚拟现实(VR)技术能够精确控制视空间线索、目标位置及试次交互流程,因而在空间认知与导航研究中被广泛应用。但在头固定或坐姿限制下依赖操纵杆操作的虚拟导航,缺乏自由移动环境中的自然光流场、前庭耳石信号、躯干本体感觉以及主动躯体转动。如果动物在虚拟与真实两种环境中均能有效学会定位隐藏目标,这仅表明它们在行为输出层面达成了相似的目标要求,并不自动证明其中枢神经系统调用了相同的空间坐标系或任务状态表征。虚拟现实系统的生态效度必须通过神经表征的平行对照来直接检验,而不能仅凭视觉场景的几何相似性或外在行为成功率来推定。
对比虚拟与物理环境的神经编码涉及多层次的度量维度。空间信息率可量化整体空间选择性的强弱,多变量泊松编码模型(如 LNP)有助于从放电中解离绝对位置、头部朝向、空间边界、视线焦点(spatial view)及自身中心(egocentric)目标方向等不同变量的独立贡献;跨环境追踪同一神经元(common units)则可排除单纯由于电极记录微位移引入的样本异质性。此外,任务进程(trial progression)编码是否能在不同目标 block 间平稳泛化,以及不同任务阶段的群体状态几何距离是否重构,能够进一步揭示环境切换是否重塑了全局任务表征。如果跨环境记录的同一批细胞在两种场景下发生选择性的大范围重排,简单的“虚拟信号整体衰减”便不足以概括两者的本质分歧,而必须深入考察环境坐标系与自身中心坐标系的权重转移以及特定脑区的功能特异性。
Yan 等让恒河猴在视觉线索匹配的虚拟投影环境与物理真实环境中执行隐藏目标搜索任务,同步记录海马(HPC)与眶额皮层(OFC)的神经电活动,系统比较了两者的空间编码特性、同一神经元的跨环境调谐变异以及全局任务表征几何。研究旨在评估在行为学习能力相近的表象下,空间选择性与任务推进表征是否保持跨环境一致,并明确神经表征分歧的具体体现。实验结果表明,真实环境诱发了更丰富的环境中心(allocentric)空间编码与更稳健的跨目标任务泛化,而虚拟环境则显著偏向自身中心表征。需要指出的是,两种测试环境在躯体运动形式、进食取奖流程、视觉沉浸呈现及空间瞬移机制上均存在伴随差异,因而不能将表征分歧单一归因于具身参与,亦不能将导航发现简单推论为对所有桌面或伸手虚拟现实范式的否定。
研究思路
两只恒河猴在视觉特征相近的物理真实环境与全景虚拟环境中分别学习定位隐藏目标。研究结合行为空间覆盖度、LNP 多变量编码模型、同电极跨环境神经元追踪及多维尺度分析(MDS),系统检验空间与任务表征的差异;实验目标的相似性并不代表感觉输入与运动学条件的完全对等。
方法
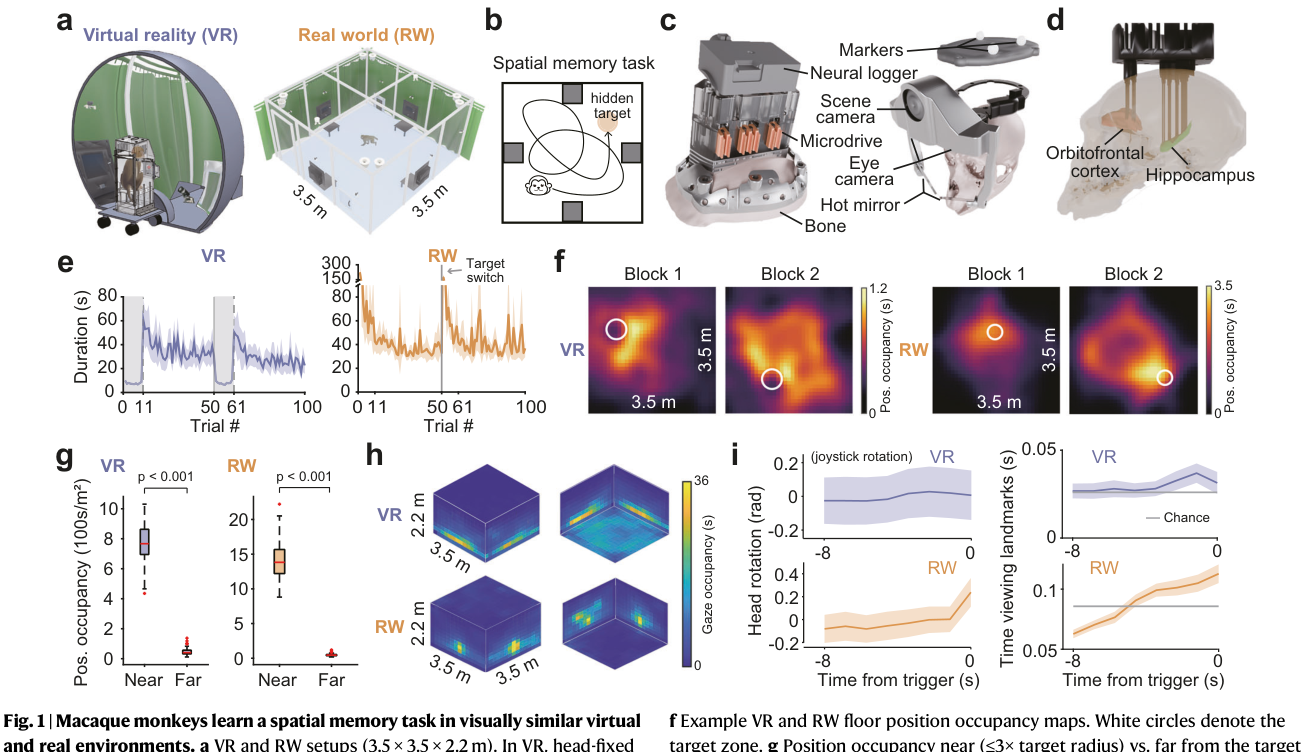
实验使用两只 7 岁雄性恒河猴(Monkey D 体重 6.3 kg,Monkey P 体重 9.2 kg),累计完成 49 个虚拟现实(VR)会话与 69 个真实世界(RW)会话。VR 设置:头部固定坐姿,使用操纵杆控制虚拟移动速度与角速度,图像投射于视场角约 163° 的全景碳纤维半球穹顶幕(内径 1.0 m,高 1.7 m),由 4K 激光投影仪驱动并采用 Unity 2020.3 进行鱼眼畸变校正渲染;四壁绘制特定水果纹理作为外周空间地标,试次结束后画面瞬移至新随机起点,奖励为两滴水(约 0.4 mL),每个目标块(block)前 10 试次呈现逐渐淡出的指示光柱,其后完全隐藏目标。RW 设置:采用几何尺寸匹配的有机玻璃围栏(3.5×3.5×2.2 m),动物自由行走活动;Vicon 动作捕捉系统采用 8 台红外相机以 100 Hz 采样头上 3 个反光标记(亚毫米级精度,解算 6 自由度头位姿),佩戴背负式双目无线眼动仪(60 Hz)与第一人称广角场景相机(30 Hz);奖励为 0.66 kcal 固体食丸,到达目标区后需步行至场地四周的四块交互触控屏之一领取奖励;空间隐藏目标区半径为 200 mm(VR 设为 200–250 mm),放置于距围墙 500 mm 以上的中央活动区,新目标迁移距离距上一位置至少 600 mm。每个会话前利用 NIMH MonkeyLogic 软件进行眼动校准。
记录硬件包含针对个体 MRI 与微 CT 影像三维设计的定制头板、PEEK 固定环与碳纤维保护罩,分三次手术植入;记录电极为可独立微调的四通道微驱阵列(tetrodes)——右侧海马长轴布置 4 个阵列(共 32 根 tetrode),后内侧 OFC 布置 2 个阵列(16 根 tetrode);神经信号由 256 通道 SpikeGadgets 无线记数记录仪以 30 kHz 采样率直接记录在车载 microSD 卡上,采用射频无线同步校钟。波形离线经过 SpykingCircus 自动分选后结合人工校验:波形幅度稳定且无违背绝对不应期的分类为单神经元(共 1033 个),存在轻微污染的分类为多单元活动(共 1340 个)。编码分析采用线性—非线性泊松(LNP)模型(20 ms 分箱,5 折交叉验证,以前向逐步回归评估变量方差贡献);空间信息率依据 Skaggs 公式计算(10×10 空间网格,剔除驻留时间少于 2 s 的网格);任务状态泛化通过群体向量相关系数(PVC)与 8 条件表征相异度矩阵(RDM)结合 MDS 降维分析。
主要结果
行为测试表明动物在两种环境中均成功掌握了隐藏目标位置:两只猴掌握新目标空间位置平均需 7–9 个试次,空间驻留热图在隐藏目标区域显著富集(目标邻域相对于外周对照区的驻留时间,VR 环境 p=6.5×10⁻³²,RW 环境 p=6.0×10⁻³⁰),视线停留点(gaze)高度集中于场地外周的特征地标,证实两者均调用了视觉主导的空间定向策略。但在行为运动学细节上存在差异:在物理环境中接近目标时动物伴随更多的头部旋转扫描并增加对地标的注视频率;而在虚拟环境中由于坐姿限制,单会话内完成的任务 block 数量显著更多(3.7±0.3 vs 2.5±0.1)。
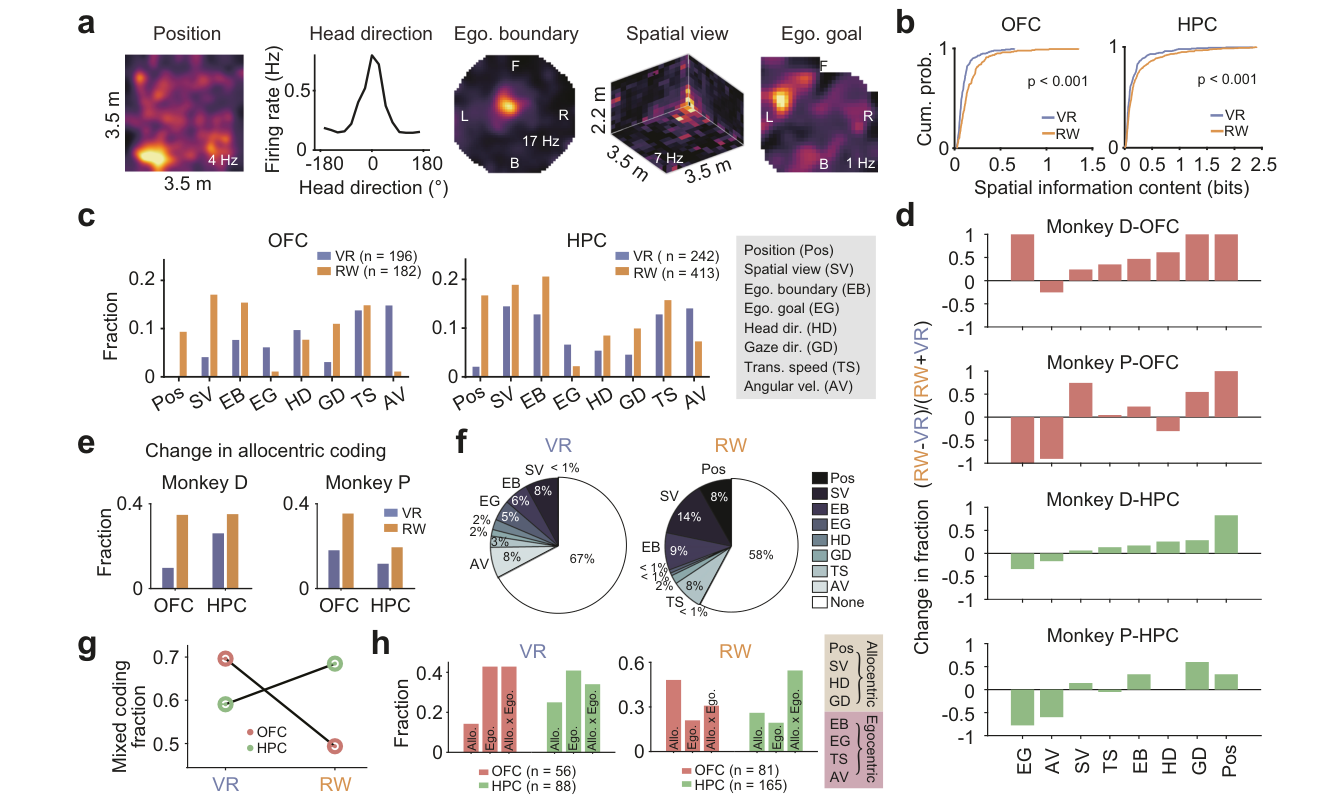
神经编码分析显示出清晰的分歧:物理真实环境中海马与 OFC 的整体空间信息率均显著高于虚拟环境(OFC p=1.8×10⁻⁷,HPC p=3.5×10⁻⁴),且该增长主要由环境中心(allocentric)变量所贡献——在两只动物中,编码绝对位置、空间视线焦点及环境边界的神经元比例均大幅增加,例如 Monkey D 在 OFC 中呈现 allocentric 调谐的神经元比例由 9.8% 上升至 34.8%。空间视线(spatial view)在两类环境中均为解释力最强的主导变量,但在物理环境中的解释神经元比例从 7.7% 提升至 13.6%。此外,多变量混合编码的比例在环境转换中表现出脑区特异性分离:从 VR 切换至 RW 时,OFC 的多变量混合编码比例由 69.6% 降至 49.4%,而 HPC 则从 59.1% 升至 68.5%;纯 allocentric、纯 egocentric 与混合编码的构成比例在 VR 中两脑区无显著差异(p=0.39),而在 RW 中呈现显著的分化(p=0.0013),表明虚拟环境系统性地削弱了环境中心空间表征。
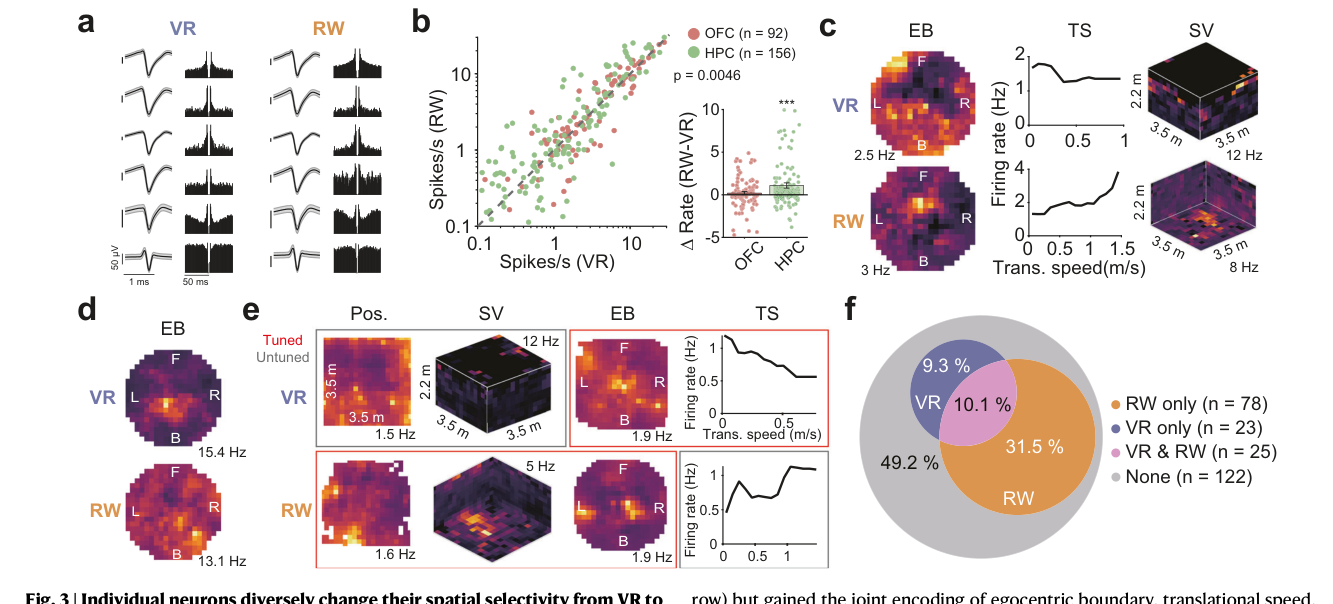
同电极跨环境神经元追踪提供了更直接的对照证据。在同一天先后跨越两种环境记录的 248 个单神经元(common units)中,仅有约 10%(25 个)在两种环境中均维持显著的空间选择性,超过 30%(78 个)仅在真实环境中具备空间选择性,仅在虚拟环境中具备选择性的不足 10%(23 个);海马神经元的平均发放率在真实环境中增加 1.09±0.31 Hz(OFC 发放率未发生显著变化)。多数单元在环境切换后表现出调谐变量的彻底重组,单凭虚拟环境中的调谐特征无法有效推断其在真实环境中的反应。相对地,在物理环境内切换任务类型(自由觅食与空间记忆对比)时,海马的整体空间信息率并未出现显著变化(p=0.62),突显了环境物理形式转换对表征结构的重塑效应。
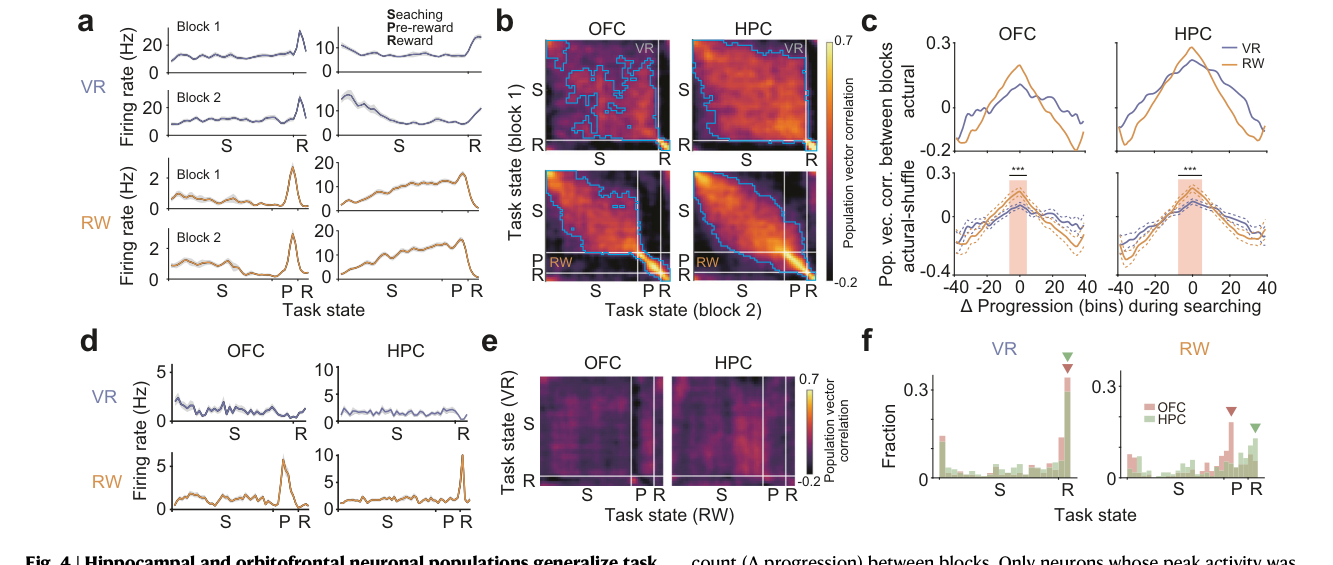
全局任务表征同样揭示了环境依赖性。试次推进(trial progression)表征在物理环境中展现出良好的跨目标 block 泛化能力,群体向量相关矩阵在对角线上形成显著的亮带,表明无论目标位于何处,时间推进状态被稳定表征;而在虚拟环境中该跨目标泛化显著减弱,跨环境相关性则几乎消失。基于表征相异度矩阵(RDM)与多维尺度分析(MDS)的研究表明,搜索阶段与奖励阶段之间的群体表征距离显著大于不同目标 block 之间的距离(两脑区均 p=0.02),亦大于 VR 与 RW 两种环境之间的距离(OFC p=0.0002,HPC p=0.0004)。将 VR 数据投影至 RW 群体活动的主成分空间中,OFC 沿前两个主成分与 RW 显著重合、仅在 PC3 上分离(p=1.4×10⁻²³),而 HPC 在 PC1 上即出现显著分离(p=0.0001),说明两个脑区对虚拟与真实环境信息的解耦模式具有解剖结构差异。
逐图解读
来源:原文 Fig. 1,PDF 第 2 页。
图 1 · 两套环境与空间学习行为。 (a) 实验系统对照:VR 环境(头固定坐姿、操纵杆、半球穹顶投影)与 RW 环境(自由行走活动室),场地尺寸一致为 3.5×3.5×2.2 m。(b) 隐藏目标空间记忆范式流程。(c, d) 定制头装植入物与记录硬件示意,标注指向 OFC(橙)与 HPC(绿)的微驱电极阵列。(e) 任务学习曲线(试次耗时随试次演变,n=49 VR,69 RW 会话),展示两种环境下均可稳定达成行为学习。(f, g) 空间驻留热图及目标周围区域的富集统计,验证动物掌握了隐藏目标位置。(h) 视线停留热图显示注视集中在标志物上。(i) 物理环境中更显著的头部摆动角与地标注视时长。
来源:原文 Fig. 2,PDF 第 3 页。
图 2 · VR 中两个脑区的空间表征整体衰减。 (a) 展现对空间位置、头朝向、边界距离、视线焦点与目标方向特异性调谐的五个代表性单元。(b) 单神经元空间信息率累积概率分布曲线(OFC:196 VR 对 182 RW 单元;HPC:242 对 413 单元),RW 曲线呈现全局右移。(c, d) 各编码变量在两类环境中的神经元占比及变化差值。(e) 环境中心编码神经元总占比统计。(f) 主导变量分布饼图,视线焦点(SV)在两环境中均为主导成分。(g, h) 混合编码在两脑区的差异化变化,显示出空间表征的选择性重组。
来源:原文 Fig. 3,PDF 第 4 页。
图 3 · 个体神经元在两种环境间的剧变。 (a) 跨环境同一神经元鉴定标准:同日连续记录、波形特征及自相关图谱的高度一致。(b) 248 个跨环境单神经元发放率散点分布,HPC 发放率在 RW 呈现全局上移(均值差 1.09±0.31 Hz,p=0.0003),OFC 发放率基本维持原位。(c–e) 三个示例神经元展示调谐属性的重组:从无调谐转为多变量混合、边界调谐在 RW 丢失,或调谐变量发生置换。(f) 韦恩图总结:仅 10% 的神经元在双环境中均保持空间特异性,反映了单个神经元调谐的场景重排。
来源:原文 Fig. 4,PDF 第 5 页。
图 4 · trial progression表征在RW中表现出更强的跨目标泛化。 (a) 四个示例神经元随试次进程(0–1 归一化)在不同目标块间的调谐变化。(b) 跨目标块群体向量相关矩阵(PVC),RW 环境对角线相关性显著更强。(c) 搜索阶段 PVC 随试次进度差(Δprogression)的衰减曲线,红色标注 RW 显著高于 VR 的区间。(d, e) 同批神经元跨 VR 与 RW 环境的 progression 调谐与 PVC 矩阵,跨环境相关信号微弱。(f) 各时段峰值发放神经元的分布直方图。
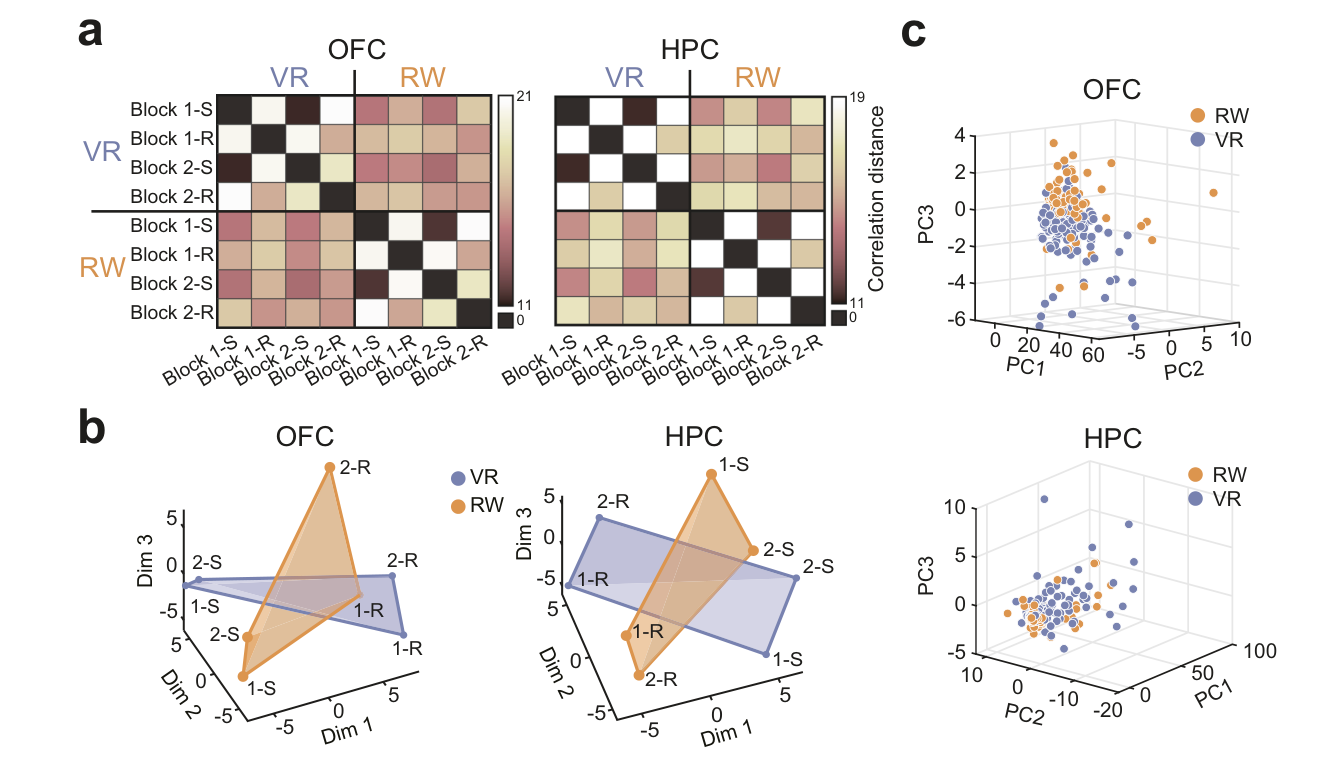
来源:原文 Fig. 5,PDF 第 6 页。
图 5 · 任务相位表征在两个环境间正交。 (a) 8×8 表征相异度矩阵(两环境×两目标块×两任务阶段),统计表明任务阶段间表征差异显著大于目标块间差异(p=0.02),且大于环境间差异(p<0.001)。(b) 三维 MDS 空间点云投射,展示任务阶段的主导分离以及 VR 与 RW 状态点云的正交排列。(c) 将 VR 活动投射至 RW 主成分空间:OFC 沿 PC1–PC2 共享流形而在 PC3 上分离,HPC 则在 PC1 上直接分流,揭示了不同皮层区对环境切换的几何敏感性差异。
讨论与解读边界
跨环境追踪的共同单元减少了不同细胞采样的解释空间,任务进程和表征几何分析又表明差异不限于单一空间变量。真实环境中更丰富的allocentric编码与更好的跨目标泛化,是本研究的重要观察。
两条件同时改变身体运动、前庭和本体输入、视觉呈现、起点重置、奖励种类及取奖过程。它们并非只操纵“是否VR”,因此不能将差异唯一归因于具身性,更不能外推为所有VR伸手结论无效。MDS是距离的低维展示;图5报告的任务相位间距离大于环境间距离,不能反写为环境区别比任务内容更大。奖励前活动可以与预期有关,尚未排除相应行为阶段的贡献。
思考问题
- 逐一匹配奖励流程、运动速度和起点重置后,哪些跨环境神经差异仍然存在?
- 若在VR中增加与视觉一致的自运动反馈,共同单元的空间选择性和任务进程泛化能否恢复?