F04 · Energy Constraints Determine the Selection of Reaching Movement Trajectories in Macaque Monkeys
Jana, S., Condro, L., Barthélemy, F.V., Ito, J., Riehle, A., Grün, S., & Brochier, T. (2025). eNeuro, 12, ENEURO.0385-24.2025. doi:10.1523/ENEURO.0385-24.2025
两只猕猴长期练习序列伸手时,轨迹并未在手或关节空间中一致变直。模型估计的动能随练习总体下降,动能对曲率变化较不敏感的区域,比单纯最直或最小动能预测更好地解释了所测轨迹变化。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
在经典运动控制理论中,长期的重复练习常被假定会使肢体运动轨迹趋于拉直,从而实现所谓“动作效率优化”。然而,“高效”在生物力学与控制论中具有多种截然不同的内涵:末端轨迹的几何平直度属于笛卡尔工作空间的几何描述,关节运动幅度是内参照系运动学指标,而机械动能(KE)与肌电能耗则属于系统动力学与代谢代价。当动物历经数月练习后,若手空间或关节空间的轨迹并未一致变直,但模型估算的机械动能却呈现系统性下降,便表明中枢运动规划不能单纯概括为笛卡尔空间的直线几何偏好。更深层次的计算问题在于:神经系统究竟是在追求绝对的全局能量极小值点,还是倾向于选择那些即使轨迹出现随机扰动与变异、能量消耗也不会急剧攀升的“低敏感度容错区间(safe range)”?
评估上述理论假说需要将真实的运动学轨迹与系统的反事实轨迹族置于统一的力学模型中予以比较。最小路径偏差(最直路径)、绝对最小机械动能(Min KE)与能量地形平缓区(KE-landscape plateau)三种优化假说给出了分立的定量预测:最小偏差假说要求轨迹向欧氏直线收敛;全局最小动能假说允许轨迹弯曲,但严格锚定在能量地形的局部极小值槽底;而平缓区假说则预测行为选择会分布在导数绝对值较小、容差较大的平缓坡面上。需明确指出,由二连杆刚体动力学模型估算的机械动能并非生理实测的代谢能耗,统一设定的反高斯速度剖面与肢体质量估算亦限制了对任意复杂反事实轨迹的外推精度。实测与模拟动能的高相关性表明模型能较好拟合当前实验数据趋势,但不能保证对未执行极端轨迹预测的绝对准确性。
Jana 等追踪分析了两只恒河猴跨越数月的复杂序列伸手任务,比较了练习早期与晚期的轨迹弯曲度及模型估计动能,并针对 19 组基本子运动构建了不同空间曲率的反事实轨迹动力学地形图。研究旨在阐明:长期练习是否系统拉直手部或关节轨迹、机械能量消耗是否呈现更普遍的优化趋势,以及实测运动轨迹的演化终点究竟更接近理论绝对能耗极小点,还是对应动能曲率变化平缓的容错区域。结果为基于能量地形平缓区的“安全容差”假说提供了实证支持,并表明视觉反馈可能驱动了部分大偏差轨迹的局部拉直。由于研究基于两只实验动物,多个任务会话与子运动不能作为完全独立的动物学重复样本;关节空间直线路径恰好对应最小动能属于特定动力学参数与时间轮廓下的数值结果,不能随意泛化为普适的通用物理定律。
研究思路
将两只恒河猴跨越多月的序列伸手任务拆解为 19 组起终点不同的基本子运动。利用刚体动力学模型计算观测轨迹的机械动能,并在统一时间剖面下系统模拟不同曲率梯度的反事实轨迹,构建能量地形图以比较三类理论假说的预测精度。拟合优势支持特定候选假说,并不构成对其他多目标最优控制模型的排他性否定。
方法
实验动物为两只恒河猴(Monkey E 为雌性约 6 kg,完成 20 个会话;Monkey J 为雄性约 9.5 kg,完成 42 个会话),实验跨越数月时间。动物右臂固定在 Kinarm 外骨骼系统内执行水平面二维伸手,运动学数据以 1 kHz 采样;同步记录了五个皮层区域的微电极阵列信号(本文仅分析行为与力学数据)。
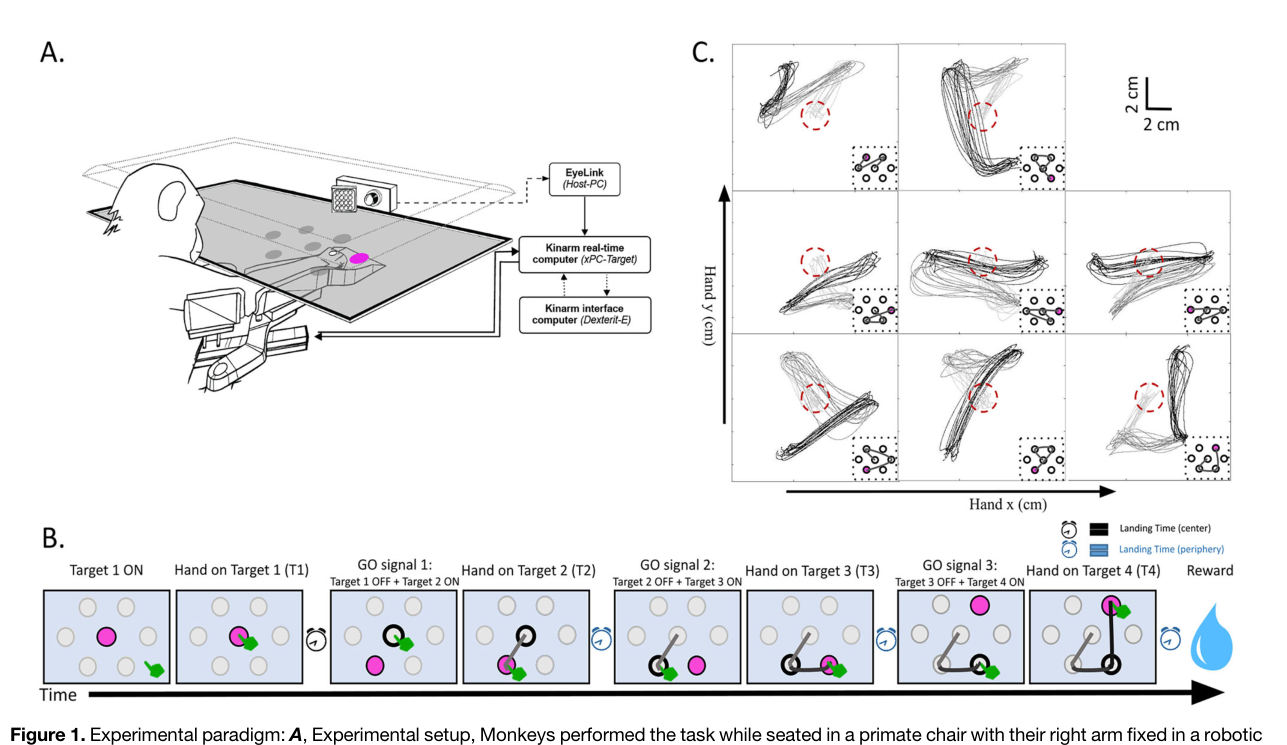
行为任务为六边形网格顶点间的连续序列伸手:动物首先在中心注视并维持目标 250 ms,随后外周三个目标按特定序列依次点亮,每个目标到达后需维持 150–200 ms;任务共包含 8 种固定目标序列,每个 block 包含 40 试次(每种序列 5 次),单会话采集 3 个 block(共 120 试次);两目标间的运动时间限制为 1.5 s,目标判定容差隐形放大至 1 cm 半径以鼓励自然流畅的运动轨迹。将 8 种复合序列拆解归并为 19 组具有独立起终点坐标的基本子运动,全面覆盖不同的运动距离、关节构型与空间方向。
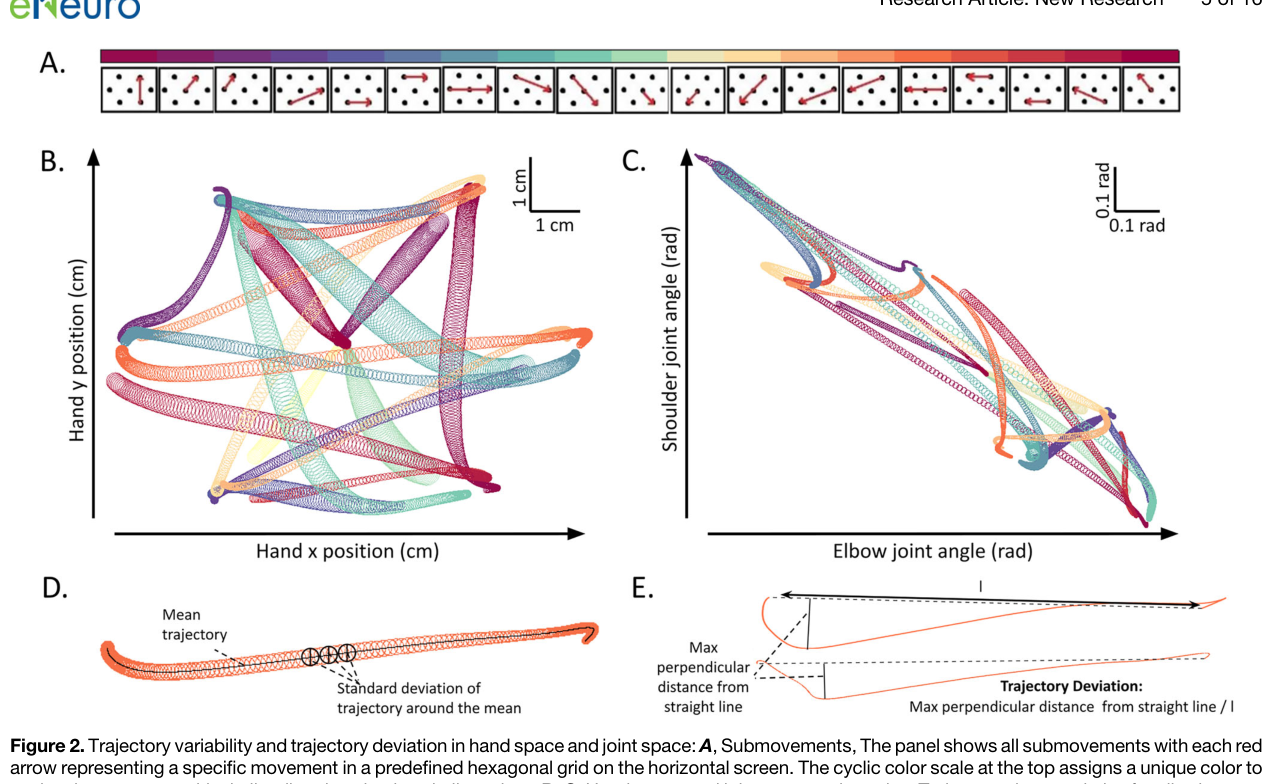
轨迹分析中,路径偏差(trajectory deviation)定义为实际轨迹到起终点连线的最大垂直欧氏距离除以直线位移长度;机械动能(KE)基于二连杆刚体动力学模型对肩肘两关节角速度及转动惯量积分求和(上臂长 0.13 m、质重约 220 g,前臂连手长 0.23 m、质重约 90 g)。反事实模拟中,采用标准反高斯速度分布生成 501 个时间离散点、总运动时长标准化为 1 s(动物实测平均运动时长约为 840 ms),将该统一速度轮廓应用于全部 19 组子运动的反事实轨迹族解算;模型预测精度采用 5 折交叉验证伴随 20 次重采样的均方根误差(RMSE)进行定量评定。
主要结果
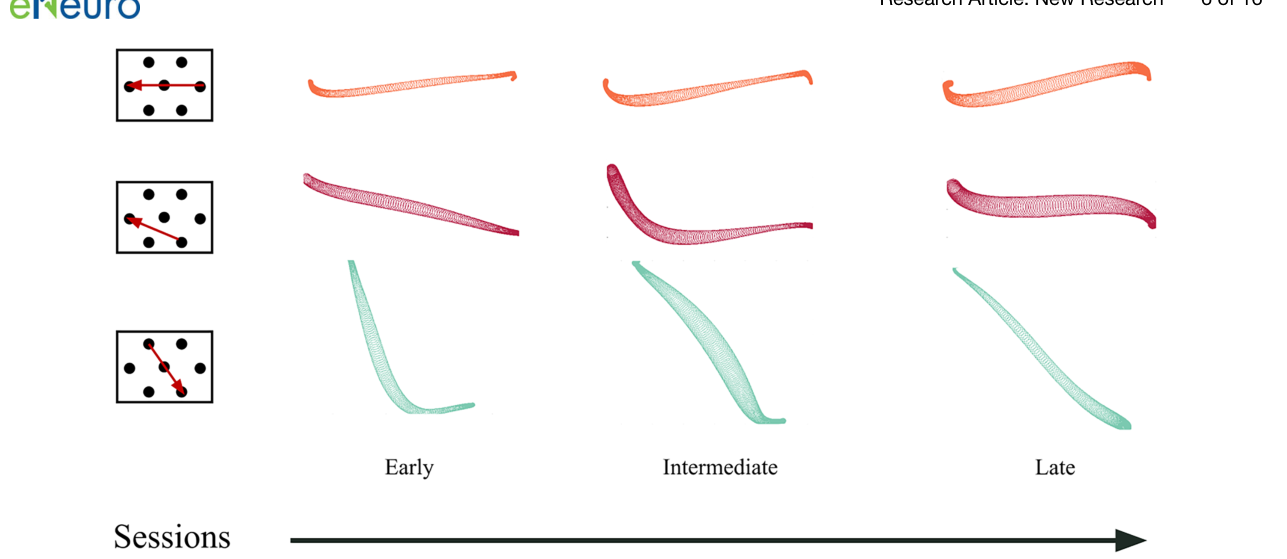
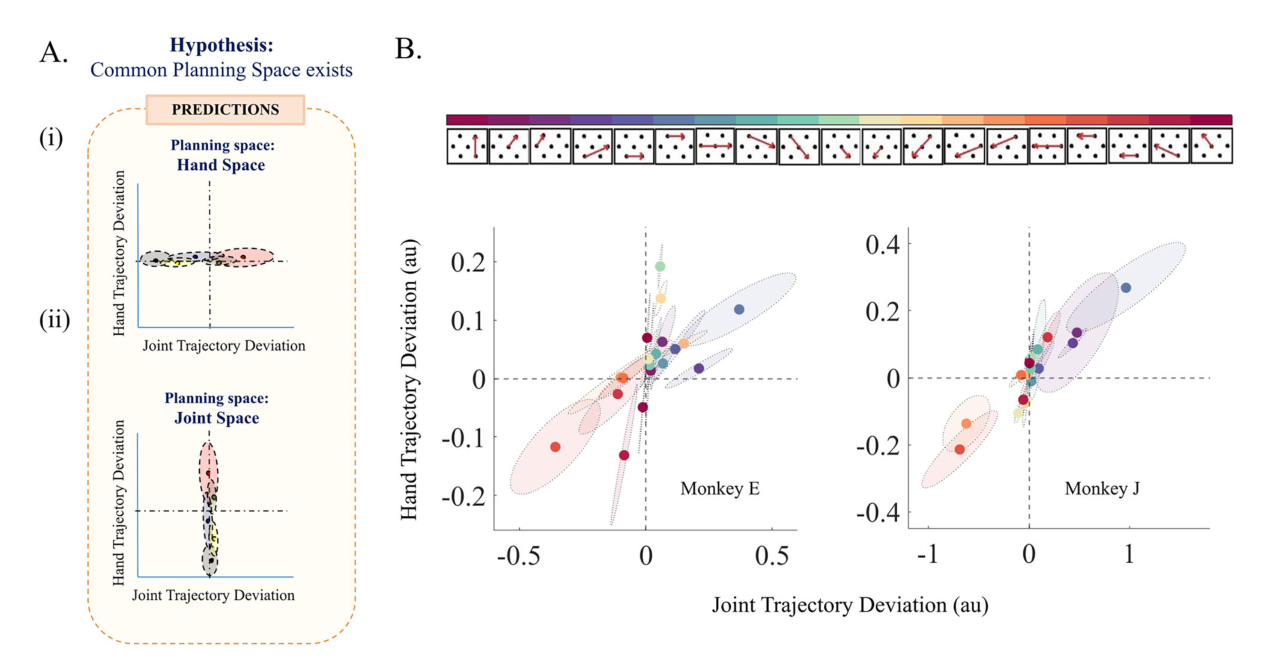
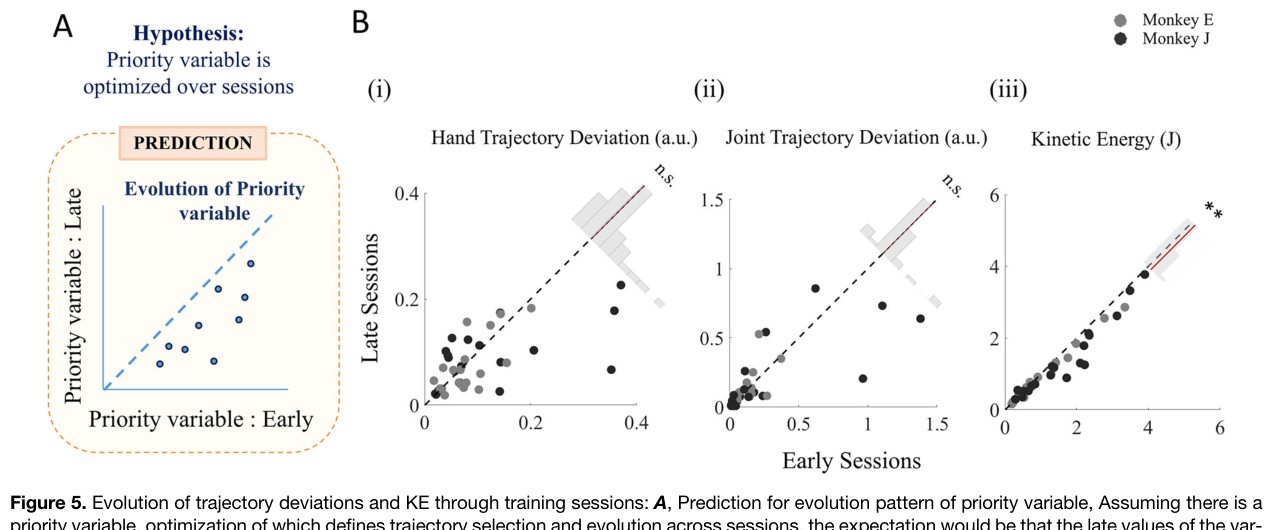
对经典直线计划假说的定量检验表明,无论是手空间还是关节空间直线假说均未得到数据支持。手空间路径偏差与关节空间路径偏差在跨子运动分析中呈现强正相关(Monkey E 达 r=0.64,N=380;Monkey J 达 r=0.83,N=798),但两个空间中均未观察到普遍趋向零偏差的聚拢现象。在练习效应演变上,对比早期 10 个会话与晚期 10 个会话,手空间偏差(Wilcoxon 符号秩检验 p=0.8675,N=38)与关节空间偏差(p=0.8790)均未出现系统性的下调趋势,不同子运动在练习后表现为有的变弯、有的拉直或非单调振荡。相对地,模型估计的机械动能(KE)呈现出全域高度显著的下降趋势(p=7.75×10⁻⁵),在逐会话线性回归分析中,84%(Monkey J)与 68%(Monkey E)的子运动动能斜率显著为负,证实长期练习优先优化了能量消耗,而非外在的空间几何曲率。
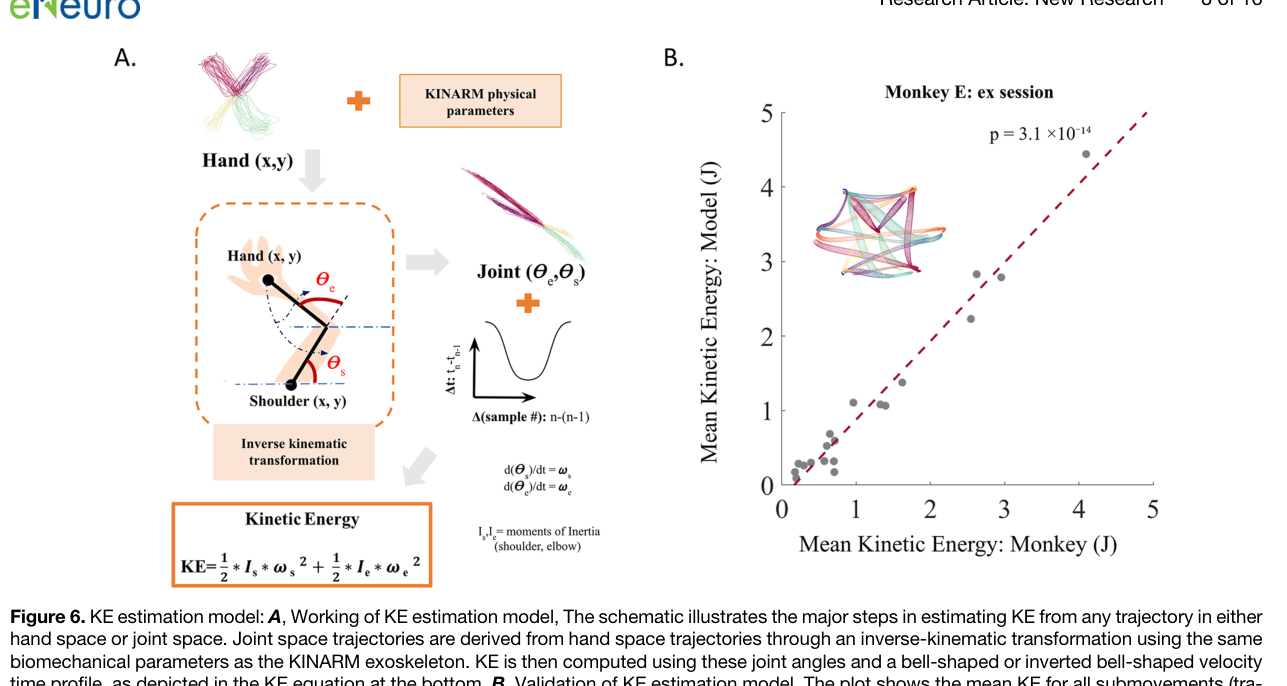
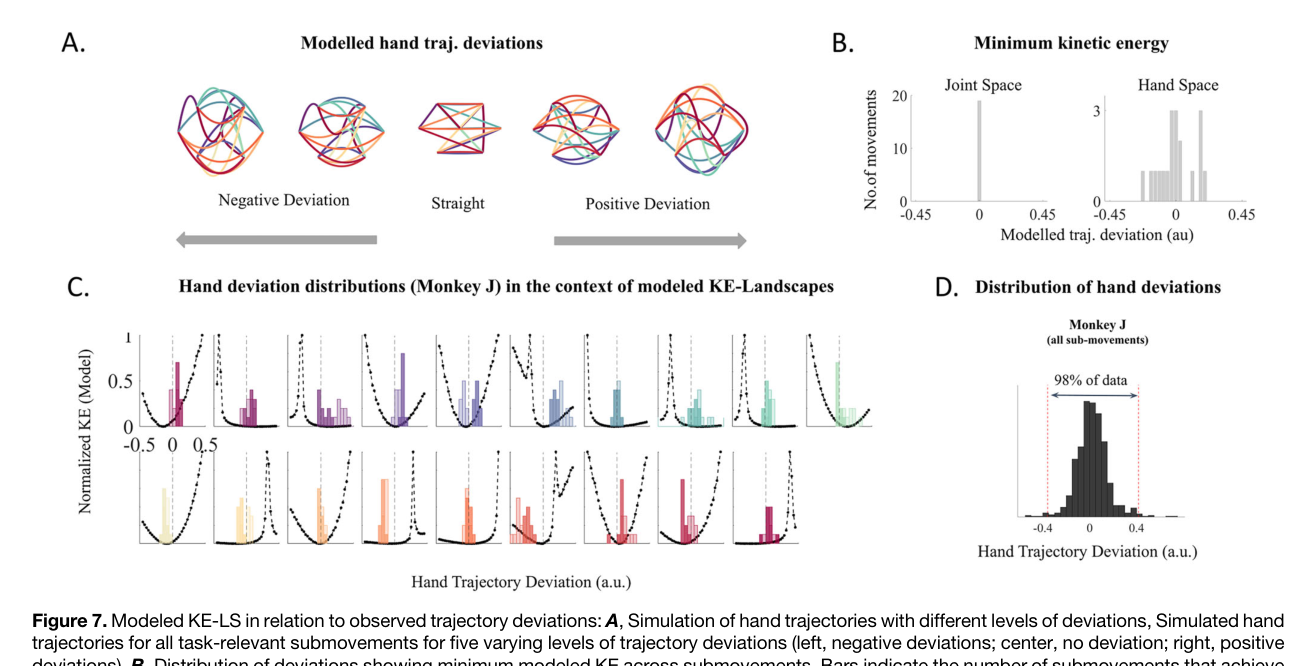
力学建模与观测数据的对比揭示了轨迹选择的能量地形机制。首先进行方法学校验:在代表性会话中,由实际运动学解算的实测动能与相同参数模拟轨迹的估计动能相关系数达 r=0.98(p=3.1×10⁻¹⁴)。模型模拟证实:在本文设定的动力学参数与时间剖面下,关节空间直线(偏差为 0)天然对应全局最小动能点(Min KE),而手空间最小动能则分散于不同程度的弯曲轨迹中,但实测轨迹并未精确收敛于上述理论极小值。真正具备定量解释力的是能量地形(KE-landscape)的局部几何斜率:地形剖面表现为不对称抛物线槽,78% 的子运动在早期会话中即将其轨迹偏差置于能量曲面平缓、导数绝对值较小的“缓坡侧”,且晚期会话的演化方向呈现出朝平缓侧靠拢的特征,而非奔向 Min KE 极小值或几何零偏差。
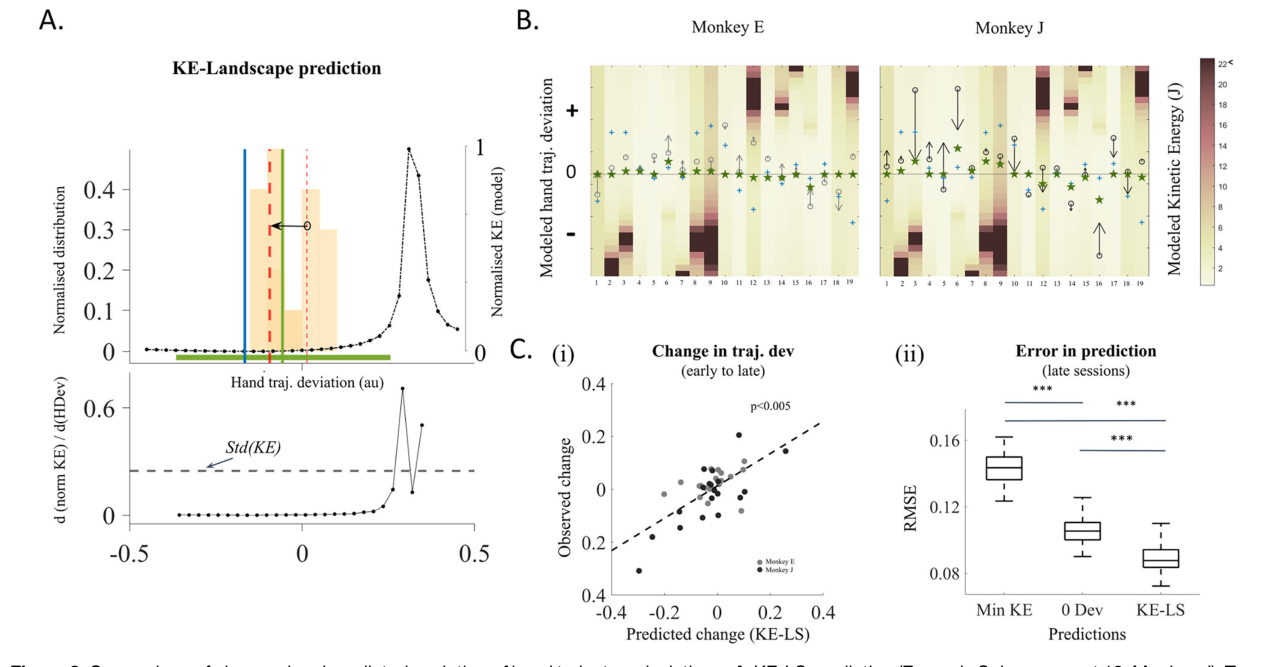
在定量预测对比中,由能量地形平缓区(KE-LS)预测的轨迹偏差变化量与动物真实偏差变化量高度吻合(相关系数 r=0.696,p=1.2×10⁻⁶,回归斜率 0.62,N=38);在对晚期会话实际路径偏差的预测 RMSE 指标上,KE-LS 模型显著优于最小偏差预测模型(p=2.4×10⁻²⁸),而最小偏差模型又显著优于单纯的全局最小动能预测(p=2.7×10⁻⁶⁵)。基于余弦距离的 k-means 聚类(k=2)在两只动物中独立识别出相同的两类子运动,关节偏差较小的子运动类群拥有更高的基线能量且能量地形显著更为平坦。同时,研究指出了一项视觉驱动的例外现象:在早期手空间偏差极大的子运动中,练习显著缩小了手空间偏差而关节偏差未见改善,表明视觉反馈在此类特殊构型中对轨迹拉直起到了调节作用,视觉约束与能量优化的影响尚未实现完全解耦。
逐图解读
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 实验范式。 (A) 实验猴在 Kinarm 外骨骼中的坐姿构型与投影显示系统布置。(B) 单个成功试次的事件时序:中心目标触发与三个依次亮起的目标序列。(C) 代表性会话中 8 种运动序列的实际空间轨迹展示(灰度区分第一、二、三阶段子运动),展示了长周期序列行为数据的多维度覆盖。
来源:原文 Fig. 2,PDF 第 5 页。
图 2 · 两个空间里的轨迹变异性与偏差度量。 (A) 19 个基本子运动的空间几何朝向与颜色编码盘。(B、C) 手空间与关节空间中全部子运动的轨迹形态,圆圈尺寸标示 10 ms 间隔的跨试次位置标准差。(D) 单个典型子运动的时空变异性。(E) 路径偏差的几何定义——实际轨迹偏离起终点连线的最大垂直距离除以位移弦长。
来源:原文 Fig. 3,PDF 第 6 页。
图 3 · 轨迹随练习的三种演化模式。 展示三个典型子运动在早期、中期与晚期会话中的手部轨迹演变:第一行形态基本稳定;第二行由近直线经显著弯曲后再恢复为中度弯曲(非单调演化);第三行呈现单调变直趋势。经验事实表明不存在跨子运动通用的几何拉直规律。
来源:原文 Fig. 4,PDF 第 6 页。
图 4 · 对两种直线计划空间假说的检验。 (A) 理论预测:若存在普适的计划空间,数据点应紧密贴附于 hand 轴或 joint 轴的零偏差基准。(B) 实际观测数据:各子运动的跨会话偏差置信椭圆与均值点广泛弥散于平面对角线两侧,未见向任一零偏差轴聚集,两只动物高度一致,推翻了单纯基于几何直线的普适规划模型。
来源:原文 Fig. 5,PDF 第 7 页。
图 5 · 练习改变了什么:不是偏差,是能量。 (A) 优化变量在练习早晚期应呈现系统下移的理论示意。(Bi、ii) 手空间与关节空间偏差的早晚期对比,散点均匀对称分布在对角线两侧(p=0.8675 与 p=0.8790)。(iii) 机械动能(KE)的早晚期对比,散点系统性下沉至对角线下方(p=7.75×10⁻⁵),证实能量消耗而非几何形状构成了主要的优化目标。
来源:原文 Fig. 6,PDF 第 8 页。
图 6 · KE estimation model。 (A) 刚体动力学建模管线:空间轨迹→Kinarm 逆运动学变换→关节角速度→动力学动能方程。(B) 模型校验:Monkey E 代表性会话中模拟动能与实测动力学动能高度吻合(r=0.98),确立了反事实动能评估的基准有效性。
来源:原文 Fig. 7,PDF 第 9 页。
图 7 · KE-landscape 与观测偏差的拼接。 (A) 各子运动在五个离散曲率偏差阶梯上的模拟反事实轨迹族。(B) 理论最小动能(Min KE)对应的偏差分布直方图:关节空间严格聚集于零点,手空间广泛离散。(C) 19 组子运动各自的能量地形曲线(不对称抛物线)与早期/晚期实测偏差直方图的叠加图,直观展现出实测轨迹向能量地形平缓侧聚集的倾向。
来源:原文 Fig. 8,PDF 第 10 页。
图 8 · 三种预测的对决。 (A) 典型子运动的能量地形图,标示导数阈值限定的最优平缓区间(绿带)、绝对最小动能点(蓝线)及实际偏差分布与转移方向。(B) 全部子运动的动能地形热图,叠加早期至晚期的实际转移箭头与预测标记点。(Ci) KE-LS 模型预测变化量与实测变化量的显著相关(r=0.696)。(Cii) 三种候选假说预测 RMSE 的定量对比,验证了能量平缓区模型具有最佳解释力。
讨论与解读边界
这项研究把跨session行为与生物力学模型相结合,比较了明确的候选预测。其结果不支持用手空间或关节空间的直线最优假说统一解释本任务,提出了“动能对轨迹变化不太敏感的范围”这一可检验解释。
KE是由运动学及简化质量和惯量计算的机械动能,不是直接测得的代谢消耗。模型验证中的两组KE同样依赖模型与运动学;高相关不保证任意反事实轨迹都准确。关节空间直线对应最小KE是本文所测轨迹族和时间参数下的结果,不能写成普遍力学定律。只有两只动物,多session或多子运动不是独立动物重复;因果机制、视觉贡献及自由三维运动的适用性仍需验证。
思考问题
- 改变外部负载而保持目标和视觉反馈不变时,轨迹是否按新动能曲面的缓坡区迁移?
- 使用各试次真实速度剖面、更完整的肢体动力学和独立留出session后,KE-LS优势是否保持?