D13 · Interactively integrating reach and grasp information in macaque premotor cortex
Chen, J., Sun, G., Zhang, Y., Chen, W., Zheng, X., Zhang, S., & Hao, Y. (2025). Neuroscience Bulletin, 41, 1991–2009. doi:10.1007/s12264-025-01430-3
先后提供位置和握法信息时,PMd持续保留第一条信息,但不少单细胞的调制及群体编码方向会改变。经CCA对齐后仍可提取跨延迟期共享的编码成分。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
伸手抓握通常需要同时处理目标位置和握法。若两类信息一起出现,很难判断皮层是在保持已有信息,还是已经把它们整合成新的动作表示。顺序提示提供了更细的分辨方式:第一条信息先进入准备期,第二条随后到达。若第一条信息仍可解码,说明内容没有丢失;但编码方向、交互项和跨期泛化是否改变,则决定“保留”是否意味着仍以原来的方式表示。
这一问题也揭示单细胞与群体分析的不同层次。某些神经元可能保持偏好和调制深度,另一些增强、减弱甚至反转;只要其中一部分发生变化,原始群体权重就可能在两个延迟期间不再通用。CCA 可以进一步寻找跨期最大相关的投影,判断是否存在一组共享成分,使同一条件在两个时期保持相似格局。需要牢记的是,CCA 是为寻找对齐而优化的统计工具,不等于下游脑区实际采用这组权重,也不证明只有稳定神经元才能贡献共享表征。
Chen 等让位置先行与握法先行的试次交错出现,比较两个延迟期的单细胞调制、交互项、编码方向和跨期解码,再用 CCA 分析共享成分。研究希望回答:第二条信息到达后,第一条是否仍可读出,交互整合如何改变编码,以及不稳定单元能否参与稳定的群体表示。结果区分了“信息保留”与“原权重保留”,并显示稳定和不稳定单元都可贡献对齐后的信号。两种提示顺序有助于控制时间推进,但不能据此确定唯一的整合回路或生物机制。
研究思路
位置先行与握法先行试次交错呈现。作者比较两个延迟期的单细胞调制、交互项、编码方向和跨期解码,再用CCA寻找共享成分;统计对齐用于检验可读性,不预设下游实际采用同样权重。
方法
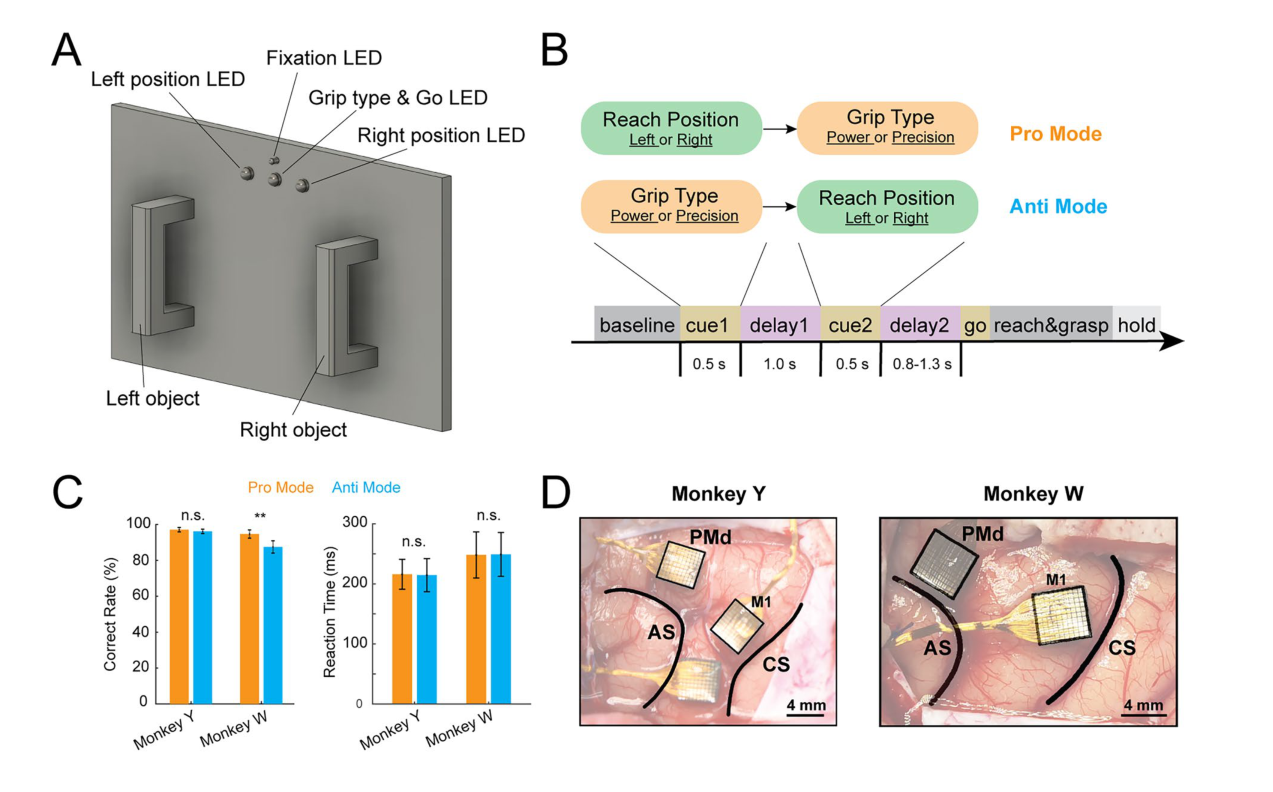
两只雄性恒河猴(Y,7.4 kg,4 岁;W,9.1 kg,5 岁),右手固定、用左手操作。面板竖直放在眼前 20–25 cm 处,两个相同手柄相距 15 cm,每个手柄内嵌四个电容触摸传感器(前+后两个触发记 precision grip,四个全触发记 power grip),行为因此可以被硬件严格判定。时间线:按键启动并注视,900 ms 后第一个 cue 亮 500 ms(cue1),进入 delay1;1000 ms 后第二个 cue 亮 500 ms(cue2),进入 800–1200 ms 的 delay2;然后注视灯灭、RGB 灯变绿为 GO,猴子松键完成正确的伸手抓握。错误 trial(提前松键、抓错手柄、握法错误、注视出界——最后一条只对戴眼动仪的猴 W 生效)被剔除,两只猴正确率都保持在 85% 以上。每猴记录 5 个 session,M1 和 PMd 各植入一块 96 通道 Blackrock 阵列(工作肢体对侧半球;猴 Y 另有 PMv 阵列未用;猴 W 用皮层内微刺激核实电极落在前肢区)。Cerebus 系统采样 30 kHz,阈值 −5.5 倍 RMS 提取锋电位,Offline Sorter 分选;每 session 平均分出 101(猴 Y)和 158(猴 W)个单单元,锋率以 10 ms 分箱、50 ms 高斯核平滑。初步分析显示 M1 神经元基本只对实际动作有反应、不区分 trial 类型(补充图 S1),故后续只用 PMd。分析工具包括:双因素 ANOVA(用 eta 值量化各因素及交互项解释的方差比例)、modulation depth(MD)、SVM 解码(10 折交叉验证)、coding direction(CD,200 ms 窗滑动的群体编码向量及其互相关矩阵)、delay1/delay2 的 MD 四分类(stable/enhanced/attenuated/reversed,取 cue 熄灭后 300 ms 起的两个 500 ms 窗)、以两 delay 活动的 Pearson 相关定义的稳定性指标,以及用 QR 分解加 SVD 实现的 CCA——CCA 的每个成分被当作一个"伪神经元"来画 PSTH、算 MD、做解码。
主要结果
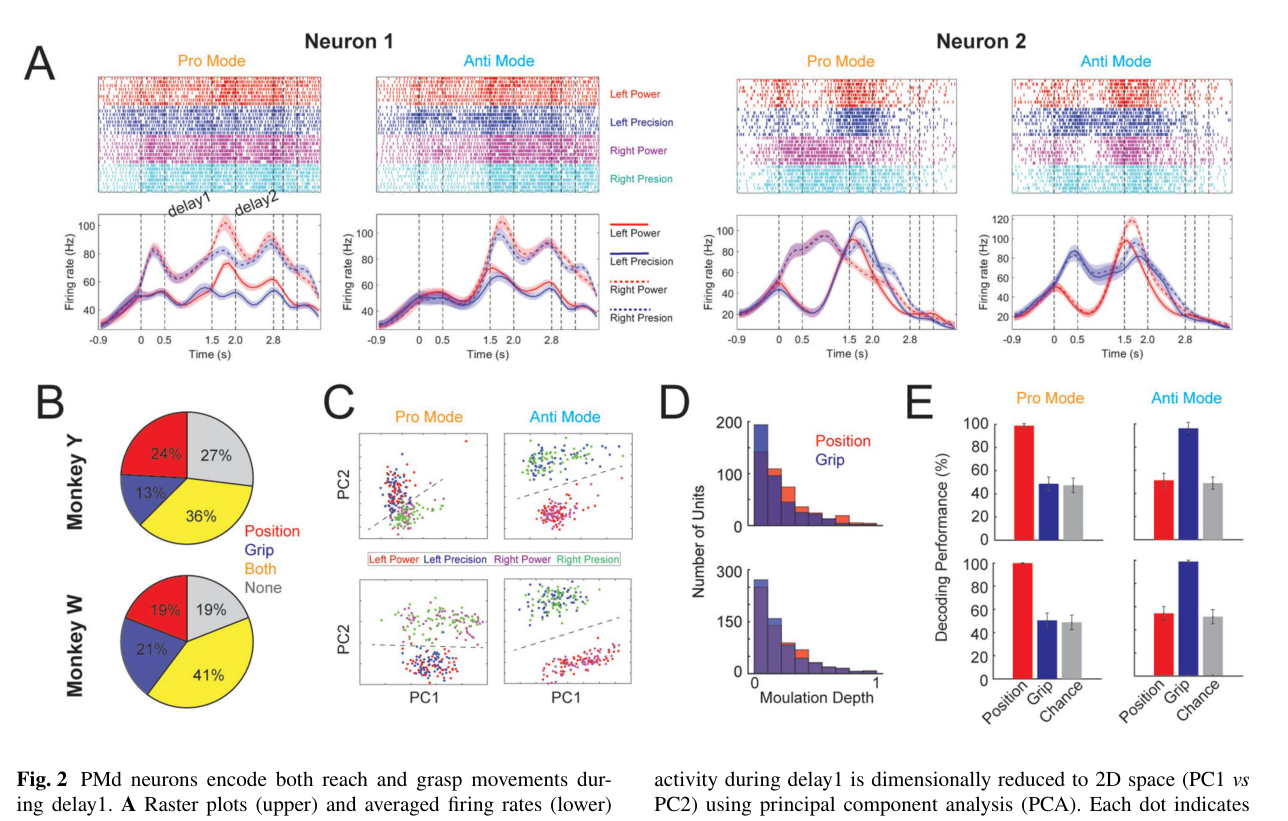
第一层结果确认 PMd 在运动规划期同时表征空间位置与抓握类型。在 delay1 阶段,平均 21.5% 的神经元表现出显著的位置调谐、17% 表现为握法调谐、38.5% 同时具有两类调谐(两只猴合计);在主成分投影平面上,pro 模式下的位置条件与 anti 模式下的握法条件均可实现清晰分离;单 trial 解码分析中,先呈现的第一项信息被准确解码,后呈现的信息维持在机会水平,位置与握法的调制深度(MD)分布基本重叠。在运动执行期,两只猴的 reach MD 均显著高于 grasp MD,反映出执行阶段 PMd 对伸臂运动学的偏好。
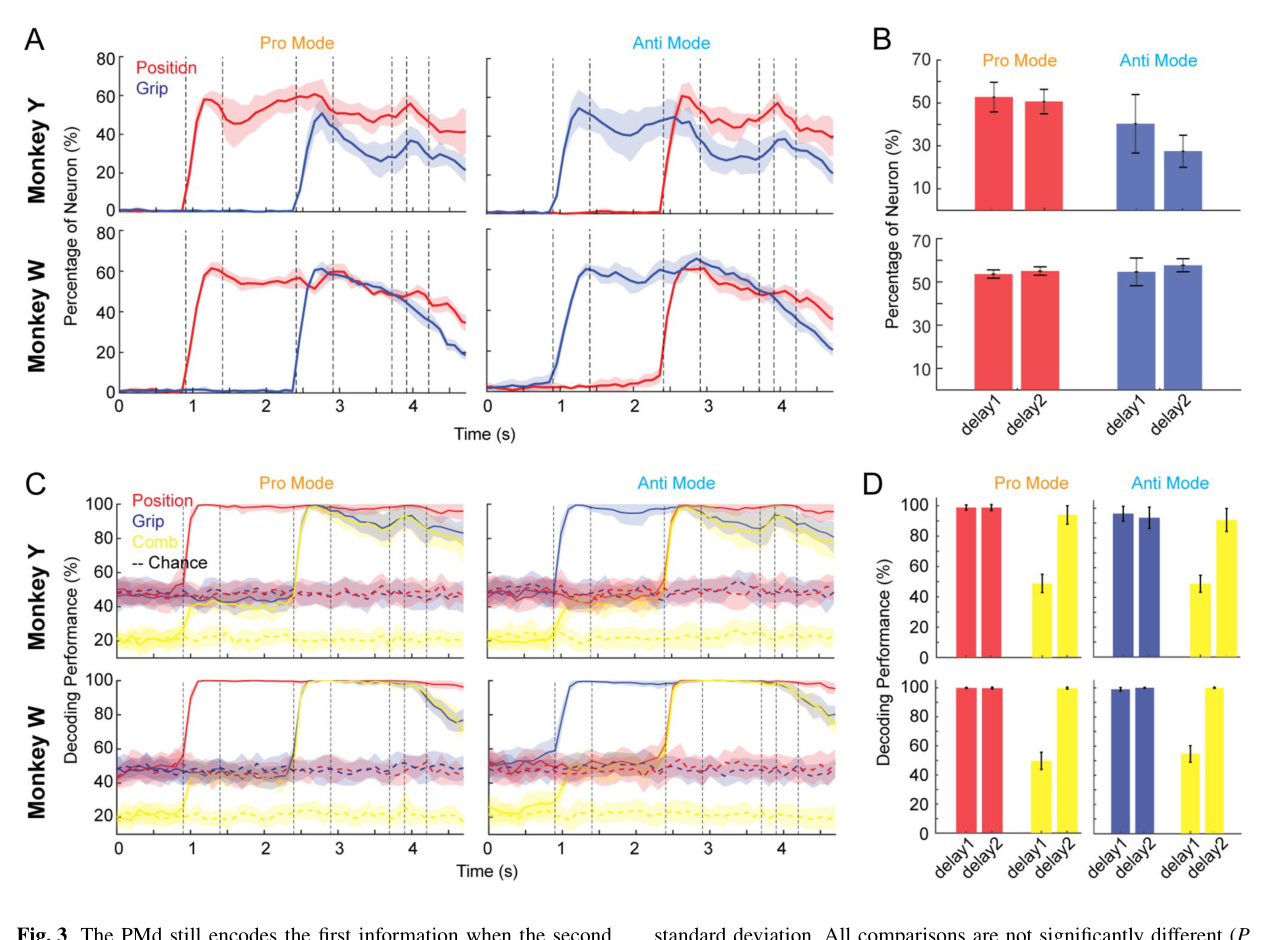
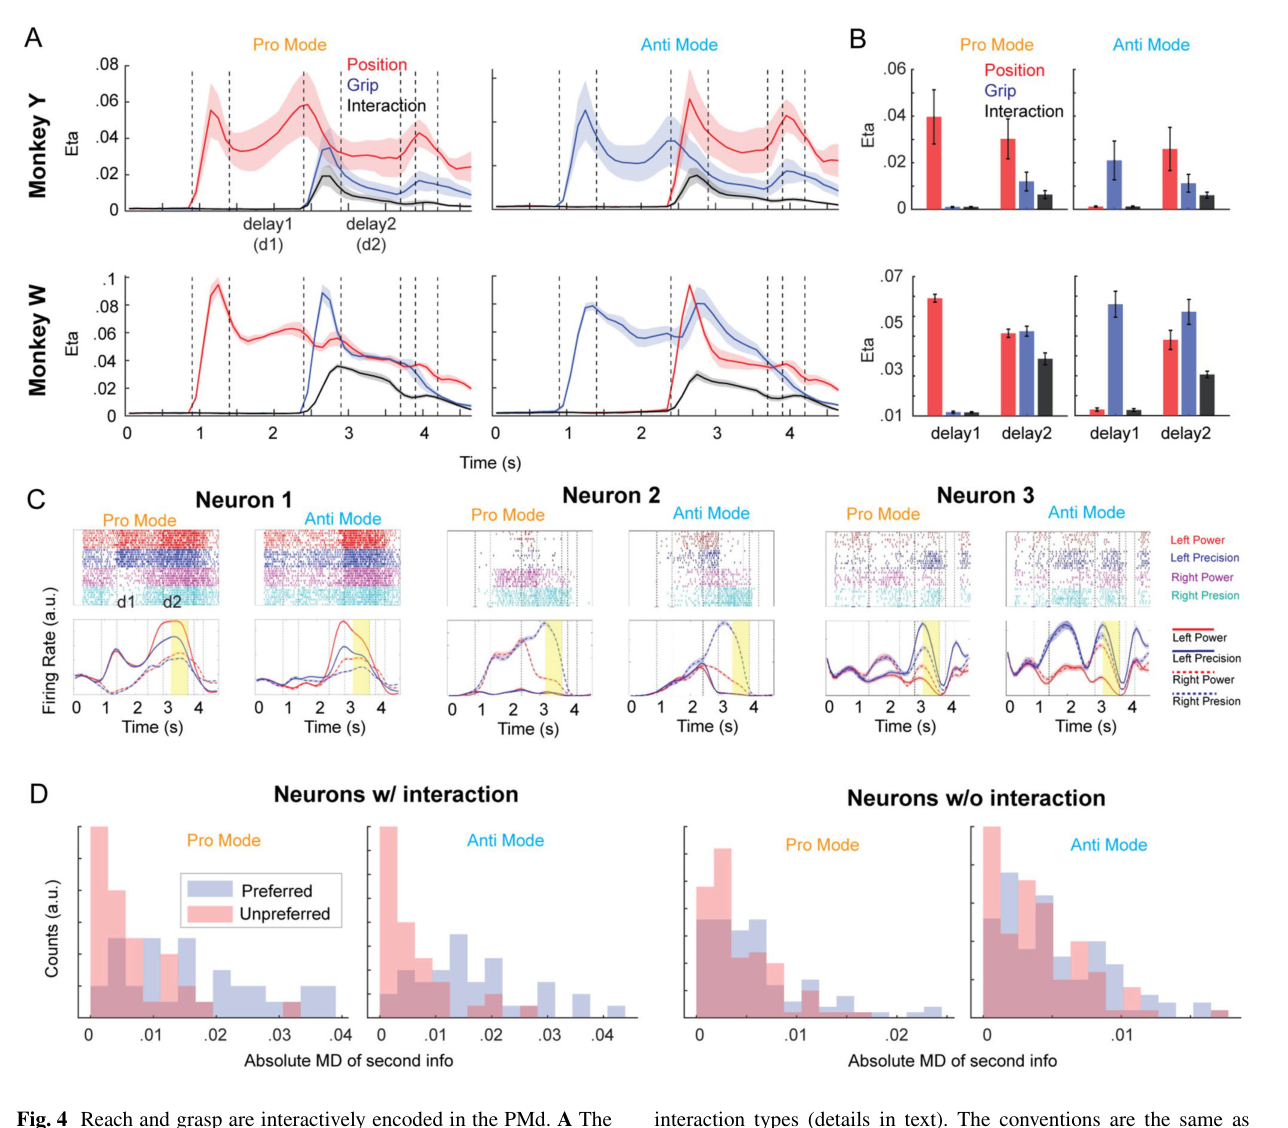
第二层结果揭示了两类信息的动态重构现象。当第二条信息出现时,编码第一条信息的神经元比例从 cue1 一直维持至运动期(除 anti 模式下的猴 Y 在 delay2 由 40.35% 降至 27.51%,P=0.0141),解码准确率保持高位,表明信息本身并未丢失。然而,双因素方差分析显示交互项的 eta 值在 cue2 呈现后显著升高,在 cue2 熄灭附近达到峰值后缓慢衰减,说明 reach 与 grasp 之间存在显著交互调制而非线性叠加。具有显著交互效应的神经元比例在猴 W 中为 59.4%,在猴 Y 中约为 24%;在显著交互组中,若神经元偏好第一项信息的特定取值,其对第二项信息的调制深度显著增加(pro 模式 P=3.13×10⁻⁵,anti 模式 P=9.74×10⁻⁷),无交互组则未表现出该调制特征。
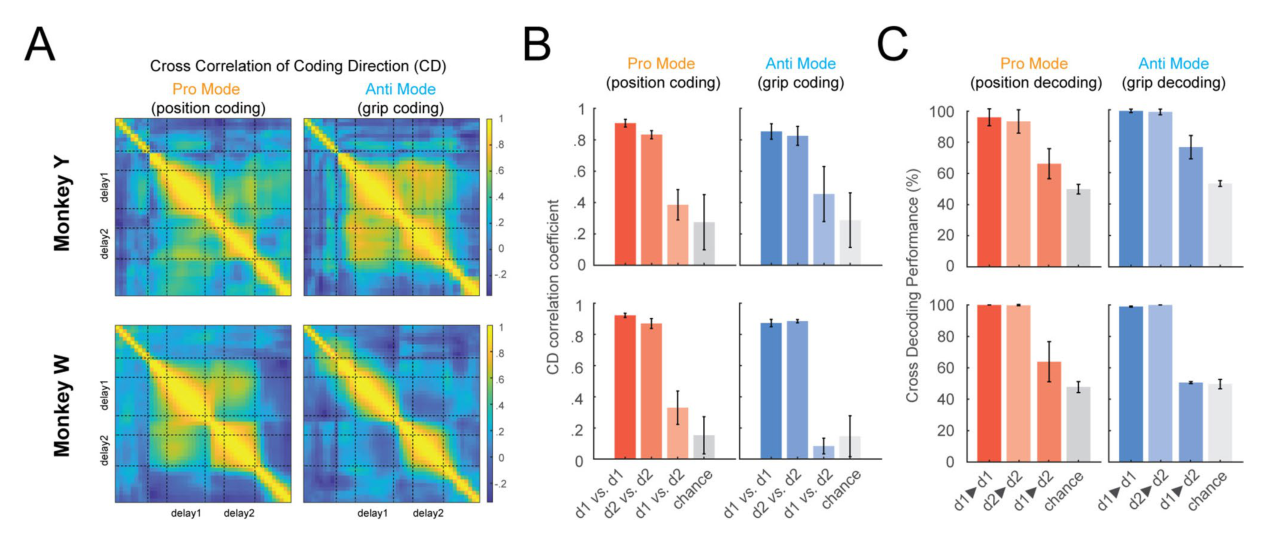
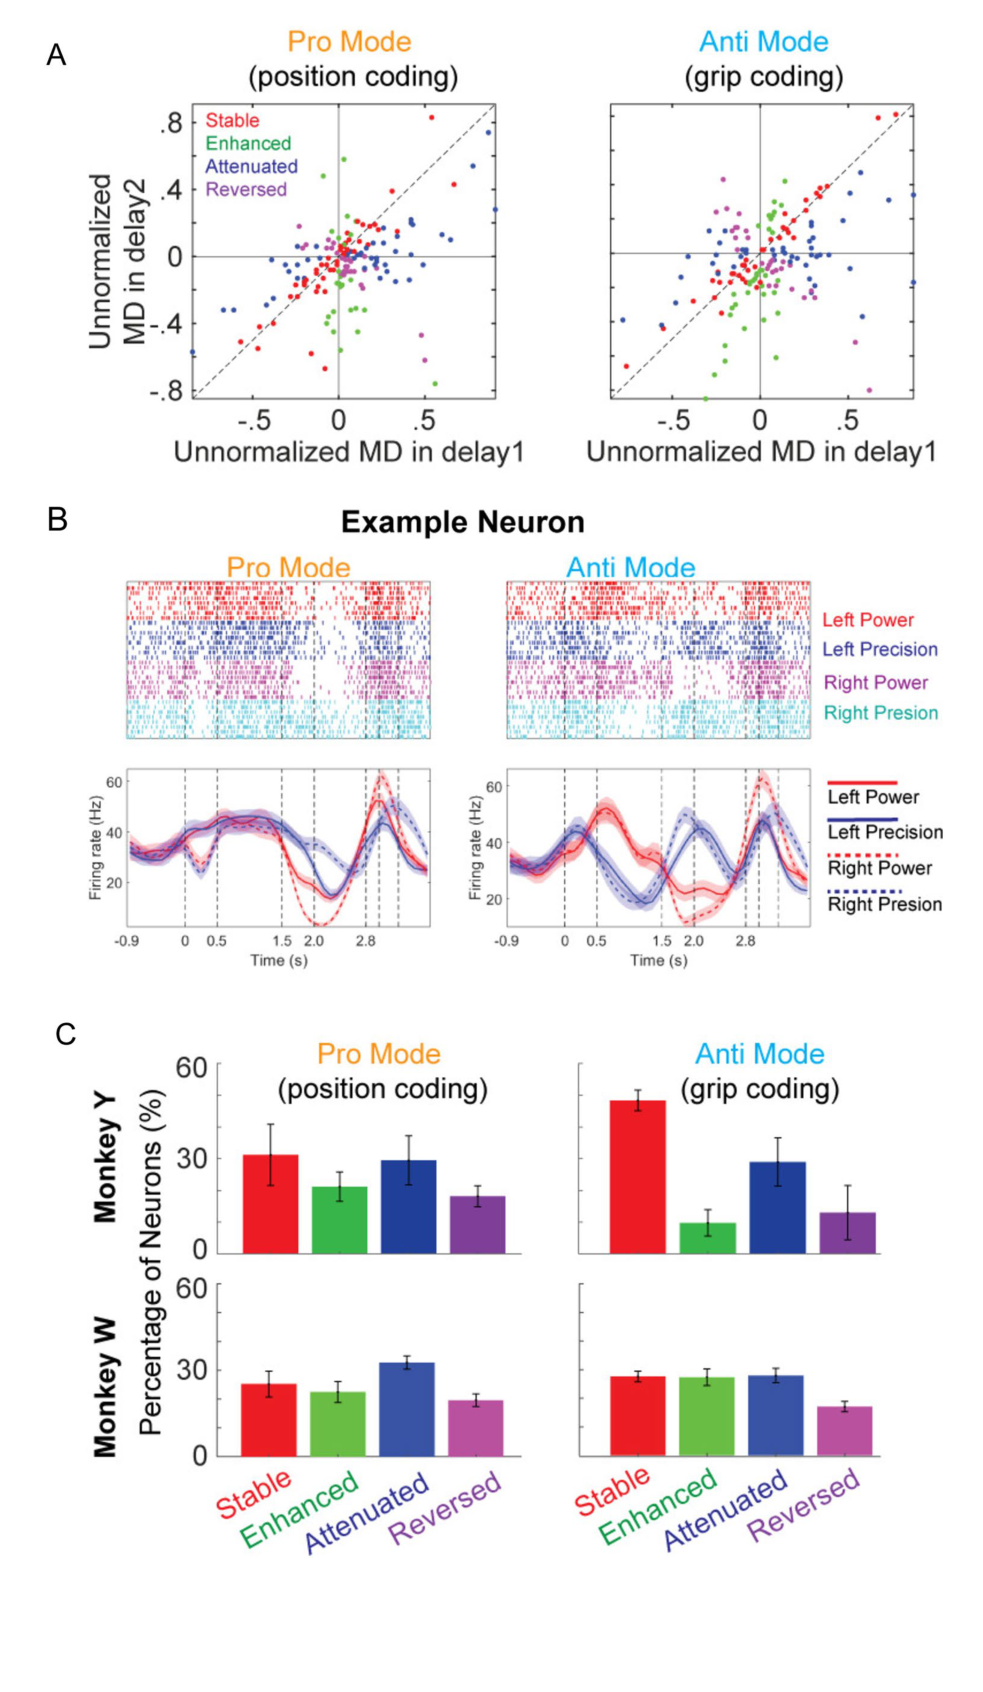
第三层结果进一步量化了编码方向的转变。在群体层面,编码方向(CD)互相关矩阵中 delay1×delay2 的交叉块相关系数显著低于 delay 内部的相关水平,导致基于 delay1 训练的解码器直接测试 delay2 时接近机会水平——表明神经编码权重在两阶段间发生了方向转变。单神经元层面,对比两个 delay 阶段的调制深度,平均仅 33.15% 的神经元保持稳定(stable),20.33% 表现为增强(enhanced),30.03% 表现为衰减(attenuated),另有 16.49% 出现偏好方向反转(reversed)。控制分析(对比信息相同但顺序不同的 pro 与 anti 模式 delay2)显示稳定单元比例为 48.57%,表明部分变动源于时序加工进程;这些差异在 delay2 后期逐渐减弱,GO 信号前各条件按行为试次类型重新聚合。
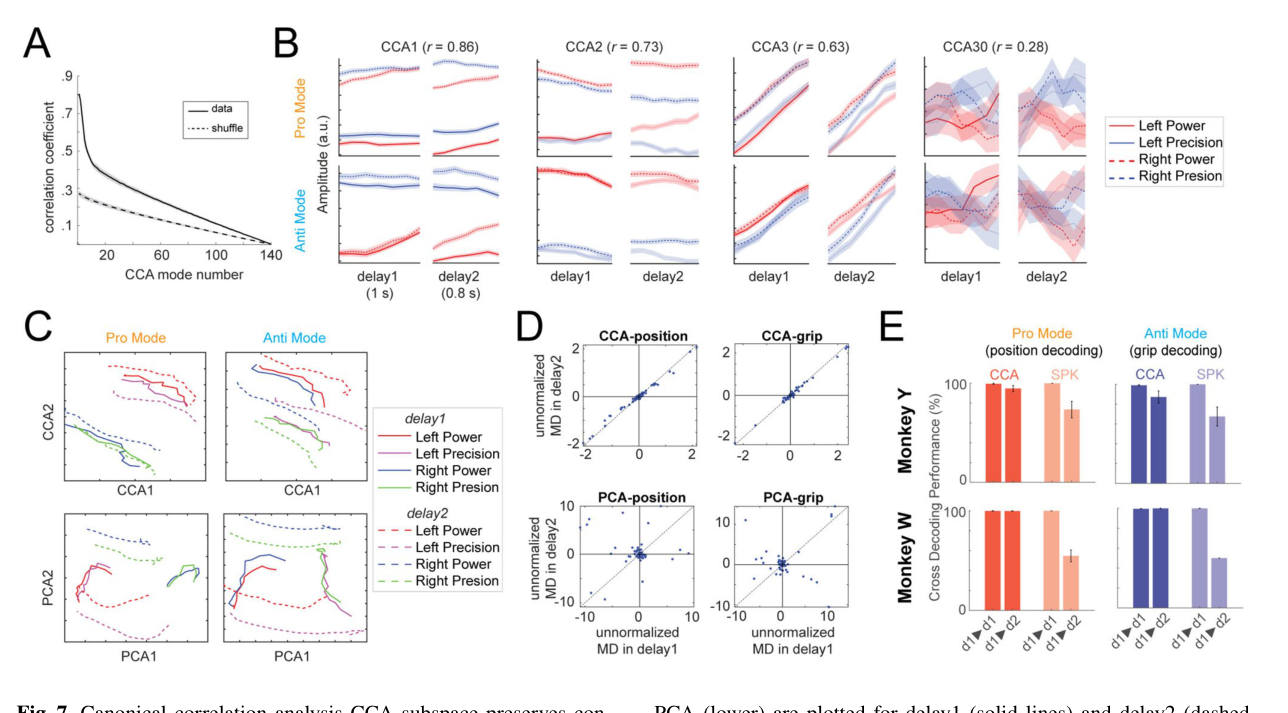
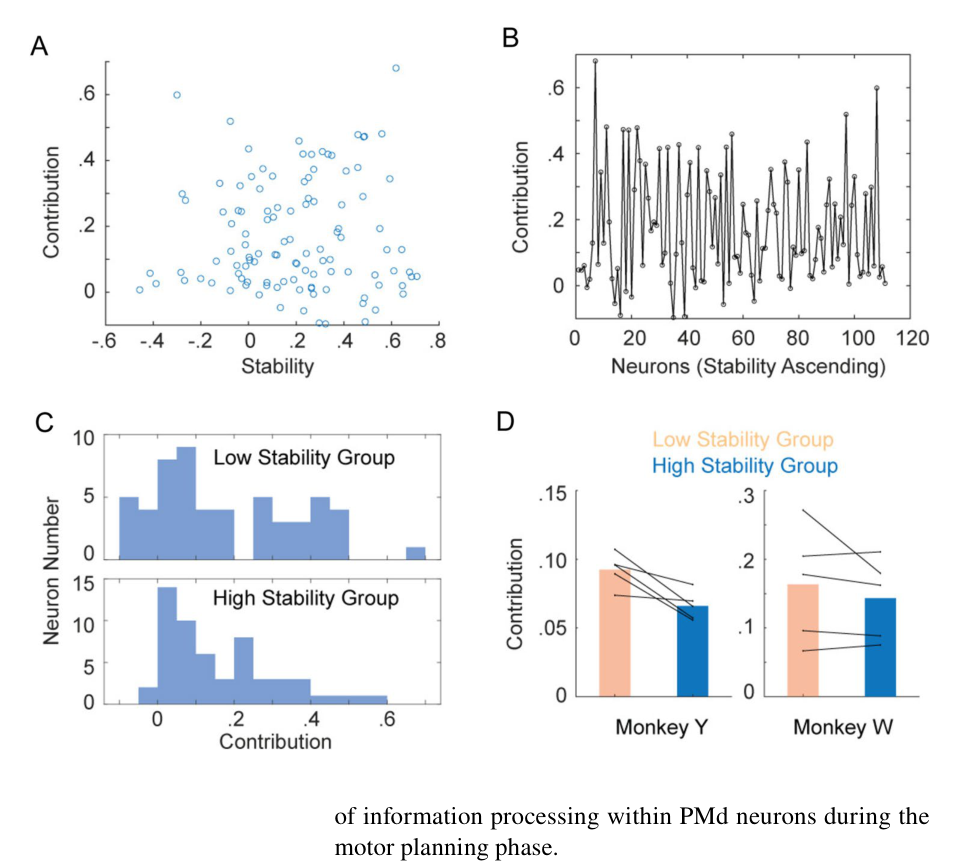
进一步分析跨期共享成分:CCA 在两个 delay 之间找到了最大相关的投影方向对,最高典型相关达 0.8(shuffle 后只有 0.3),每 session 平均 75.0%(猴 Y)和 65.4%(猴 W)的成分对显著,前八对尤其高——这块子空间里 delay1 与 delay2 的编码格局平行对齐,而对照的 PCA 空间里两个 delay 几乎正交;交叉解码也显著高于机会。那么这个稳定子空间是谁撑起来的?答案出人意料:神经元的稳定性指标与其对 CCA 的贡献指数之间没有任何关系,高稳定组的贡献在猴 W 里与低稳定组无异(P=0.3401)、在猴 Y 里甚至更低(P=0.0222)。作者还用 100 个纯"不稳定"模拟神经元(权重在两 delay 间故意错开)跑 CCA,照样抓出共享子空间——CCA 的线性重组可以把不稳定变成稳定。
逐图解读
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 任务与植入。 A 是装置:竖直面板上左右两个手柄,白色 LED 指示位置,中央 RGB LED 蓝黄两色分别提示 power/precision grip、变绿作 GO,小 LED 用于注视;所有灯挤在中心小区域以压制 cue 期的眼动。B 是 SPRG 时间线,两个模式的 cue1/delay1/cue2/delay2/GO 结构可以看出——这张图是全文设计的钥匙:delay1 只有单信息,delay2 是整合期,pro/anti 互为对方的顺序对照。C 汇总两猴的行为:正确率两模式一致(猴 W 略有差异但 >85%),反应时间总体相当(配对 t 检验中个别比较达显著)。D 是两猴的阵列位置,黑框标出 M1 与 PMd,都放在中央沟之前的弧状沟上方——后文讨论抓握神经元为何也在这里,靠的就是这张解剖图。
来源:原文 Fig. 2,PDF 第 8 页。
图 2 · delay1:PMd 同时编码 reach 和 grasp。 A 是两个示例神经元的 raster 加 PSTH,竖虚线切出八个任务段(delay1、delay2 有高亮):神经元 1 在 pro 模式 delay1 里清楚分左右位置,anti 模式里握法调制较弱;神经元 2 两种模式都调,是个地道的双编码神经元。B 是比例条:平均 21.5% 调位置、17% 调握法、38.5% 双调——注意双调者比任何单一调制都多,表明本任务中的 PMd 活动同时涉及伸手位置和握法。C 用 PCA 把 delay1 活动投到二维,pro 模式按位置、anti 模式按握法分成两团。D 显示位置与握法的 MD 直方图几乎重叠。E 是单 trial 解码:pro 模式解码位置、anti 模式解码握法都远超机会线(灰条),而尚未提示的信息都在机会水平——支持delay1优先表征已提示信息,但不能证明未提示信息绝对不存在,该结果与提示顺序相符。
来源:原文 Fig. 3,PDF 第 9 页。
图 3 · 第二条信息到来后,第一条还在。 A 沿 trial 时间画显著调制神经元比例的位置(红)与握法(蓝)曲线,阴影为跨 session 标准差:从 cue1 一直延伸到运动期,先到信息的编码比例不掉线。B 把 delay1 与 delay2 的比例做成柱状图,除猴 Y 的 anti 模式(40.35% vs 27.51%,P=0.0141)外均无显著差异。C、D 换成解码指标:第一条信息在两个 delay 里都接近满分;黄色是四种"位置×握法"组合的解码(机会 25%),delay1 里只有约 50%——与未提示信息尚未被当前解码器可靠检出相符——delay2 里升到接近满分。这张图确立了全文的张力:信息没丢,但这不等于编码没变。
来源:原文 Fig. 4,PDF 第 10 页。
图 4 · 交互整合的直接证据:ANOVA 的 eta 值。 A 是位置(红)、握法(蓝)、交互(黑)三条 eta 曲线沿时间的走势:交互项在 cue2 之后升起、cue2 熄灭附近达峰、trial 末衰减——时程上严丝合缝地对应"第二条信息到达并整合"的窗口。B 分模式比较 delay1/delay2 的 eta,delay2 的交互项显著非零。C 是三个示例神经元:神经元 1 无交互(P>0.05),无论往左伸还是往右伸都一贯偏好 power grip;神经元 2 有强交互(P<0.001),只在往右伸时才分握法;神经元 3 更激进,握法一换,位置偏好直接反向。D 从统计上收口:把神经元按有无交互分组后,交互组里"第一条信息取偏好值时第二条信息的 MD"显著更大(P=3.13×10⁻⁵ / 9.74×10⁻⁷),非交互组无此效应(P=0.127 / 0.06)——交互不是统计假象,而是有结构的选择性增益。
来源:原文 Fig. 5,PDF 第 11 页。
图 5 · 群体编码结构在两个 delay 之间断裂。 A 是 coding direction 的互相关矩阵(pro 模式算位置、anti 模式算握法),200 ms 窗沿 trial 滑动算出 CD 序列再两两求相关:对角线上 delay1 内部和 delay2 内部各自亮成方块,中间 delay1×delay2 的交叉区域明显发暗——同一信息的群体编码向量换了副面孔。B 把相关系数按 delay1×delay1、delay2×delay2、delay1×delay2 三组平均,第三组显著更低。C 用交叉解码给出行为学式的确认:delay1 训练、delay2 测试,成绩跌回机会线附近。和图 3 合起来读:信息还在(图 3),载体换了(图 5)。
来源:原文 Fig. 6,PDF 第 13 页。
图 6 · 单神经元层面的四类命运。 A 是主图:每个显著调制神经元以 delay1 的 MD 为横轴、delay2 的 MD 为纵轴画点,按位置分成 stable(对角线附近,偏好和深度都不变)、reversed(二、四象限,偏好翻转)、enhanced(对角线与 y 轴之间,深度变大)、attenuated(对角线与 x 轴之间,深度变小)四类。B 给一个 reversed 神经元的实例——anti 模式下 delay1 偏好一种握法,delay2 里换了另一个。C 是比例汇总:平均 33.15% stable、20.33% enhanced、30.03% attenuated、16.49% reversed,两猴两模式格局一致。三分之二的神经元在第二条信息到达后改变了编码规则,这是"交互整合"在细胞分辨率下的样子。
来源:原文 Fig. 7,PDF 第 14 页。
图 7 · CCA 子空间:乱象之下的稳定层。 A 是全部 CCA 成分对的平均典型相关:前八对左右明显高出尾部,最高约 0.8,shuffle 对照(虚线)只有 0.3 左右;每 session 显著的成分对占 75.0%(猴 Y)/65.4%(猴 W)。B 挑四个成分当"伪神经元"画活动:CCA1 在 pro 模式 delay1 分位置、delay2 里同样的分离格局复现,CCA2/CCA3 类似(分离幅度渐弱),到了 CCA30 就杂乱无章——稳定性是排在前面的成分的属性。C 是最直观的对比:前两个 CCA 维度里 delay1(实线)与 delay2(虚线)同一条件的轨迹平行对齐,而 PCA 的前两维里两个 delay 几乎正交。D 用 MD 量化:CCA 成分的 delay1/delay2 MD 紧贴对角线,PCA 成分随机散布。E 的交叉解码确认 CCA 空间里 delay1 训练对 delay2 测试仍显著高于机会。读这张图要抓住"PCA 找方差最大、CCA 找跨期相关最大"这组对照——它说明稳定表征不在默认的低维投影里,得去找才找得到。
来源:原文 Fig. 8,PDF 第 15 页。
图 8 · 稳定子空间由谁贡献:一场反直觉的普查。 A 把每个神经元的编码稳定性(两 delay 活动的 Pearson 相关)与其对 CCA 的贡献指数画成散点——没有可见的关系。B 按稳定性升序排列神经元画贡献曲线,无趋势。C 分别给低稳定组和高稳定组的贡献直方图,分布形状相似。D 是 session 平均:高稳定组的贡献在猴 W 与低稳定组持平(P=0.3401),在猴 Y 甚至更低(P=0.0222)。这张图是群体分析的重要结果:直觉会猜"稳定子空间由稳定神经元构成",数据说不——连那些 delay2 里偏好翻转的神经元,都通过 CCA 的线性重组为稳定编码出了力。作者的模拟(100 个纯不稳定神经元照旧产出共享子空间)说明一种统计组合方式在模型中可行:恰当的权重可以把不稳定变量组合成稳定成分。
讨论与解读边界
顺序提示把单条信息保持与信息整合分开,交互项及跨期解码显示,保留内容并不意味着使用完全相同的群体权重。两种提示顺序的比较有助于区分信息到达与单纯时间推进,仍不能把全部差异归因于一个特定整合回路。
CCA寻找的是最大跨期相关的两组投影,并不证明下游脑区实际使用这组权重。稳定和不稳定单元都能贡献对齐后的信号,是群体读出的统计事实;模拟说明这种组合可能实现,尚非生物机制证明。未提示信息的解码未超过机会水平,也只能说明当前采样与分类器未检出。
思考问题
- 在未参与CCA拟合的提示组合或新session上,共享编码能否保持?
- 若改变第二条信息的可靠性或与第一条信息的冲突程度,跨期编码重组是否可预测?