A04 · Activity in primary motor cortex related to visual feedback
Suway, S.B., & Schwartz, A.B. (2019). Cell Reports, 29, 3872–3884. doi:10.1016/j.celrep.2019.11.069
旋转视觉反馈和暂时隐藏光标的联合操纵表明,M1 的部分运动末期活动依赖视觉反馈。物理运动方向和显示方向的可读信息具有不同的时间过程。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
初级运动皮层通常被放在运动输出通路中理解,但其活动并不等于直接复制肌肉命令。伸手过程中,动物会看到手或光标相对目标的运动,视觉反馈既能用于修正轨迹,也可能改变皮层活动的形态。于是,同一神经元对某方向伸手的响应可能混合了实际运动方向、屏幕上显示方向和反馈诱发的调制。若实验始终让手与光标保持一致,这些解释在数据上完全重合;若只在运动结束时观察响应,也难以判断它属于运动计划、执行输出,还是刚刚到达的视觉信息。
虚拟显示为拆解这种混淆提供了两类互补操纵。视觉运动旋转可以固定实际手的运动,同时改变光标在屏幕上的方向,从而比较神经调谐更贴近哪一个坐标。暂时隐藏光标则能在不改变任务目标的条件下撤去反馈,检验同一响应成分是否仍然出现。单靠旋转仍不够,因为适应本身会改变神经活动;单靠隐藏也不够,因为不可见条件可能同时改变运动学和肌肉活动。把两者结合,并同步测量 EMG 与运动轨迹,才能较有约束地判断末段神经调制是否主要依赖视觉反馈,而不是输出信号的简单变化。
Suway 和 Schwartz 在这项工作中进一步把响应分成多个时间成分。早期成分可能保留视觉运动适应的印记,晚期成分则可能更受反馈到达与否影响;同一个神经元不同峰的敏感性未必一致。研究因此关心三个相互衔接的问题:旋转适应后 M1 的方向调谐更贴近手还是光标,隐藏光标后哪些时段的调制会减弱,以及群体解码能否在反馈缺失时继续区分物理方向与显示方向。这一背景决定了论文不是在争论 M1“究竟有没有视觉”,而是具体估计视觉反馈在何时、以何种方式参与 M1 活动,同时保留运动学与肌电变化作为必须检查的解释。
研究思路
研究结合视觉运动旋转和光标可见性操纵,比较不同时间成分的方向调制。EMG和群体解码用于检查神经变化与肌肉、物理方向及显示方向的关系;分时段分析描述的是所测响应结构,不预设整个M1只有离散状态。
方法
两只成年雄性恒河猴 R 和 P。R 植入两片 96 通道 Utah 阵列(M1 手臂区),记录 5 个神经生理数据集(3 个 90°、1 个 67.5°、1 个 45° 旋转),平均每天记录 143 个神经元(SD 43.6,共 715 个);P 植入一片阵列,记录 4 个数据集,因阵列信号衰退仅测试 45° 旋转(平均每天 35.5 个,共 142 个,分析时合并)。任务为 VR 中心向外伸手(center-out),共 16 个目标,半径 6 cm,在垂直平面呈圆形排布,但要求三维控制(前后超出目标平面不给奖励);中心保持 500–700 ms,600–800 ms 内光标触碰目标即算成功并获奖励。实验移除了末端保持要求,因为无视觉反馈时停在目标框内过难,此项规则适用于所有试次。旋转在 15–25 次试次内渐增至设定值,随后在整个组块(block)中保持固定,约 100 次试次的适应期数据被剔除。50% 为不可见试次,事前不给任何提示。肌电记录 6 块肌肉(前三角肌、中三角肌、肱二头肌、肱三头肌、桡侧腕屈肌、尺侧腕伸肌),猴 R 与神经信号同步记录,猴 P 单独分次记录。分析流程:放电率采用 20 ms 时间窗、平方根变换、50 ms 标准差高斯平滑,并逐窗减去跨目标均值以凸显方向调谐;各试次依据因子分析(以时间窗为维度)划分为 4 个时段(分别对应反应时与早期运动、运动中段、峰值速度附近、运动末端);每个时段内仅分析余弦拟合 R² > 0.5 的神经元(四个时段入选比例分别约为 60%、50%、30–40%、30–40%);择优方向(PD)差异借助 1000 次自助法(bootstrap)的 95% 置信区间判断显著性;解码采用岭回归反向回归,仅用可见试次拟合模型,手部运动方向前移 140 ms(肌电前移 100 ms)。
主要结果
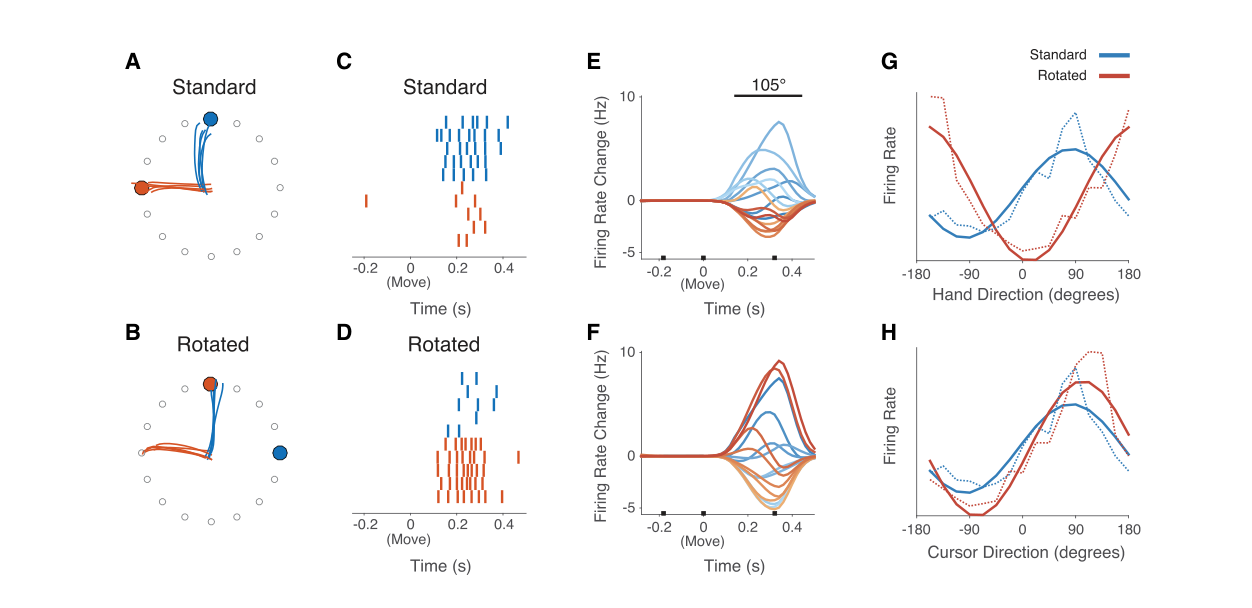
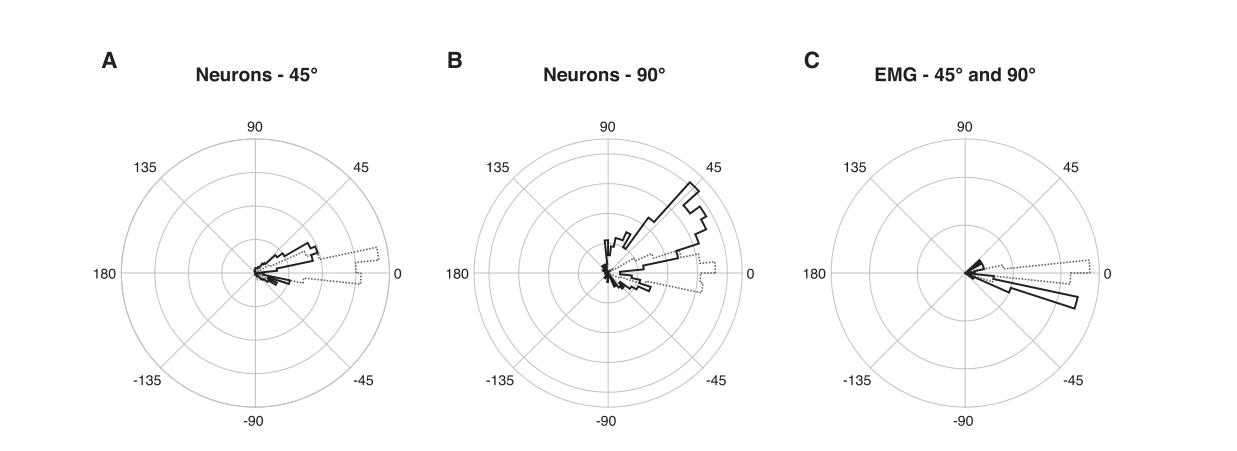
首先看旋转适应后的神经编码。以 90° 组块中的示例神经元为例,该神经元在标准组块中对向上伸手放电较强;适应后,朝同一物理方向伸手的放电明显减弱,反而在屏幕显示为“向上”的向左伸手试次中强烈放电。若按实际手部方向计算,其择优方向偏移了约 105°(95% 置信区间 [96°, 113°]);若按屏幕光标方向计算,两组块的调谐曲线几乎重合。群体水平上,择优方向的偏移量随旋转角度增大而增加(90° 组块显著大于 45° 组块),最常见的偏移量约为旋转角度的一半;将各组块前半段与后半段分开计算,所得分布一致,表明该分布并非源于适应不充分,而与视觉空间和物理运动参数的混合表征相符。肌电对照显示,肌肉的择优方向在组块间基本不变(少数具显著差异的通道还略呈反向偏移),说明大幅度的正向择优方向旋转发生在皮层水平,未出现在肌肉输出端。
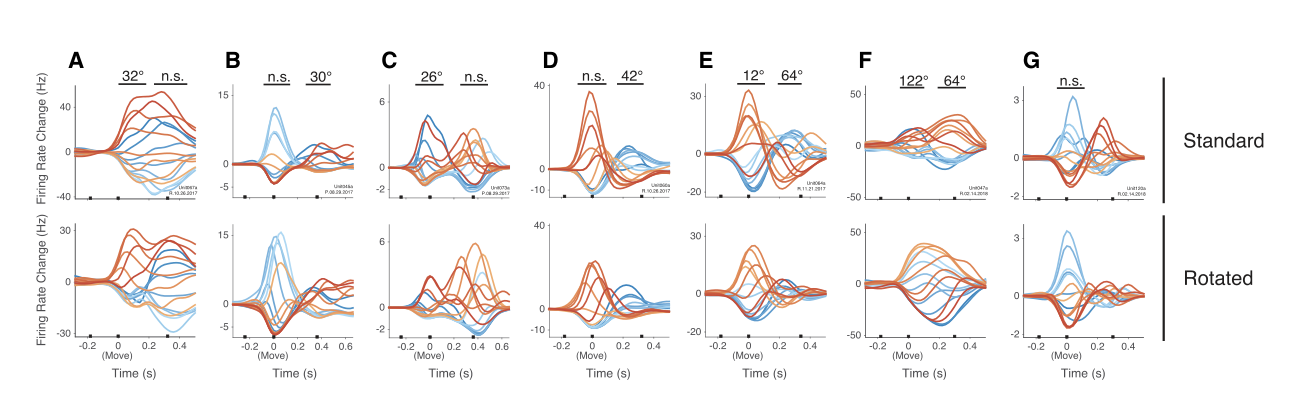
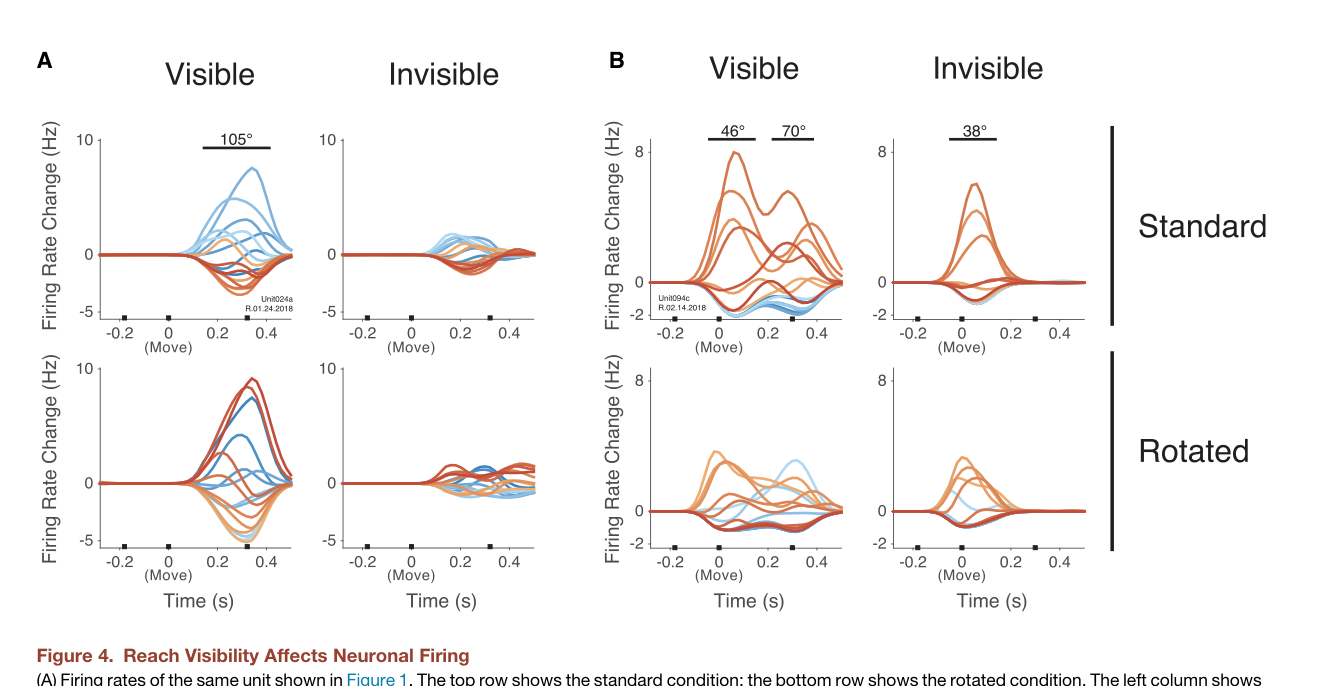
其次是光标可见性实验。多峰响应神经元的不同反应峰对旋转适应表现出差异化变化:早峰改变而晚峰稳定、晚峰改变而早峰稳定、两峰均改变,或呈现一强一弱的反应,支持按时段划分神经成分的做法。群体统计结果显示:在时段 1(反应时),无论光标可见与否,出现显著正向择优方向偏移的神经元比例均较高;时段 2 略有下降;到了时段 3 与 4(峰值速度附近及运动末端),可见试次中该比例上升,而不可见试次中显著下降。这一模式表明运动末端对适应敏感的成分由视觉反馈驱动,时段 1 和 2 的适应敏感成分则独立于视觉反馈,体现了运动适应本身的记忆印记。从响应幅度来看,在时段 4 可见试次中呈现正向择优方向偏移的神经元,在不可见试次中调制深度普遍下降,部分神经元接近完全消失。群体解码进一步印证了上述调谐统计:利用可见试次训练的“显示方向”解码器在跨组块测试中表现良好(5 折交叉验证 R²:y 分量为 0.91/0.94,x 分量为 0.90/0.94),积分推导出的运动轨迹在标准组块呈直线,在旋转组块中整体偏转 90°;在不可见试次中,轨迹前段保持正常,但运动开始 100–150 ms 后幅度衰减、目标朝向分辨能力瓦解、末端轨迹缩短且出现扭曲。定量拟合表明:时段 1 和 2 的解码输出与物理方向呈良好正弦关系,两组块的相位差约为 90°(置信区间 [78°, 92°]);时段 4 的拟合则明显退化,相位关系不再一致(猴 P 在 45° 条件下早期相位差为 25°,置信区间 [12°, 37°];时段 4 的置信区间 [-19°, 21°] 包含零点)。相比之下,“物理方向”解码器在所有条件下均保持稳定(R² 介于 0.87 与 0.93 之间),包括不可见试次。最后排查运动学与肌电层面的混杂因素:运动学轨迹在四种条件下高度一致(速度向量场相关系数 0.96–0.99);肌电唯一的系统性差异在于运动末端的主动肌第二次放电猝发(三头肌最明显)在不可见条件下减弱,时段 3 和 4 的平均幅度下降约 14%,时段 4 下降约 23%,其降幅显著小于神经调制深度的降幅。这表明皮层末端成分的消失主要不能归因于运动学或肌肉活动的变化,尽管不能完全排除外周变化的潜在影响。
逐图解读
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 任务与“跟随光标”的示例神经元。 (A, B) 标准与旋转组块中的手部轨迹及屏幕显示的目标位置——针对相同的物理伸手动作,屏幕坐标系被旋转了 90°;(C, D) 放电光栅图(raster):标准组块中向上试次(蓝)放电较强,旋转组块中放电最强的转变为屏幕显示为向上的向左试次(红);(E, F) 16 个运动方向的外周刺激时间直方图(PSTH);(G) 以实际手部运动方向计算的调谐曲线,择优方向差异约为 105°;(H) 以屏幕光标方向计算,两组块的调谐曲线几乎重合。该图表明在单神经元水平上存在对屏幕视觉呈现方向的直接表征。
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · 多峰响应各成分的相对独立性。 图中展示了七列共七个神经元的放电特征,每列上排为标准组块、下排为旋转组块,黑色横条标出比较调谐特性的分析时窗,数值为显著的择优方向差(n.s. 表示差异不显著):(A)(C) 早期成分改变、晚期成分维持不变;(B)(D) 呈现相反模式;(E)(F) 两成分均改变但幅度不同;(G) 早期成分不变而晚期成分幅度显著下降。这种分立变化支持不同时间成分对实验操纵具有不同敏感性,不过尚不能直接证明各成分由完全独立的神经机制生成。
来源:原文 Fig. 3,PDF 第 5 页。
图 3 · 择优方向变化的群体分布与肌电对照。 (A) 45° 旋转组块(两只猴数据合并):多数显著变化为正向偏移,峰值约在旋转角度的一半处;(B) 90° 旋转组块(仅猴 R):分布整体向右偏移,出现显著变化的神经元比例更高;(C) 肌电记录(合并两只猴与各旋转角度):肌肉的择优方向基本保持不变,少数显著变化甚至略呈反向。这表明大幅度的正向择优方向偏转发生在大脑皮层,未见于外周肌肉。图中每个神经元或肌肉通道在各分析时段各贡献一个数据点(至多四个)。
来源:原文 Fig. 4,PDF 第 6 页。
图 4 · 光标可见性操纵下的两个示例神经元。 (A) 图 1 所示神经元:在可见试次(左列)中表现出完整的强方向调制与适应效应,在不可见试次(右列)中放电整体明显减弱;(B) 另一个示例神经元:可见时呈现双峰放电,两个峰均受旋转适应调制(第二峰偏移 70°,第一峰偏移 46°);在不可见时第二峰消失,第一峰依然保留且仍具适应效应(偏移 38°)。此例说明第一峰独立于视觉反馈(对应运动计划或执行),第二峰则由反馈驱动。
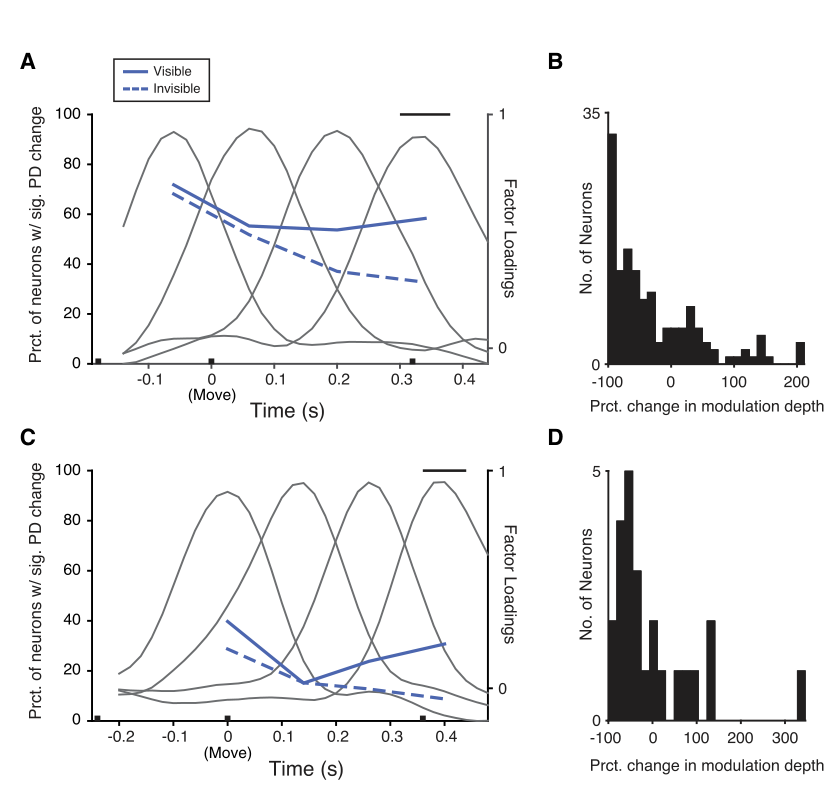
来源:原文 Fig. 5,PDF 第 7 页。
图 5 · 群体时间进程:适应敏感成分对可见性的依赖。 (A) 猴 R 的 90° 旋转组块:各时段内具有显著正向择优方向偏移的神经元比例,可见试次(实线)与不可见试次(虚线)在时段 1 和 2 重合,在时段 3 和 4 明显分化;黑色高斯曲线标注了因子分析载荷对应的各时段位置;(B) 时段 4 可见试次中呈现正向择优方向偏移的神经元,在不可见试次中的调制深度变化分布直方图——数值普遍负移,部分神经元调制深度降至接近于零;(C, D) 猴 P 在 45° 条件下的对应结果,变化趋势一致但幅度较小。结果表明反馈相关成分主要集中在运动末端;部分神经元在缺失视觉反馈时仍维持与扰动相关的调制(分布直方图右侧长尾),反映出不同神经元对反馈缺失的敏感性存在异质性。
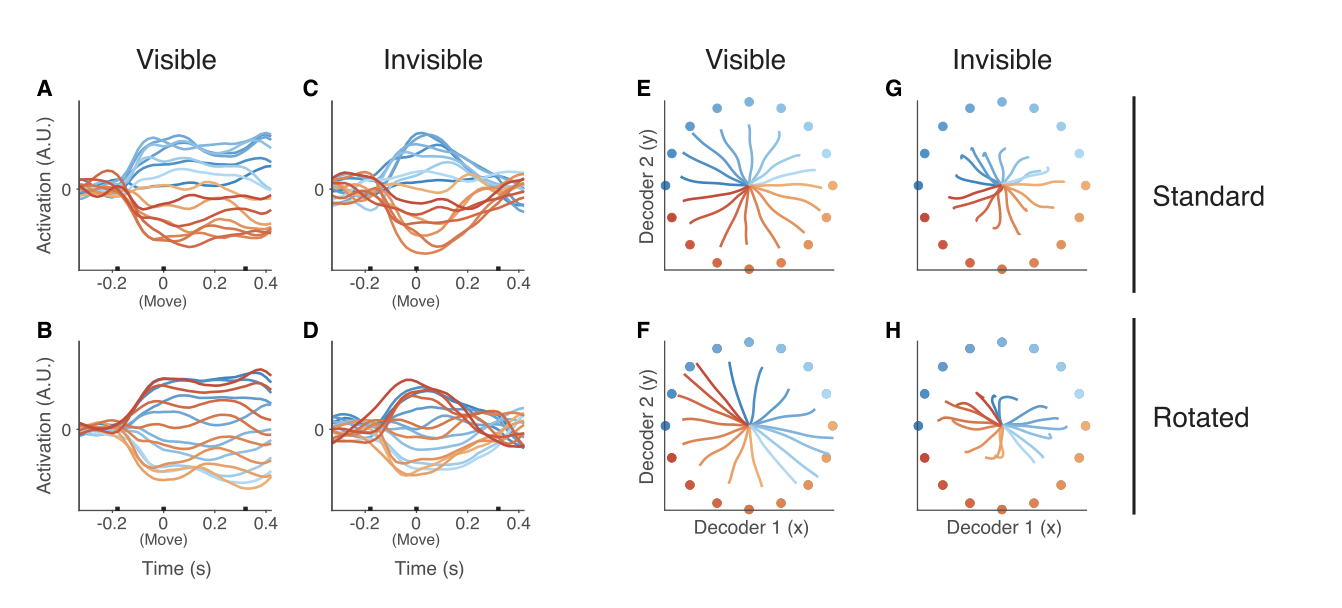
来源:原文 Fig. 6,PDF 第 8 页。
图 6 · 显示方向的群体解码。 (A, B) 可见试次:标准与旋转组块中 y 轴分量的解码输出——使用同一组固定权重,解码出的目标空间分布在旋转组块中整体重排,交叉验证 R² 分别为 0.91 与 0.94;(C, D) 不可见试次:解码信号前段保持正常,后段幅度明显衰减且目标排序紊乱;(E–H) 将 x、y 两路解码器的输出按类似群体向量的方式积分推导轨迹:标准组块轨迹笔直,旋转组块轨迹偏转 90°;不可见试次的轨迹起初与可见试次重合,随后末端缩短并出现失真。这表明 M1 群体活动中包含了可被读出的视觉呈现方向信息,且该信息的可读性依赖视觉反馈的持续输入。
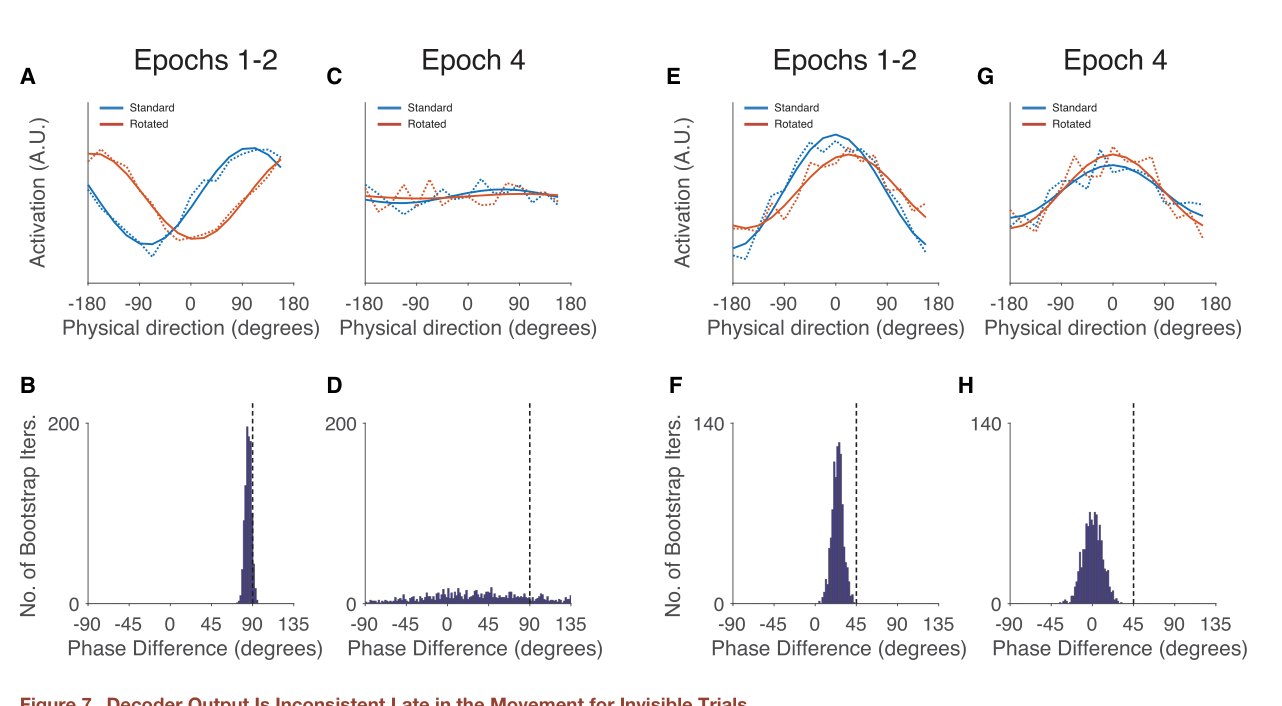
来源:原文 Fig. 7,PDF 第 9 页。
图 7 · 时间结构的定量验证。 (A) 时段 1 和 2 的平均解码输出作为实际运动方向的函数(猴 R,90° 旋转,不可见试次):标准组块(蓝)与旋转组块(红)均与正弦曲线良好拟合,两者的相位差约为 90°;(B) 自助法分布检验确认该相位差稳定(95% 置信区间 [78°, 92°]);(C, D) 时段 4 的对应拟合退化且相位关系不再一致,表明晚期运动信息在不可见试次中无法可靠读出;(E–H) 猴 P 在 45° 条件下的对应分析(x 轴分量):早期相位差为 25°(95% 置信区间 [12°, 37°]),而时段 4 的置信区间 [-19°, 21°] 跨越零点。上述定量检验为不同时段的解码表现提供了置信区间支持。
讨论与解读边界
旋转操纵用于区分手与光标方向,可见性操纵用于检验视觉反馈的贡献。两者结合,比单纯观察方向调谐更能约束解释:运动末期有一部分神经调制在隐藏光标后减弱,不能全部归为输出给肌肉的运动信号。
原文采用分时段分析来描述响应成分,不应据此断言所有 M1 活动都是离散跳变,或否定连续群体动力学。隐藏光标还伴随部分末端运动与 EMG 变化,视觉依赖性不等于纯视觉来源,更不等于该成分对运动没有作用。不同旋转角度、动物和时段的证据强度也不相同。对 VR/BCI 的直接启示是:显示反馈本身会改变用来解码的神经活动,需把反馈条件纳入模型与验证。
思考问题
- 在保持末端运动学与 EMG 尽可能相同的条件下,隐藏光标还会使同一响应成分减弱吗?
- 若只改变反馈延迟而不改变可见性,晚期成分的时序能否随之移动?