E02 · The computational and neural basis of voluntary motor control and planning
Scott, S.H. (2012). Trends in Cognitive Sciences, 16, 541–549. doi:10.1016/j.tics.2012.09.008
这篇综述用最优反馈控制解释任务相关的快速纠正,并梳理人和猕猴实验对目标依赖、状态估计及肢体动力学处理的支持。所提出的脑区分工是计算框架下的工作假说。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
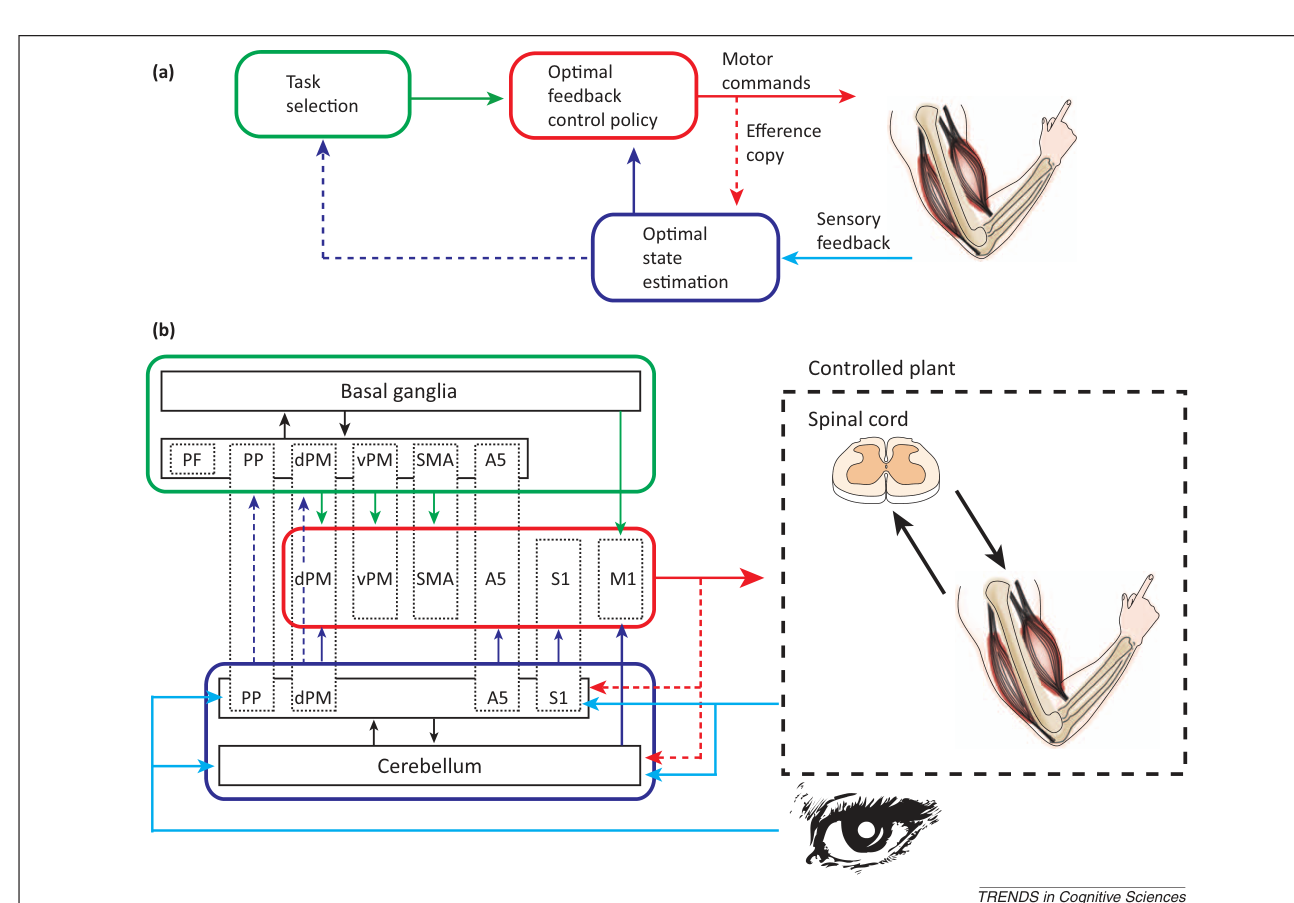
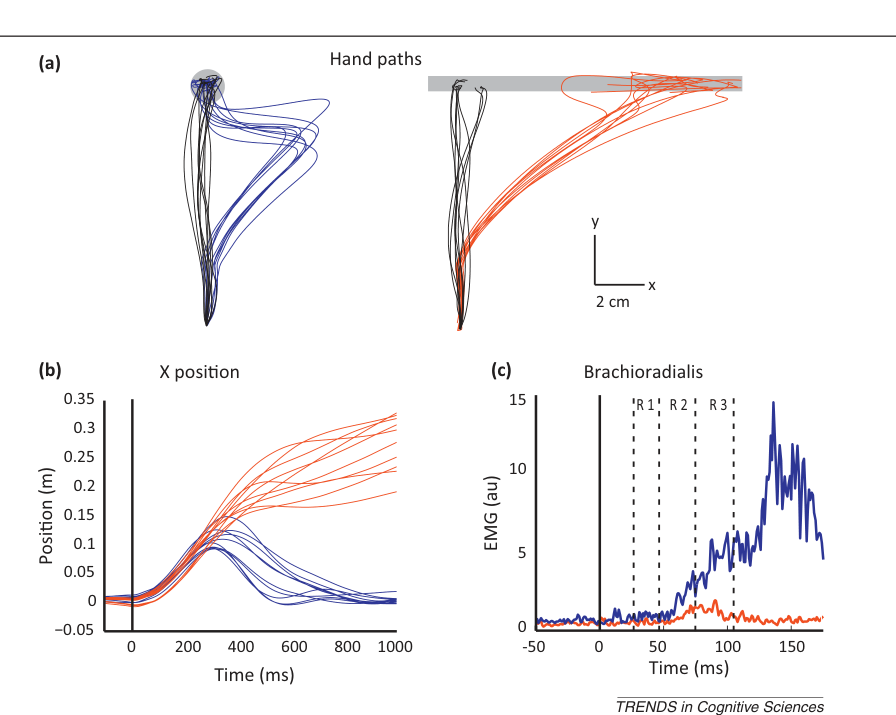
自愿运动常被理解为先规划一条空间轨迹,再由低层反射机制处理意外扰动。但日常动作中的纠正并不总是回到同一条预设轨迹:当目标是圆形时,手会纠正回圆心;当目标是长条形时,手只需回到长条上满足任务要求的任意位置。如果反馈响应能够随目标几何、双手协同规则和当前任务代价灵活调节,它就表现出明确的任务依赖性,无法仅用局部肌肉牵张或固定反射回路来解释。最优反馈控制理论由此将控制策略、状态估计与任务目标统一在同一计算框架内。
快速纠正响应还能用于检验中枢对身体动力学内部模型的利用。通过特定组合肩肘力矩,即使肩部肌肉未被直接牵拉,在长潜伏期仍会出现与肩部力矩相符的响应,表明控制系统在实时处理多关节动力学,而非单纯转发局部本体感觉输入。初级运动皮层(M1)中相应较早的放电分化为经皮层通路提供了生理证据。在力场适应过程中,反馈增益甚至可在手进入力场区域之前提前调节,说明运动学习不仅改变前馈计划,也重塑在线反馈控制。由于不同潜伏期包含多种信号来源,不能将特定时间窗直接对应于唯一孤立的神经回路。
Scott 的综述基于人类与猕猴实验,主张将反馈纠正视为自愿控制过程的直接采样,而非与自愿运动割裂的独立反射。文章进一步将状态估计、控制策略与任务选择映射到分布式脑网络中,讨论小脑、顶叶、前运动区、M1、脊髓与效应器之间的相互协作。其意义在于提供系统的计算表述与实验范式,而非给出一张确定的解剖定位图。最优反馈控制对行为的良好解释力不等于找到了唯一的神经实现,跨物种证据也不宜直接等同于猕猴虚拟现实中的实验结果。
研究思路
综述围绕目标依赖、多关节动力学处理、运动学习与神经通路,组织人类与猕猴的实验证据。机械或视觉扰动后的肌电时序是主要比较依据,脑区分工图则作为工作假说提出;分析时不宜仅凭特定潜伏期窗口孤立判定神经回路。
主要结果
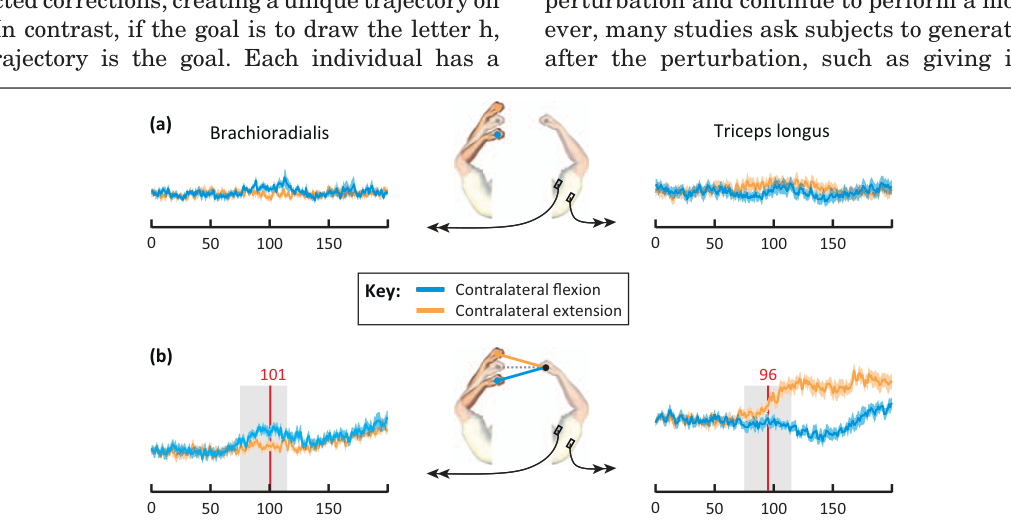
第一个论点:反馈纠正具有目标导向性(goal-directed)且保持在线运行。伸向圆形目标时受到关节扰动,纠正动作将手拉回圆心;同样的扰动施加于伸向长条形目标的运动时,纠正仅将手带到长条上离扰动位置最近的点,两种条件下的肌电差异在扰动后 70 ms 内即可检出。视觉扰动同样遵循目标几何形态,且纠偏幅度会根据“误差是否持续损害任务成功”进行动态调节。双手协同任务进一步提供了支持:两手各自的控制回路分属不同半球,但当两手共同持握一根连杆时,单手受扰后另一侧未受扰的手在不到 100 ms 内即产生方向正确的代偿肌电;而在两手独立执行非耦合任务时,未检出类似的跨肢肌电响应。这些结果共同表明,运动纠正并非预设固定轨迹后的僵化反射,其轨迹形态由当前任务目标实时决定,并不强制要求手部返回预定轨迹;在速度依赖型力场中运动早期的过度代偿,恰好符合最优控制理论预测的低能耗策略。
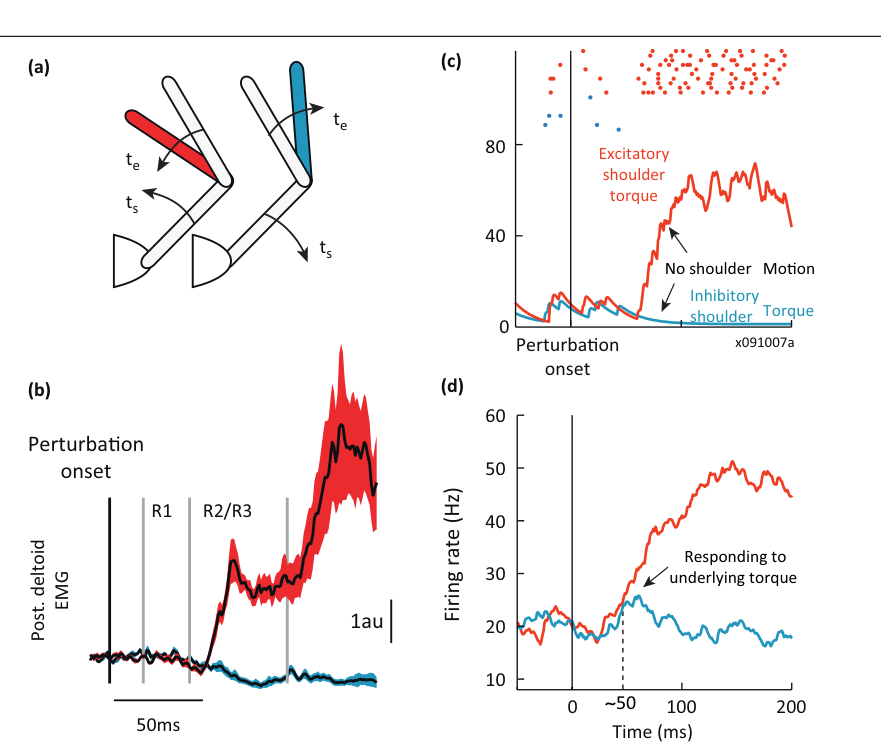
第二个论点:反馈纠正整合了多关节动力学内部模型(internal model)。Kurtzer 等的实验通过设计肩肘关节力矩组合,实现“肘部大幅运动而肩部几乎静止”。此时肩部单关节肌完全未受机械牵拉,但在长潜伏期(long latency)时间窗内仍出现对抗基础肩关节力矩的显著响应:短潜伏期仅跟随局部关节位移,长潜伏期则计算出了产生该运动所需的关节力矩。M1 记录显示,肩相关神经元在扰动后 20–50 ms 仅反映扰动物理特征,到约 50 ms 开始对肩部力矩表现出选择性放电,比肩部肌肉的分化响应提早约 20 ms,为经皮层通路处理多关节动力学提供了生理证据。环境适应研究同样支持内部模型假说:力场学习会同时更新前馈指令与反馈增益,甚至在手部进入力场前,长潜伏期增益已完成预先设定;若扰动不影响最终任务完成,纠正响应则被主动下调。
第三个论点:快速反馈纠正并非由强扰动触发的异常反应。将机械扰动幅度缩小至自然运动变异水平时,扰动量与肌电响应的线性回归仍然穿过原点,支持反馈控制持续参与日常自然运动,但这一连续性并未直接证明二者采用完全相同的神经回路。在随机点运动决策任务中,长潜伏期增益随感觉证据积累而实时调整;空间目标突变后 100 ms 内,反馈纠正即可实现整体转向。据此 Scott 提出:反馈纠正与自愿控制并非割裂的两套机制,前者是闭环控制器在受到外加扰动时的直接行为采样。
第四个论点是神经实现的工作草图:精细调控的反馈行为主要落在长潜伏期而非短潜伏期窗口,表明脊髓上中枢(包括经皮层与皮层—小脑环路)起主导作用;灵长类复杂运动技能的演化可能促成了控制重心的皮层化;而 M1 仅提供皮质脊髓束约四成的轴突,运动控制无法简化为 M1 的单一自上而下指令。文章引用同期 Churchland 等(2012)的工作指出:感觉反馈对 M1 活动的动态调节,促使学术关注点从“M1 编码何种运动参数”转向“M1 群体动力学如何被感觉反馈动态塑造”。
逐图解读
来源:原文 Fig. 1,PDF 第 2 页。
图 1 · OFC 框架图与神经实现草图。 (a) 标准最优控制框图:控制策略(control policy)将状态变量转换为运动指令,最优状态估计利用传出副本与带延迟的感觉反馈估算实时状态,任务选择决定行为目标并选定对应策略。(b) 全文的计算架构映射:三个计算环节映射在分布式脑网络中——基底核经皮层环路参与任务选择,小脑主导状态估计,前额叶、后顶叶、背侧/腹侧前运动区、SMA、第 5 区、S1 与 M1 多数参与多个环节,脊髓与肌肉肢体归入受控对象。该图代表理论工作假说,框定了后续研究探讨“不同脑区贡献何种计算环节”的理论框架。
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · 目标形状决定纠正方向。 Nashed 等的实验:黑线表示无扰动伸手轨迹,蓝线为伸向圆形目标受扰后的纠偏(手部回到圆心),红线为伸向长条形目标的纠偏(手部回到长条上离扰动后最近的点)。(b、c) 两种条件下的手部路径在扰动后约 200 ms 出现明显分流,肘屈肌肌电差异在 60–70 ms 即可检出。此图展示快速反馈纠正对任务几何边界的适应性,体现了最小干预原则的时序特征——纠正旨在达成任务目标,而非死守单一空间轨迹。
来源:原文 Fig. 3,PDF 第 4 页。
图 3 · 双手任务中的跨肢纠正。 (a) 对照条件:两手执行独立非耦合任务,左手受机械扰动时,右手(肱桡肌、肱三头肌长头)未检出显著肌电反应;(b) 实验条件:两手共同持握同一根连杆维持空间目标,扰动左手后,右手在约 100 ms 内(红线标注两块肌肉各自的最早分化时刻)产生方向正确的代偿性肌电变化。两侧半球在数十毫秒内依据任务耦合状态切换跨肢控制,说明反馈增益是在全局任务层级设定,而非各肢体孤立调节。
来源:原文 Fig. 4,PDF 第 6 页。
图 4 · Long latency 懂肢体动力学。 (a) 实验设计:肩肘关节同时施加阶跃力矩,参数经过调整使得肘关节大幅转动而肩关节维持静止。(b) 尽管肩部伸肌(三角肌后束)既未伸长也未缩短,长潜伏期窗口内仍表现出清晰的兴奋与抑制响应,极性对应底层的肩关节力矩;短潜伏期则仅反映局部关节位移。(c、d) 猕猴 M1 对应神经记录:单个肩相关神经元和神经元群体均在约 50 ms 开始对肩部力矩产生选择性放电,比肌肉反应早约 20 ms。上下两排数据共同表明,经皮层通路整合了肢体动力学内部模型,并非仅仅进行感觉信号的直接传递。
讨论与解读边界
目标形状、双手协同规则和机械扰动改变快速反馈响应,说明反馈增益具有任务依赖性。长潜伏期响应还反映多关节动力学,支持反馈控制利用身体与环境信息,而不仅是局部肌肉牵张。
图2、图3主要是人的实验,图4将人的肌肉响应与猕猴M1记录并置,不能全部写成猕猴VR证据。最优反馈控制是对行为的计算解释,拟合良好不等于已定位其唯一神经实现。小扰动响应的连续性支持正常运动与纠正共享控制过程,但不能单凭过原点的回归证明两个条件使用完全相同的回路。
思考问题
- 同一反馈扰动在不同任务代价下引发不同响应时,怎样区分控制策略变化与状态估计变化?
- 在猕猴VR中分别改变视觉延迟和目标容许范围,快速纠正的时序与幅度会如何变化?