E01 · Neural manifolds for the control of movement
Gallego, J.A., Perich, M.G., Miller, L.E., & Solla, S.A. (2017). Neuron, 94, 978–984. doi:10.1016/j.neuron.2017.05.025
这篇综述以低维神经流形组织运动准备、执行和学习的证据。它强调单细胞响应与群体模式可以同时成立,并讨论网络连接如何约束群体活动;这是一套有实验支持但仍需检验的解释框架。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
运动皮层研究常用单神经元调谐解释行为,但许多单元在准备、执行和学习中的响应并不符合简单、稳定的编码标签。神经流形框架从另一个层面提问:群体活动是否主要由少数共同变化的模式组成,使高维状态落在较低维结构附近?如果这一假设成立,单细胞层面的复杂响应就可以与群体层面的低维轨迹共存。这种视角并非否定调谐,而是把单个单元的响应模式与其在群体中的协变结构区分开。
该框架也改变了几类经典问题的分析方式。例如准备活动显著增强却未立即引发运动,可以相对于特定肌肉或跨区读出,区分 output-potent 与 output-null 空间,而不是判定准备阶段不起作用。在技能学习中,流形结构有助于检验动物究竟是重新组合既有模式,还是必须产生全新的共同变化。BCI 解码映射已知,适合检验这类几何约束;网络模型则进一步考察连接与正则化条件能否产生类似模式。不过,输出零空间的划分始终取决于所选读出,模型中的连接约束也不能直接等同于脑内突触机制。
Gallego 等的 Perspective 首先定义 neural mode、latent activity 和参与权重,再梳理运动准备、执行、BCI 学习及网络模拟的证据。文章旨在说明低维表征如何协助理解复杂的单元活动、已有协变结构如何影响学习难度,以及不同任务是否可能共享更大的流形。文章同时讨论了非线性、任务间通用性和因果来源等开放问题。阅读时应区分概念图、示例数据、引述实验和作者解释,不能把准备/运动正交、短期学习限制和模型连接约束等同于已闭合的因果证明。
研究思路
综述先定义 neural mode、latent activity 和参与权重,再系统组织准备、输出零空间、BCI 学习及网络模型的证据链。阅读时需区分概念示意、作者示例数据、引述实验与理论解释;四张图表分别对应不同研究维度,并非来自同一连续实验。
主要结果
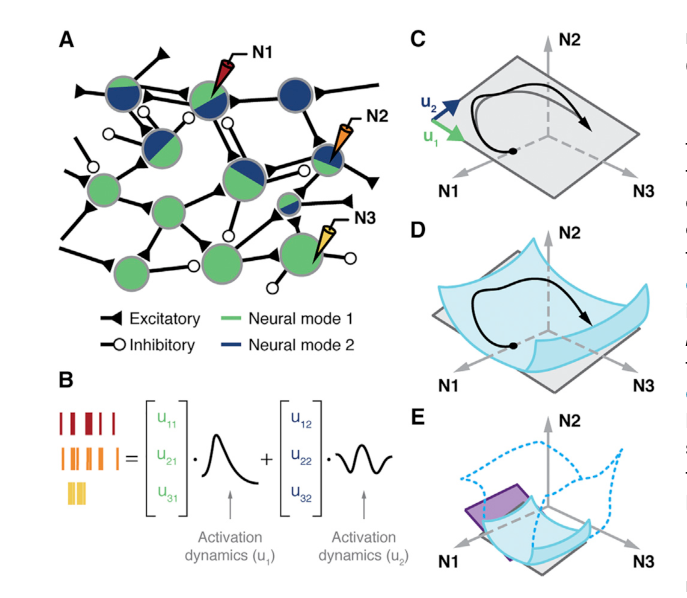
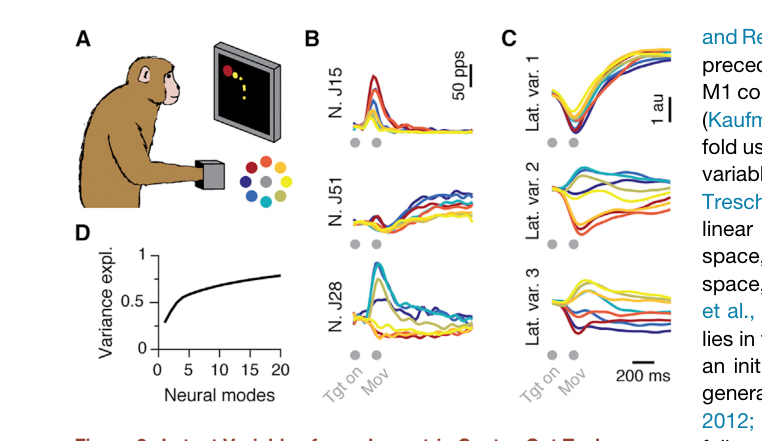
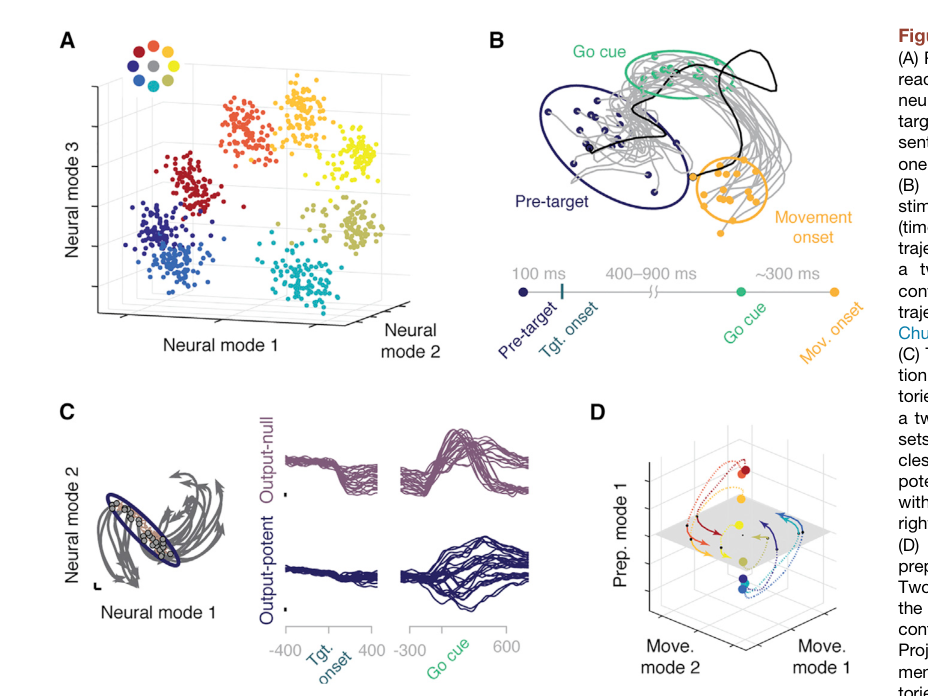
综述的核心论点包含四项主要内容。第一是生成模型本身:第 i 个神经元的活动为 ni(t) = Σj uij Lj(t) + εi,其中潜在变量 Lj 是 neural modes 的时间激活,参与权重 uij 与网络内部连接有关。作者呈现的等长手腕任务数据表明:提取三个主要 modes 的激活曲线,即可追踪 68 个神经元群体活动的主要变化;从目标呈现到运动发动相隔约 140 ms,前十个 modes 共同解释约 70% 方差。第二是利用流形空间化解“准备—执行悖论”:Kaufman 等(2014)将六维流形线性映射到三个肌肉协同样本,分离出驱动肌肉的 potent space 和不驱动肌肉的 null space,发现准备期主要活动成分位于该读出定义的 null space 中,为准备活动不立即产生外在运动提供了一种读出层面的解释;Elsayed 等(2016)进一步表明准备与运动活动分别占据相互正交的子空间,动力学轨迹从一个演化到另一个。Flint 等(2016)在 BMI 数据中提供了辅助支持:在具体读出定义下,potent space 活动比 null space 更稳定。
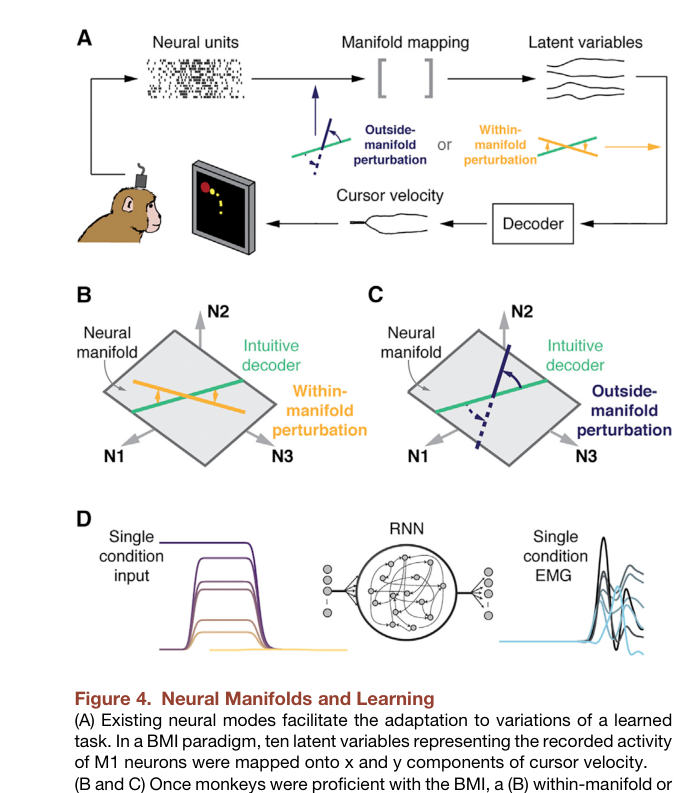
第三项论点涉及运动学习:Sadtler 等(2014)在 BMI 实验中让猴子用十个潜在变量控制光标,随后对解码器引入扰动。若扰动只需重新组合既有 modes(within-manifold),猴子一个 session 内即可适应;若要求形成新的 modes(outside-manifold),学习难度则显著增加。后续会议摘要(Oby 等,2015)指出,新模式并非无法习得,而是需要在多日渐进引导下逐步形成。在网络模拟方面,Sussillo 等(2015)训练 RNN 输出伸手任务的七条肌肉活动,引入平滑与正则化约束的网络能更好复现实验测得的潜在变量;Hennequin 等(2014)的平衡网络未针对具体运动输出训练,仅维持内部动力学稳定,同样自发形成了阻尼振荡式潜在模式,支持 modes 在很大程度上源于网络连接固有的动力学属性。
第四项论点探讨流形普适性与开放问题。低维表征不限于运动皮层:前额叶、V1、嗅球、丘脑、大鼠顶叶、海兔足神经节及斑马鱼全脑的群体活动都能用少数潜在变量解释。Okun 等(2015)在感觉皮层提供了实证支持:单神经元与群体的相关性能够预测光遗传扰动下的响应幅度及突触数量估计,且与因子分析第一因子的参与权重强相关,为“连接决定 modes”提供了间接证据。文章同时指出两处核心开放问题:其一是非线性问题,实验室标准任务中线性工具表现良好,可能是动力学仅遍历了流形的局部平直区域,复杂行为可能需要 LLE、Isomap 或自编码器等非线性工具;其二是多任务流形结构,不同任务对应独立流形还是同一个“通用流形”的不同采样区域,仍缺少系统检验,目前仅有正交准备/运动流形等个别先例。
逐图解读
来源:原文 Fig. 1,PDF 第 2 页。
图 1 · Neural manifold 假说的概念图。 (A) 用卡通神经元示意 participation weight:蓝绿两色的相对面积代表两个 latent variables 对各神经元活动的贡献比例,表明每个 mode 动员多神经元,单神经元也可参与多个 mode。(B) 三根神经元的放电时间序列展示为两个 latent variables 的线性组合,对应正文式 1 的图形表达。(C) 核心几何:以三根神经元的放电率为轴构成 neural space,群体活动轨迹(黑线)贴近由 u1、u2 两个 modes 张成的灰色平面展开,该平面即 neural manifold。(D) 真实流形可能是弯曲的非线性曲面(蓝),线性方法提取的是任务特定区域的局部平直近似。(E) 两个任务的流形(灰、紫两平面)究竟是同一个大流形的两处局部,还是各自独立的流形,成为后续跨任务研究(如 Gallego 2018)的核心问题。
来源:原文 Fig. 2,PDF 第 3 页。
图 2 · 自家数据演示:等长腕部任务中的 latent variables。 (A) 猴子执行八目标等长中心到达腕任务,目标颜色编码贯穿全图。(B) 68 个记录神经元中三个代表单元的 PSTH,单细胞响应呈现多样化特征。(C) PCA 提取的前三个主要 neural modes 激活曲线:目标呈现(Tgt on)后约 140 ms 运动发动(Mov),三个 latent variables 的时间过程清晰分离不同目标条件,表明多样的单神经元放电可由这几条曲线的不同加权混合生成。(D) 方差解释曲线随 mode 数量增加而上升,前十个 modes 达约 70%。此图展示生成模型对实际神经记录数据的拟合能力。
来源:原文 Fig. 3,PDF 第 4 页。
图 3 · 运动皮层的四步证据链。 (A) Santhanam 2009:PMd 延迟期准备活动投影到三维因子分析流形上,按目标聚集为八组彩色点簇,每个点代表 delay 期单个 trial 的活动,体现准备状态在低维空间的聚类特性。(B) Churchland 2010b:目标呈现后群体活动的 trial 间变异性受到抑制,Pre-target 置信椭球到 Go cue 时显著收缩,群体轨迹在流形上趋于集中。(C) Kaufman 2014:null space 为准备活动提供读出隔离——灰色轨迹表示各条件的群体演化,紫色椭球内圆圈为准备期初值,右侧分别给出相对肌电定义的 null 与 potent 潜在变量,准备期活动主要落在该 EMG 线性读出定义的 null space 中。(D) Elsayed 2016:准备模式(彩色连线)与运动模式(灰平面)互相正交,全轨迹投影到运动流形重现 (C) 的动力学形态。四图构成从“null space 设定初值”到“动力学演化推入运动子空间”的证据链。
来源:原文 Fig. 4,PDF 第 5 页。
图 4 · 流形与学习:既有 modes 好用,新 modes 难学。 (A) Sadtler 2014 的 BMI 设置:十个 latent variables 映射到光标速度的 x、y 分量。(B) within-manifold 扰动仅重新组合既有 modes 的相对激活,猴子在一个 session 内即可适应。(C) outside-manifold 扰动要求形成全新的协同激活模式,学习难度显著上升。(D) Sussillo 2015 的 RNN:以准备活动为输入生成条件特异的肌电输出模式,加入网络约束后,模型 latent variables 与实验数据高度相似,表明网络连接结构可以约束流形。不过该结果未证明生物系统使用最少突触,也不能直接推论流形变化必然对应突触改变。
讨论与解读边界
流形分析把神经元之间的协变结构与任务中的群体轨迹分开,有助于解释复杂单细胞响应为何可以伴随较简单的群体组织。文中的例图来自多项研究,证据类型包括记录、BCI扰动和网络模型,不能合并成一项完整的因果实验。
输出零空间是相对于指定读出定义的,不能理解为对任何肌肉或行为均无影响。正交准备/运动子空间、短期学习限制及模型中的连接约束,也不共同证明大脑只有一个通用流形,或每次流形变化都必须改变突触。本文发表于2017年,关于长期学习的部分材料当时仍是会议摘要;后来的正式研究应另行引用。
思考问题
- 怎样区分低维结构来自网络连接、共同外部输入,还是任务与试次平均?
- 扩大到自然抓握和多任务行为后,同一线性流形能够覆盖多大范围?