C02 · Neuronal correlates of motor performance and motor learning in the primary motor cortex of monkeys adapting to an external force field
Li, C.-S.R., Padoa-Schioppa, C., & Bizzi, E. (2001). Neuron, 30, 593–607. doi:10.1016/S0896-6273(01)00301-4
力场适应和洗脱期间,M1 单细胞的方向调谐表现出多种变化方式;部分细胞在洗脱后仍不同于基线,而群体平均偏好方向接近恢复。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
力场适应把运动学习的问题从“看见的方向是否正确”推进到“怎样产生合适的力”。手臂原本能够完成的直线伸手,在与速度有关的外力作用下会弯曲;反复练习后轨迹恢复,撤去力场又出现反向后效。这样的行为过程支持运动系统学会预先补偿负载,但直线轨迹恢复时,肌肉承担的力学任务已经不同于基线。因此,适应中的皮层活动既可能反映当前力量需求,也可能包含学习经验留下的改变。对 M1 而言,这形成一个具体问题:它在多大程度上随即时运动输出变化,又是否在外界负载消失后仍保留此前学习的痕迹。
方向调谐为检验这一问题提供了可比较的指标。按照力的合成关系,力场中肌肉活动的偏好方向应发生系统偏转,撤场后再转回;皮层群体若主要表达输出要求,也可能呈现类似的平均趋势。然而,群体平均恢复并不意味着每个细胞都恢复:不同细胞持续变化的方向若不一致,平均值便会掩盖它们各自的学习历史。只比较基线和力场两个阶段,很难区分即时负载效应与持续变化,因此洗脱阶段具有关键作用。速度和肌电则提供输出端参照,帮助判断调谐差异能否由残余运动学或肌肉需求解释。除此之外,平均放电与调谐宽度也可能变化,单一偏好方向指标未必概括全部适应过程。
Li 等在两只猴的基线、力场适应和洗脱阶段记录 M1,并以另行记录的肌电分析作参照,比较多种调谐参数的变化。研究不仅询问群体是否按力学要求调整,还关注哪些细胞随撤场恢复、哪些细胞继续偏离基线,以及另一些细胞为何到洗脱时才出现变化。由此得到的两类“记忆细胞”展示了一个重要现象:行为及群体平均接近恢复时,单细胞仍可携带不同的历史依赖状态。不过,这些名称来自阶段间统计比较,类别之间未必有清晰边界,不同参数也可能把同一细胞分入不同类别。结果没有确认固定的解剖细胞类型或记忆储存位置;洗脱后的持续差异是学习相关证据,其必要性及对未来再学习的作用仍需直接检验。
研究思路
研究记录基线、力场和洗脱阶段的M1与肌肉活动,比较偏好方向、平均放电及调谐宽度。所谓运动学、动力学及记忆细胞,是按三个阶段响应模式定义的操作性类别,不能直接当成固定生物类型。
方法
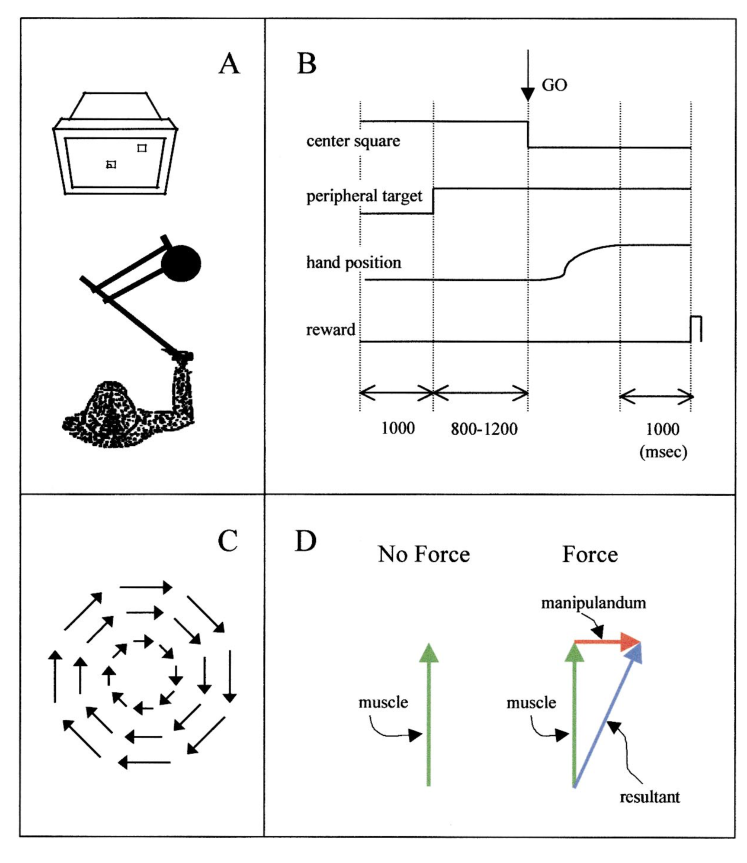
两只成年雄性猕猴(Macaca nemestrina,猴 B 和 M),右手操作两连杆低摩擦 manipulandum,底座两台力矩电机可施加任意力场,显示器在眼前 75 cm。任务为延迟视觉引导的 center-out 伸手:光标进中心方框(14×14 mm)保持 1000 ms 后,八方向随机出现外周目标(10 cm 外),再保持 800–1200 ms,中心消失为 GO,须在 1200 ms 内沿 ±60° 的宽走廊到达并保持 1000 ms 得果汁奖励。每个 session 分 Baseline、Force、Washout 三段,各约 160–200 个成功 trial(每方向约 20–25 个),全程约 2 小时;力场为 F = BV 的粘性 curl 场,b = ±0.07 N·s/m(顺时针 CK 或逆时针 CCK)。行为用速度曲线与理想曲线的相关系数(CC)量化。记录在左 M1 上的 18 mm 记录井进行,每次最多 3 根钨丝电极(1–3 MΩ),阈值触发加手动聚类,只收波形全程稳定的细胞;运动相关活动取运动开始前 200 ms 到运动结束(4 cm/s 速度阈值判定起止),稳态定义为每方向 4 个成功 trial 之后。最终样本 162 个神经元,其中 137 个在三段都满足平均放电 > 1 Hz,64 个在三段都有显著方向调谐(Rayleigh p < 0.05,可按 Pd 分类),25 个在三段都单峰(可按 Tw 分类)。EMG 在另外的 session 植入胸大肌、三角肌、肱二头肌、肱三头肌和肱桡肌,最终 16 个肌肉实例用与细胞相同的时间窗和分析。ICMS(20 对双相脉冲、60 ms 串、330 Hz,≤20 µA 引出肩/前臂抽动)加 MRI 与死后组织学确认电极位于中央沟前岸 M1 手臂区。猴子经 4–6 个月任务训练、记录前从未接触力场;猴 B 做 40 个 CK 和 10 个 CCK session,猴 M 做 25 个 CK 和 16 个 CCK,数据覆盖从首次暴露到长时学习平台期。调谐参数的跨 epoch 比较用误差传播后的 z test(Pd、Tw 用 circular 版本),显著性阈值 α = 0.05。
主要结果
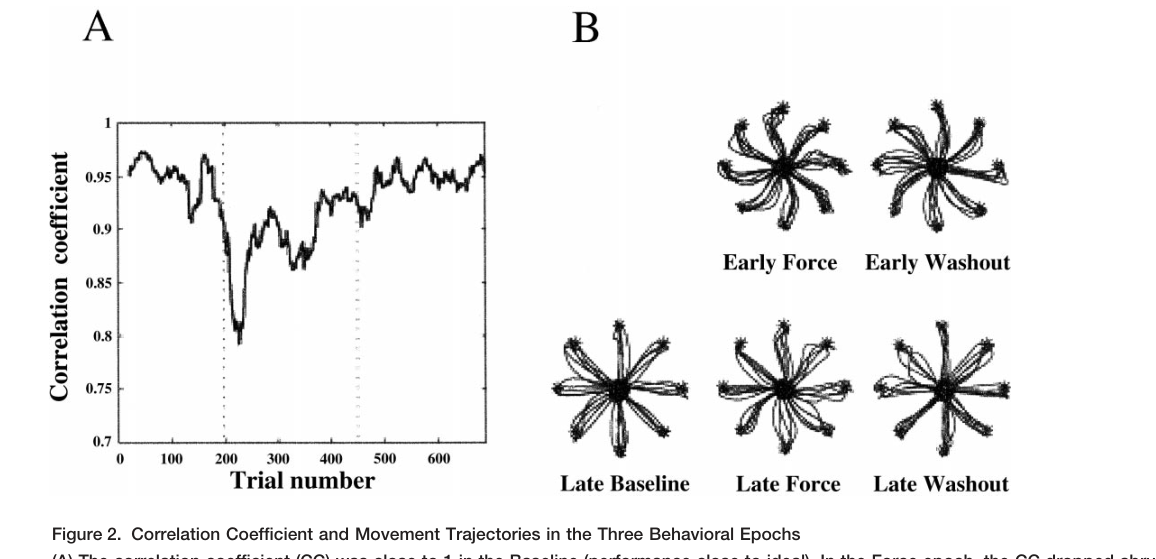
行为呈现与人类力场适应相似的时间过程:CC 在 Baseline 接近 1,进力场骤降后逐渐回升到与 Baseline 无异的稳态,Washout 出现短暂 aftereffect 后快速回归(图 2)。跨 session 还有长时学习:力场中的平均 CC 在第一个力场 15–25 个 session 后到达平台,第二个力场只要 6–8 个 session——明显的 savings;平台期的 session 里,每个 epoch 内 30 个 trial 左右轨迹就重新变直。
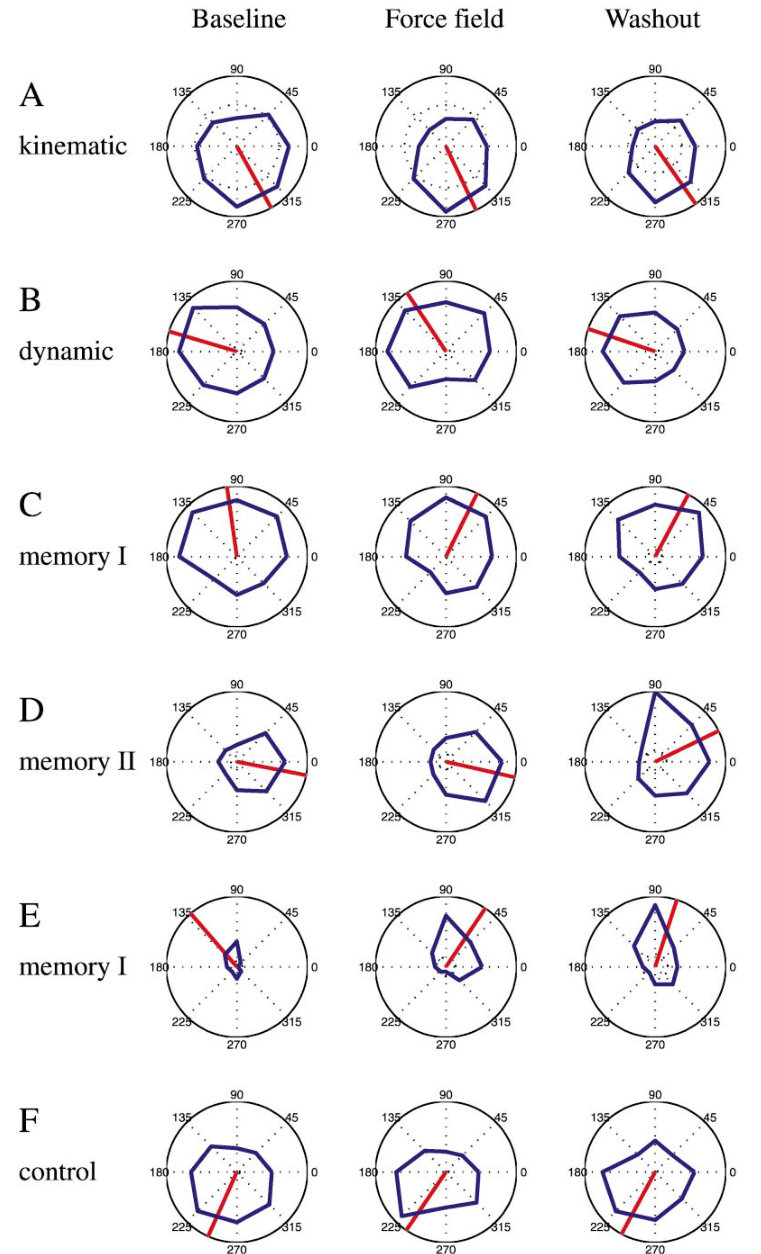
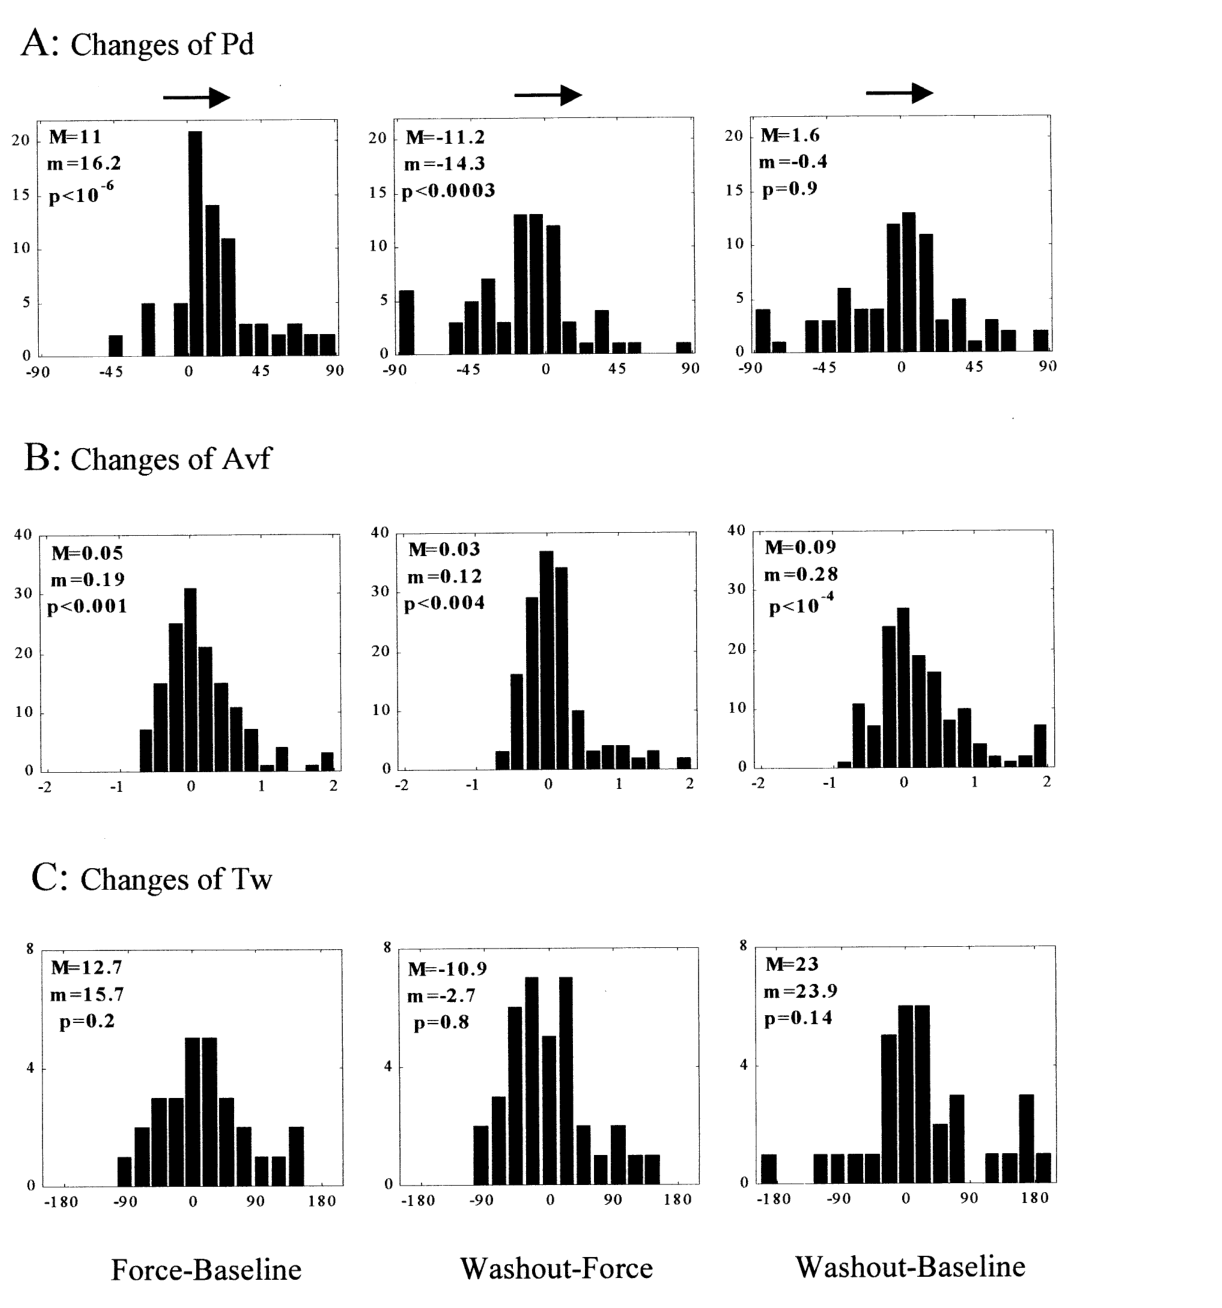
单细胞层面是全文核心。按 Pd 的变化(图 3),kinematic cell 占 34%,三段未见明显变化;dynamic cell 占 22%,Pd 在 Force 朝力场方向转、Washout 转回;memory I cell(x-y-y)占 19%,Force 里转过去、Washout 保持不回;memory II cell(x-x-y)占 22%,Force 里不动、Washout 反向转。无力场的对照 session 里(7 个细胞)调谐曲线全程稳定,说明以上不是电极漂移或记录不稳的伪迹。群体直方图(图 5)给出主结果:Pd 在 Force 相对 Baseline 朝力场方向平均偏转 16.2°(SD 26°,p < 10^-6),Washout 相对 Force 回转 14.3°(SD 32°,p < 0.0003),而 Washout 相对 Baseline 的净变化不显著(p = 0.9);两类 memory cell 方向相反、比例接近,与群体平均接近恢复相容。Avf 在 Force 平均升高 19%(SD 65%,p < 0.001)、Washout 再升 12%(SD 51%,p < 0.004),Tw 无系统变化。
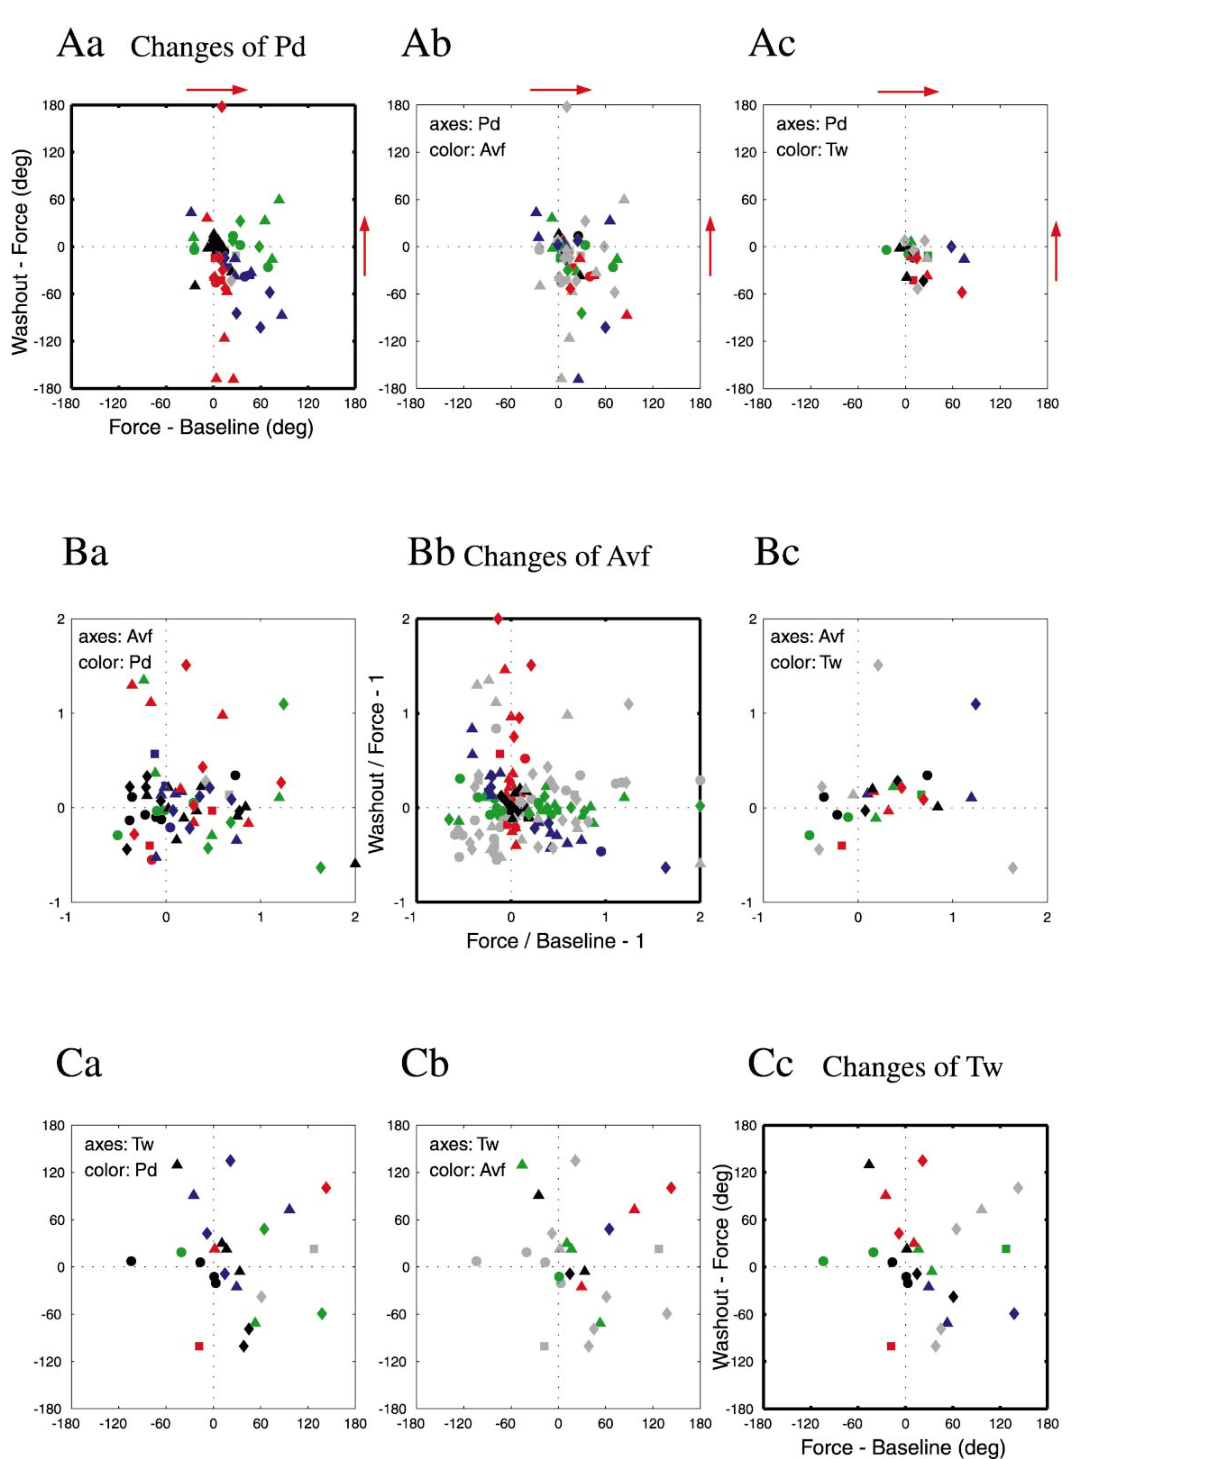
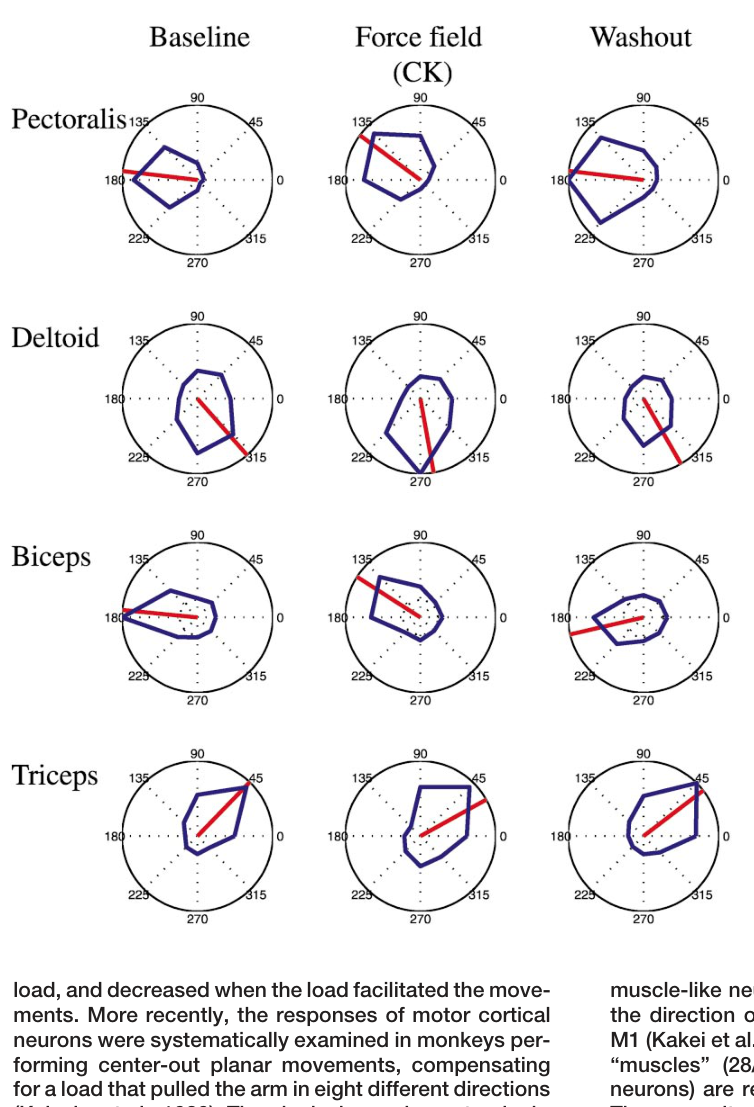
肌肉端,肌电测量结果符合图 1D 的矢量预测(图 7):四块肌肉的 EMG Pd 在 CK 力场中顺时针转、Washout 逆时针转回,平均 +18.8°(中位数 21.4°)与 –21.7°(中位数 –21.7°)——与神经元群体的 16.2°/–14.3° 方向一致、幅度相当,也与 Thoroughman 和 Shadmehr 1999 在人类上的 EMG 结果吻合。也就是说,M1 群体的 Pd 跟着肌肉走,但单个细胞并不都像肌肉:dynamic cell 像肌肉一样转回,memory I 不回,memory II 甚至到 Washout 才反向转。散点图(图 6)进一步显示按 Pd、Avf、Tw 的分类不完全对应,且同时考虑多个参数时绝大多数细胞至少有一个参数在变(Pd 与 Avf 同时可分类的 61/64 个细胞里只有 3 个全不变)。速度分析降低了部分运动学混淆的可能:三对 epoch 间平均速度几乎不变(Force 对 Baseline +2%,p = 0.13;Washout 对 Force +5%,p = 0.03),六条速度调谐曲线都无方向性(Rayleigh p > 0.40),细胞 Pd 变化与速度 Pd 变化的相关 r² < 2%,Avf 变化与速度变化的相关 r² < 14%。
逐图解读
来源:原文 Fig. 1,PDF 第 2 页。
图 1 · 装置、任务与肌肉预测。 (A) 两连杆低摩擦 manipulandum,底座两台力矩电机独立作用于各关节;(B) 延迟视觉引导伸手的时间线(任务带 800–1200 ms 的目标保持期,不过本文只分析运动执行期,这一点与后来专看准备期的 C01 恰成对照);(C) 速度空间里的顺时针 curl 场,力垂直于手速度、正比于手速;(D) 力的矢量合成模型:无外力时手部仅受肌肉力(绿),施加力场后肌肉力与机械手外力(红)矢量合成,合力(蓝)偏向力场方向——由此推论所有肌肉的 Pd 均朝力场方向偏转,撤场后恢复。后文的神经群体与肌电分析均以该几何预测为参照。
来源:原文 Fig. 2,PDF 第 3 页。
图 2 · 力场适应的行为学。 (A) 相关系数 CC 的时间过程:Baseline 接近 1,进逆时针力场骤降,随适应逐步回升到稳态,Washout 里 CC 短暂下探(aftereffect)后迅速回到原水平。(B) 同一天的轨迹:早期 Force 的偏转与 Washout 的 aftereffect 互为镜像,是"内模型存在过"的行为证据。该图需结合正文跨 session 数据解读:第一个力场需 15–25 个 session、第二个仅需 6–8 个 session 平均 CC 即可达到平台——单 session 内的即时适应与跨天的 savings 属于不同时间尺度的学习,神经分析主要针对前者的稳态表现。
来源:原文 Fig. 3,PDF 第 4 页。
图 3 · 四类细胞的极坐标调谐曲线。 每个细胞三张图(Baseline 左、Force 中、Washout 右),虚线圆为中心保持期的背景活动。A–E 分别对应 kinematic(x-x-x)、dynamic(x-y-x,该例在 Pd 与 Tw 两个参数上均随力场改变)、memory I(x-y-y,Force 阶段沿力场方向偏转后在 Washout 维持)、memory II(x-x-y,Force 阶段无变化而在 Washout 逆向偏转)以及在 Avf 与 Pd 上均具有记忆特征的细胞;F 为无力场对照 session 中的稳定细胞。A–C 记录自猴 B、D–F 记录自猴 M,A–E 均在顺时针力场下记录。图中使用 x-y-x 符号明确标注了各类别在基线、力场和洗脱三阶段的响应特征。
来源:原文 Fig. 4,PDF 第 5 页。
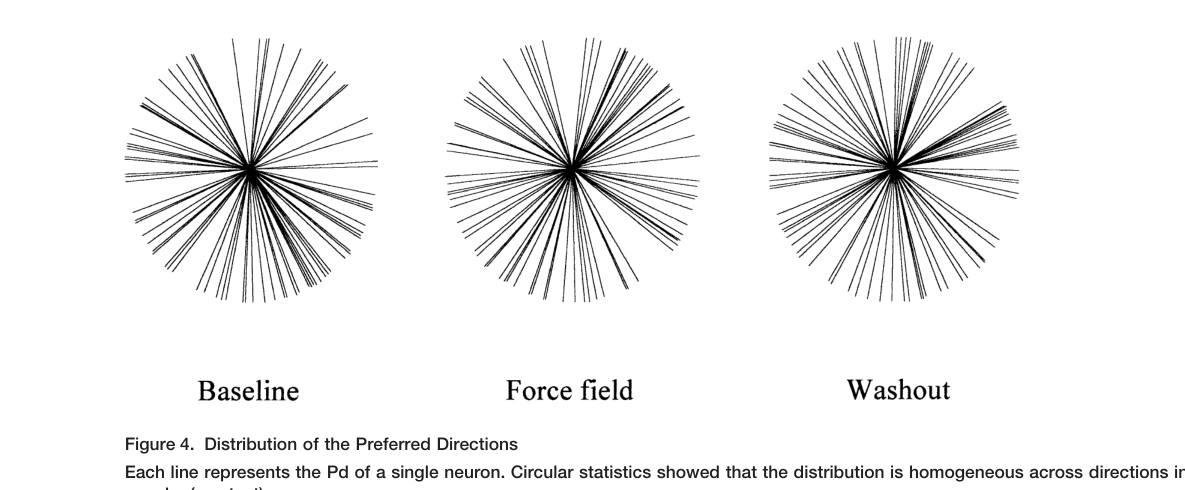
图 4 · Pd 分布的均匀性。 每根线是一个神经元的 Pd,三段 epoch 各一幅。圆形统计显示分布各向同性(V = 1.279、0.838、1.236,均 p > 0.15)。这张图看似平淡,其实是图 5 的前提:如果 Pd 分布本身有各向异性,"群体 Pd 朝力场方向转 16°"就可能被采样偏差造出来。三阶段对比同时表明,尽管单细胞的 Pd 在适应过程中发生多样化偏移,但群体的整体分布形态仍保持相对稳定。
来源:原文 Fig. 5,PDF 第 6 页。
图 5 · 群体直方图:变什么、何时变、变多少。 三行分别是 Pd、Avf、Tw 的变化量直方图,三列分别是 Force–Baseline、Washout–Force、Washout–Baseline。第一列里 Pd 直方图(CK 场的 Pd 已翻转对齐,箭头标出力场方向)整体朝力场方向偏(均值 16.2°,p < 10^-6),第二列反向偏(–14.3°,p < 0.0003),第三列未显著偏离零(p = 0.9)——两类 memory cell 抵消后的净结果。Avf 前两列都朝正方向偏(+19%、+12%),作者坦承其中可能混有疲劳成分;Tw 三列都没有系统变化。每格标注中位数 M、均值 m 与 p 值(Pd、Tw 用 circular t test)。
来源:原文 Fig. 6,PDF 第 8 页。
图 6 · 散点图:分类的几何与参数间的独立性。 对角三张(Aa、Bb、Cc)分别以 Pd、Avf、Tw 的 Force–Baseline 变化为横轴、Washout–Force 变化为纵轴:kinematic cell(黑)聚在原点,dynamic cell(蓝)落在贯穿二、四象限的对角线上(先变后反转变),memory I(绿)贴着横轴(变了不回),memory II(红)贴着纵轴(撤场才变),x-y-z 细胞灰色。值得注意的是,各类细胞之间缺乏离散边界,类别划分依据预设的统计阈值,实际呈现为连续分布。非对角图展示了不同参数变化量之间的关系,各参数类别之间未见明显共变,提示不同调谐维度的可塑性相对独立。符号区分两只猴与两种力场(圆 B-CK、方 B-CCK、三角 M-CK、菱形 M-CCK),结果跨猴、跨方向一致。
来源:原文 Fig. 7,PDF 第 10 页。
图 7 · 肌肉 EMG:符合理论预测。 CK 力场下四块肌肉的 EMG 调谐曲线按 epoch 排列,EMG 与细胞用同一时间窗整流积分:每块肌肉的 Pd 在 Force 顺时针转、Washout 逆时针转回,群体平均 +18.8° 与 –21.7°。该结果定量验证了图 1D 的矢量合成模型,为神经元群体的 16.2°/–14.3° 提供了外周肌肉层面的参照——群体平均偏移与肌肉一致,但单个神经元表现出更多样的分化模式。肌电按 Pd 分类时 50% 属于 dynamic 类(表 2),高于神经元群体中的 22%。
来源:原文 Fig. 8,PDF 第 12 页。
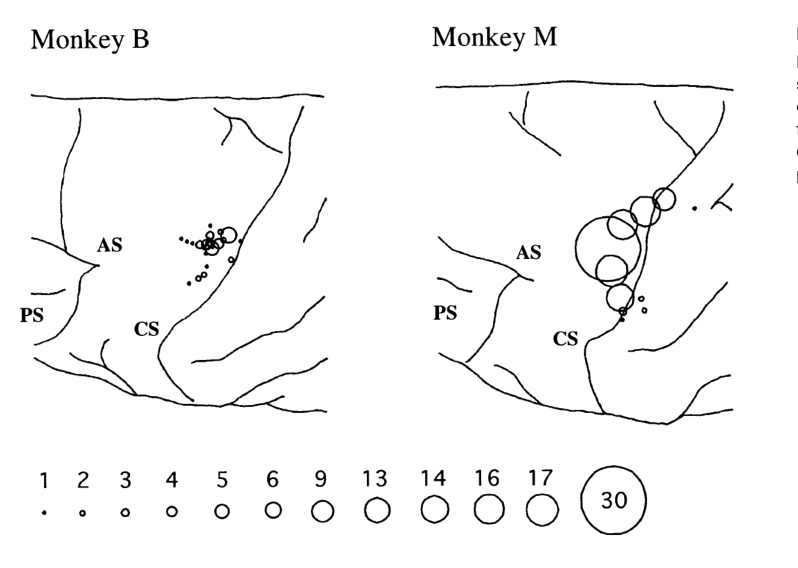
图 8 · 组织学定位。 两只猴脑表面观,圆圈大小标记该坐标记录到的细胞数,穿透点集中在中央沟(CS)前岸,对应 M1 手臂区;AS 为弓状沟,PS 为主沟。配合 ICMS(≤20 µA 引发肩/前臂抽动)与术前 MRI 解剖重建,该图标定了微电极穿刺点在中央沟前岸 M1 手臂区的具体解剖位置。
讨论与解读边界
本文的重要区分是单细胞变化与群体平均变化。按偏好方向分出的 memory I 和 memory II 具有不同的阶段性变化,说明行为和群体均值恢复后,单细胞状态仍可保留学习历史。这里的“记忆细胞”是依据统计比较得到的功能分类,不是独立的解剖细胞类型,也未证明它们是记忆储存所必需。
均值未显著偏离基线不等于净变化严格为零,两类比例接近也不是精确抵消的充分条件。不同调谐参数的分类不完全对应,提示可塑性具有多个方面;不宜直接推成严格统计独立。速度和肌电分析降低了简单运动学解释的可能,但洗脱期速度仍有小幅差异。力场系数按所持原文保留为 ±0.07 N·s/m,实际复现实验前应另核对装置尺度和单位。
思考问题
- 若用连续变化量代替显著性阈值分类,memory I/II 是否仍形成可分的群体?
- 洗脱后调谐差异能否预测下一次力场暴露时的学习速度?