A02 · Strategy-dependent encoding of planned arm movements in the dorsal premotor cortex
Pearce, T.M., & Moran, D.W. (2012). Science, 337, 984–988. doi:10.1126/science.1220642
障碍物使目标方向与初始运动方向分离后,PMd 群体活动可分别携带两类信息。两只猴的准备活动时间过程不同,与各自的提前规划或等待策略相符。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
日常伸手运动并不总是从起点沿直线朝向目标。当遭遇障碍物时,尽管最终空间目标保持不变,初始需要执行的运动方向却必须改变。这一区别对理解运动准备至关重要:准备期神经活动在某个目标出现后增强,既可能是在表示“目的地在哪里”,也可能是在构建“先朝哪个方向运动”的动作指令。经典中心外向任务通常将目标方向与初始运动方向绑定,因此即便记录到清晰的方向调谐,也难以断定其反映的是空间目标、运动轨迹,还是与任务相关的视觉空间位置。
背侧前运动皮层(PMd)普遍被认为参与运动准备与目标选择,但已有研究结果并不能简单归纳为某一种固定编码。文献分别报告了对空间目标、手部位置、运动方向及不同计划阶段的表征。要理清这些变量,需要使任务中的关键信息按时间分步呈现,并使目标与所需运动路径发生解离。绕障任务提供了这样的实验条件:依次呈现起点、目标与障碍物,从而将仅有目标信息的阶段与必须形成绕行路径的阶段明确分开。此外,无障碍或障碍不阻挡路径的试次还允许检验提前生成的直线计划是否得以保留,进而使“提前规划”与“信息齐备后再规划”成为可在行为与神经层面检验的策略选择。
Pearce 和 Moran 据此研究了 PMd 的运动准备活动。他们先通过中心外向任务建立方向解码器,再观察绕障任务中群体向量何时指向目标、何时转向初始运动方向,并另行基于目标调谐检验目标信息是否依然存在。这一设计避免了将单一解码器的方向偏好等同于全部神经表征,同时也能检验两只动物在相同任务与线索下是否采用了不同的时间策略。研究的核心并不在于简单判定“PMd 编码运动还是目标”,而是考察目标与动作计划如何在准备期被分别表征、如何按任务需求被动态调用,以及提前规划在行为上带来何种收益与代价。两只动物表现出的策略差异也是界定该机制适用范围的重要依据。
研究思路
起点、目标与障碍物依次呈现,将可用信息划分为三个阶段。作者先从中心外向任务中估计神经调谐与群体向量,再将解码方案应用于绕障任务,并结合单细胞分析对比目标方向与初始运动方向的贡献。不同动物展现的计划策略构成了研究结果的组成部分。
方法
实验选用两只恒河猴(G 和 H),接受相同训练且任务设置完全一致。实验采用急性微电极记录对侧 PMd,共记录到 723 个单神经元(猴 G 为 343 个,猴 H 为 380 个)。行为任务在 VR 模拟器中完成,手部位置映射至额面(frontoparallel)平面,动物在操作中看不到自身手臂。任务包括两类:中心外向任务(center-out)包含 8 个运动方向与 5 个起点位置,共 40 种中心–目标组合;绕障任务(obstacle)采用单一中心起点,包含 40 种目标–障碍组合。利用任务的旋转对称性,所有试次可归纳为目标与障碍物的 5 种相对朝向,等效增加了各条件的分析样本量。其中障碍物不挡道的 0° 试次与完全不出现障碍物直接给出 go 信号的 catch 试次合计约占三分之一;这一比例意味着在三分之一的概率下,预先构建“直奔目标”的计划是有效的。神经与行为分析均表明参数解相关成功:在相应线索呈现之前,神经元对对应参数的调谐比例未超出随机水平。
主要结果
运动期分析首先给出了与 M1 的对比。位置群体向量(position-PV)对手部运动轨迹的解码保真度较高,神经预测领先真实运动约 200 ms;而速度群体向量(velocity-PV)在运动期的重建表现较弱。该团队此前在 M1 的特定任务中观察到较强的速度调制(Wang et al. 2007);而在本实验的 PMd 运动期解码中,神经活动对位置的预测优于速度,这与文献中关于 PMd 位置表征的报道相符(Fogassi 1992; Pesaran 2006)。
计划期的主要发现体现为规划策略的差异。利用中心外向任务目标方向调谐构建的 velocity-PV,在两只动物身上最终均指向绕行所需的初始运动方向,而非最终目标方向,表明经典方向调谐对应的是“计划的初始运动方向”。然而两只猴到达该状态的时间进程显著不同:猴 G 的群体向量在 delay 2 期间长度不显著,直到障碍物出现后的 delay 3 才迅速增长并稳定在绕行方向,表现为等待信息齐备后再进行规划;猴 H 的群体向量在 delay 2(仅呈现目标时)便已指向目标,障碍物出现后则经历缩短、旋转至新方向并重新增强的过程,表现为先规划直奔目标、后续再调整的策略。这一策略差异在行为上伴随相应的代价与收益:以起飞角(运动起始手运动方向偏离目标方向的夹角)评估,在 catch 试次中猴 H 的定向精度显著高于猴 G,而在 0° 试次中两者无显著差异,表明提前规划带来了无阻挡条件下的初始定向优势。
单神经元水平的分析进一步证实目标方向依然保留在群体表征中。同一神经元的放电栅格图按目标方向排列时展现出明确的方向调谐;若将同一批试次重新按障碍物开口方向排列,则呈现出朝向另一个方向的调谐。这表明单个神经元能以带噪声的余弦形式同时编码两个独立的空间参数。在最终延迟期内,超过 60% 的神经元对至少一个参数存在显著调谐。进一步基于绕障任务 delay 3 目标调谐构建的目标群体向量(target-PV,经留一交叉验证)能够在计划期独立解码出目标方向,但该目标表征仅在需要绕行的试次中明显出现(直行试次中 target-PV 向量长度显著偏短);而在 delay 2 阶段,该 target-PV 未能检测出显著的目标表征。这表明目标信息是根据任务需求被动态调入群体表征的,而单神经元的异质性响应构成了表征高维参数空间的基底。
逐图解读
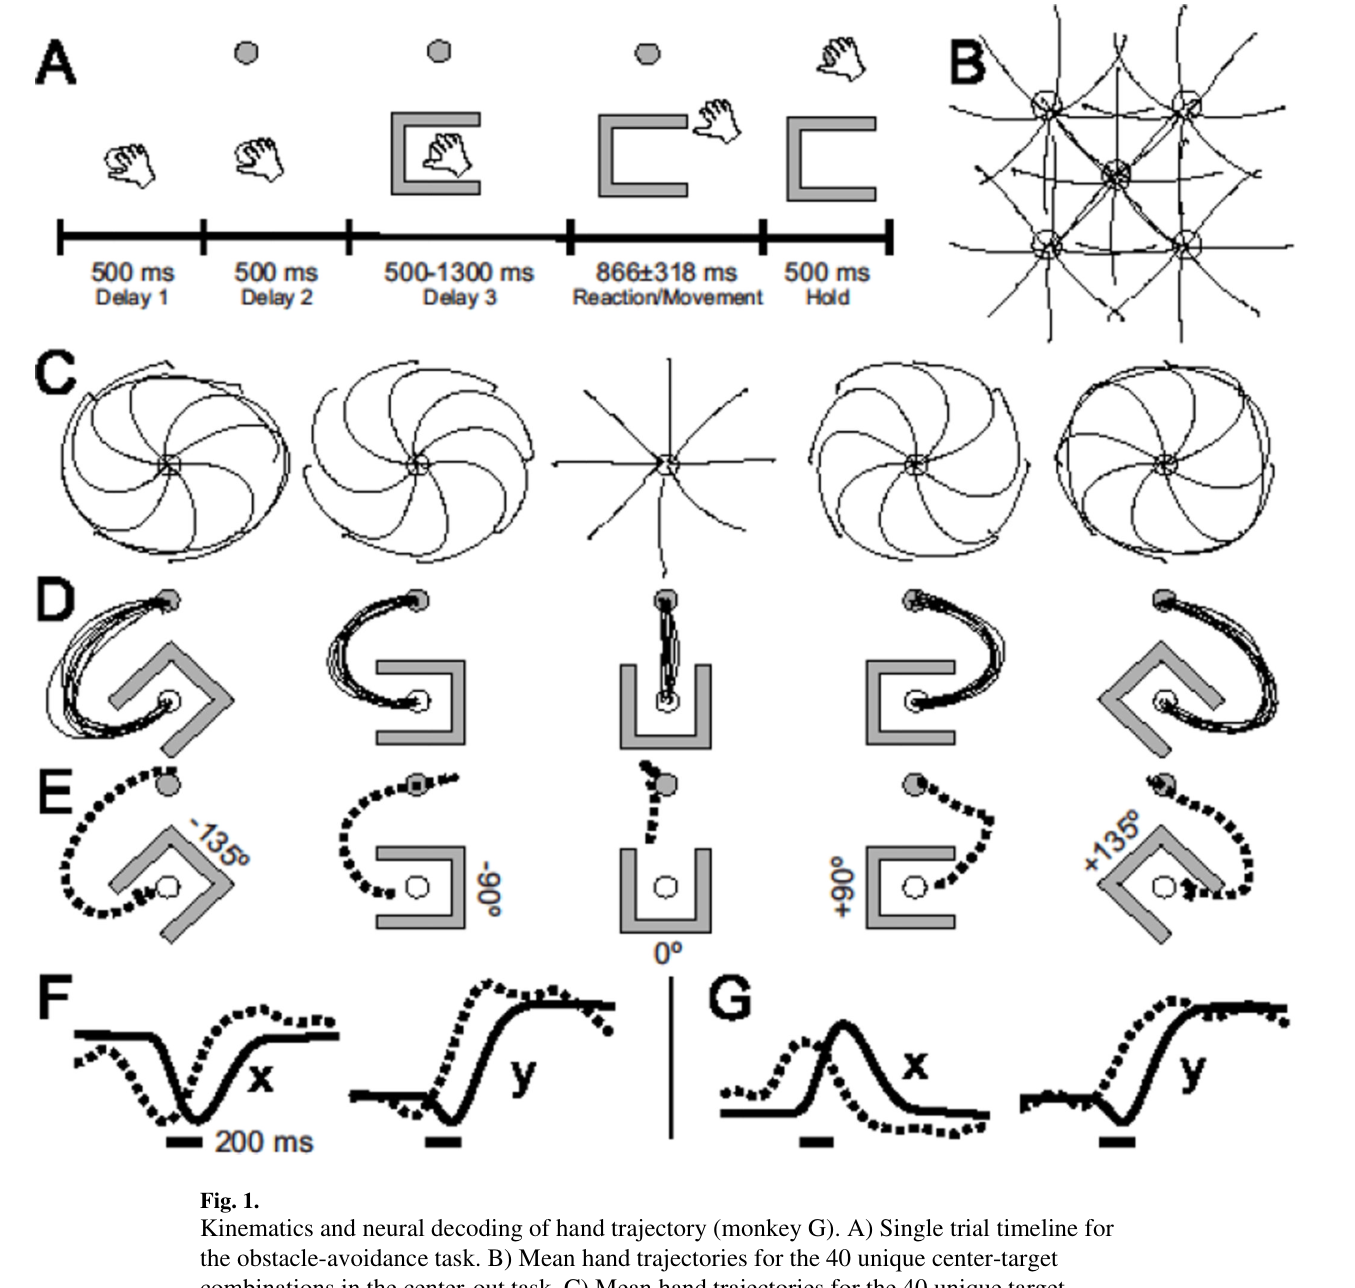
来源:原文 Fig. 1,PDF 第 7 页。
图 1 · 任务、行为与位置解码(monkey G)。 (A) obstacle 任务的单 trial 时间线;(B) center-out 40 个组合的平均手轨迹;(C) obstacle 任务 40 个组合的平均轨迹,按障碍物相对目标的朝向分 panel;(D) 把 (C) 旋转对齐,让目标方向一律朝上;(E) position-PV 从运动期活动解码出的手路径预测;(F, G) ±135° 条件下手位置 x/y 分量(实线)与神经预测(虚线),scale bar 200 ms。这张图承担三件事:描述行为轨迹、评估 position-PV 的重建表现、给出"神经领先运动约 200 ms"这个时间标尺——后面的延迟期分析都要靠它校准。
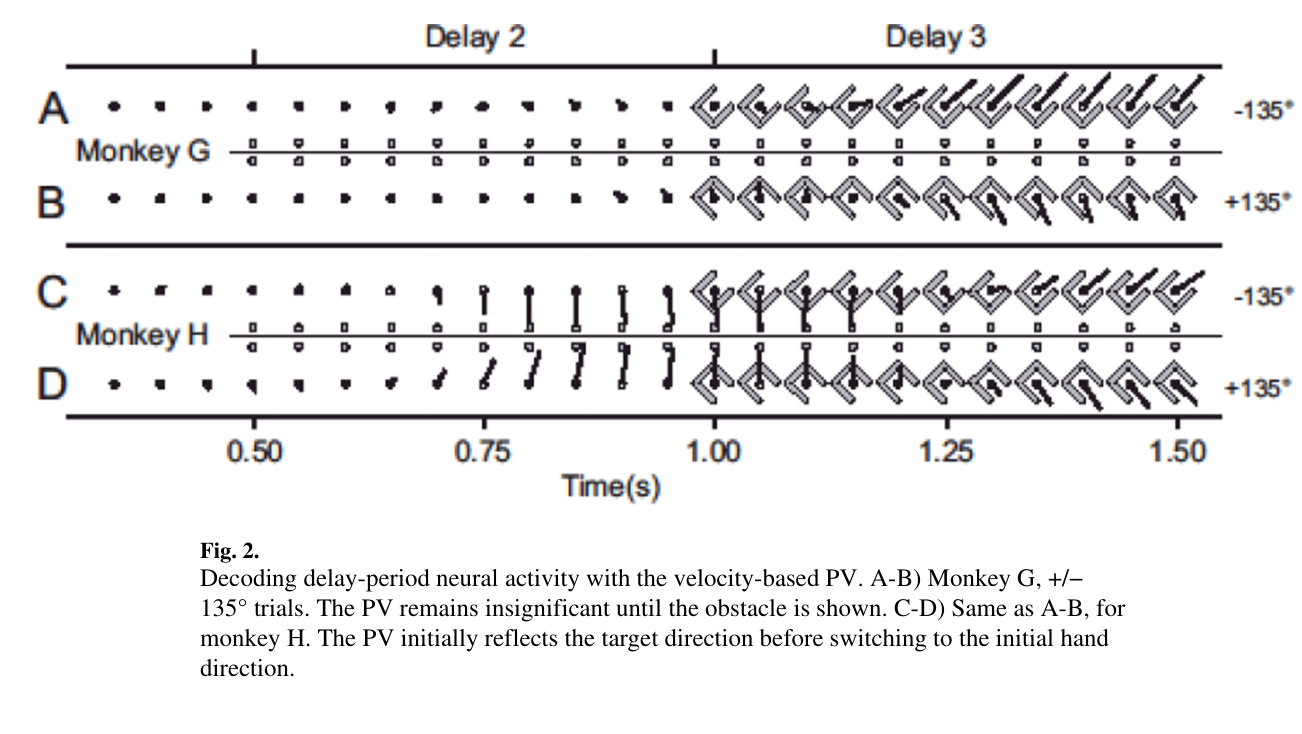
来源:原文 Fig. 2,PDF 第 8 页。
图 2 · velocity-PV 在延迟期的时间演化。 A、B 是 G 猴的 ±135° 试次:PV 在障碍物出现前长度不显著,出现后随即指向绕行方向;C、D 是 H 猴同样的条件:PV 先指向目标,障碍物出现后才转向初始运动方向。读这张图要把"长度"和"方向"分开:长度反映所用群体向量中的方向性信号强度,方向反映其预测的运动方向;本文未直接测量计划的确信度。
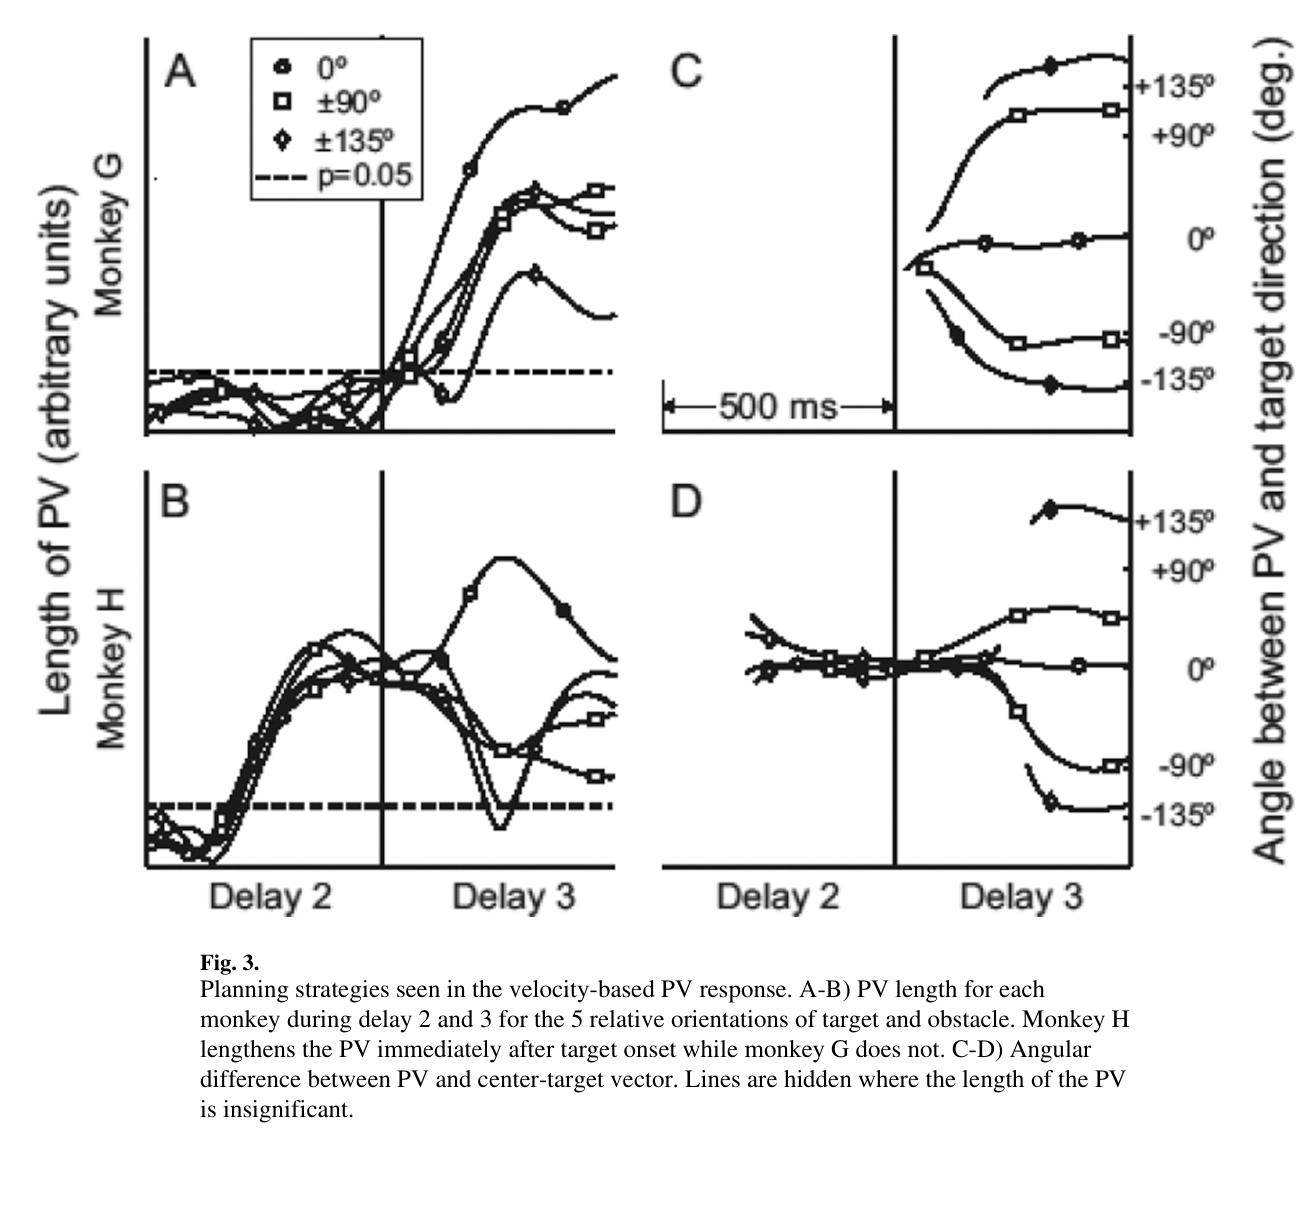
来源:原文 Fig. 3,PDF 第 9 页。
图 3 · 两种计划策略的全景。 A、B 是两猴在 delay 2 与 delay 3 中、5 种目标–障碍相对朝向下 PV 长度的时间过程:H 在目标出现后立即拉长 PV,G 不动;C、D 是 PV 与中心–目标向量的夹角(PV 长度不显著时曲线被隐去)。C、D 的对比是关键:H 的夹角先贴目标方向、障碍出现后跳到运动方向,G 的夹角从有值起就贴运动方向,而且 G 完成这个定向比 H 更快;这描述的是群体信号定向的时间差,不能直接推断动物的主观果断程度。
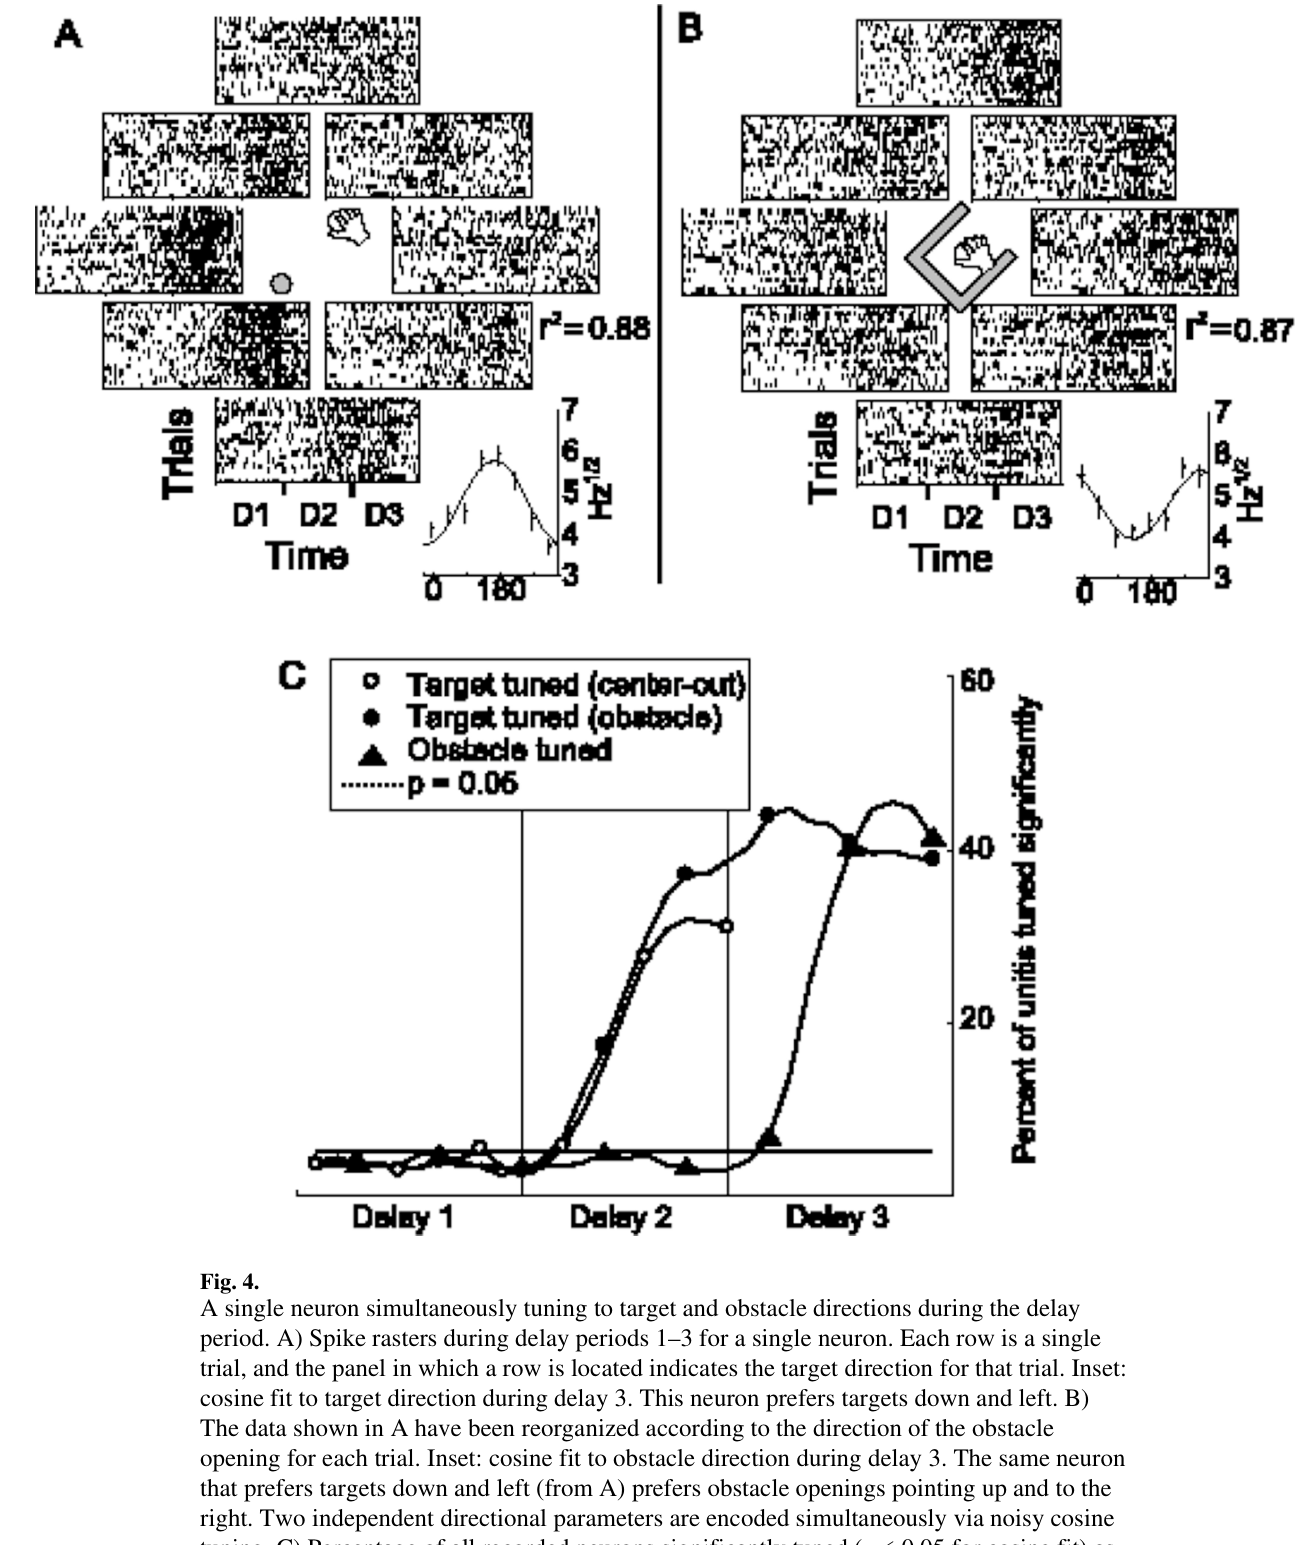
来源:原文 Fig. 4,PDF 第 10 页。
图 4 · 单神经元同时调谐目标与障碍方向。 A 按目标方向排列的 delay 1–3 raster,插图是 delay 3 的目标方向 cosine 拟合,这个神经元偏好左下目标;B 同一批 trial 按障碍物开口方向重新排列,同一神经元给出右上方向的第二组调谐;C 全体记录神经元对各参数显著调谐(cosine 拟合 p<0.05)的比例随时间的变化——每条曲线只在对应信息呈现后才抬升,delay 3 时过半神经元携带至少一个参数。这张图把"异质性响应是群体编码高维参数空间的 basis set"这个假说落到了实处,也顺便演示了单神经元层面多么"脏":同一组 spike,两种排列方式讲出两个故事。
讨论与解读边界
本实验表明,解释神经元的方向调谐必须同时考虑任务结构与所采用的解码方法。在中心外向任务上训练的方向解码器,在绕障任务中主要预测初始运动方向;而基于绕障任务目标调谐另行构建解码器时,依然能读出目标空间信息。因此不能简单推断“PMd 仅表征运动方向而不表征目标”。
两只动物在神经时间进程与行为表现上的差异相互呼应,但每种策略仅观察了一只动物,个体生物学差异与任务策略差异在实验设计上未完全分离。群体向量长度反映的是在特定解码方案下方向性信号的强度,不宜直接等同于动物主观确信度的物理测量。此外,运动期位置解码表现优于速度的结果受限于当前任务与模型设定,不宜过度推论为 PMd 与 M1 之间固定的绝对功能分工。
思考问题
- 能否让同一只猴通过改变绕障概率,在两种规划策略间切换,从而分离策略与个体差异?
- 若同时解码目标和初始运动方向,目标信息是否只在绕障条件增强,还是也受注意和任务难度影响?