D03 · Long-term stability of cortical population dynamics underlying consistent behavior
Gallego, J.A., Perich, M.G., Chowdhury, R.H., Solla, S.A., & Miller, L.E. (2020). Nature Neuroscience, 23, 260–270. doi:10.1038/s41593-019-0555-4
在重复、稳定的伸手行为中,不同日期记录到的低维群体活动经线性对齐后保持较高相似性,并支持长期跨日离线解码。最长记录跨度约两年。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
长期皮层记录面临一个基本矛盾:动物可以在数月甚至数年里稳定完成同一动作,电极记录的单元却会更换,波形、放电率和方向调谐也会变化。若只看单神经元,很难判断变化究竟来自生物活动本身,还是每天采样到了不同细胞。要研究长期稳定性,必须把“记录采样改变”与“群体潜在结构改变”分开,并先确认行为本身确实保持稳定,否则任务变化会被误当成神经漂移。
低维表示提供了一种比较方式。若真实群体动力学在不同日期保持相似,每天从部分神经元估计出的经验流形和潜在活动之间,可能只差一个线性变换。CCA 可用来寻找这种对齐,再将对齐后的活动用于跨日解码。但对齐不是万能修复:非线性变化不应被强行对齐,单神经元调谐稳定也不应自动产生同样的群体稳定性。更重要的是,离线对齐通常需要知道目标和时间对应关系,并使用新日期的数据,因此它与无需校准的在线 BCI 完全不同。
Gallego 等在多个脑区和多套长期植入中应用这一框架,比较未对齐与对齐后的跨日相似性、同日参考上限和速度或目标解码表现,并用替代数据检验对齐的适用条件。研究希望回答:在记录单元不断变化的情况下,低维群体动力学能否长期保持可线性匹配的结构,以及这种结构能否支持跨日离线读出。结果为长期稳定性提供了证据,但不表示整个回路两年不变,也不证明单神经元在生物学上不稳定。各脑区的时间跨度不同,最长约两年的结果不能套用到所有区域,实际长期闭环所需的校准仍需另行验证。
研究思路
作者对不同日期的低维活动作CCA对齐,比较跨日相似性与同日参考,并测试对齐后的离线读出。对齐使用条件和时间对应关系,因此结果不能直接等同于无需行为信息的在线自动校准。
方法
六只猴(C、M、T、J、H、P;T 为食蟹猴,其余为恒河猴),平面操纵杆中心出任务:中央目标出发,8 个外周目标(猴 H 为 4 个),C、M、T 有 instructed delay,go cue 后 1 s 内够到目标并保持 0.5 s。共 137 天数据,各套植入的记录间隔从约 3 周到约 2 年(约 750 天)。总计 9 个 96 通道 Utah 阵列、7 套植入:猴 C 两次植入(右半球 M1 记作 CR,数年后左半球 M1+PMd 记作 CL),猴 M 为 PMd+M1 双植入,猴 J 单植入 M1,猴 T 植入 PMd,猴 H 和 P 植入 S1 的 2 区。分析主要用各电极的 multiunit threshold crossing(每次约 100 个单元),并对 C、M、T 做了人工 spike sorting 用于控制分析和跨天单元追踪。每天的神经活动经 30 ms bin、50 ms 高斯平滑后做 PCA;流形维度按先前工作取 M1 10 维、PMd 15 维、S1 8 维。跨天对齐用 CCA 求线性变换,使后一天的 latent dynamics 与第一天最大相关;把同一天的 trials 分成两个目标匹配的子集做 CCA,得到相关性的上限,跨天 CC 与该上限之比定义为 normalized similarity。行为解码用 Wiener 滤波器(含 90 ms 尖峰历史),PMd 另用 naive Bayes 分类器在围绕运动开始的450 ms窗口(前390 ms至后60 ms)预测目标方向;显著性一律 P<0.001 的双侧 Wilcoxon 秩和检验。
主要结果
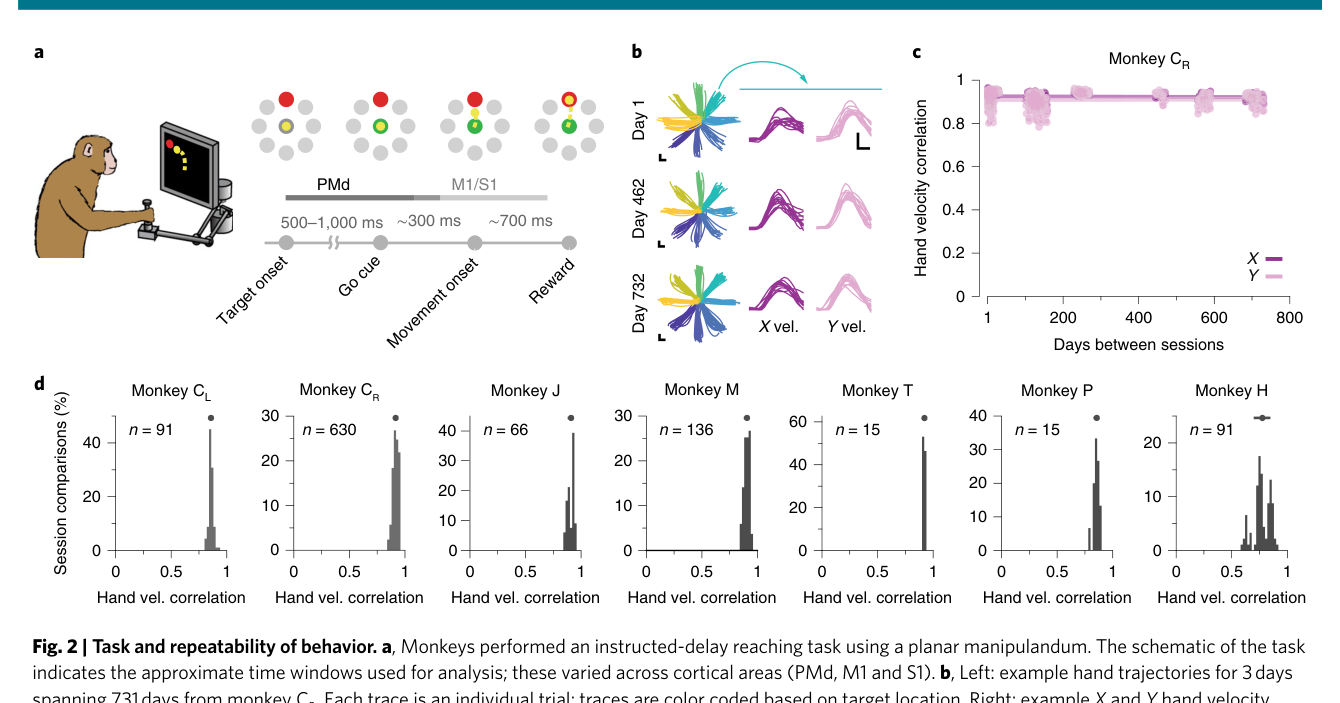
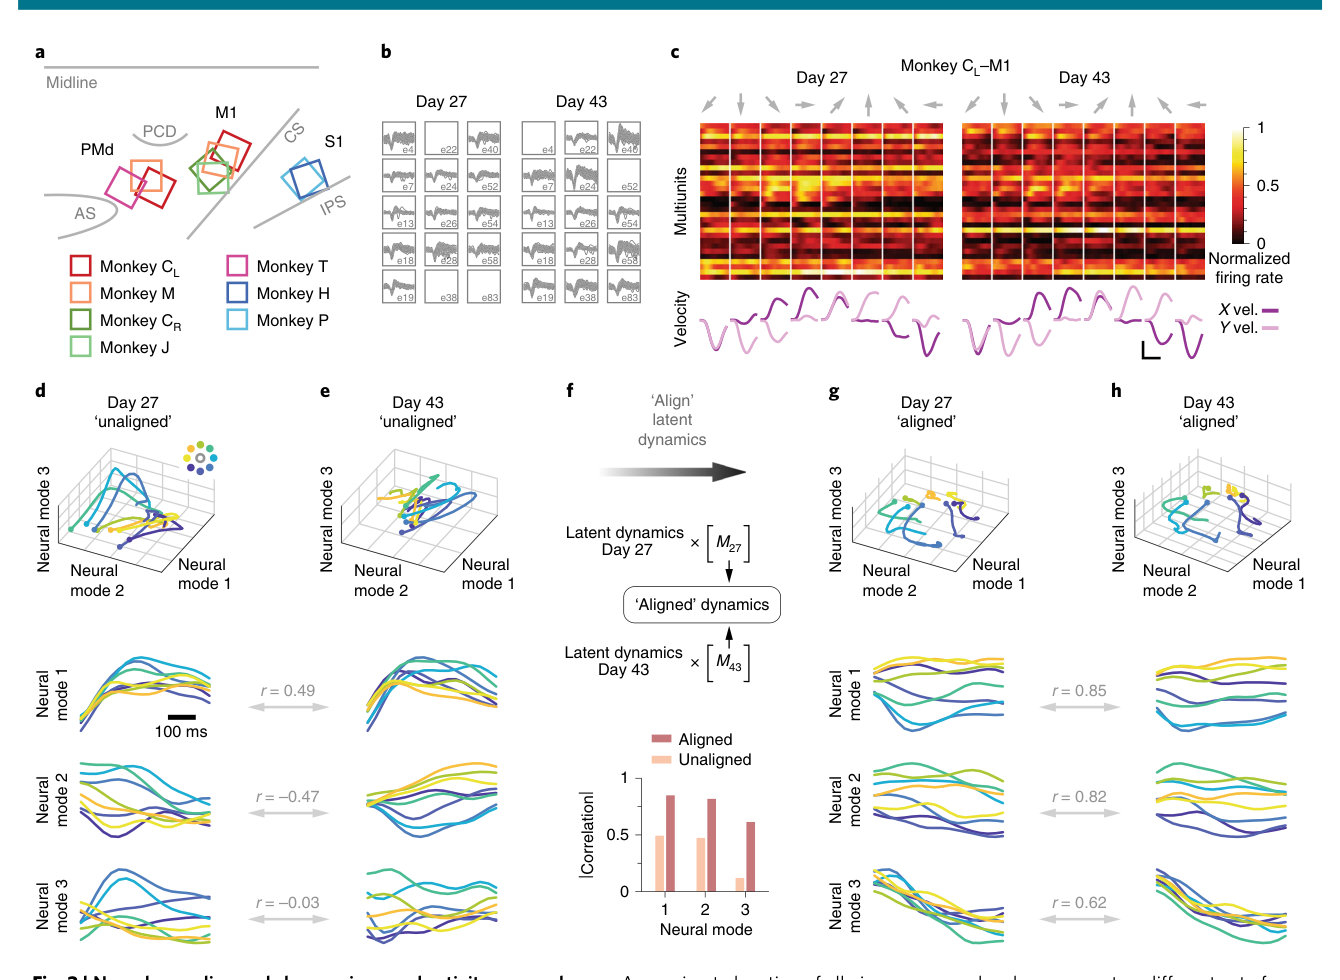
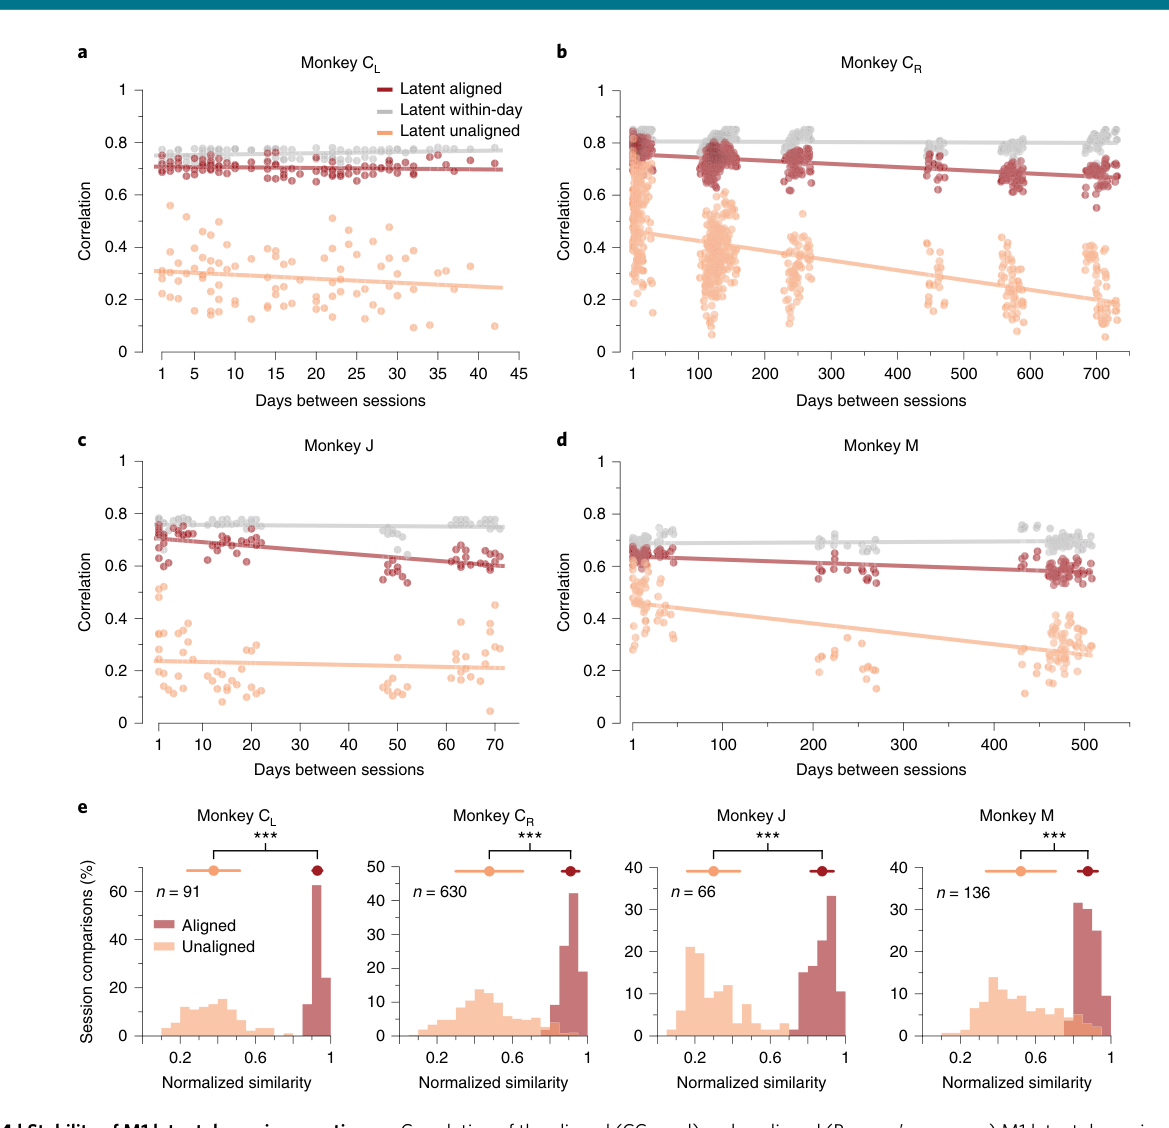
行为层面,各猴方向匹配的单 trial 手速度跨天相关平均均在 0.77 以上,猴 CR 相隔 731 天的轨迹高度重合。神经层面,记录呈现明显变化:猴 CL 同一组电极在 16 天后波形显著改变,30 个通道的放电率与方向调谐发生大幅变化,排序单元的跨天匹配率随天数推移明显下降,拟合得到的余弦调谐参数(基线、调制深度、preferred direction)持续漂移。然而,对齐后的 M1 latent dynamics 表现出高度稳定性:猴 CL 的跨天 normalized similarity 达 0.93 ± 0.03,接近同天参考上限,而未对齐时仅为 0.38 ± 0.14。四个 M1 植入(三只猴:C 的两个半球及 J、M)均获得一致结果,时间跨度最长达 2 年,且对 6–12 维的流形维度选择以及人工排序的单单元数据保持稳健。功能读出方面,基于第一天对齐 latent dynamics 训练的速度解码器,在间隔数百天后的数据上预测手速度,性能接近同天解码器水平;直接利用神经活动训练的固定解码器性能则随天数推移明显衰减。
控制分析进一步检验了替代解释。其一,对真实 latent dynamics 施加非线性变换(逐 trial 乘一个周期的余弦函数)后重新投影回神经空间,构建的 surrogate 群体虽然保留了流形内的目标聚类与单单元统计特性,但其 CCA 对齐度和跨天解码性能均大幅下降——这表明线性对齐的成立依赖于动力学本身具备跨天线性稳定性,而非对齐算法的简单拟合伪影;TME surrogate 检验结果一致。其二,针对每天数据分别拟合速度依赖的余弦调谐曲线,再输入当天运动学参数生成模拟群体:模拟数据的跨天 CC 显著低于真实数据,说明单独稳定的单神经元调谐并不足以解释所观察到的群体动力学稳定性。
PMd 和 S1 的记录扩展了这一观察。在运动规划期,三只猴的 PMd latent dynamics 在数周至数月尺度上保持稳定,与同天水平高度接近;目标分类器在同天测试准确率为 73%,跨天基于对齐 latent dynamics 解码仍达 54%,而直接基于神经活动的跨天分类器准确率降至 23%。在感觉反馈期,两只猴的 S1 latent dynamics 在约 45 天内保持稳定,对齐后的解码表现同样接近同天水平。三个脑区在不同行为阶段呈现出一致的跨日低维稳定性。
逐图解读
来源:原文 Fig. 1,PDF 第 2 页。
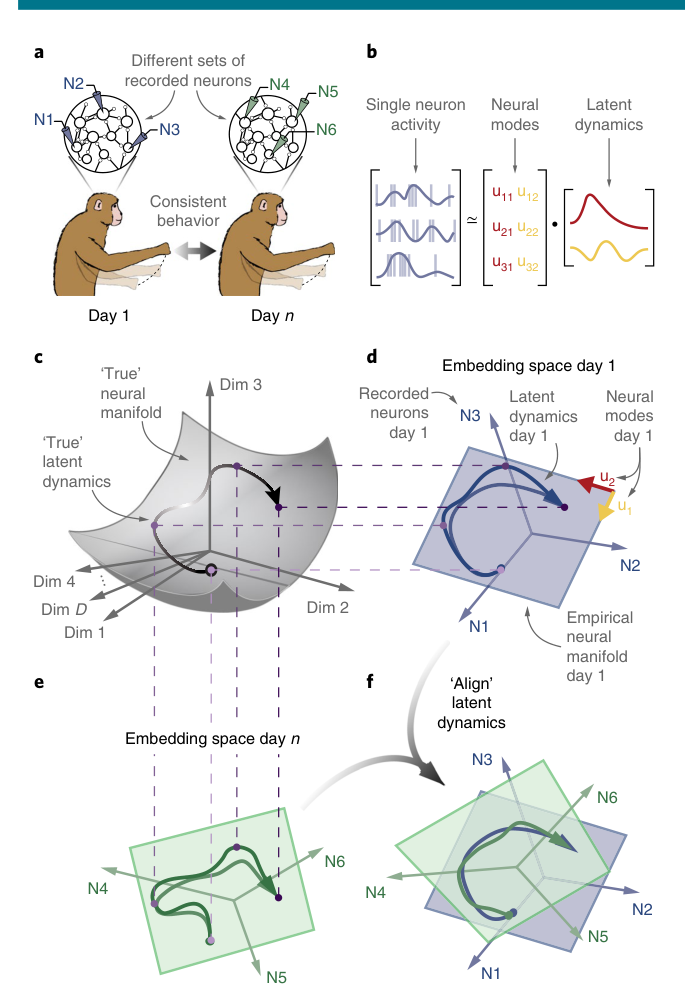
图 1 · 假设与方法原理图。 (a) 行为天天一样,记录到的神经元天天在换;(b) 单神经元活动是各 neural modes 的 latent dynamics 的加权组合;(c) 真实流形嵌在包含所有任务相关神经元的 D 维空间里;(d, e) 每天只能从采样的几个神经元得到一个经验流形和经验 latent dynamics——注意 (d) 与 (e) 是不同天的经验空间,直接比较没有意义;(f) 核心预言:若真实动力学稳定,跨天的经验 dynamics 之间只差一个线性变换,"align"即可复原。这张图是全文方法论的钥匙:一切分析的合法性都建立在"两次线性投影"这个前提上,后面所有的控制分析都是在捍卫它。
来源:原文 Fig. 2,PDF 第 3 页。
图 2 · 任务与行为的一致性。 (a) 操纵杆中心出任务示意,标注了各脑区的分析时间窗(PMd 取运动前的准备期,M1/S1 取围绕运动执行的窗口);(b) 猴 CR 相隔 731 天的三天手轨迹(左)与够向右上目标的单 trial 速度曲线(右),几乎不变;(c) 猴 CR 所有天数对的方向匹配单 trial 速度相关对间隔天数作图,几乎不随天数下降;(d) 七套植入各自的跨天速度相关分布(n 从 15 到 630 不等),平均都超过 0.77。这张图是全文的地基:后面所有关于动力学稳定性的论断都以"行为本身稳定"为前提,这里先给出行为稳定性的实测依据。
来源:原文 Fig. 3,PDF 第 4 页。
图 3 · 神经记录在变,latent dynamics 在变——直到对齐。 (a) 九个阵列的植入位置;(b) 猴 CL 两个记录通道第 27 天与第 43 天的 multiunit 波形,已明显不同;(c) 同两天 30 个通道按八个方向排列的平均放电率:幅度和空间调谐都在大变,而手速度(最下)未见明显变化;(d, e) 未对齐的两天 latent 轨迹(前三个 modes),对应 modes 间的相关只有 0.49、-0.47、-0.03;(f–h) 经 CCA 矩阵对齐后,相关升到 0.85、0.82、0.62,两天轨迹的形状肉眼可见地贴合。这张图是"问题"与"解法"的对照图:上半部分陈述困难,下半部分展示 CCA 对齐后的相似性;这一离线对齐不等于无需校准的闭环控制。
来源:原文 Fig. 4,PDF 第 5 页。
图 4 · M1 latent dynamics 的跨天稳定性。 (a–d) 四个 M1 植入(猴 CL、CR、J、M),每天对的 aligned CC(红)、unaligned 相关(橙)与同天上限(灰)对间隔天数作图:红线几乎平贴灰线,橙线明显更低,从几十天到 700 多天几乎不衰减;(e) normalized similarity 汇总:对齐后接近 1(如猴 CL 为 0.93 ± 0.03),不对齐仅 0.38 ± 0.14,差异 P<0.001。读这张图最该盯的是斜率:如果稳定性随时间缓慢流失,红线应该随间隔天数下垂——实际上没有,700 天和 16 天几乎一个水平。
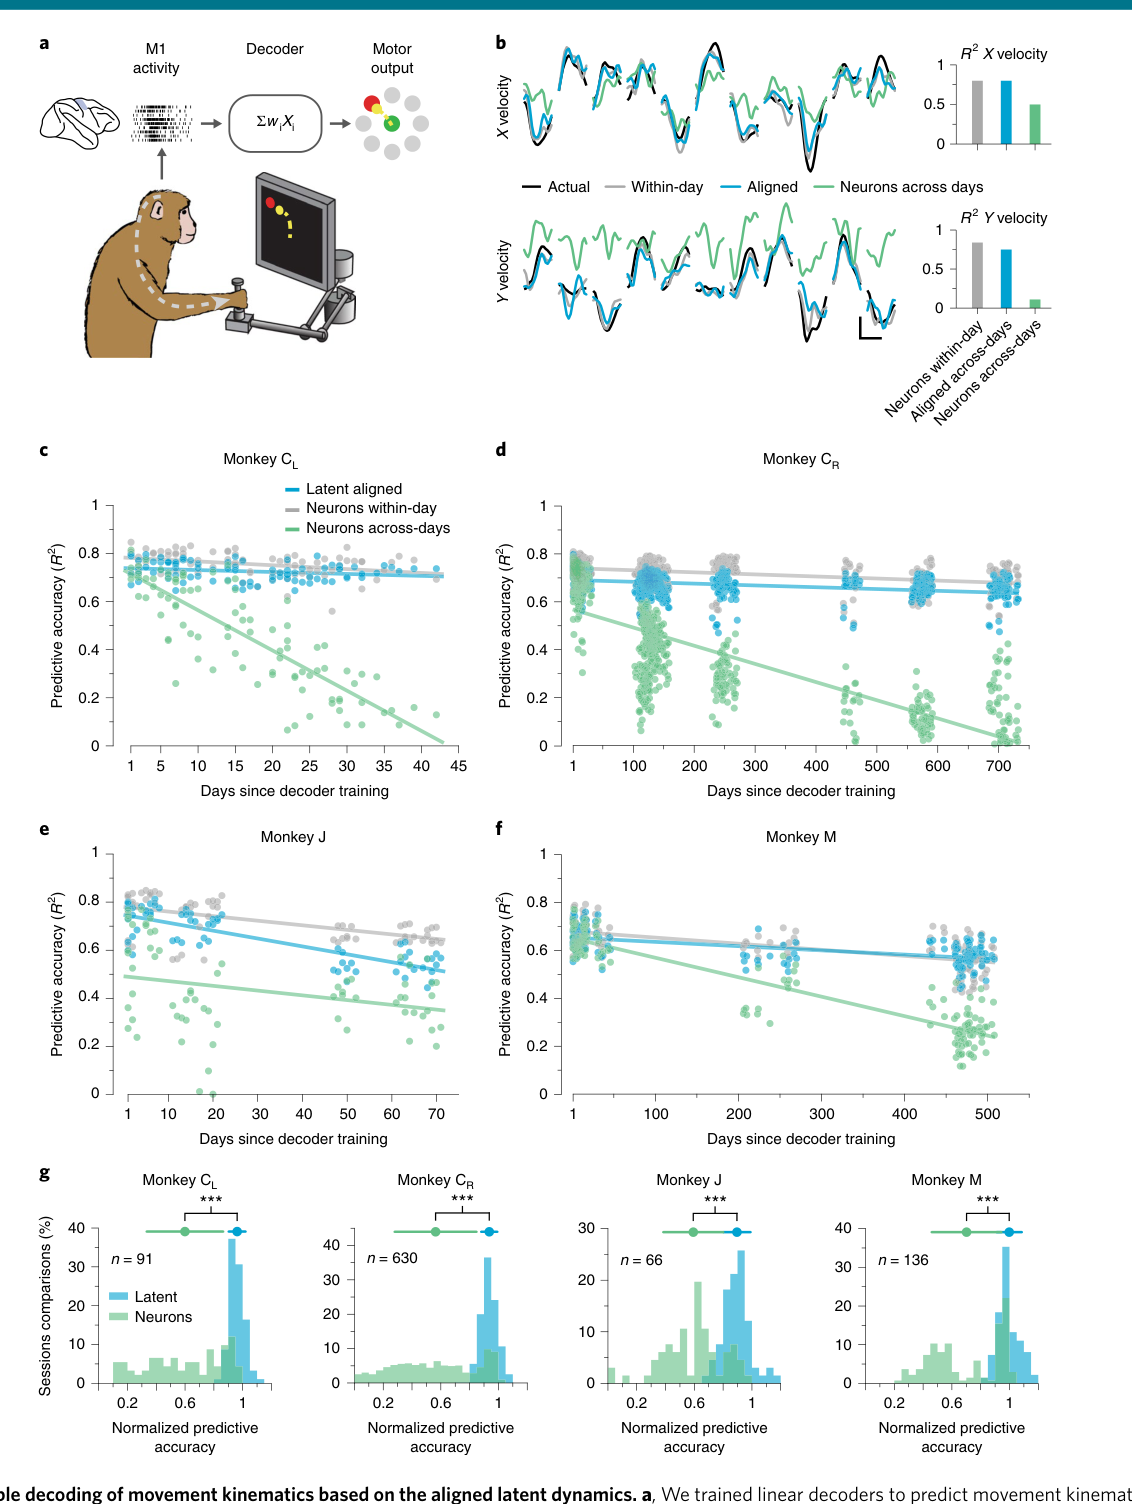
来源:原文 Fig. 5,PDF 第 6 页。
图 5 · 基于对齐 latent dynamics 的解码器跨天不掉线。 (a) 三种解码器示意:同天用神经活动训练测试、跨天用神经活动、跨天用对齐 latent dynamics;(b) 猴 CL 相隔 16 天的两次记录的手速度预测示例:对齐解码器(蓝)几乎达到同天解码器(灰)的水平,直接用神经活动的跨天解码器(绿)明显跑偏;(c–f) 四个 M1 植入的全天数对预测精度,蓝线始终贴住灰线;(g) normalized predictive accuracy 汇总:对齐解码器接近 1,基于神经活动的解码器显著更低(P<0.001)。这张图把稳定性翻译成 BCI 最关心的语言——离线结果支持经跨日对齐维持解码性能;真正长期闭环使用还需验证校准需求与稳定性。
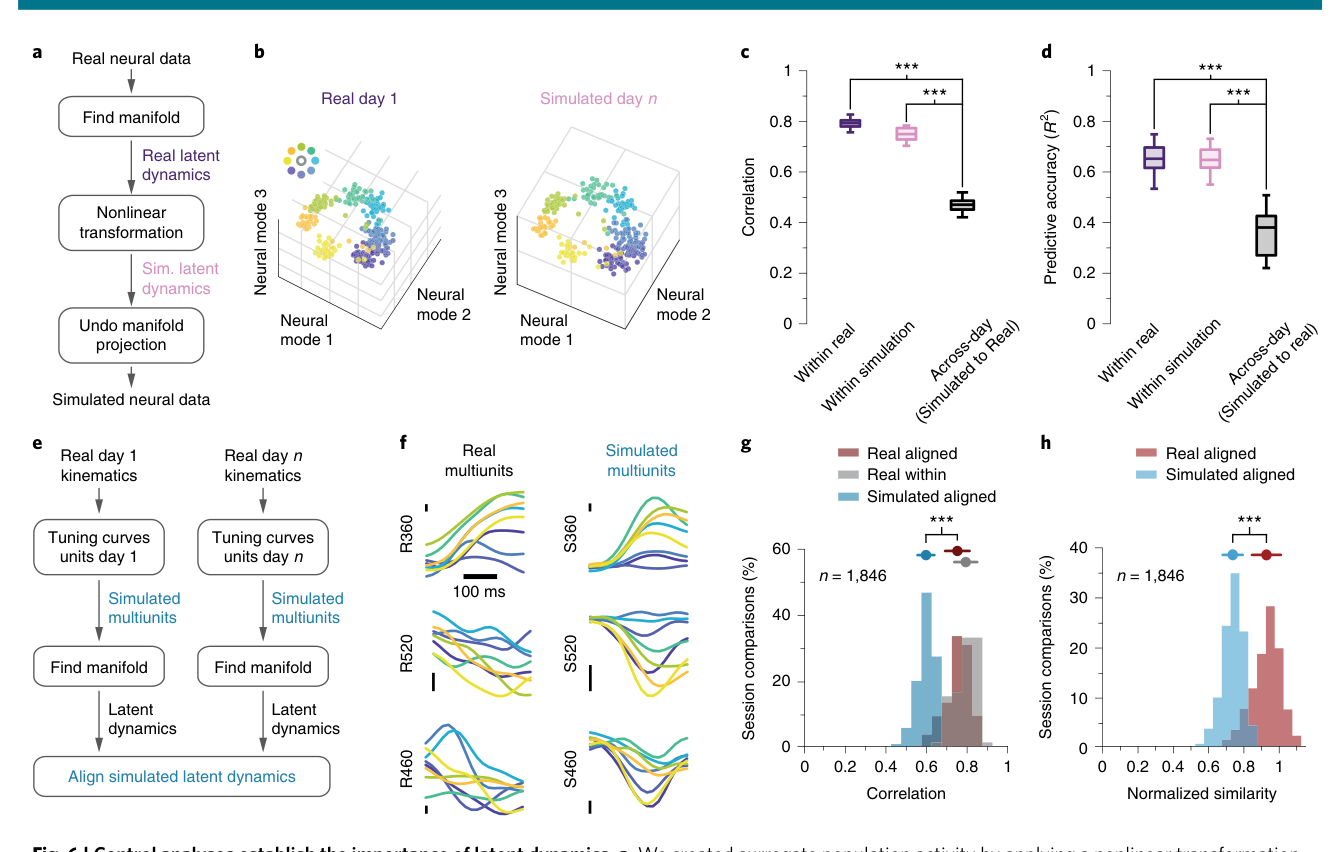
来源:原文 Fig. 6,PDF 第 7 页。
图 6 · 控制分析:稳定性不是调谐或非线性的副产品。 (a) 构造 surrogate 的流程:对真实 latent dynamics 施加非线性变换再投回神经空间;(b) surrogate 群体与真实群体一样保有流形内的目标聚类,单单元统计也相似;(c, d) 但 surrogate 与真实数据的跨天 CC 和解码精度都大幅下降——非线性变换破坏了可对齐性;(e, f) 另一个方向的控制:给每天的数据拟合速度依赖的余弦调谐曲线,把当天运动学喂进曲线生成模拟群体(示例放电率见 f);(g, h) 模拟数据的跨天 CC 显著低于真实数据,normalized similarity 差距悬殊(P<0.001)。这张图回应的是最要命的质疑——"CCA 是不是太强了、什么都对得齐"——答案是非线性替代品对不齐,纯调谐也对不齐。
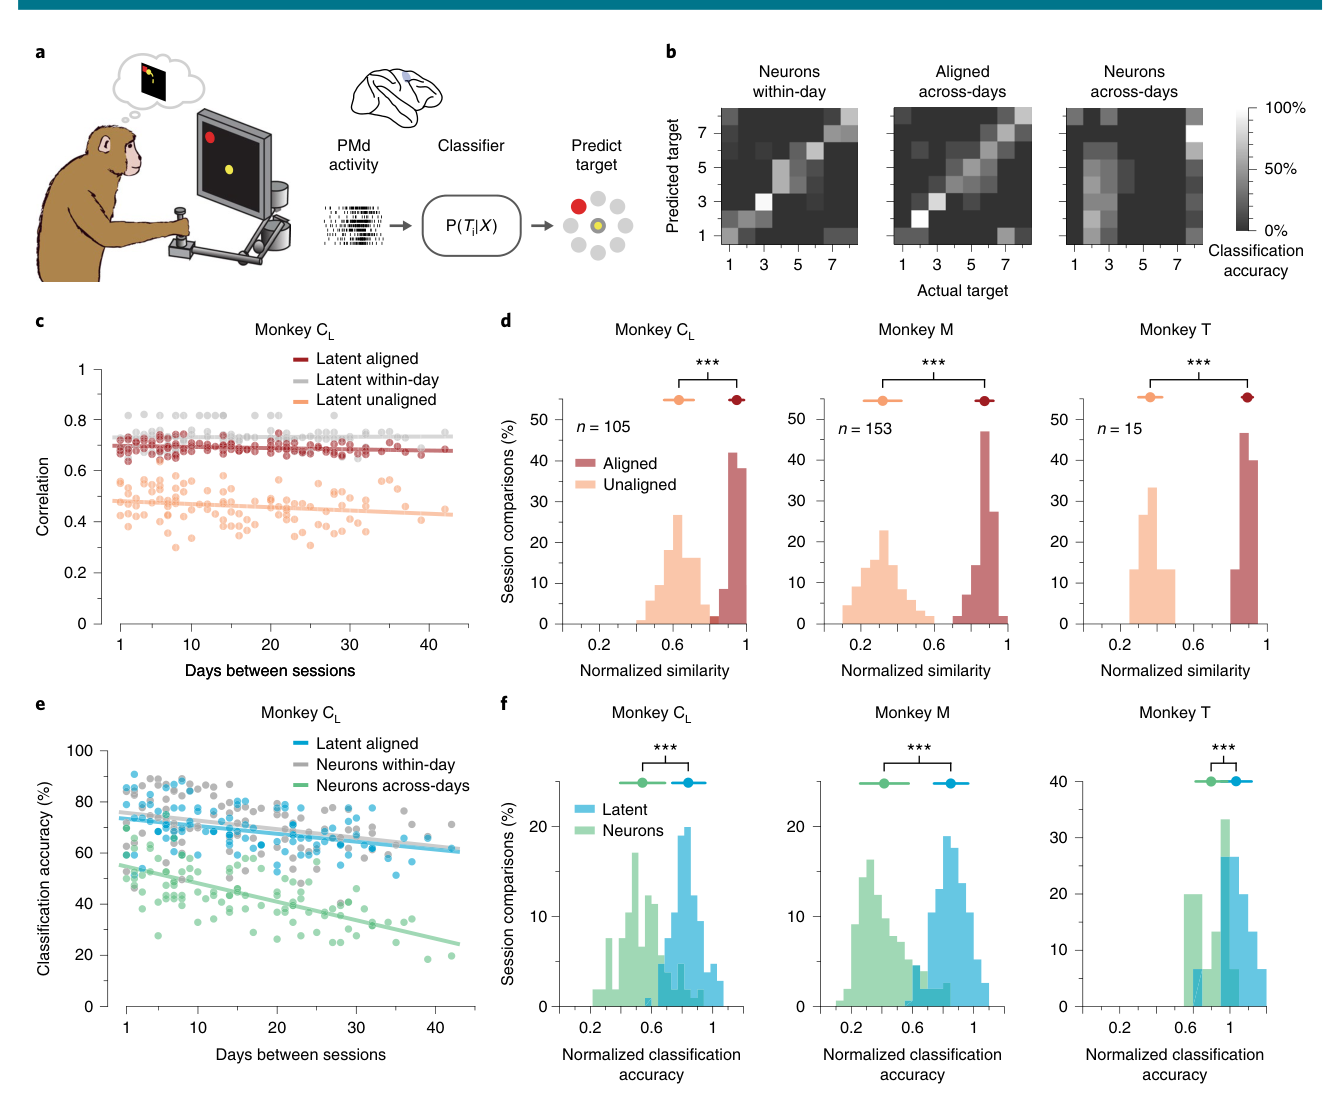
来源:原文 Fig. 7,PDF 第 8 页。
图 7 · PMd:运动规划期的 latent dynamics 同样稳定。 (a) 用运动前准备期活动预测目标方向的分类器示意;(b) 猴 CL 的混淆矩阵:同天分类器 73% 正确,跨天用对齐 latent dynamics 的分类器仍有 54%(机会水平 12.5%),跨天直接用神经活动只剩 23%;(c) 示例PMd记录的跨天相关:对齐(红)贴住同天上限(灰),不对齐(橙)明显更低;(d) 三只猴的 normalized similarity 都接近 1;(e, f) 分类精度随间隔天数与汇总。值得细品的是这里分析的是运动发生之前的准备活动——分析主要覆盖准备阶段,但窗口延伸到运动开始后60 ms,这给"稳定性不是运动输出的简单回声"额外加了一层证据。
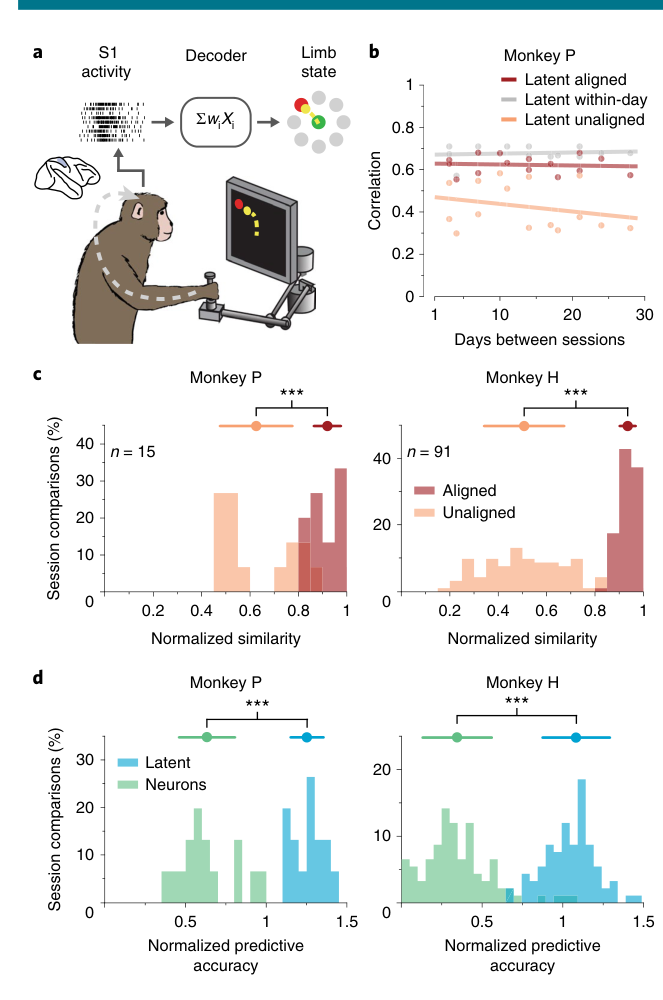
来源:原文 Fig. 8,PDF 第 9 页。
图 8 · S1:体感反馈期的 latent dynamics 也稳定。 (a) 从 S1 活动解码肢体状态的示意;(b) 猴 P 的跨天相关:对齐后接近同天上限;(c) normalized similarity 汇总(两只猴,最长约 45 天);(d) normalized predictive accuracy:对齐解码器接近 1,直接用神经活动的解码器衰退明显。S1 的活动主要由传入输入驱动而非输出去肌肉,它的稳定性说明"稳定 latent dynamics"不是运动输出端的专利,而可能是皮层处理信息的普遍性质。
讨论与解读边界
长期记录的变化既可能来自神经活动本身,也可能来自采样单元变化。本文通过低维表示与CCA对齐,从变化的记录中提取可跨日匹配的结构;替代数据和调谐模型对照说明,这种成功并不是任何数据都能被线性对齐的必然结果。
对齐使用目标和时间对应的行为条件,且需要新日期的数据;这不是无需校准的在线BCI示范。稳定结论限于熟练且相似的行为,以及可观察的低维结构,不能断言单神经元在生物学上不稳定或整个回路两年不变。各脑区时间跨度不同,不能将最长两年都套到PMd和S1。
思考问题
- 对齐时不提供目标对应关系,并仅使用少量无标签新日数据,解码性能能保留多少?
- 当动作速度、负载或策略发生变化时,长期稳定成分与真正的任务变化如何区分?