B07 · Closed-loop decoder adaptation shapes neural plasticity for skillful neuroprosthetic control
Orsborn, A.L., Moorman, H.G., Overduin, S.A., Shanechi, M.M., Dimitrov, D.F., & Carmena, J.M. (2014). Neuron, 82, 1380–1393. doi:10.1016/j.neuron.2014.04.048
在本文有限、按需的闭环解码器适应方案下,猕猴仍能形成并保留 BMI 技能。神经调谐的变化与行为改善及解码器参数有关,但并非由这两个因素完全决定。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
闭环 BCI 的解码器需要适应神经信号变化,但算法不断更新也会让动物面对一个持续变化的控制对象。由此出现“两个学习者”的问题:算法和动物都在调整时,性能提高究竟来自哪一方,稳定的运动技能又能否形成?如果映射每天或每次试次都改变,动物也许不必学习;如果只固定映射,早期控制困难又可能大到无法练习。如何在算法提供可用性的同时保留足够的稳定练习期,是解码器适应研究必须解决的设计问题。
技能也不只是一天内的成功率提高。真正的技能应能跨日保留、对不同解码器表现出特异性,并在其他身体活动干扰下仍可使用。神经层面则需要区分几种变化:某些单元可能因被解码器赋予更大权重而改变调谐,某些变化可能只是记录漂移或练习的一般效应;群体调谐图若与行为改善同步稳定,才支持技能相关表征的形成。解码器自身的参数还能提供直接对照,检验误差和被算法“重用”的程度是否与单元适应相关。
Orsborn 等采用有限的闭环解码器适应:初始化阶段和性能明显下降或丢失单元时短暂更新,其余时间保持映射固定,让动物在跨日练习中继续学习。研究比较训练后的保持、重训对照、调谐图稳定和自然手臂等长用力干扰,并分析单元变化与解码器参数的关系。它要回答的是,有限算法修补能否与稳定技能共存,神经可塑性是否按任务误差和解码器结构定向发生,以及这种技能能否抵抗部分自然运动干扰。这里的“双学习者”不是算法始终变化,也不意味着任意更新策略都有利于学习;相关关系仍不能完整证明神经变化的全部原因。
研究思路
CLDA主要用于初始化及性能明显下降时的短暂修复,其余时段保持解码器固定。跨天行为和调谐、重训对照及同时等长用力任务,分别检验改善、稳定性和与自然运动的兼容性。
方法
两只雄性恒河猴(猴 J、猴 S),双侧大脑 M1 手臂区慢性植入 128 通道微丝电极阵列;猴 S 采用离线脉冲分选的多单位放电,猴 J 采用通道级负向阈值穿越事件(固定为 5.5 倍标准差阈值),统称为神经单元。实验任务为二维自定步调延迟中心向外到达任务(包含 8 个外周目标):动物术前在 KINARM 外骨骼工作站中经历过度训练(手动控制阶段),脑机接口测试时双臂置于实验椅内,不参与任务空间控制。运动解码器采用位置-速度卡尔曼滤波器,运算时间窗为 100 ms,读出神经元群体规模为 11–23 个单元(均值与众数均为 16 个);初始滤波器参数通常自注视光标移动的被动观察数据经最大似然估计拟合获得。在线解码器自适应(CLDA)采用 SmoothBatch(猴 J,限制更新观测矩阵 C 与 Q 并施加平滑正则)或 ReFIT 算法(猴 S,全面重构卡尔曼滤波器参数),两者均基于反推意图的目标方向进行权重迭代。第 1 天初始校准阶段运行 5–15 分钟 CLDA 以建立初始可用控制;随后阶段仅在达标成功率下降约 10–20% 或发生记录单元丢失时,执行 3–5 分钟的短暂微调,每次微调仅替换群体中 1–2 个失效单元(约占总体的 10%)。行为指标统计每日测试前 300 次试次的正确率、完成速率与运动学轨迹误差;神经调谐分析限定于测试周期 ≥3 天且解码参数固定 ≥2 天的学习序列(猴 J 包含 10 个序列,猴 S 包含 4 个序列),学习早晚期依据行为学达标标准(晚期定义为三项行为指标均达到该序列最佳水平的 20% 以内)划分。每个神经单元每日拟合余弦方向调谐曲线以提取调制深度(MDU)与择优方向(PDU),早晚期变化显著性依据 95% 置信区间是否重叠进行判断;群体水平的“调谐地图”(tuning map)由当日全部单元的调谐曲线构成并计算逐日配对相关。卡尔曼滤波器本身的调谐参数(MDCv、PDCv 等)直接从观测矩阵 C 中解析提取,用于检验算法先验设置对神经可塑性的导向作用。
主要结果
行为测试显示,在有限度的算法自适应干预下,动物能够稳步习得长效运动技能。两只猕猴在跨天测试中表现出持续的行为改善(猴 J 累计完成 13 个序列,猴 S 完成 6 个序列):首日 CLDA 介入后,模型性能得到迅速提升;参数冻结后,任务成功率继续平稳爬升,运动轨迹曲率与离散误差显著下降;单日内习得的控制表现可稳定保留至次日首轮测试,无需重复初始化。对比对照实验表明该改善具有解码器特异性:若每日均采用 CLDA 从完全随机的初始权重和不同的电极组合建立控制,动物的运动轨迹缺乏平滑改善且逐日波动剧烈;当临时替换为未经训练的新解码器时性能即刻瓦解,切回原解码器后控制表现迅速复原。此外,在猴 J 上进行的连续自适应补充测试(每日继承前日参数持续微调且单元群体半固定)表明,适度连续的算法更新并未破坏技能的持续学习。
神经电生理分析表明,皮层表征随技能习得逐步形成稳定的功能构型。单神经元的调谐特性在训练早期发生连续微调(MDU 与 PDU 渐进演化),群体调谐地图在序列后期呈现高度的跨天稳定性,其相关系数的收敛曲线与行为正确率的爬坡轨迹紧密吻合。这种神经表征稳定化未见于手部外骨骼运动或被动注视任务,且少数通道的替换未破坏全局地图的收敛。行为改善幅度与神经调谐变化量之间存在显著相关:跨 14 个学习序列的汇总分析显示,该序列行为改善幅度越大,其晚期调谐地图相对初始状态的偏移量越大(R = 0.8, p < 0.0007);群体平均的调制深度变化量 ΔMDU 与改善幅度的相关系数达到 R = 0.84(p < 0.0002),择优方向变化量 ΔPDU 的相关系数为 R = 0.67(p < 0.009),同时发生深度与方向重构的单元比例与改善幅度呈正相关(R = 0.74, p < 0.004)。算法参数在这一过程中对神经元重构起到导向作用:被解码器赋予更高速度加权系数(MDCv)的单元表现出更显著的调制深度增长(R = 0.26, p < 10⁻⁴);单元初始择优方向与算法先验方向偏差越大,其后期的择优方向偏转幅度也越大(R = 0.22, p < 10⁻⁴)。时序分析表明,训练晚期神经元表现出方向调谐起始时间前移以及放电峰值提前的特征(两只猴均达 p < 10⁻⁴),且光标运动速度峰值亦发生同步提前。
外周抗干扰测试验证了运动技能的稳健性。在猴 J 执行脑机接口任务的同时引入右臂等长肌力维持任务(BMI-SC 范式,共 5 个序列,与脑控使用相同半球记录):外周肌力输出对脑机接口控制产生了显著的暂时性拖累,表现为各神经元的择优方向发生非特异性发散、调制深度普遍变浅。然而,穿插肌力干扰训练未破坏基准脑控技能的形成与跨天记忆保留;BMI-SC 条件本身的任务表现在序列内部亦逐步提升;至训练晚期,肌力干扰引发的神经元择优方向偏差显著收缩(p < 0.03),表明成熟的皮层表征对自然运动干扰具备一定的抵抗力。
逐图解读
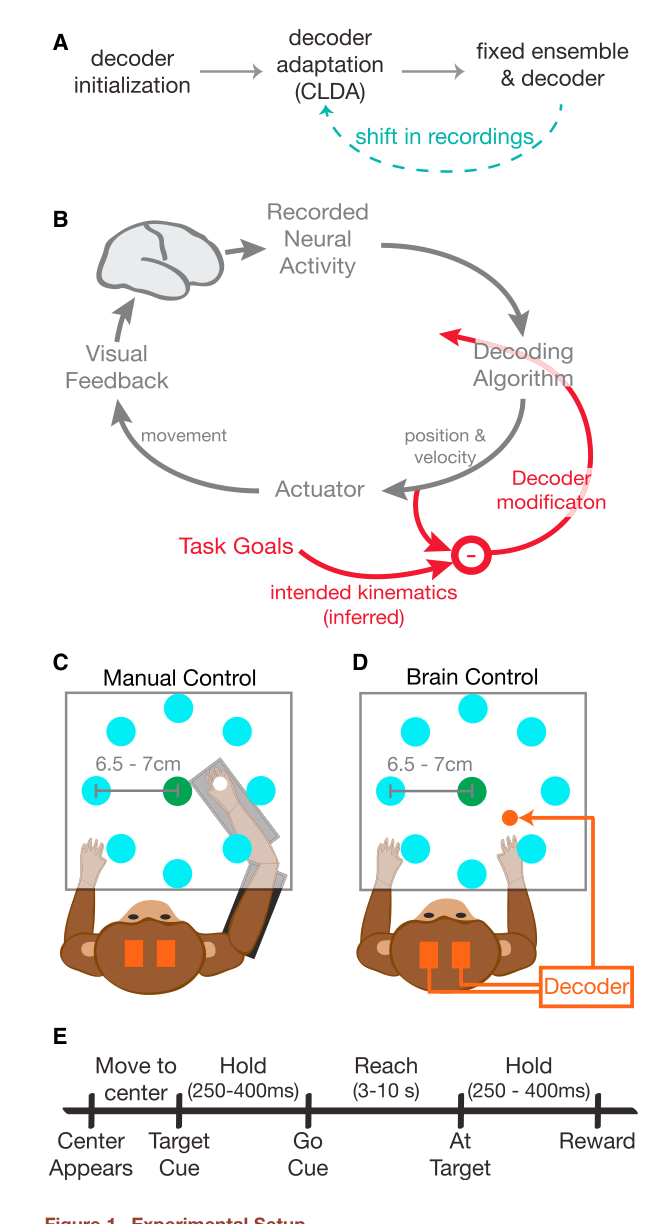
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · "双学习者"范式。 (A) 范式流程:每个 series 从初始解码器(通常由观察光标训练)出发,day 1 做 CLDA 提升性能,之后解码器冻结给神经适应留出空间;只在丢单元或性能下跌时插入短暂 CLDA。(B) CLDA 示意:闭环系统(灰)运行中,算法(红)根据估计意图实时修改解码器参数。(C, D) 两只猴分别在 KINARM 外骨骼里做手动控制(C)与手臂收进猴椅做脑控(D)。(E) 自定步调延迟 center-out 的时间线。这张图是全文的"宪法":CLDA 的每一次出手都被刻意限制在"救场"而非"代劳",让两个学习者的贡献可以被分离。
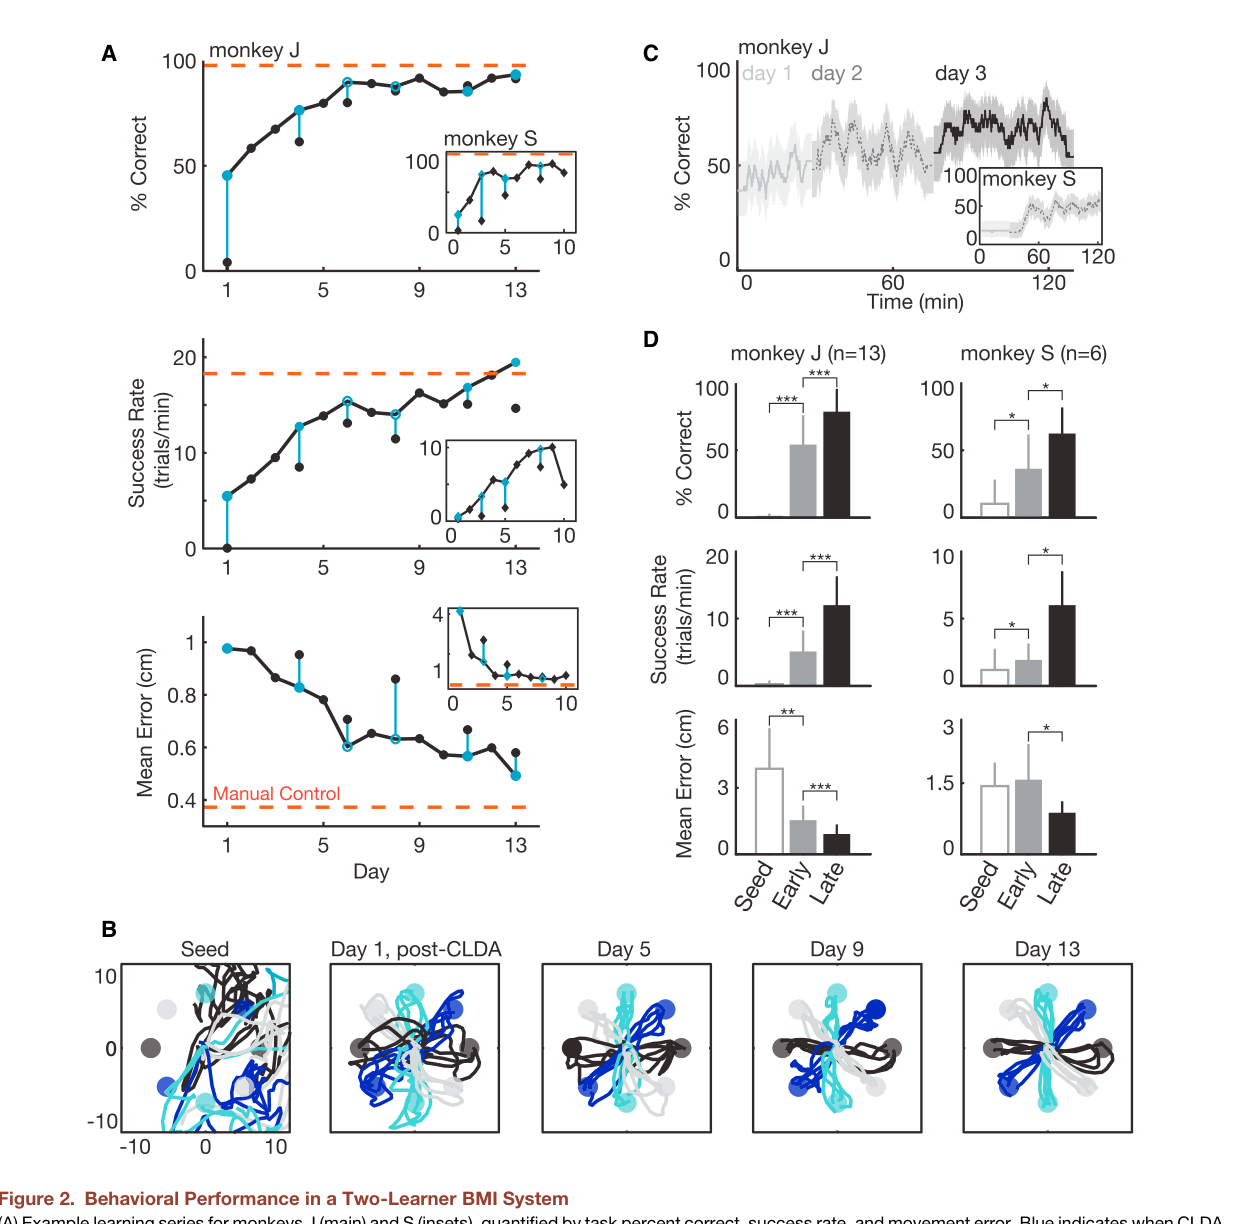
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · 双学习者系统中的技能形成。 (A) 示例 series(monkey J 主图、monkey S 内嵌)的 percent correct、success rate 与 movement error:蓝色标记 CLDA 时段、空心圈标记伴随单元更换的 CLDA,橙色线是各自的手臂控制水平——CLDA 后成绩持续爬升,中途 CLDA 的短暂打断也拦不住改善。(B) 同一 series 逐日的代表性轨迹(每方向 5 条,Seed 阶段因控制太差无足够轨迹):从大面积溃散收敛为干净的直线到达。(C) 天与天之间的保留:day 1–3(J)的 50-trial 滑动平均显示当天内部学习、次日开局即高位,无需重学。(D) 全部 series(J 13 个、S 6 个)的汇总:Seed、Early(day 1 CLDA 后)、Late(系列最佳)三点的三项指标全部显著改善。这张图回答存在性问题:解码器边用边改,技能照样形成并保留。
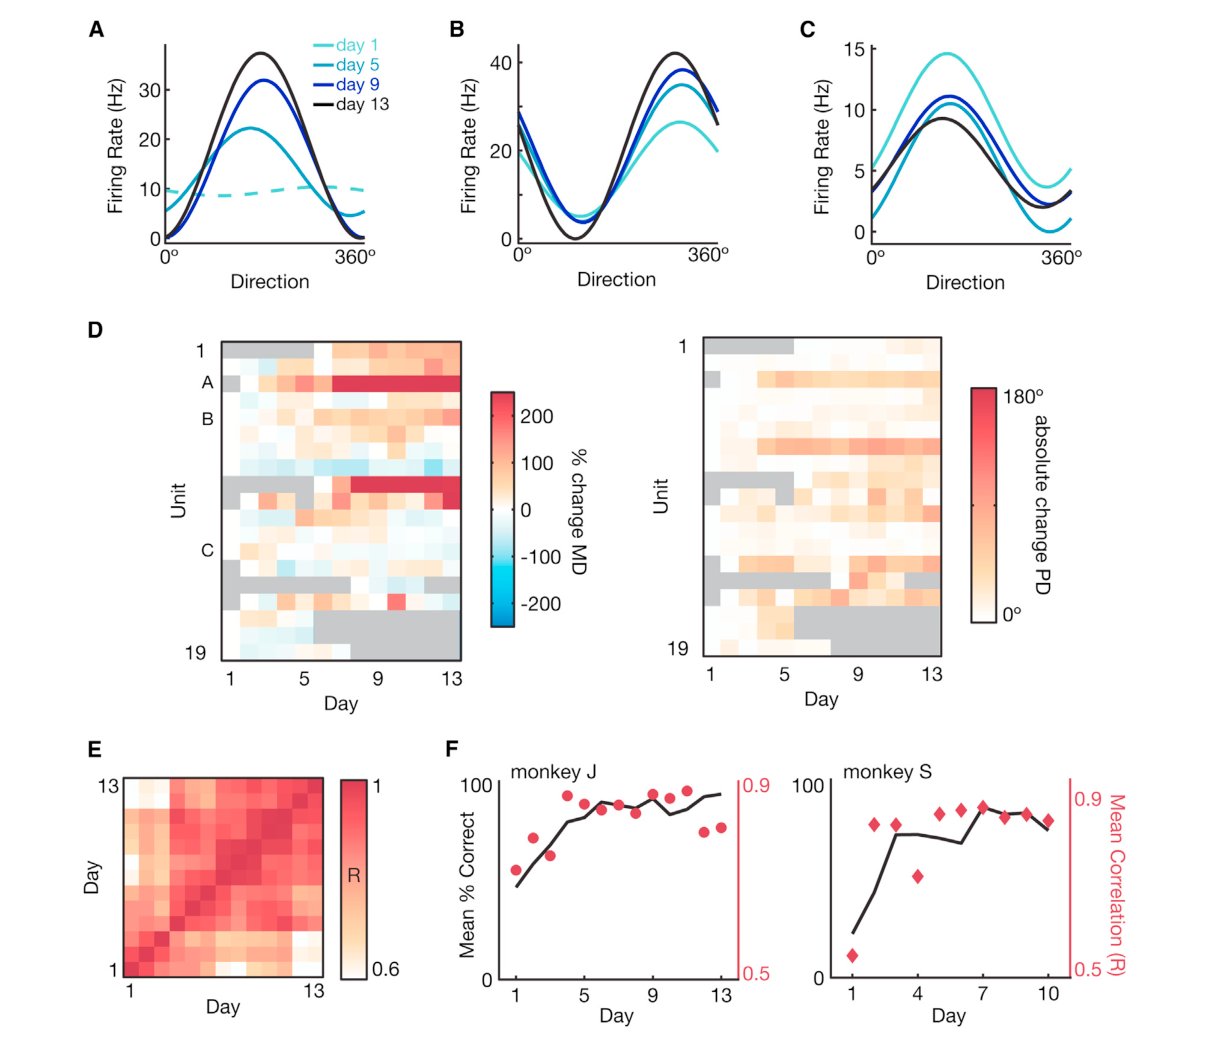
来源:原文 Fig. 3,PDF 第 5 页。
图 3 · 调谐变化与 map 巩固。 (A–C) 三个示例单元在 13 天 series 中的余弦调谐拟合,颜色由浅到深表示天数:MDU、PDU 都在缓慢漂移,虚线为不显著的拟合。(D) 全部 BMI 单元的 ΔMDU 与 ΔPDU(相对首日,按末日调制深度排序,灰色为中途缺席或不显著):变化是普遍的但幅度参差。(E) 逐日 tuning map 的两两相关矩阵:后期行与列彼此更亮,群体表征在收敛。(F) 逐日平均 map 相关(红)叠加在 percent correct(黑)上,两条曲线的时间进程几乎重合——行为改善与表征稳定化同时出现。这张图确立了"map 在双学习者系统里照样巩固",也为图 4 的机制分析搭好舞台。
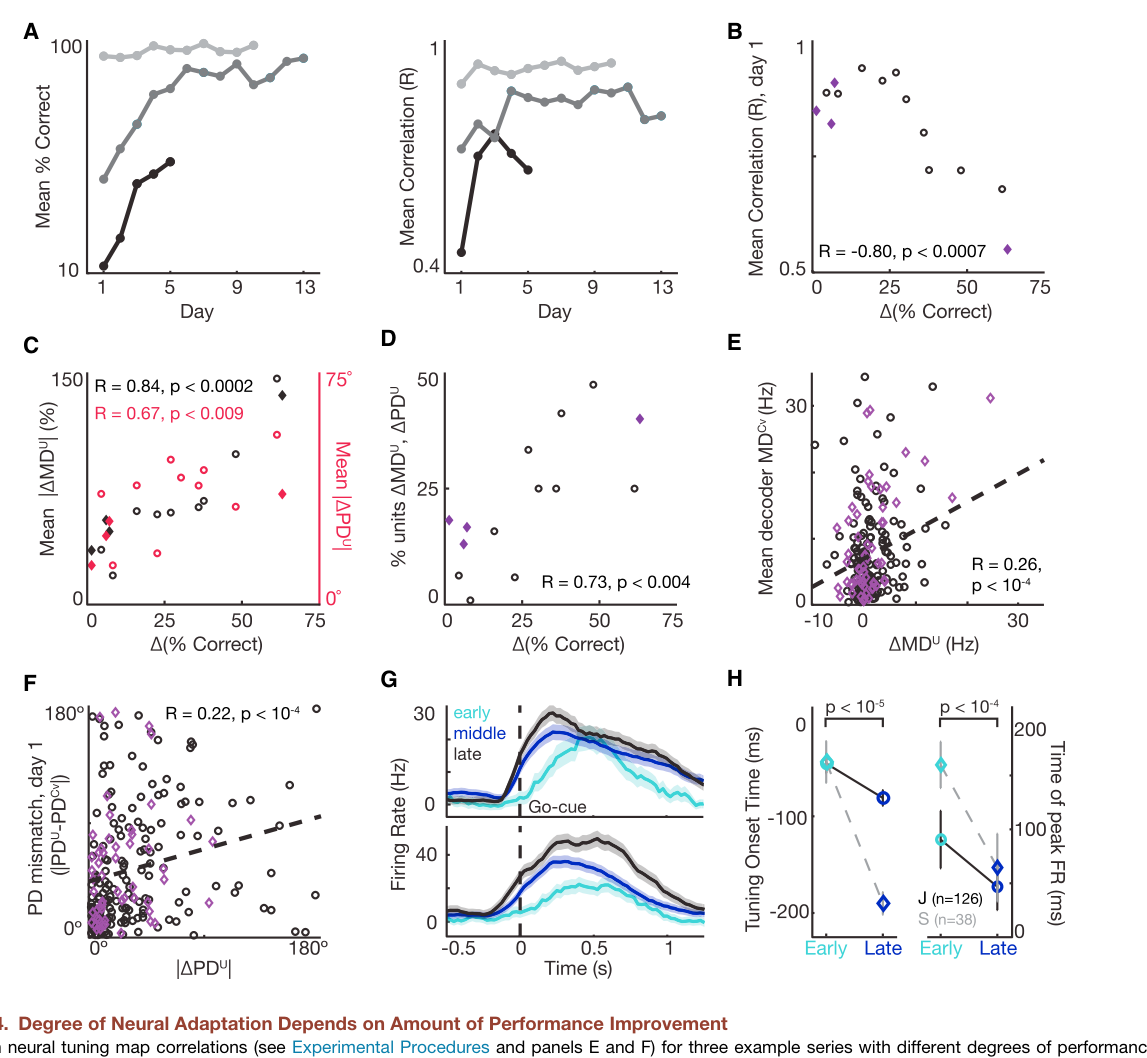
来源:原文 Fig. 4,PDF 第 7 页。
图 4 · 神经适应幅度与性能改善及解码器性质相关。 (A) 三个改善量(及 CLDA 量)不同的示例 series 的平均 map 相关:改善小的 series 地图从一开始就稳,改善大的 series 地图逐渐偏离初始状态;黑线来自一个无 CLDA 的 Wiener filter 系列(仅作示意)。(B) 汇总 14 个 series:初始 map 与后续各天的平均相似度随该 series 行为改善量系统性变化(R = 0.8,p < 0.0007)。(C) ensemble 平均的 ΔMDU(黑)、ΔPDU(红)与改善量的关系:R = 0.84 与 0.67,改善量与神经变化量相关。(D) 同时改变 MDU 与 PDU 的单元比例与改善量相关(R = 0.74)。(E) 单元 MDU 的增幅与解码器赋予它的速度调谐深度 MDCv 正相关(R = 0.26,p < 10⁻⁴)——被算法"重用"的单元被大脑加强,credit assignment 的迹象。(F) PD 变化量与初始解码器 PD 误差正相关(R = 0.22):算法指错了方向,大脑就改方向。(G) 示例单元在 early/mid/late 的 go-cue 对齐 PSTH:发放峰值更高也更早。(H) 全体单元的调谐起始时间与峰值时间早晚期对比(J 圆点、S 菱形),两项都显著提前。这张图是全文机制密度最高的一张:神经可塑性不是无差别的增益,而是按误差和算法结构定向分配的。
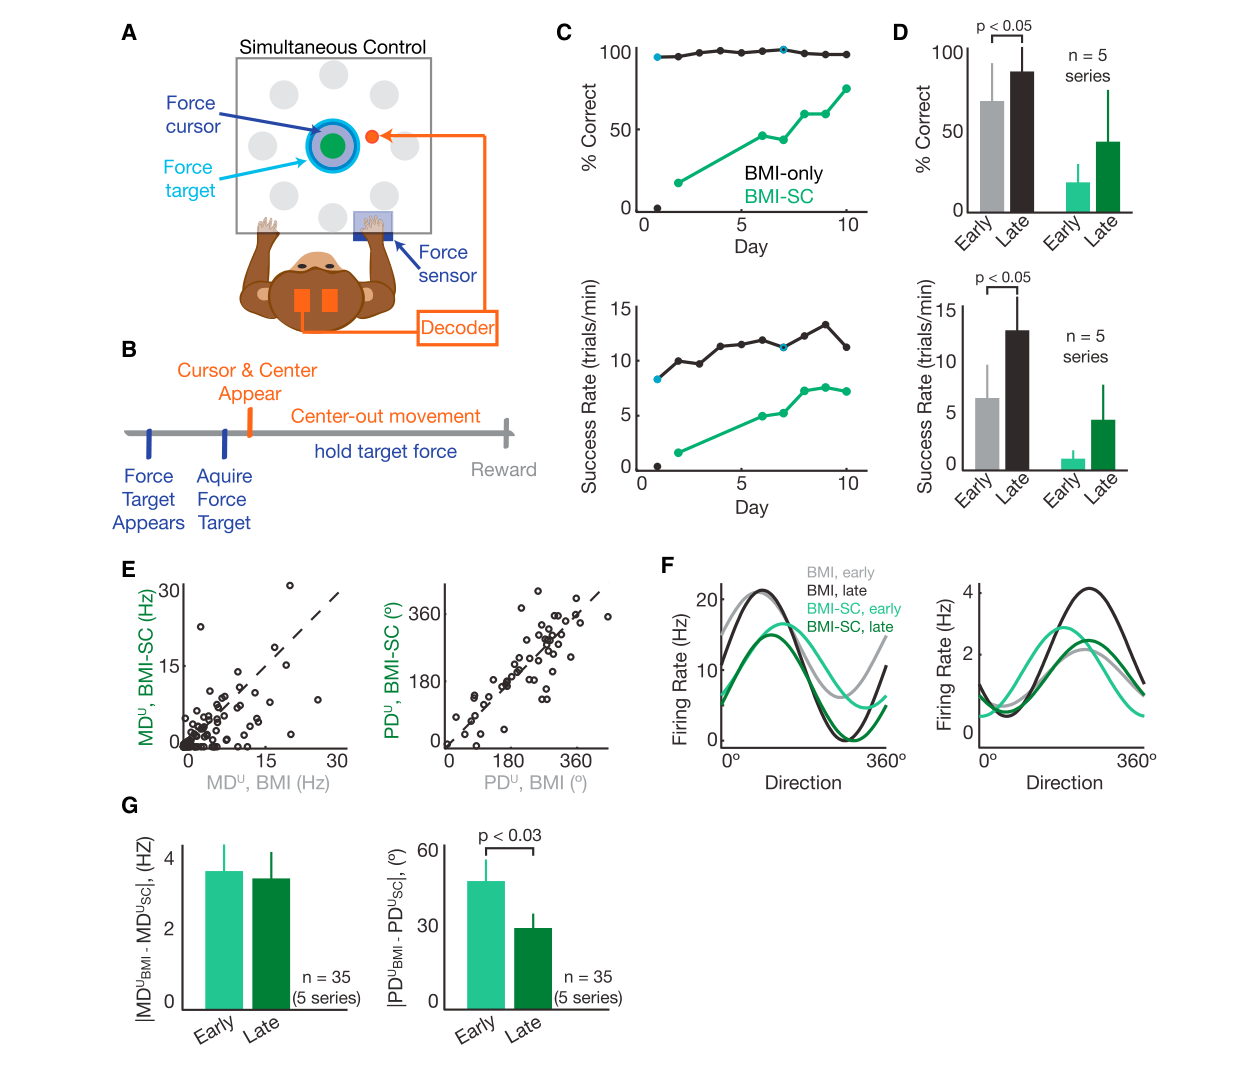
来源:原文 Fig. 5,PDF 第 9 页。
图 5 · 对自然运动网络干扰的抵抗。 (A, B) BMI-SC 任务:monkey J 右臂等长用力维持力目标(力光标与力环),达标后触发 BMI 光标出现,在持续用力的同时完成 center-out 到达。(C) 示例 series:黑为 BMI-only 成绩(蓝为 CLDA 时段)、绿为 BMI-SC 成绩——用力任务确实拖累 BMI,但 BMI-only 的改善与保留不受影响,BMI-SC 自身也在 series 内好转。(D) 5 个 series 的平均 early/late 对比。(E) 首日 BMI-SC 与 BMI-only 的调谐参数对比:PD 扰动方向均匀分布,MD 一致变浅——手臂活动确实在扰动 BMI 的神经地图。(F) 两个示例单元 early/late 在两种情境下的调谐拟合:晚期的 BMI-SC 调谐向 BMI-only 靠拢。(G) 定量结果(限于双任务双阶段都显著调谐的 35/78 个单元):PD 扰动随学习显著缩小(p < 0.03),MD 扰动无显著变化。这张图把"技能"最实用的性质——在干扰环境下仍可用——落到了数据上,也顺手指出这层保护并不完整。
讨论与解读边界
主要实验采用初始 CLDA 加按需短时修补,随后留出固定映射的练习期。“双学习者”因此不是解码器每个时刻都在持续变化,也不意味着任意更新策略都不影响技能形成。本文同时显示:算法维持可用性时,动物仍可继续学习并形成相对稳定的调谐结构。
性能改善量与神经变化的关系主要来自跨学习系列的相关,解码器参数与单元适应的相关也只解释部分差异。单只动物的双任务实验中,手臂用力仍会损害 BMI 表现;学习减弱了部分干扰,未消除所有干扰。准备活动和运动时间提前,更不能直接解释为动物违反指令、提前抢动。
思考问题
- 如何在相同初始性能下随机分配 CLDA 更新频率,以区分算法收益与动物练习的作用?
- 技能保持能否迁移到更复杂的自然手臂动作,而不只是在等长用力中保持部分稳定?