A01 · Motor cortical representation of position and velocity during reaching
Wang, W., Chan, S.S., Heldman, D.A., & Moran, D.W. (2007). Journal of Neurophysiology, 97, 4258–4270. doi:10.1152/jn.01180.2006
在降低手位置与速度相关性的三维伸手任务中,M1 活动同时携带两类运动学信息,二者的相对权重随运动阶段变化。加性模型和离线群体解码支持这一描述,但不等于证明了两套独立的神经控制机制。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
伸手时,位置、方向和速度通常一起变化,因此神经元与某个变量相关,并不足以确定它主要反映哪种信息。本文关注自然伸手速度范围内,M1的位置与速度调制能否分别估计,以及两者是否可用加性模型描述。
研究思路
作者改变三维伸手的起终点,降低位置与速度的相关性,再分别估计位置梯度和偏好方向。静止保持与运动时段提供互补约束,调谐曲线的平移或缩放用于比较加性与乘性解释,最后用离线解码检验两类信号及其时延。
方法
两只食蟹猴(Macaca fascicularis),头固定坐在定制灵长类椅里,在 VR 环境中用右臂够目标:图形工作站渲染 3D 图像,经 LCD 和 45° 镜子反射进猴眼,Optotrak 3020 以 100 Hz 实时追踪手部标记并驱动虚拟光标。三套任务按顺序做:经典 3D center-out(8 个目标位于 10 cm 立方体顶点,每目标 5 次重复,每神经元 40 次运动);random reaching(起终点均随机,每神经元约 100 次运动,长度、时长、速度各不相同);standard reaching(64 条对角线运动,伪随机呈现,每神经元完整一套)。神经记录用 16 通道微驱动(电极线性排列、间距约 300 μm、1 μm 步进),其中一只猴附加慢性 Michigan 阵列;共 978 个单神经元,全部来自 rostral M1(仅 gyrus,不含中央沟 bank)的近端手臂区,两只猴两个半球,多数对肩和/或肘的被动 manipulation 有反应。行为量级:15,395 个 trial 的平均 hold-A 为 417±205 ms,运动时间 545±242 ms,hold-B 为 434±222 ms——典型的快速弹道式伸手。放电率用 partial binning 加平方根变换估计,跨神经元平均前按 RMS 归一,显著性一律 p<0.05 的多重回归。
主要结果
第一层是调谐的"群体统计"。978 个神经元中 542 个(55%)对 3D 速度显著调谐,312 个(32%)对 3D 位置显著调谐,其中 200 多个两者兼有(不同分析中为 222–230 个)——位置和速度确实同时住在单个 M1 神经元里。参数分布也量化了:两类神经元的基线放电率都服从指数分布(位置调谐的平均 14 Hz,速度调谐的 12 Hz),相对调制深度服从 Gamma 分布,位置的平均相对深度 37%、速度的 87%;对双调谐神经元做回归得 mpos = 11.59 + 0.28·mvel(r² = 0.33),作者据此概括速度调制通常强于位置调制;由于拟合含截距,不能将斜率倒数当作每个神经元的固定倍数。PD 和 PG 的 3D 分布都非均匀,都向前后方向聚集(PD 只在冠状面均匀,PG 在冠状面还偏向右上),这与 Scott et al. (2001) 用手臂力学各向异性解释 PD 分布的说法对得上。但 PD 和 PG 的夹角平均 65±41°、球面相关仅 0.4,旋转对齐分析显示两者没有任何系统的 3D 相对构型。这些结果表明两类向量不完全重合,不能据此断言二者统计独立。
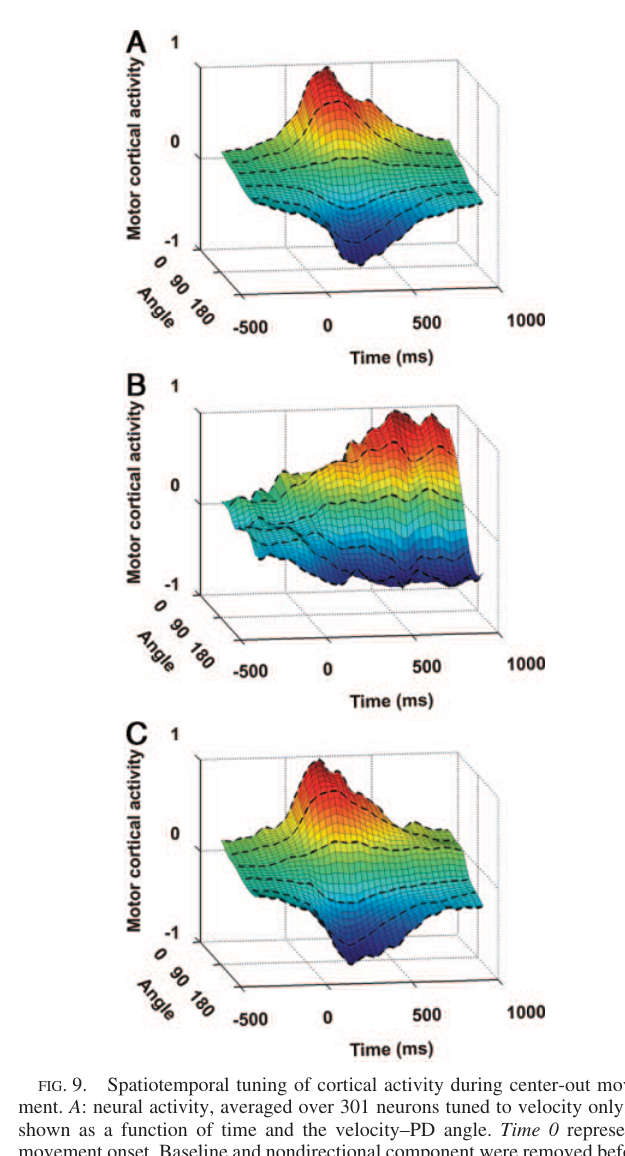
第二层是加性检验。把运动按"发生在 preferred 位置还是 antipreferred 位置"分成两类:preferred 位置里的速度调谐曲线整体上移,调制深度不变;反过来,沿 PD 方向的运动也让位置调谐曲线上移。在这些条件下,曲线主要表现为平移,支持 Eq. 2 的加性描述;这不排除其他任务或尺度上的非线性交互。时空调谐面直观地展示了这一现象:301 个纯速度神经元的活动跟着方向和速度走,画出钟形的速度包络,hold-B 期归零;79 个纯位置神经元不追速度、追位置,运动结束后调制仍然存在;222 个双调谐神经元则是两类调制的叠加,表面在运动末端翘起。
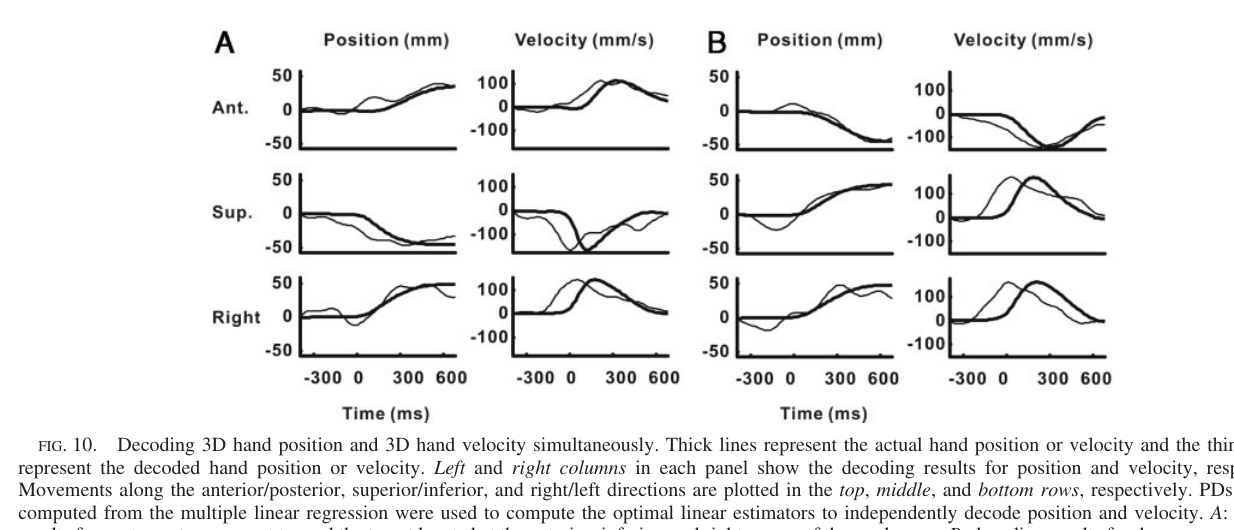
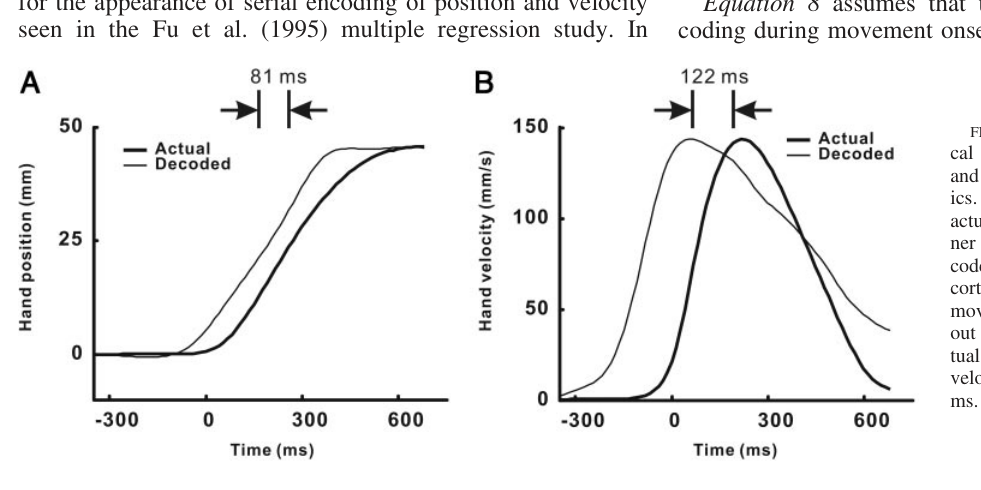
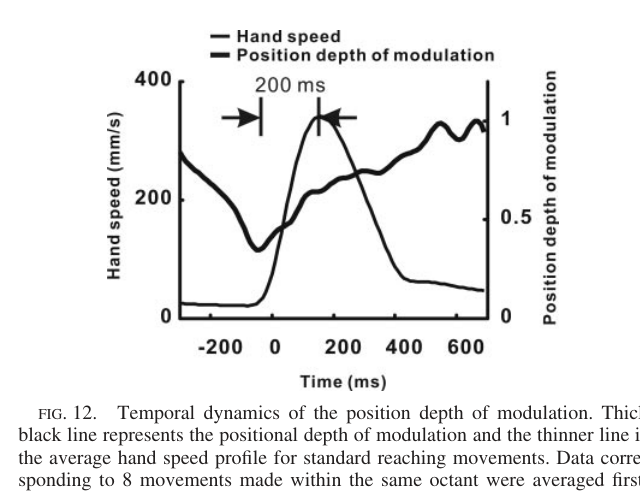
第三层是解码与时间动力学。indirect OLE 用 224 个位置神经元和 387 个速度神经元(编码向量来自 standard/random reaching,测试在 center-out 上做)同时解出 6 个自由度:位置 r² = 0.76,速度 r² = 0.83;重建的速度信号领先真实手速度 122 ms(与 Moran & Schwartz 1999b 的 145 ms 相近),位置信号领先 81 ms——两个表征的时间提前量并不相同(正文与图 11 的 A/B 面板标注互换,数字以摘要和图注为准)。值得关注的是时间动力学分析:把每条 trial 切成 100 个时间 bin(运动 40 个、前后各 30 个),逐 bin 拟合位置调谐,位置的调制深度在运动即将开始前显著下降、到运动末端逐渐恢复;最低点比最大手速度滞后 200 ms,且与时间平移后的速度成反比。位置的编码权重不是常数,运动中让位给速度信号——作者据此提出给位置梯度乘上速度依赖权重 w(V) 的改进模型(Eq. 8)。
逐图解读
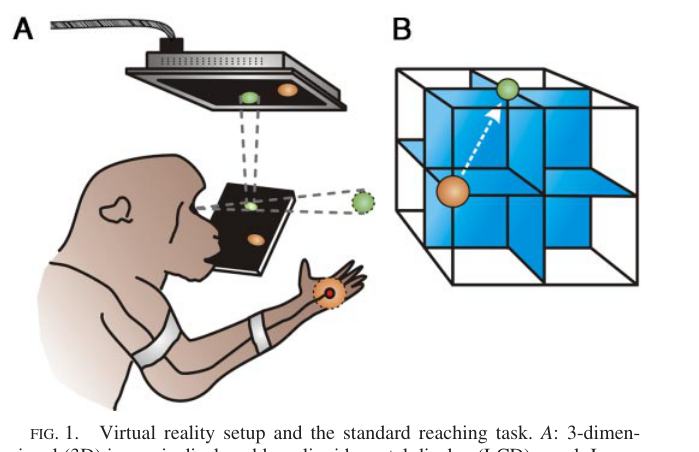
来源:原文 Fig. 1,PDF 第 2 页。
图 1 · VR 装置与 standard reaching 任务。 (A) 装置:LCD 图像经 45° 镜子反射进猴眼,橙色球是光标、绿色球是目标;(B) 任务:100 mm 立方体均分为 8 个卦限,每卦限 8 条对角线运动、共 64 条。这张图论证的是"解相关可以靠任务设计实现":同一片位置区间被朝各方向的速度穿过,center-out 那种"从中心出发、位置与速度绑定"的结构被刻意破坏,而运动本身仍是刻板的 3D 伸手。
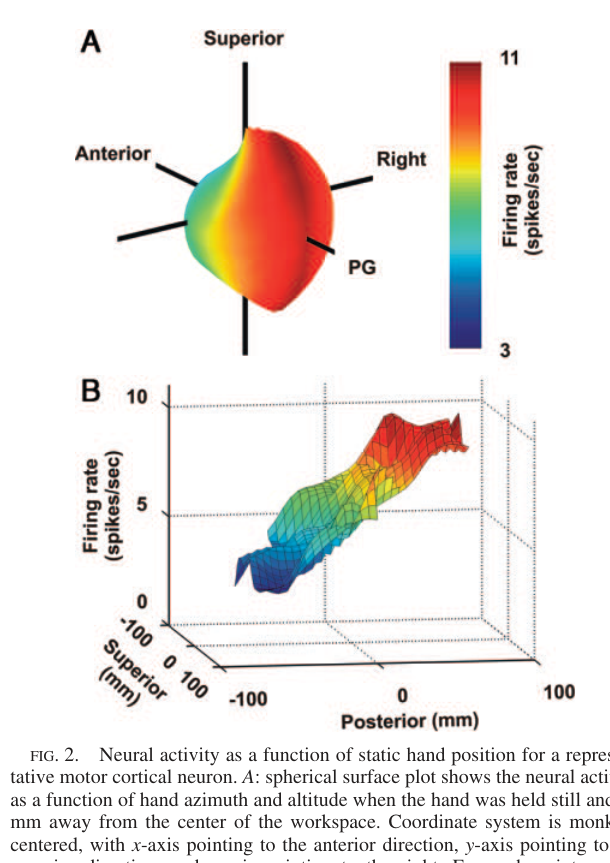
来源:原文 Fig. 2,PDF 第 5 页。
图 2 · 静态位置调谐的代表性神经元。 (A) 手位于工作空间中心 80 mm 处、按方位角/仰角采样时的球面放电图,这个神经元偏好手在后方;(B) 数据沿垂直于位置梯度的方向平均后,放电率随手的前后、上下位置线性变化。它验证的是 Kettner et al. (1988) 的线性位置模型在 3D 静息 hold 期的成立——这是后续编码模型采用线性位置项的依据之一。
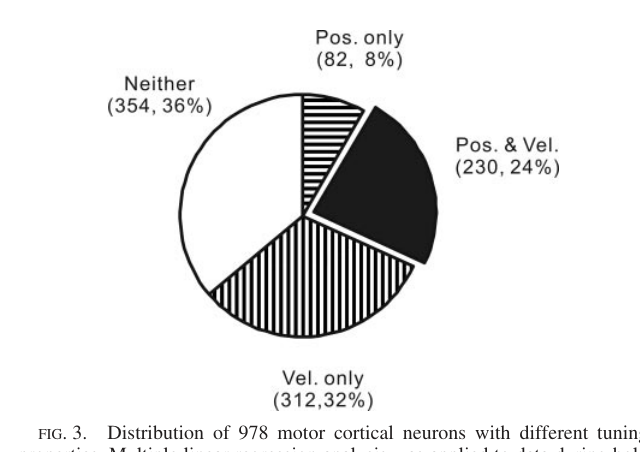
来源:原文 Fig. 3,PDF 第 6 页。
图 3 · 978 个神经元的调谐性质普查。 按 hold 期(位置)与运动期(速度)分别做多重回归后的分布:542 个对速度显著、312 个对位置显著,交集相当大。读法上这是全文的样本量与效应量声明——位置表征不是少数神经元的现象,而是约三分之一 M1 近端手臂区群体的属性,且 pooling 了三种任务的数据。
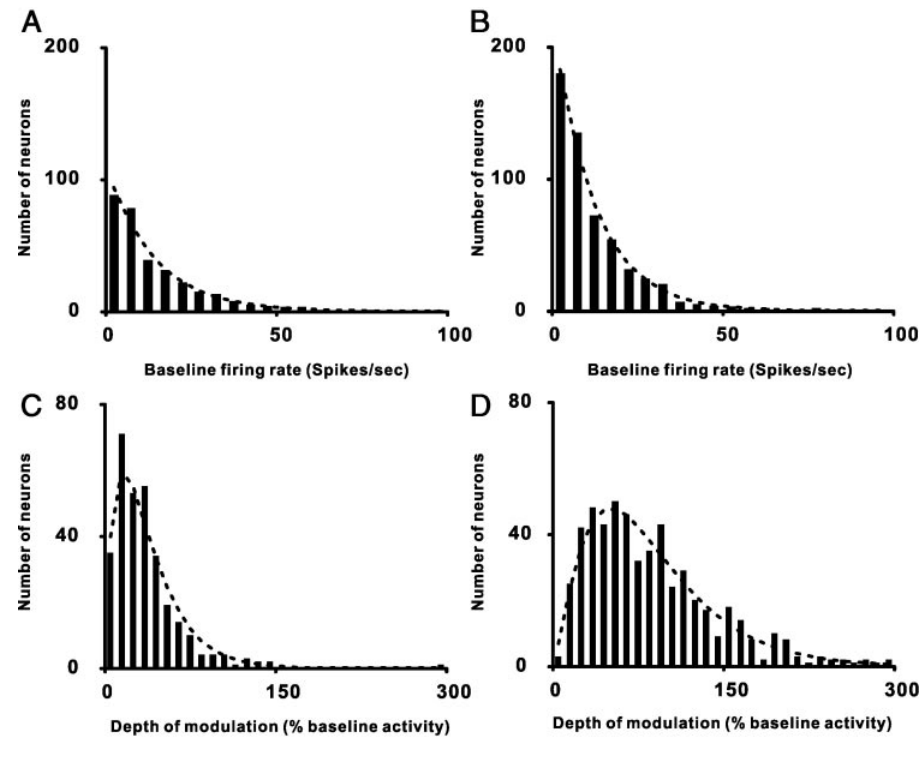
来源:原文 Fig. 4,PDF 第 6 页。
图 4 · 编码参数的分布形状。 基线放电率(A、B)与相对调制深度(C、D)的直方图,黑柱为实际计数、虚线为拟合:基线是指数分布,深度是 Gamma 分布,全部通过拟合检验。这张图主要服务于后续建模——给任何想模拟 M1 群体的人一套可直接采样的参数分布,图中包含较低放电率的单元,但分布拟合本身不能证明记录不存在选择偏差。
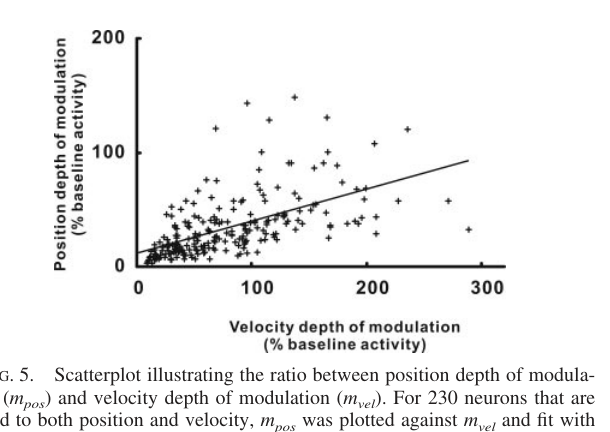
来源:原文 Fig. 5,PDF 第 6 页。
图 5 · 双调谐神经元的深度比。 230 个同时调谐位置与速度的神经元,mpos 对 mvel 的散点与斜率 0.28 的拟合线(r² = 0.33)。作者将其概括为速度调制通常更强,但带截距的回归不意味着固定四倍关系。作者据此讨论了 Paninski et al. (2004) 为什么会得出"位置速度对半开"——pursuit-tracking 手速慢,速度项被压制,位置的相对权重自然被抬高。
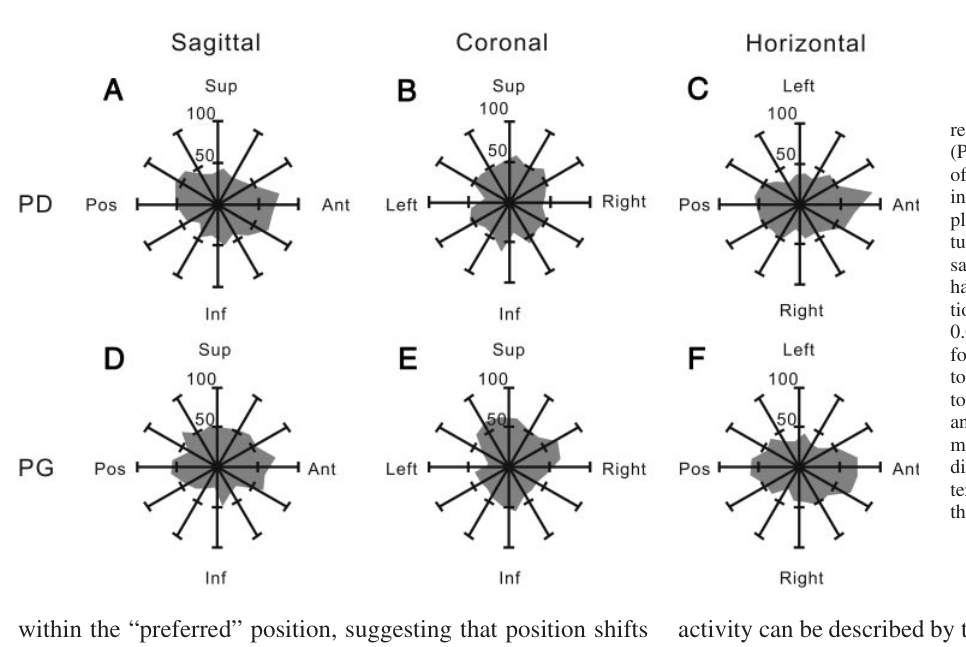
来源:原文 Fig. 6,PDF 第 7 页。
图 6 · PD 与 PG 的 3D 分布。 矢状面、冠状面、水平面的圆形直方图(18° 分箱):PD 与 PG 都向前后方向聚集,PD 仅在冠状面均匀,PG 在冠状面还偏向右上。非均匀分布这件事本身就是 indirect OLE 的动机之一——经典 PVA 假设编码向量均匀分布,这里并不满足,而分布偏向前后轴与手臂力学的各向异性(Scott et al. 2001)呼应。
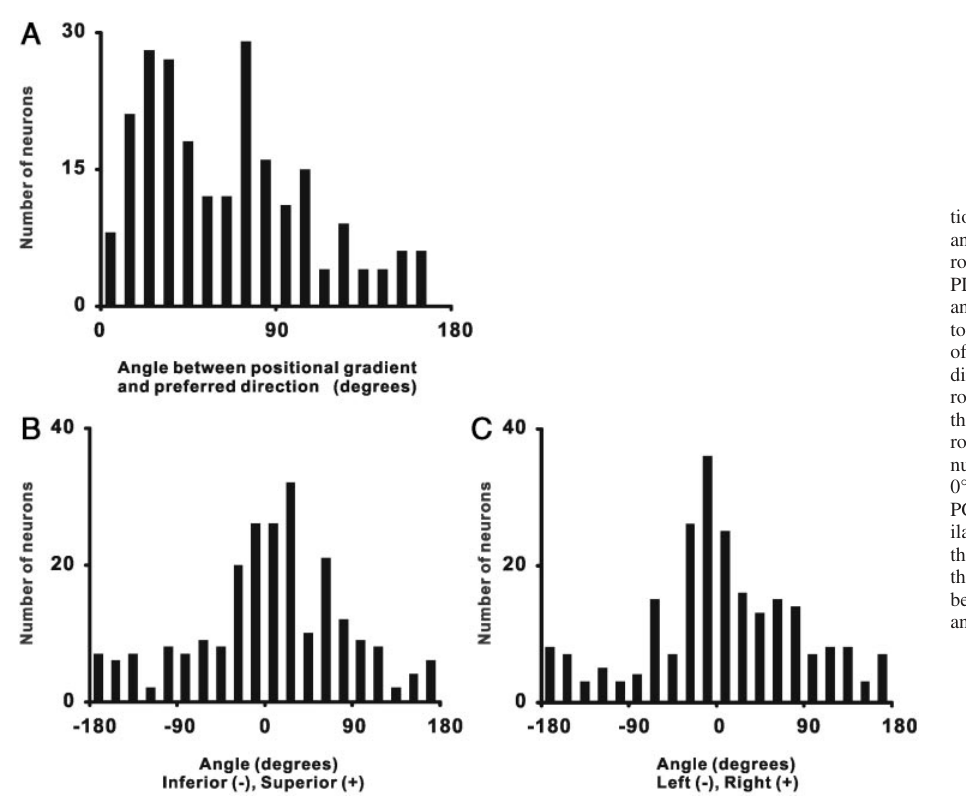
来源:原文 Fig. 7,PDF 第 7 页。
图 7 · PD 与 PG 的几何关系。 (A) 230 个双调谐神经元的 PD–PG 夹角直方图,均值 65±41°,单峰分布;(B, C) 把所有 PD 旋转对齐到前方后,PG 在上下、左右方向均匀散开。两类向量并不总是同向;原文报告球面相关为 0.4,且夹角分布存在结构,因此不能把这张图概括为“没有关系”或“独立抽取”。
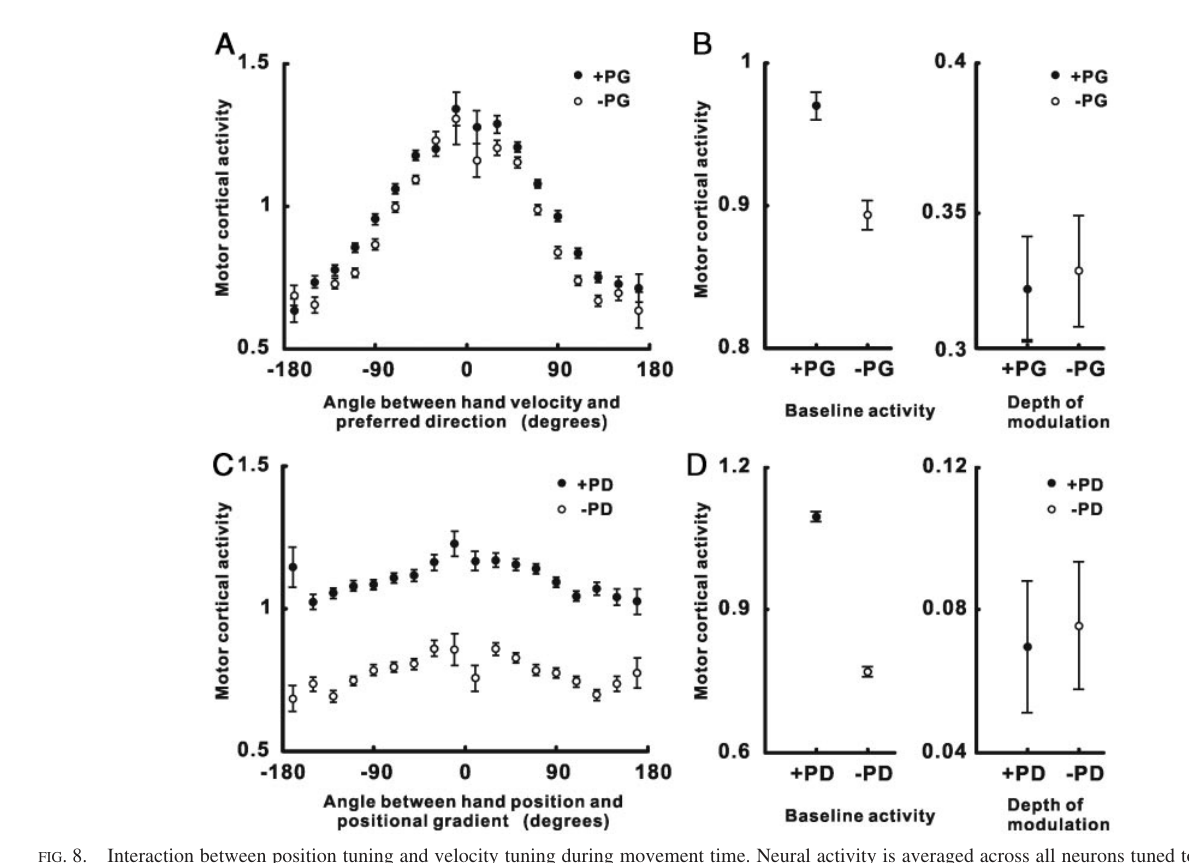
来源:原文 Fig. 8,PDF 第 8 页。
图 8 · 加性 vs gain field 的比较。 (A) preferred 位置(实心)与 antipreferred 位置(空心)中的速度调谐曲线:前者整体上移;(B) 两条拟合 cosine 的基线差显著、调制深度无显著差;(C, D) 交换 PD 与 PG 的角色,结论对称。曲线平移而非缩放,这支持 Eq. 2 的加性近似,也和速度对方向的乘性 gain field 调制形成有趣对照——同一个皮层里,速度缩放方向调谐,本文所测条件下,位置主要对应速度调谐曲线的平移。
来源:原文 Fig. 9,PDF 第 9 页。
图 9 · 三类神经元的时空调谐面。 (A) 301 个纯速度神经元:运动期按速度–PD 角调谐、幅度随速度涨落,画出钟形包络,hold-B 期归零;(B) 79 个纯位置神经元:不追速度、追相对工作空间中心的位置,运动结束后调制残留;(C) 222 个双调谐神经元:混合调制形成的表面,末端翘起的边缘是位置贡献。这张图把"同时编码"从回归系数变成了肉眼可见的表面结构,也暗示 Fu et al. (1995) 的"序列编码"可能是这种时空混合的表象。
来源:原文 Fig. 10,PDF 第 10 页。
图 10 · 6 个自由度同时解码。 两个示例 center-out 目标方向、三个空间轴上,真实(粗线)与解码(细线)位置(左列)和速度(右列)的对比:位置信号单调爬升、速度信号中段起峰回零,两者被同一群神经元的活动独立重建——r² 分别 0.76 和 0.83。该看的是六条曲线形态各不相同却都对得上:位置和速度不是同一个信号的两种读法。
来源:原文 Fig. 11,PDF 第 10 页。
图 11 · 两个表征的时间提前量。 8 个目标平均后的解码信号与真实信号的时间关系:解码位置领先真实手位置 81 ms,解码速度领先真实手速度 122 ms。速度的提前量更大,与 Moran & Schwartz 1999b 的 145 ms 一脉相承,暗示皮层里的"速度"更接近一个预测性信号;位置的提前量稍短,两种解码信号的最优时间偏移不同,但本文没有分别识别两个内模型组件。
来源:原文 Fig. 12,PDF 第 11 页。
图 12 · 位置调制深度的动态。 黑线是逐 bin 拟合的位置调制深度(归一化),细线是 standard reaching 的平均速度剖面:位置深度在运动前显著下陷、运动末端逐渐恢复,与速度反相、滞后 200 ms。全文最容易被略过但值得关注的一张图——编码的权重本身是时间的函数,"位置权重的下降是速度的函数还是运动发起的函数"作者给出了三种候选解释(速度依赖、运动发起依赖、前馈/反馈策略切换),并留给了后续工作。
讨论与解读边界
这项研究最有用的地方是任务设计:通过改变运动的起点和方向,减少位置与速度共变带来的解释歧义。图 8 支持在所测范围内用加性项描述两类调制,图 12 则提示位置调制的权重并非恒定。它与群体动力学研究可以互补;运动学变量能被读出,并不排斥这些调谐来自群体状态的演化。
需要区分三件事:编码向量不重合不等于统计独立;带截距的调制深度回归不能解释为每个细胞固定的四倍比例;解码信号领先行为也不能单独判定其为运动命令。记录仅覆盖吻侧 M1 的脑回近端手臂区,含急性电极和一只动物的慢性阵列记录,不能写成“全部逐日急性记录”。图 10–11 是离线解码结果,并非实时闭环 BCI 验证。位置权重为何在运动中下降,原文提出了速度依赖、运动阶段和控制策略等可能解释,尚未作因果区分。
思考问题
- 若固定手的空间位置范围而改变运动速度,位置调制的下降是否仍与速度成比例?
- 怎样用同时记录和严格的训练—测试划分,区分“两个变量可被读出”与“存在独立控制通道”?