F03 · Proprioceptive and Visual Feedback Responses in Macaques Exploit Goal Redundancy
Cross, K.P., Guang, H., & Scott, S.H. (2023). The Journal of Neuroscience, 43, 787–802. doi:10.1523/JNEUROSCI.1332-22.2022
猕猴会按目标允许的误差范围调节反馈纠正:宽目标下,视觉和机械扰动引起的修正通常更小。肌电可在约90 ms和70–100 ms量级表现出目标依赖,但具体时刻随动物和分析而异。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
运动控制任务中的终点目标并不总是孤立的几何单点。当目标具有延展宽度时,只要运动终点落在允许的容限区间内即视为任务成功,控制系统便无需消耗额外能量将每一次细微偏差纠偏回中心。最优反馈控制理论中的最小干预原则(minimum intervention principle)据此推论:在无扰动状态下,运动终点方差应主要沿任务允许的冗余维度积累;当遭遇外加扰动时,窄目标需触发大幅纠正以精确命中,而宽目标仅需轻微代偿即可满足任务需求。若仅测量平均运动终点,容易忽略这种“因任务约束放宽而主动保留变异”的控制策略,因而必须联合考察终点方差分布、纠偏运动学幅度与反馈反应时序。
人类心理物理学研究已证实目标几何形态能显著调制长潜伏期反馈响应,但在非人灵长类中是否同样利用任务冗余,需要严密的生理学实验验证。视觉光标空间跳变(cursor jump)与机械关节负荷提供了两类互补的感官操纵手段:前者用于检验外在视觉空间误差的处理链路,后者检验机械扰动下对多关节生物力学的本体感觉反馈调控。在施加机械负荷时短暂消隐光标,有助于减少即时视觉反馈的交叠,但无法完全屏蔽其他感官通道。在肌电(EMG)分析中,需厘清目标依赖性分化出现的具体时刻与早期无差别反射响应的界限:较晚出现的目标敏感成分反映任务相关控制策略,而早期无差别的稳定响应同样包含关键动力学特征。此外,不同实验条件下基线背景肌电水平的细微差异亦需纳入定量考虑,不宜将所有实验现象直接归结为最优反馈控制的唯一表现。
Cross 等训练四只猕猴完成不同几何宽度的伸手任务,分别施加视觉光标突跳与外加机械关节负荷,系统采集上肢运动学与多通道肌电信号。研究旨在检验宽目标是否会增加冗余维度的终点方差并降低纠偏运动幅度、目标几何依赖性在视觉与机械通路中分别于何时显现,以及猕猴的快速反馈反应是否展现出与人类高度吻合的时间组织结构。实验结果为最小干预原则在灵长类动物中的存在提供了实证支持,但实验未同步记录或干预中枢神经元群体,因此无法定位控制器的具体解剖核团,亦未证明最优反馈控制是排他的唯一神经机制。统计检验检出目标效应的时刻代表可测输出差异的最早阈值,并不等同于中枢识别目标几何的物理起始点,具体潜伏期在不同个体、不同肌肉及不同统计窗口间存在合理变异。
研究思路
交替呈现窄方形目标与宽延展目标,分别引入正交方向的视觉光标突跳与机械关节推拉扰动。在机械扰动期间短暂消隐光标以压制视觉干扰,通过端点运动学与多通道肌电信号,定量测定不同感官反馈通路中纠正幅度及首次可检出目标形态效应的时间潜伏期。
方法
实验对象为四只成年雄性恒河猴(Monkey M、A、T、C,体重 10–20 kg),手臂置于 Kinarm 双关节外骨骼系统中限制在水平面运动,由半透半反虚拟投影系统呈现视觉目标与代表手部位置的光标。
视觉扰动范式:伸手位移全程为 9.2 cm(向外偏转 8 cm、向前延伸 4.4 cm),目标分为 2×2 cm 的窄方目标与 12×2.2 cm 的宽条形目标;在运动启动后光标沿轨迹法向突跳 ±3.5–4 cm(根据动物个体运动学幅度校准),突跳试次限时增加 500 ms;每个 block 包含 10 个试次(6 次无扰动、4 次突跳),单会话采集 10–25 个 block(获得 60–150 个无扰动与 40–100 个扰动试次);四只猴分别采集 6、7、14、12 个会话,任务成功率在 89% 至 100% 之间。
机械扰动范式:宽目标替换为 28 cm 延展的折线箭头形目标(两段长方形以 110° 夹角相交以适应手臂自然操作边界),关节负荷为肩关节 0.3–0.5 Nm 推离力矩、或肩关节推离伴随肘关节 0.07–0.15 Nm 推向力矩(按个体微调以匹配手部空间偏移量),受扰瞬间光标消隐 200 ms;每个 block 包含 12 个试次(8 次基线、4 次加荷),单会话 10–15 个 block(80–120 基线与 40–60 扰动试次);四只猴分别完成 10、11、8、9 个会话。
信号采集与分析:运动学数据以 1 kHz 采样;肌电记录方面,Monkey M 植入 32 通道慢性电极系统(Ripple Link-32),覆盖肱桡肌、肱肌、肱三头肌外侧头/长头、肱二头肌、胸大肌及三角肌前/后束共 8 块单/双关节肌(每块肌肉记录两个双极差分信号,共 16 路),Monkey C 使用 Delsys 表面肌电系统记录 4 块主要肌肉。分析时将运动终点投影至任务冗余轴;运动学纠偏起始点通过逐时间步 ROC 分析计算(AUC>0.8 维持 10 ms 后反向寻拐点);肌电信号按最佳刺激方向归一化后融合成群体综合信号,机械负荷分析时间窗划分为 20–50、50–75、75–100 及 120–180 ms,视觉跳变分析时间窗因传导通路固有延迟整体向后平移 50 ms。
主要结果
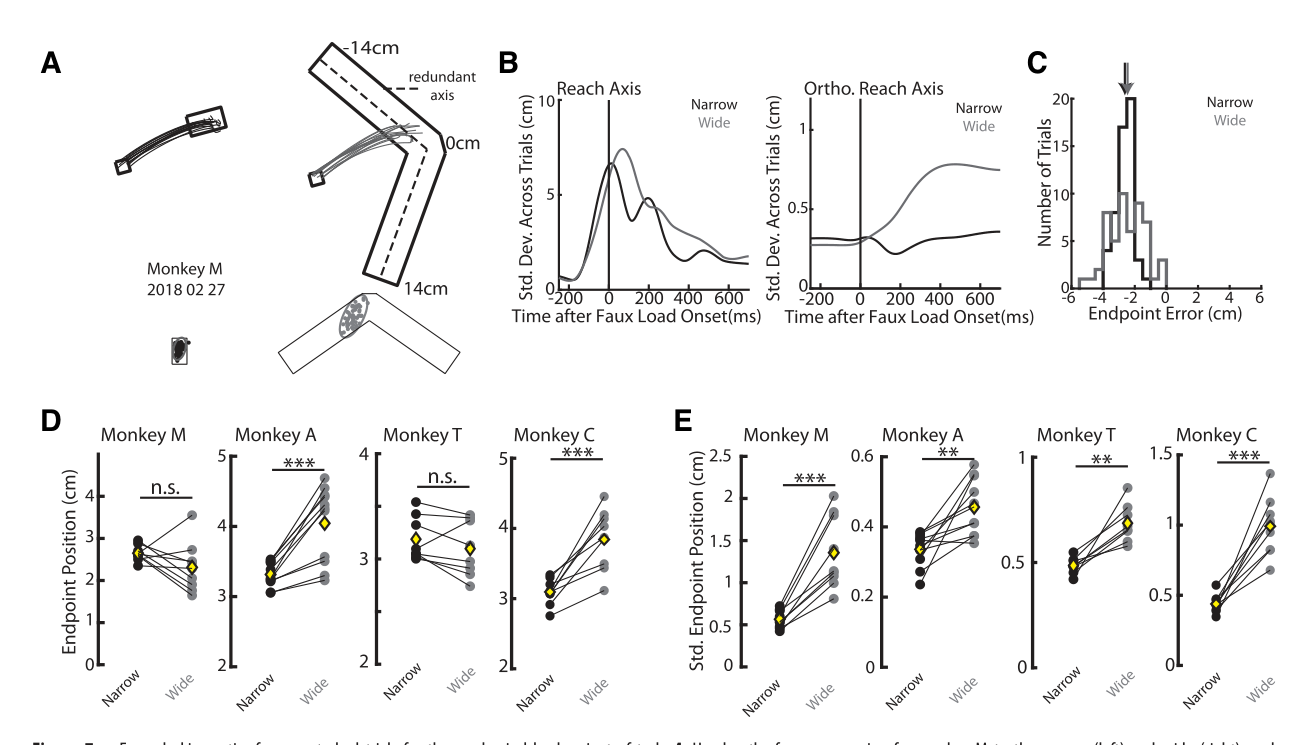
在无扰动基线试次中,行为表现清晰呈现了最小干预原则的统计特征:宽目标下的终点标准差(SD)为窄目标的 1.4 至 4.2 倍(视觉任务下 M/A/T/C 四只猴分别扩大 4.2、1.5、2.0、1.9 倍,机械任务下分别为 2.2、1.4、1.4、2.3 倍,所有假设检验 p 均 ≤0.004),运动变异性主要沿目标允许的冗余轴扩散,而平均终点位置的偏移量仅在 0.7 至 1.3 cm 范围内。在视觉光标跳变试次中,纠偏行为呈现出显著的形状依赖性:在窄目标下,手部动作产生大幅代偿以重回未受扰位置(代表性会话中终点位移残差仅为 0.26 与 -0.55 cm);而在宽目标下,动物显著减小了代偿动作幅度(终点位移达 2.9 与 3.6 cm,散点落在宽目标边缘);四只动物在双向突跳下均呈现高度显著的组效应(t 检验统计量最高达 49)。在运动学轨迹上,窄目标下的手部主动纠正动作最早在扰动后 113–135 ms 显现,宽目标则推迟至 160–173 ms(部分动物未检出显著主动纠偏),两种目标形状下的速度轨迹在 159–181 ms 处出现统计分水岭。
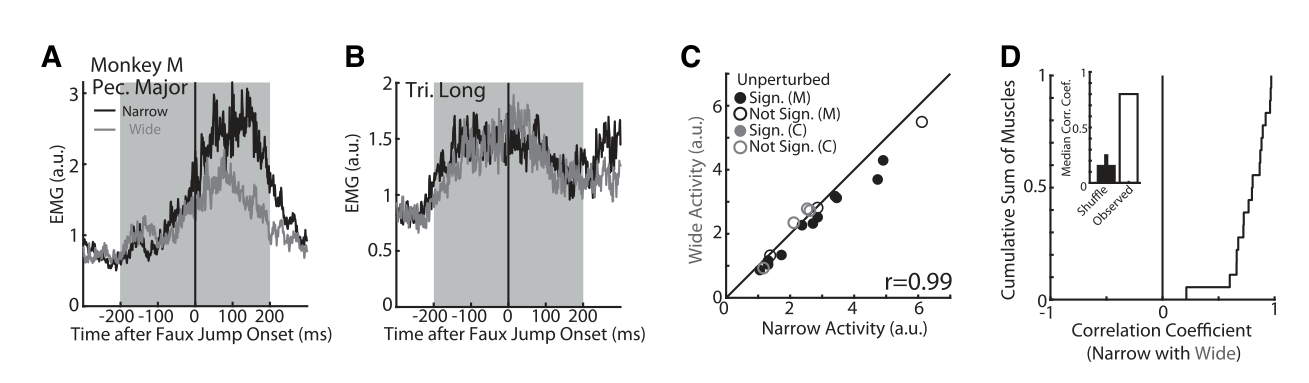
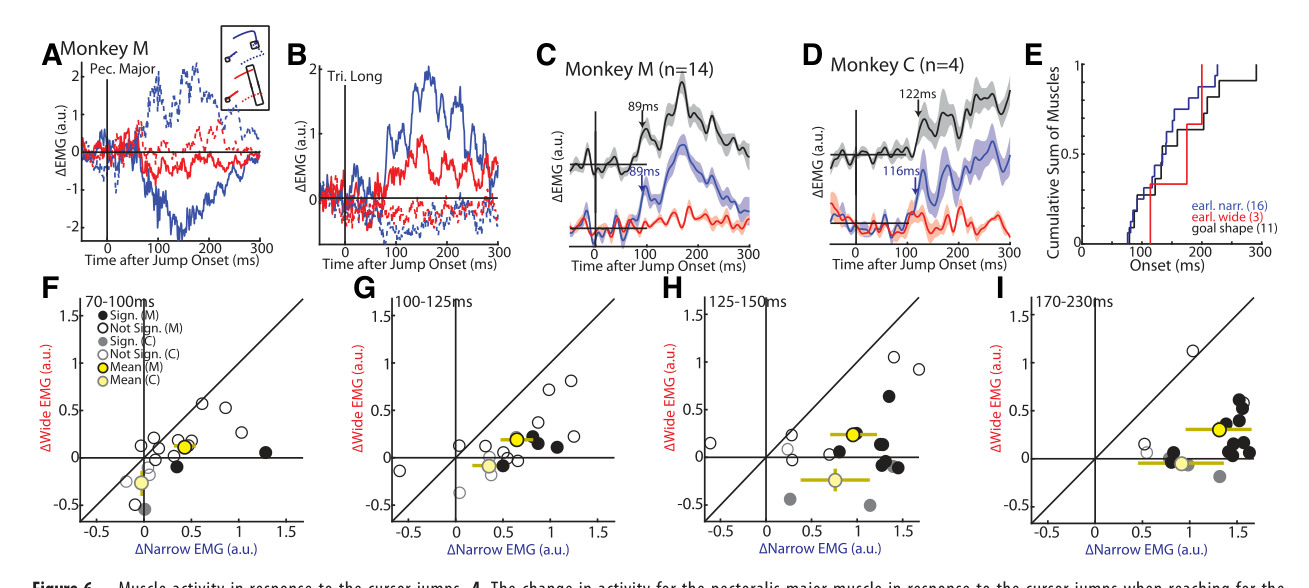
肌电分析揭示了快速反馈反应的内部精细时序。在无扰动基线试次中,两种目标形状下的肌电时空形态高度一致(放电幅度相关系数 r=0.99,波形时间相关系数中位数为 0.80),但在 Monkey M 中有 75% 的肌电通道在窄目标下伴随基线幅度轻微增强(平均高出 15%),该背景肌电差异需要在增益缩放模型中加以讨论。在光标跳变条件下,Monkey M 的群体肌电信号在窄目标下于 89 ms 迅速抬升,宽目标下则未检出明显的早期动作,两者的差值信号同样于 89 ms 显现(Monkey C 表面肌电检出时间稍晚,为 116/122 ms);时间窗检验显示 70–100 ms 时已有 17% 的记录通道呈现显著的目标形状主效应,至 170–230 ms 增长至 78%,宽目标下的肌电反应平均较窄目标削减 78%–88%(组水平重复测量方差分析主效应 F(1,17)=58.1,p<0.001)。在机械关节负荷条件下,群体肌电呈现平行但更早的时间结构:群体肌电在 62/64 ms(窄/宽目标,Monkey M)即同步跨越基线,这段早期响应不依赖目标形状,反映了前馈驱动或低层刚度调节;至 78 ms(Monkey M)与 106 ms(Monkey C)时肌电开始表现出清晰的目标形状分化;在 75–100 ms 时间窗内有 47% 通道呈现显著分化,至 120–180 ms 达 94%(F(1,19)=22.3,p<0.001)。两条反馈通路的分化潜伏期与人类神经生理学测得的数据(视觉通路约 90 ms,机械通路约 70 ms)高度一致。
逐图解读
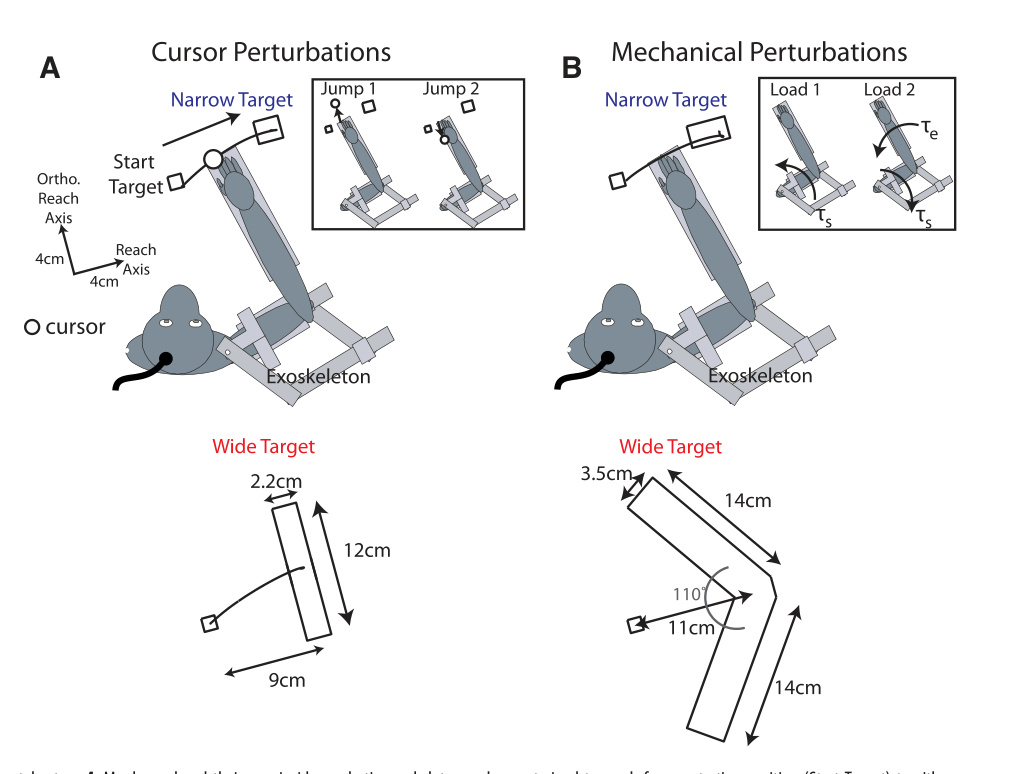
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 实验范式。 (A) 视觉光标跳变实验:Kinarm 外骨骼系统中的水平面伸手姿态、窄方目标与宽矩形目标,内插图展示运动轨迹中途的光标正交跳变。(B) 机械关节负荷实验:28 cm 折线箭头形宽目标及由力矩电机驱动的正交推肢负荷。展示了双模态反馈与单一目标冗余维度的统一实验设计。
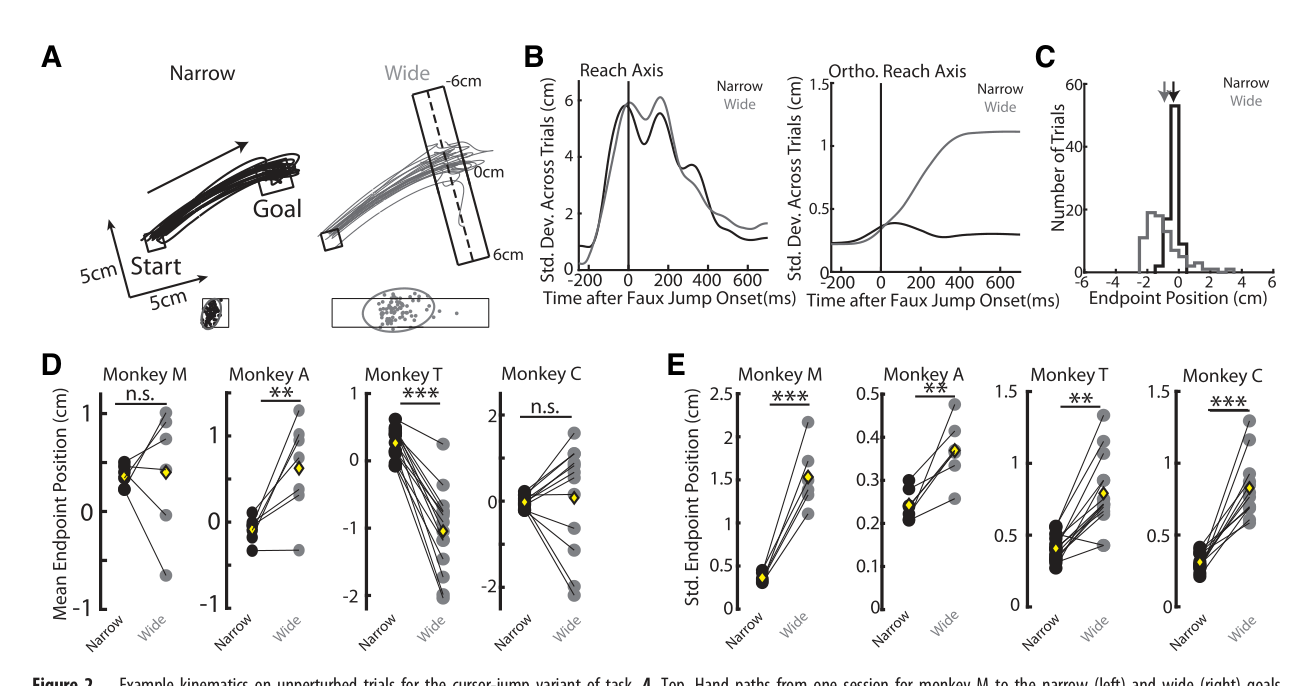
来源:原文 Fig. 2,PDF 第 5 页。
图 2 · 无扰动 trial 的运动学(视觉任务)。 上排展示代表性会话的手部完整运动轨迹与终点 95% 置信椭圆,宽目标下的轨迹显著发散;中排展示沿时间进程的跨试次位置标准差(SD);下排展示终点在冗余轴上的概率直方图及跨会话均值与方差统计,证实无扰动下变异自发沿冗余维度积累。
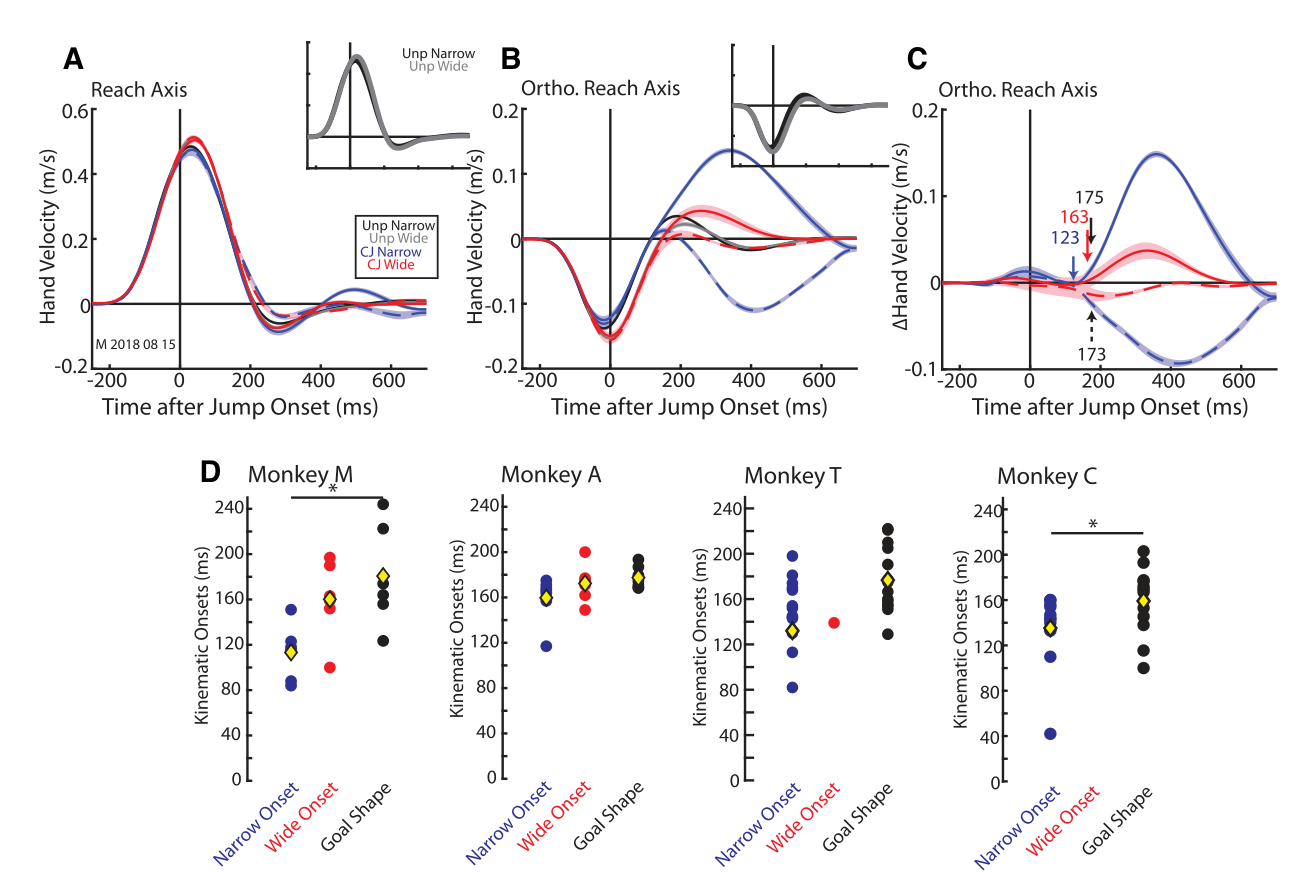
来源:原文 Fig. 3,PDF 第 6 页。
图 3 · 无扰动与跳变 trial 的手速度(视觉任务)。 (A、B) 沿伸手前进轴与正交扰动轴的手部瞬时速度剖面;(C) 扣除无扰动基线后的正交代偿速度曲线,蓝色/红色箭头标注窄/宽目标最早主动纠偏起始时刻,黑色箭头标注目标形状分化点;(D) 跨会话统计的三个关键运动学时间节点。
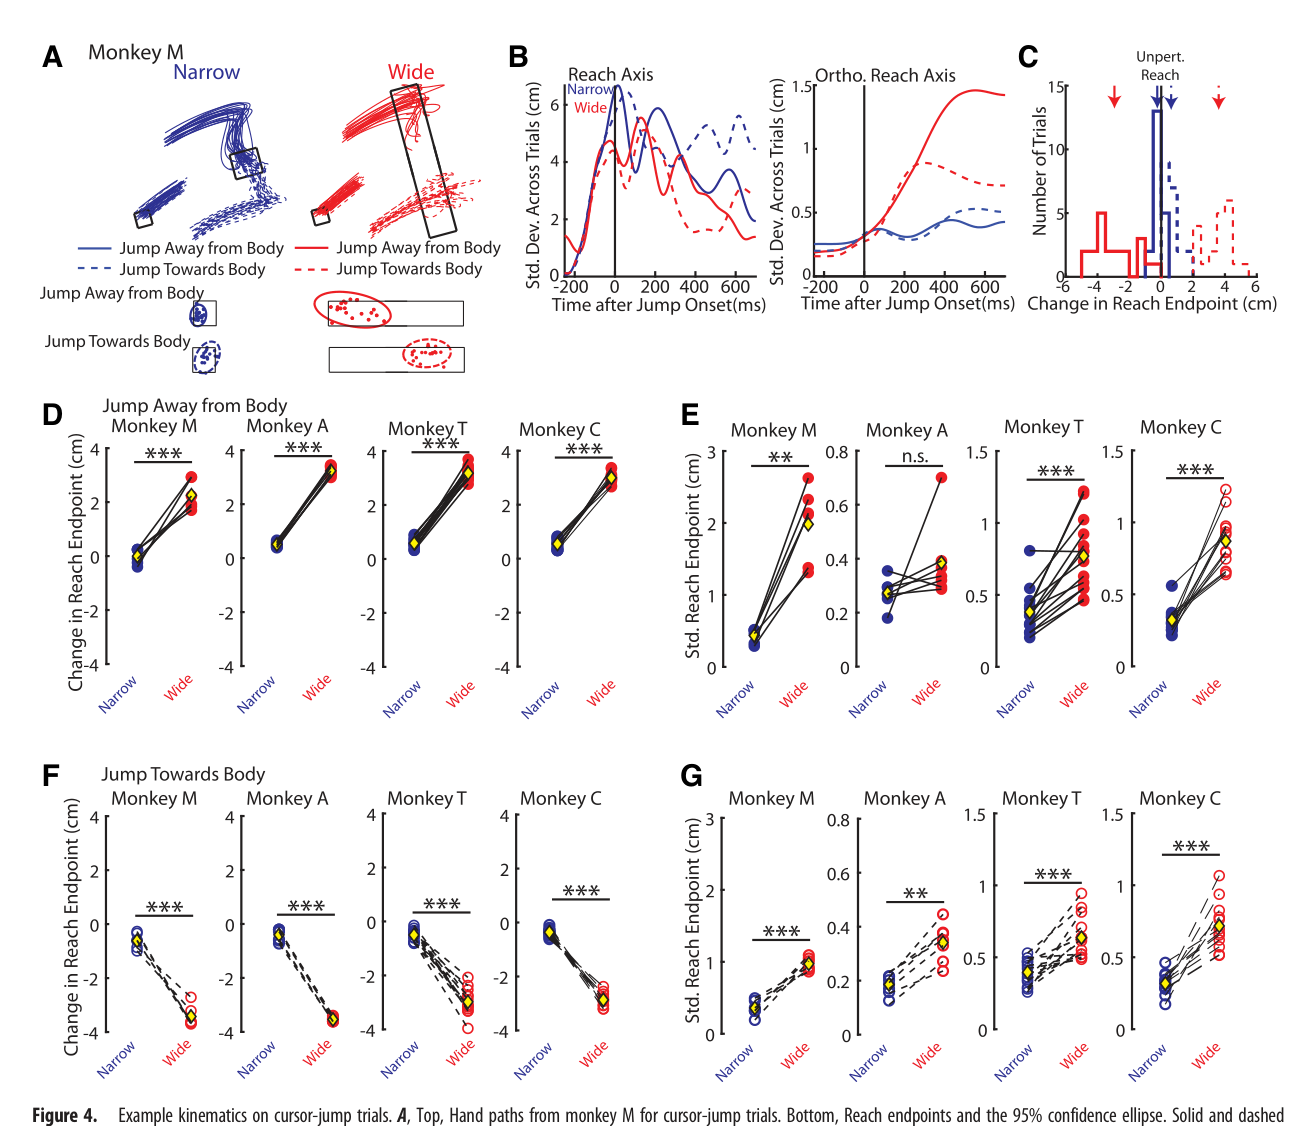
来源:原文 Fig. 4,PDF 第 7 页。
图 4 · Cursor-jump trial 的运动学。 (A、B) 光标突跳试次中的手部空间轨迹与位置标准差;(C) 终点位移分布直方图,窄目标终点精准锚定在零位移基准,宽目标终点被动落在偏离中点 3 cm 以外;(D–G) 跨会话统计的终点均值与离散度,展示了视觉纠正幅度受目标几何形态的分级调控。
来源:原文 Fig. 5,PDF 第 8 页。
图 5 · 无扰动 trial 的肌肉活动(视觉任务)。 (A、B) 胸大肌与肱三头肌长头的平均放电包络,两种目标下的波形时序高度吻合;(C) 窄与宽目标下肌肉放电幅度的相关散点图(r=0.99,Monkey M 数据点轻度偏离对角线);(D) 波形时间相关系数的累积分布曲线(中位数为 0.80),为扰动诱发反应确立了基线参照。
来源:原文 Fig. 6,PDF 第 8 页。
图 6 · Cursor jump 诱发的肌肉活动。 (A、B) 典型肌肉在突跳扰动下的肌电差异波形(ΔEMG);(C) Monkey M 的群体肌电信号,窄目标在 89 ms 迅速抬升,差值信号同步显现;(D) Monkey C 表面肌电对应分析(分化起始点为 116/122 ms);(E) 单肌肉分化潜伏期的累积分布;(F–I) 四个连续时间窗内显著响应通道的逐级增加。
来源:原文 Fig. 7,PDF 第 9 页。
图 7 · 无扰动 trial 的运动学(机械任务)。 对应图 2 在机械负荷实验几何中的基线运动学表现:在折线箭头形目标下,宽目标的终点标准差为窄目标的 1.4–2.3 倍,证实目标冗余对自然变异的释放规律不受特定几何布局限制。
来源:原文 Fig. 8,PDF 第 10 页。
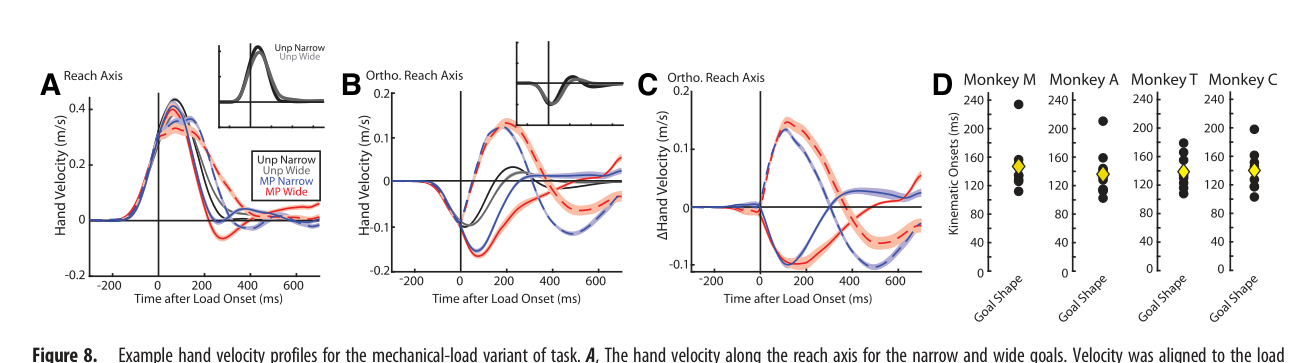
图 8 · 机械负荷 trial 的手速度。 (A、B) 沿运动轴与法向轴的瞬时速度曲线;(C) 扣除基线后的正交代偿速度曲线,负荷动量导致初期手部被动偏转,标注了目标形状引发主动纠偏的分化时间点;(D) 四只动物的运动学分化时刻主要集中在 136–147 ms 区间,略快于视觉通路。
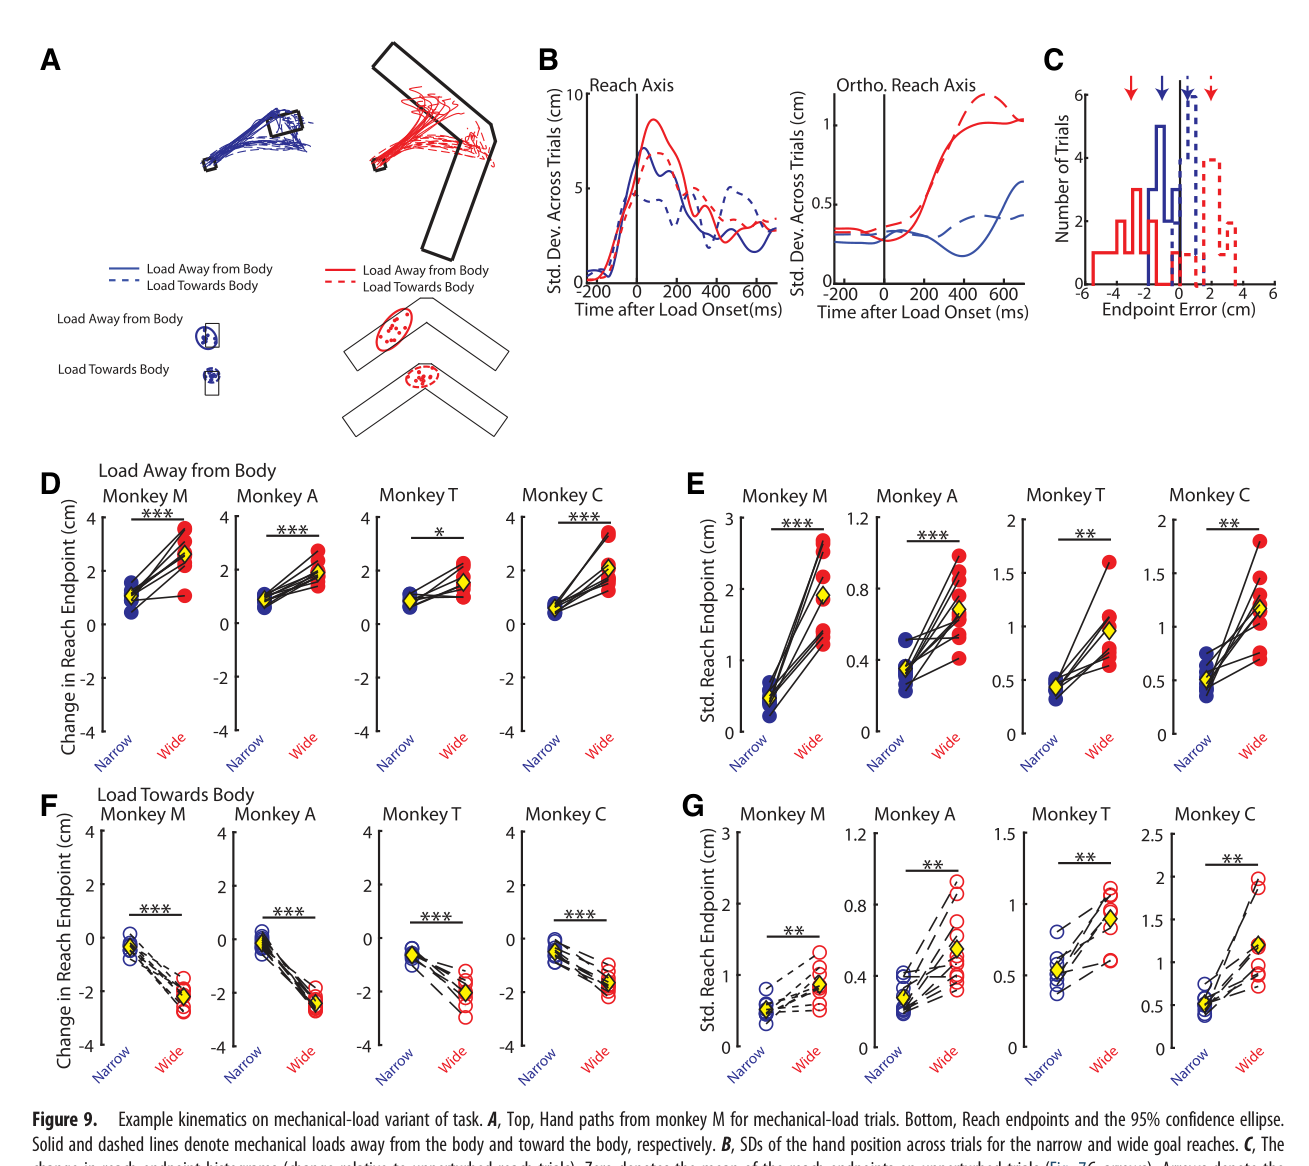
来源:原文 Fig. 9,PDF 第 11 页。
图 9 · 机械负荷 trial 的运动学。 机械负荷扰动下的终点位移分布与轨迹发散:窄目标手部重新被拉回至目标中心,宽目标手部被负荷顺势推移至 2–4 cm 外的容许区域,展现出与视觉光标突跳高度对称的行为控制规律。
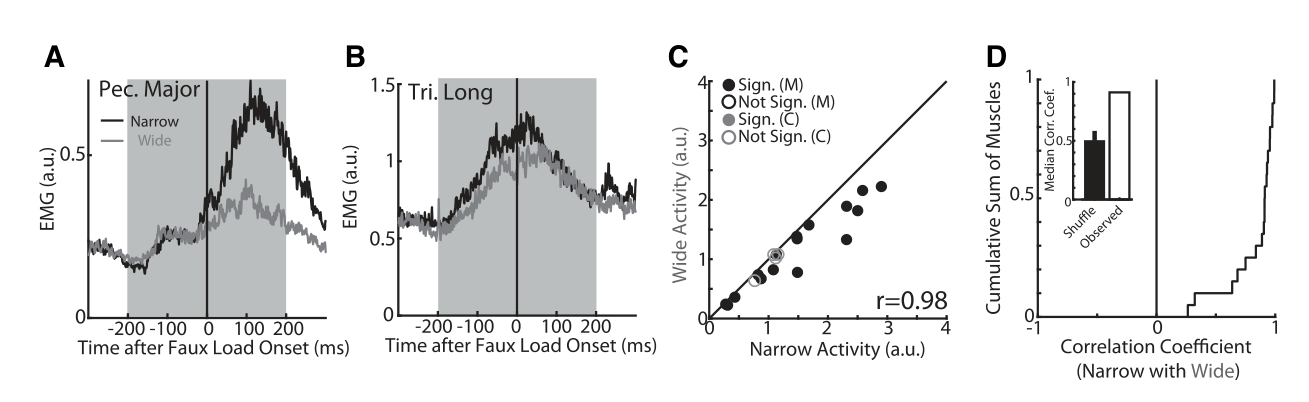
来源:原文 Fig. 10,PDF 第 12 页。
图 10 · 无扰动 trial 的肌肉活动(机械任务)。 结构对应图 5:肌电放电幅度相关系数达 r=0.98,时间相关中位数为 0.891;Monkey M 样本在窄目标下平均高出 17%,Monkey C 未表现出显著背景差异,表明单纯背景肌电缩放难以充分解释后续 75 ms 以后出现的显著动力学分化。
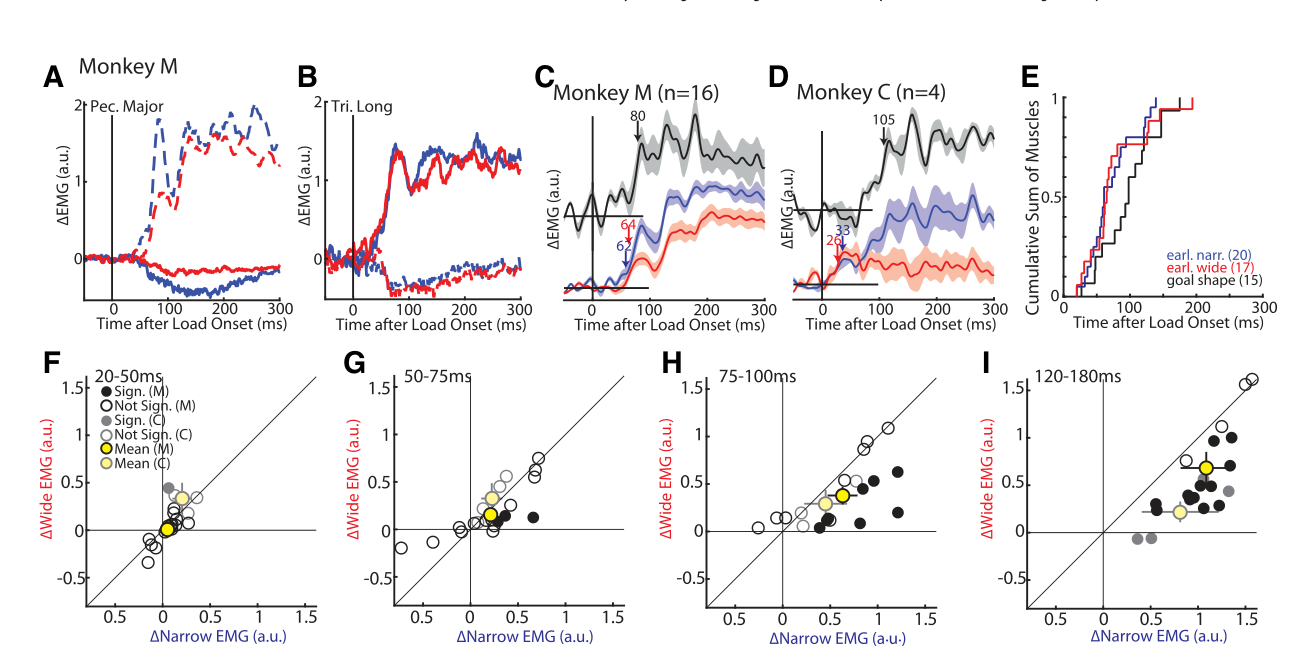
来源:原文 Fig. 11,PDF 第 12 页。
图 11 · 机械负荷诱发的肌肉活动。 (A、B) 代表性肌肉的 ΔEMG;(C) Monkey M 的群体肌电信号:窄与宽目标在 62/64 ms 同步起跳(目标无关的初期物理响应),差值信号于 78 ms 明确分化;(D) Monkey C 肌电在 106 ms 出现形状分化;(E) 各肌肉分化时程累积分布;(F–I) 四个离散时间窗内的通道统计,验证了从早期刚度维持向后期目标选择性调控的动力学过渡。
讨论与解读边界
四只动物的运动学及两只动物的肌电,为目标冗余影响快速反馈提供了直接证据。宽目标的较大终点变异与较小纠正量符合最小干预原则;视觉与机械操纵的并置使该范式适合进一步研究反馈回路。
本文主要测量行为和肌肉,未记录或扰动相关神经群体,所以不能定位控制器,也不能证明最优反馈控制是唯一机制。响应分化时刻是统计检出的输出变化,不是大脑首次识别目标形状的时刻。部分背景肌电确有差异;其幅度和短潜伏期结果不支持简单增益缩放解释全部效应,而不是将任何背景贡献完全排除。
思考问题
- 同步记录PMd、M1与肌电后,目标形状首先改变哪些活动成分,以及它们如何预测纠正量?
- 连续改变目标宽度而非只用两档时,反馈增益是否平滑调整,调整规律能否预测未见宽度?