D14 · Reciprocal Fronto-Parietal Interactions Support Distinct Motor Strategies during Sequential Reaching
Bardanikas, G., Jana, S., Meirhaeghe, N., Barthelemy, F., Riehle, A., Grün, S., Brovelli, A., & Brochier, T. (2026). bioRxiv(2026-09-25 更新的 v2,未经同行评审)。doi:10.64898/2026.03.03.709252
两只猕猴在相同序列伸手任务中采用不同的预测策略。方向信息可在目标出现前从 PMd/M1 和 7A 读出,跨区 FIT 为双向且随 anticipation 提前;这支持灵活的 reciprocal 网络描述,但不构成跨区因果通信的证明。
核对版本:2026-10-30 下载的公开预印本 v2;公开全文 · 本地全文。图下页码为 PDF 文件页序,全部主图已对照源页复核。
背景
在序列运动任务中,下一个目标的位置可能具备统计可预测性。面对可预测目标,动物可能提前规划动作的空间物理方向,也可能仅利用目标出现的相对时序,推迟到视觉目标实际显现后再确定具体运动方向。这两种策略在行为层面上并不等价:动作反应潜伏期的缩短仅说明动物利用了时序节奏,只有在目标呈现之前手部运动轨迹已明确偏向未来靶位,才能证实存在空间层面的动作预先计划。两只动物在相同序列范式中表现出不同的行为策略,为考察运动准备与脑区协调如何随策略转变提供了对比条件。
额顶皮层之间的功能组织通常存在两种不同的理论假设。经典的层级串行处理模型认为,顶叶后部首先解析视觉空间信息,随后将规划方向单向传递给额叶运动皮层(PMd/M1);而分布式双向交互模型则主张额叶与顶叶之间存在互惠的信息依赖,跨脑区神经活动会随准备策略的改变同步提前。仅凭单一脑区出现方向调谐的早晚并不能区分这两种模型,因为感觉传导、动作计划与运动伴随放电(efference copy)到达不同脑区的时间延迟各不相同。需要通过特定方法量化方向相关的信息交互,检验顶叶至运动区的投射是否始终处于主导地位,以及跨区信息传递的时延是否保持恒定。
Bardanikas 等训练两只猕猴完成空间可预测性递增的三步序列伸手任务,同步记录 PMd/M1 与 7A 区的电生理信号,结合眼手运动学、单神经单元、多单元活动(MUA)、线性判别分析(LDA)与特征特异信息传递(FIT)指标展开分析。该研究主要探究:可预测目标的方向信息能否在视觉刺激出现前从神经活动中解码、不同的准备策略是否对应不同的时程动态,以及额顶之间的神经信息流属于单向传递还是双向互惠。FIT 分析中的传递方向反映统计模型中源通道的历史信号能否为目标通道提供关于运动方向的额外信息,不代表直接的突触单突触投射。两只动物策略的差异、不同序列位置下起点与可选方向集合的伴随变化,以及仅针对方向调制通道对的筛选,均为理解结论适用范围的重要限定。
研究思路
研究在序列动作中逐级改变目标位置的可预测性,利用两只动物自发采用的预先计划(anticipation)策略与被动反应(reactive)策略建立对比。通过行为轨迹、单神经单元、群体 MUA、LDA 解码和 FIT 跨区信息传递指标,系统考察动物是否提前规划方向、方向表征在额顶皮层何时浮现,以及脑区间的信息交互是否以顶叶到运动皮层的单向投射为主。
方法
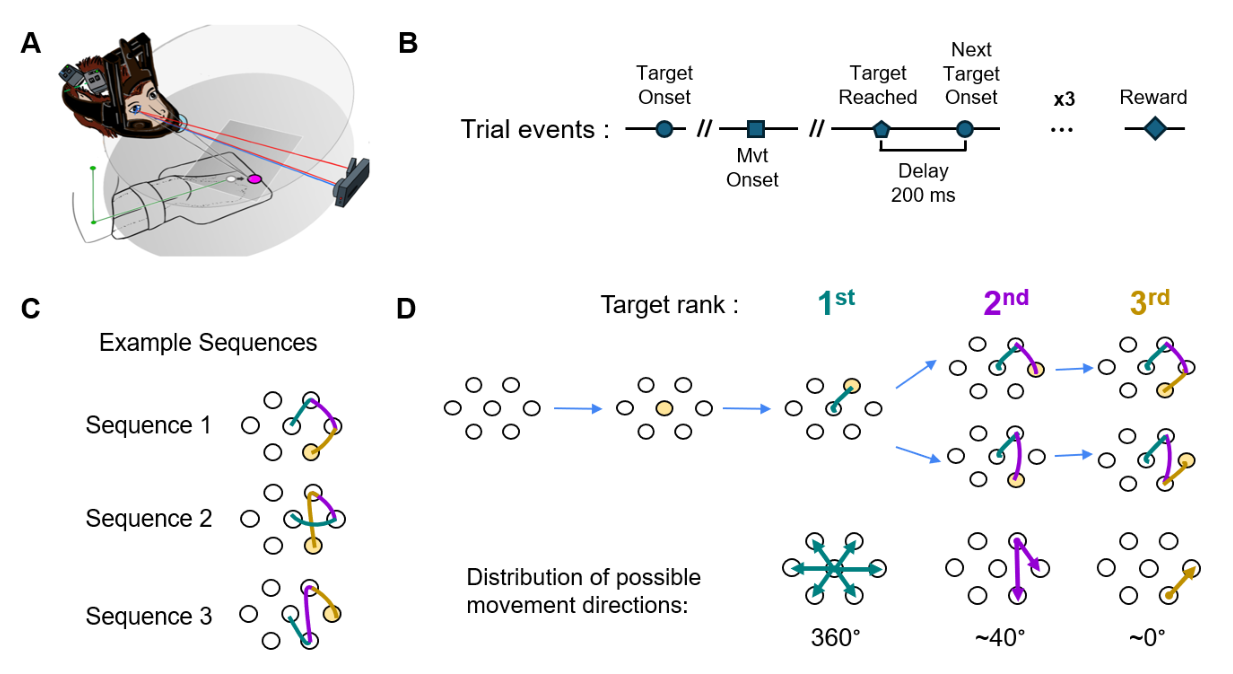
两只恒河猴(J 与 E)通过右臂佩戴的 KINARM 外骨骼操作二维光标,执行由 12 种可能轨迹构成的三目标序列任务。序列中,第一目标的出现有 6 个备选位置;第二目标缩减为 2 个可能位置;第三目标则由前两个目标的几何关系完全确定。每次光标到达目标后需保持 200 ms。分析纳入猴 J 的 15 个记录会话(共 3663 次完整运动)与猴 E 的 14 个会话(共 3249 次完整运动)。微电极阵列分别植入 PMd/M1 交界区(96 通道 Utah 阵列)与 7A 区(32 通道阵列);文中“PMd/M1”为整体电极覆盖标签,未对每次记录细分为单独解剖亚区。
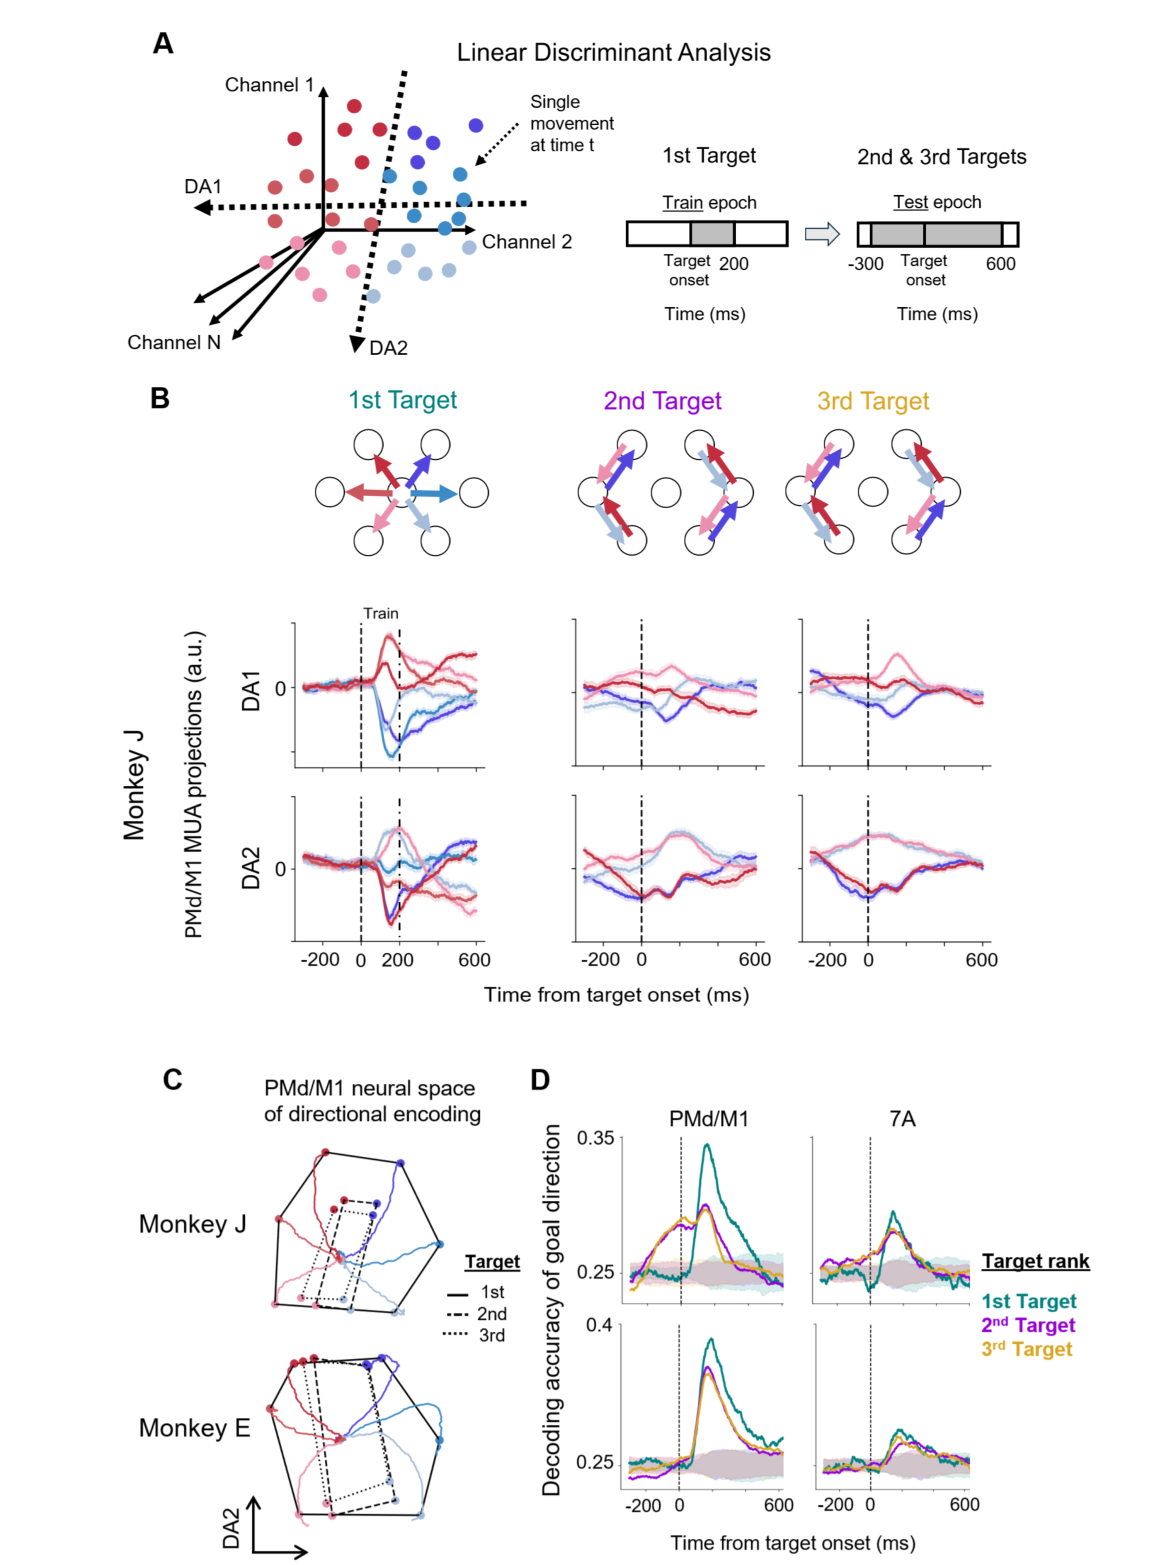
LDA 分类器基于第一目标呈现后 0–200 ms 内的 MUA 信号学习两个方向判别轴,用于投影并解码后续目标的计划方向。FIT 方法通过比较源通道历史信号在最多 100 ms 延迟范围内能否提供目标通道自身历史所不包含的方向信息,来量化信息传递强度。显著的 FIT 信号代表统计学上的方向特异依赖,不直接等同于解剖学上的突触投射。
主要结果
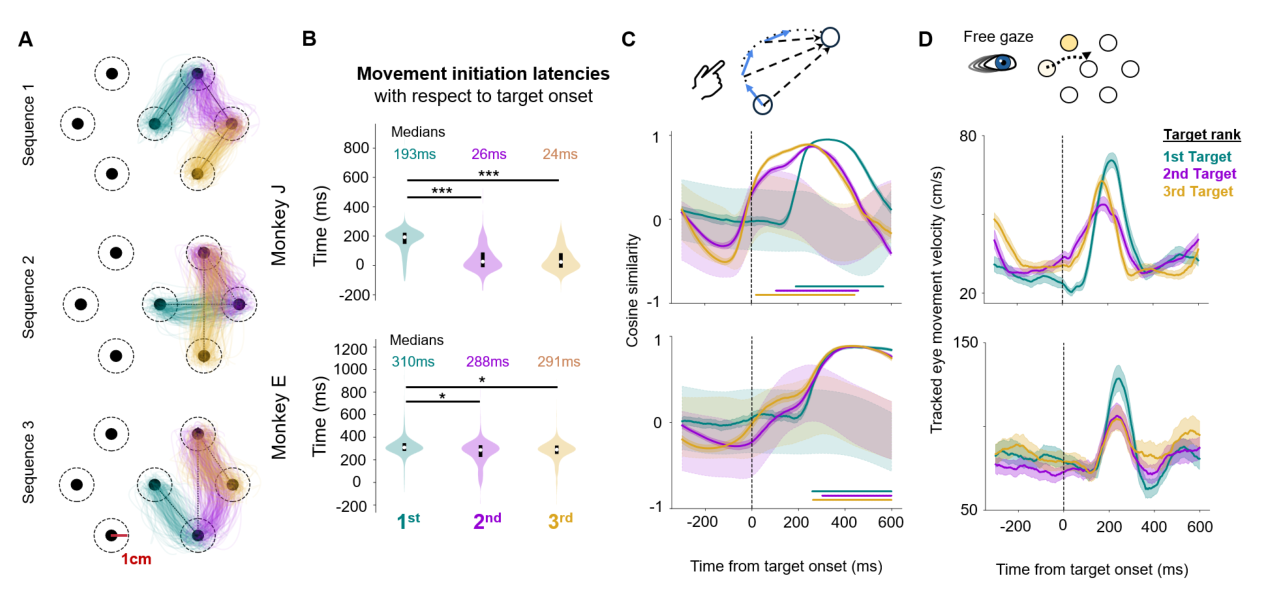
两只动物均适应了序列的时间节奏,但仅有猴 J 展现出明确的空间方向预先规划。从第一、第二到第三目标,猴 J 运动发起的反应潜伏期中位数依次为 193 ms、26 ms 与 24 ms,而猴 E 依次为 310 ms、288 ms 与 291 ms。猴 J 在第三目标出现前,其实际运动轨迹与目标方向的夹角相似度已显著高出随机水平,眼动注视亦显著提前;猴 E 则主要跟随固定时间节律,手部运动方向始终在视觉目标呈现后才建立。
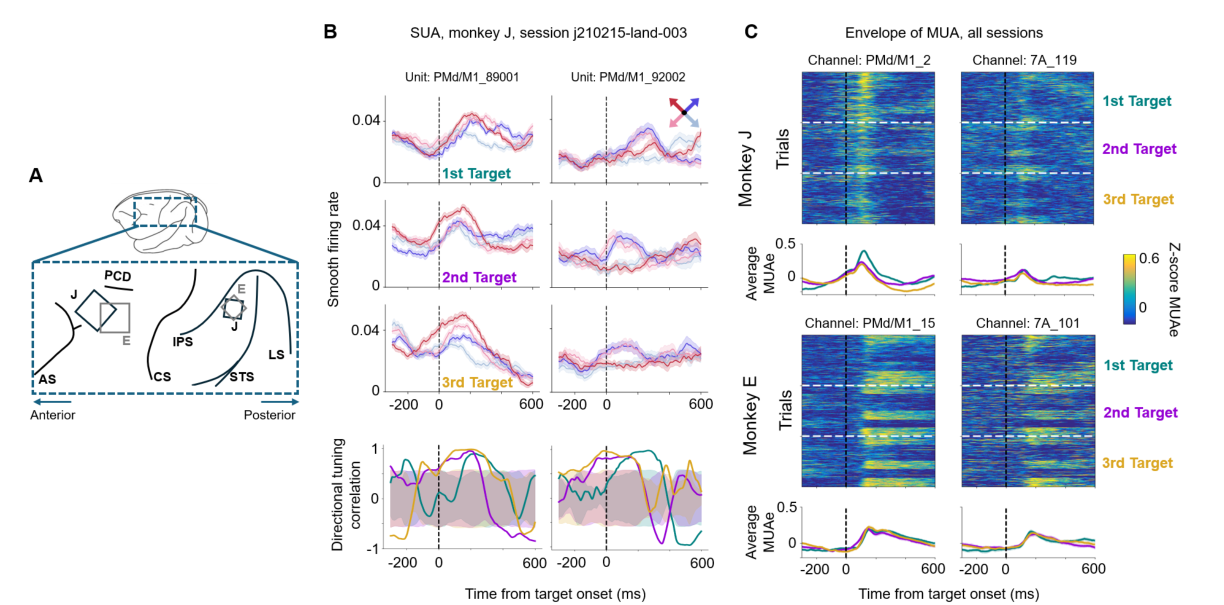
在神经表征层面,猴 J 的 PMd/M1 单神经元在可预测目标出现前已表现出显著的方向调谐,且 MUA 峰值发放幅度随目标可预测性提高而系统性下降;7A 区未观察到类似的幅度衰减。LDA 解码表明,猴 J 的 PMd/M1 在第二和第三目标呈现前约 200 ms 即可提前读出即将执行的运动方向,7A 区提前约 50 ms;而在猴 E 中,两个脑区均仅在目标出现后才能解码方向。在猴 J 内部,按单试次是否出现空间预先运动进行拆分分析,同样复现了上述神经动力学差异,排除了差异仅由个体生理基础决定的可能。
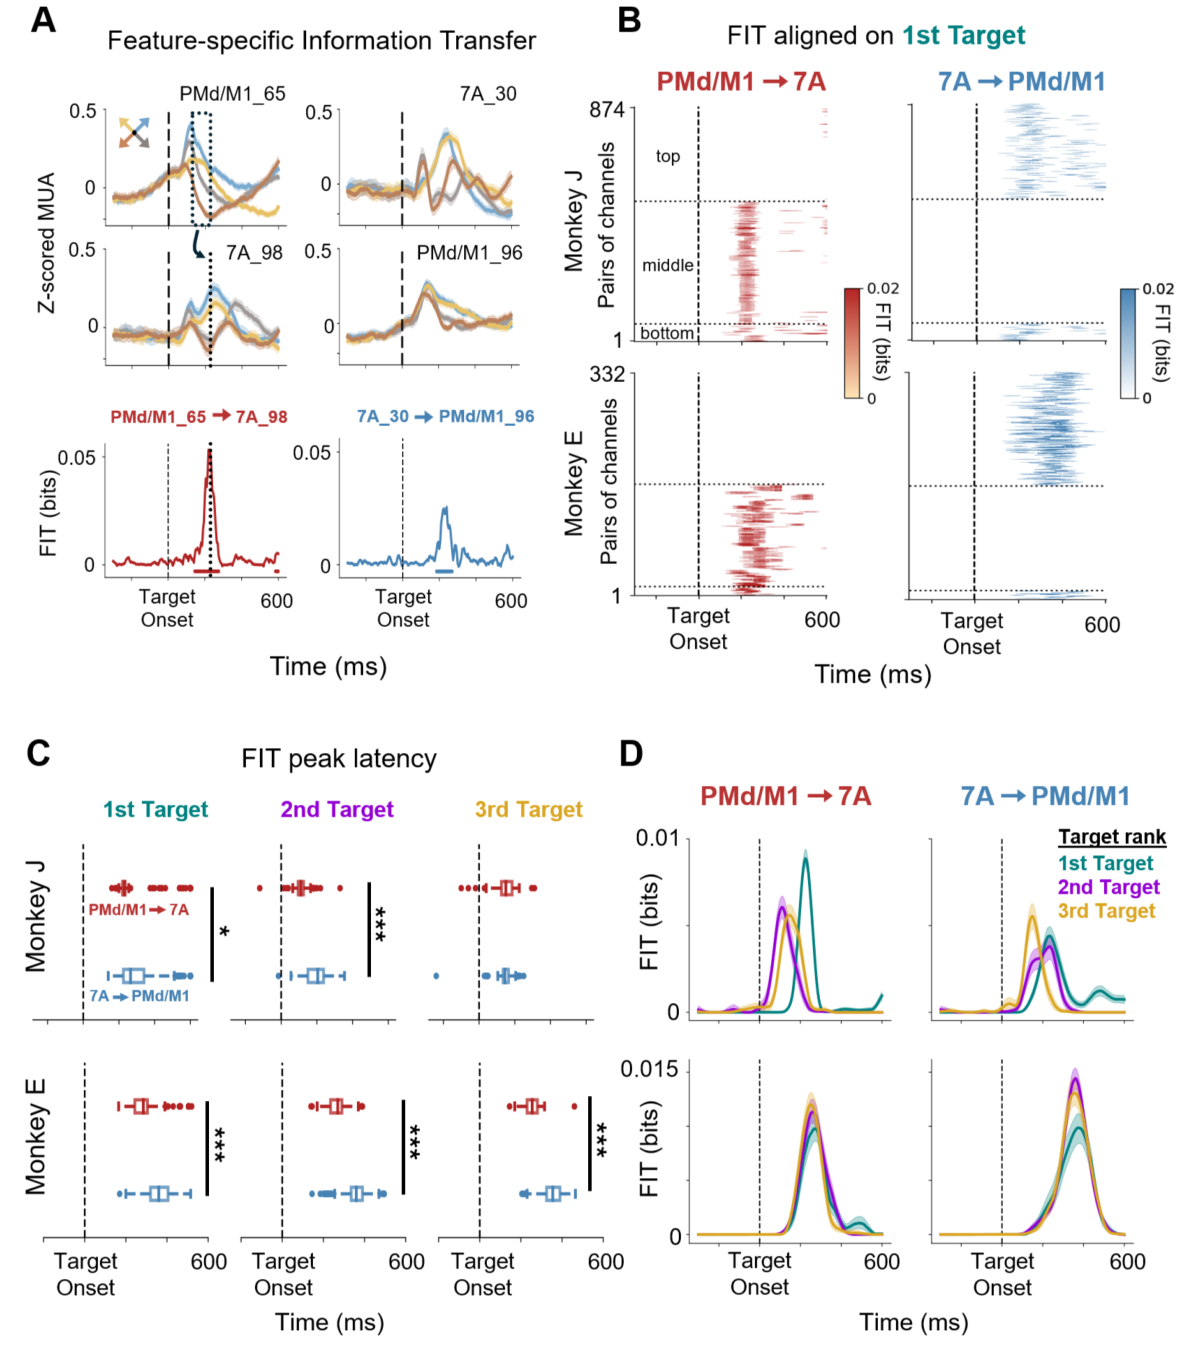
在第一目标运动期间,猴 J 中有 874 对通道表现出显著的 FIT 相互作用(占总通道对的 32.1%),猴 E 中有 332 对(占 9.8%)。在具有方向显著性的连接中,猴 J 的 7A→PMd/M1 占 40.4%,PMd/M1→7A 占 52.4%;猴 E 中两者分别占 50.3% 与 45.8%,表明额叶与顶叶之间双向信息依赖并存,而非顶叶输出单一占优。在时序上,PMd/M1→7A 的信息峰值潜伏期普遍早于相反方向,其方向潜伏期差异中位数在猴 J 依次为 35 ms、95 ms 与 5 ms,在猴 E 为 75 ms、90 ms 与 100 ms。猴 J 的预先计划使跨区 FIT 信号整体向时间轴前方平移,但脑区间的相对时延关系基本维持不变;猴 E 则未见系统性前移。
逐图解读
 原文 Fig. 1 · PDF 第 5 页 · 原文图像 · 公开来源
图1 · 序列任务与可预测性。 目标出现同时就是 go cue,没有独立的 instructed delay。所谓准备期来自前一运动结束、驻留及下一目标出现之前,不能与延迟伸手任务直接等同。
 原文 Fig. 2 · PDF 第 7 页 · 原文图像 · 公开来源
图2 · 两种眼手策略。 J 不仅更早发起,还更早对准未来方向;E 的潜伏期变化较小且方向调谐出现时点相近。时序预测和空间方向预测必须分开。
 原文 Fig. 3 · PDF 第 9 页 · 原文图像 · 公开来源
图3 · 植入位置与神经活动。 示例 SUA 显示 J 的提前调谐,MUA 热图显示 PMd/M1 幅度策略差异。示例通道用于说明模式,显著性依据跨通道分析而非这两个例子。
 原文 Fig. 4 · 图体在 PDF 第 13 页、图注在第 14 页 · 原文图像 · 公开来源
图4 · 共享方向空间中的提前轨迹。 同一 LDA 空间可描述不同目标次序的方向表征,但轨迹分离在 J 中提前、E 中不提前。可解码时间依赖训练窗、平滑和随机基线,不是神经计划开始的绝对时刻。
 原文 Fig. 5 · PDF 第 17 页 · 原文图像 · 公开来源
图5 · 双向 FIT 及其时序。 热图按单向/双向显著分组,峰潜伏期分布显示两个方向并存。FIT 的箭头表示信息论模型的方向,不应读成已被刺激或损毁验证的神经驱动方向。
讨论与解读边界
研究结果表明,空间预先计划改变的不只是单个脑区神经活动的启动时机,同时也会引起跨脑区方向特异性统计依赖的整体时序前移。该发现表明序列运动规划并不严格遵循由顶叶向运动区单向逐级传递的简单层级框架,但这并不排除某些局部神经环路或特定运动阶段存在顶叶先导的动力学过程。
实验中两只动物自发采取不同行为策略,动物个体特异性、训练时长差异及植入阵列的信号质量均可能与策略表现共变;此外,序列不同阶段的手部初始位置及可选方向数量也存在客观差异。跨会话拼接 MUA 信号虽然增强了解码信噪比,但未对同一批神经元进行长期追踪。FIT 分析仅针对具备统计显著方向调谐的通道对,所得比例不能直接推论为全脑皮层连接权重。论文未通过药理学失活、光遗传刺激或电刺激等因果性扰动手段,验证该双向神经交互对于维持序列运动策略的必要性。
思考问题
- 在同一动物内随机诱导 anticipation 与 reactive 策略后,双向 FIT 的方向和时序是否仍按策略切换?
- 若短暂扰动 PMd/M1 或 7A,行为 anticipation 与对侧区域的 FIT 哪个会先改变,能否形成因果时序?