D06 · Hand position fields of neurons in the premotor cortex of macaques during natural reaching
Cao, S.-H., Han, X.-Y., Zhao, Z.-P., Gu, J.-W., Jiang, T.-Z., & Yu, S. (2025). Nature Communications, 16, 3489. doi:10.1038/s41467-025-58786-3
自然伸手取食时,部分 PMd 神经元对手的位置表现出局部场状调谐。控制已测方向、速度和食物位置后,一小组位置选择性较强的细胞仍能支持较好的离线手轨迹解码。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
手在空间中的位置会影响伸手动作,但位置通常与运动方向、速度和食物或目标位置一起变化。一个神经元在某区域放电较多,可能确实具有位置选择性,也可能只是经过该区域时恰好以某方向或速度运动,或者正在接近食物。要主张“手位置场”,需要把这些协变量分开,并检验响应形状更符合局部场还是简单线性梯度。自然伸手提供了比固定靶点更丰富的空间采样,也带来了眼位、姿态和未测行为因素等新的混淆。
位置调谐与场状调谐并不是同一概念。线性位置梯度会让放电沿一个方向持续增加,局部场则在工作空间的有限区域达到峰值。二维高斯与线性平面的比较可以区分这两种形态,但场与海马位置细胞外观相似并不足以证明共享回路。稳定性筛选、占据时间归一化和打乱检验是识别空间响应的基础;进一步用速度和方向、食物位置做重建筛选,才能判断位置信息是否具有额外解释力。最终还需检验这些细胞能否在少量群体规模下支持轨迹解码,而不是只报告显著细胞比例。
Cao 等在自然伸手取食中记录 PMd,比较空间放电图、调谐形状和不同类型细胞,再分析位置选择性较强细胞的离线解码。研究希望回答:PMd 是否存在非线性的局部手位置场,它们能否在控制已测协变量后保留,以及少量此类细胞可以提供多少位置读出。结果为自然行为中的空间表征提供了证据,但跨实验汇总的细胞数不等于单次记录规模,八成左右的相对解码性能也不是分类准确率或信息量。眼位与姿态未完全控制,场形状与少细胞效率之间的因果关系仍待检验。
研究思路
占据时间校正、打乱检验与场形状拟合用于识别位置相关单元;重建分析比较位置与速度—方向及食物位置解释,再进行轨迹解码。筛选和解码的样本分母不同,应避免把相关系数比例称为准确率或信息比例。
方法
四只雄性恒河猴(A、B、X、Z,9–11 岁),左侧 PMd 手区植入 Utah array(X 为 96 通道,其余 48 通道,电极间距 400 µm)。任务为自然 reach-and-grasp:水果固定在实验者手持的 wand 一端,随机移动位置(猴子伸手途中也可能移动),猴子用右臂自发伸手取食,无指令、无时间限制,唯一的空间约束来自头固定椅。共 18 个 session(每猴 3–8 个),平均 26.3±6.5 分钟、约 100 次取食;记录到的手部可达空间约 35×35×39 到 44×38×50 cm 见方。手部位置用 4 台相机(60–100 帧/s)加 DeepLabCut 追踪中指掌指关节,用 pose3d 工具箱做三维重建,鼻子位置作坐标参照;速度低于 1 cm/s 的静止段剔除。尖峰信号经 Mountainsort 自动分拣加人工核验(ISI 违规率 <2%),共 839 个 putative single units;再以前后半 session 空间放电图的相关 r>0.3 筛出 601 个稳定细胞进入主分析。空间图用 1×1 cm 分箱、2D Gaussian 平滑(σ=1.5 bin)。解码用线性 Kalman filter(状态为位置-速度-加速度,100 ms 窗、50 ms 步进,前 70% 训练、后 30% 测试),以测试段观测与解码轨迹的相关系数(cc)为指标。
主要结果
第一层结果显示手位置场在统计上明确存在。在 601 个稳定记录单元中,有 132 个(22.0%)表现出显著的手位置调谐(四只猴分别为 4、34、57、37 个),显著高于 0.01 的机会水平,平均空间信息量为 0.59±0.29 bits/spike。拟合形式比较表明:在这 132 个细胞中,83%(109 个)的放电区域能被二维高斯模型良好拟合(r²=0.80±0.19),仅 50% 可被线性平面模型拟合(r²=0.52±0.24),逐细胞配对比较显示二维高斯拟合具有显著优势(P=2.46×10⁻²⁶),支持局部“场”而非全局线性梯度的调谐形态。作为对照,网格周期性分析未检出网格状细胞,说明在该实验条件下细胞响应更接近局部场而非周期结构,尚不能推断其与海马空间表征具有相同的神经机制。
第二层结果:场在混合选择框架里站得住。PMd 群体里 24%(144/601)方向调谐、32%(192/601)速度调谐、3%(18/601)食物位置调谐,各种调谐大量重叠;132 个位置调谐细胞里 47 个(36%)与已测其他变量无显著相关。经过两步 reconstruction 筛选(先排速度–方向、再排食物位置),80 个候选中留下 50 个 primary hand position-tuned cells(B 18、X 17、Z 15,A 为 0),它们的 Gaussian 拟合优势依然稳固(全图拟合 r²=0.58±0.26 对线性 0.27±0.14,P=9.35×10⁻¹²)。
第三层结果展示了这批筛选细胞的编码效能。这 50 个 primary cells 的位置场平均面积为 98.7±85.3 cm²(39 个符合面积 >25 cm² 且被手部访问至少 5 次标准的场),形态普遍呈各向异性(长短主轴长度比显著大于 1,P=1.71×10⁻¹²),12%(6/50)的细胞具有多个场,场分布覆盖可达工作空间。在轨迹解码检验中,每个 session 平均包含的 primary cells 仅为 4.2±2.9 个,卡尔曼滤波解码手部轨迹的相关系数即可达到 cc=0.54±0.10;作为参考,各 session 全部记录细胞(全研究共 839 个单元)解码表现为 0.68±0.17,稳定细胞为 0.68±0.16。这表明占记录总数约 10% 的筛选子集可实现全群体约 84% 的解码表现;数量匹配的随机抽样对照神经元(剔除位置调谐细胞后抽取)解码相关系数仅为 cc=0.31–0.33(P<0.001)。这些单元表现出较高的单位神经元解码贡献,但未被选入的其余细胞仍可能以分布式冗余的形式承载相关信息。
逐图解读
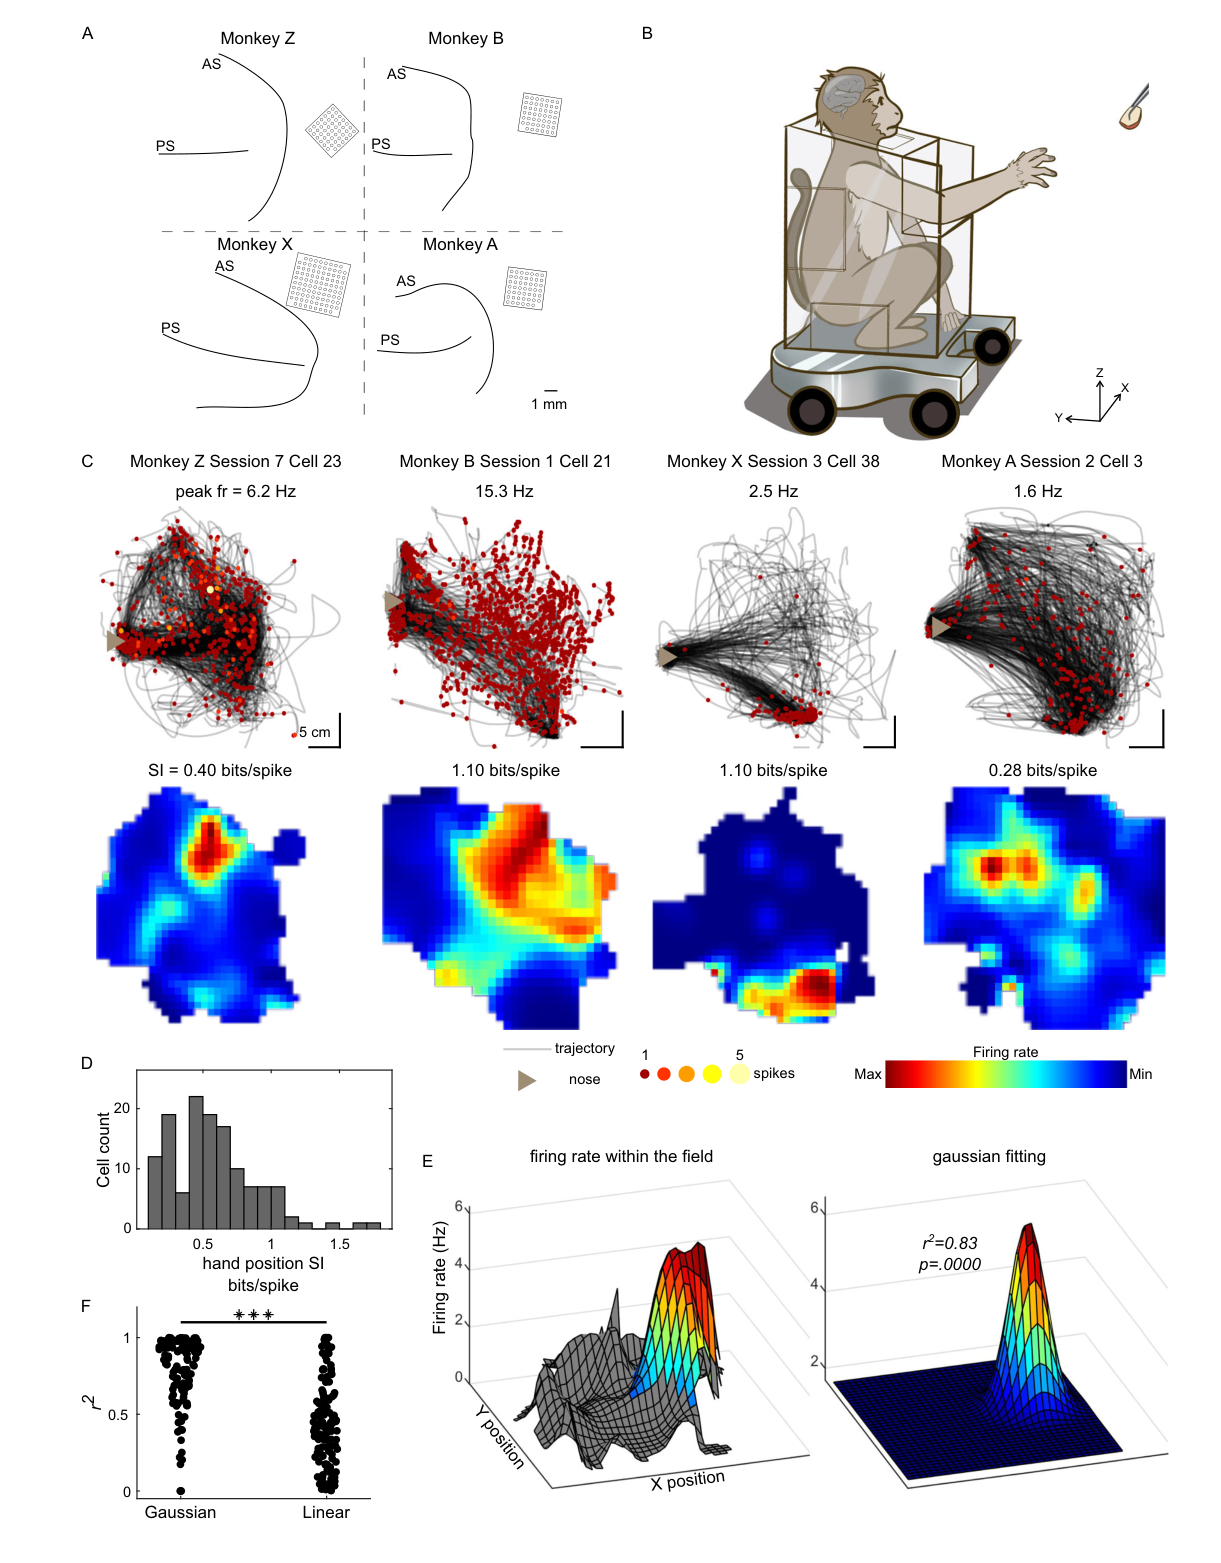
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · PMd 中的手位置特异性调谐。 (A) 四只猴的 Utah array 植入位置,主要覆盖 PMd 手区,黑线为 PS、AS 等定位沟回;(B) 自然 reach-and-grasp 任务示意;(C) 上排为四个示例 session 的手运动轨迹(黑线)叠加一个细胞的放电标记(圆圈大小颜色编码 spike 数,棕色三角为鼻子位置),下排为对应的 2D 空间放电率图及 SI 值——放电并非随机洒在轨迹上,而是集中在特定空间区域;(D) 132 个位置调谐细胞的 SI 分布;(E) 一个示例场及其 2D Gaussian 拟合(r²=0.83);(F) 132 个细胞上 Gaussian 与线性拟合的 r² 逐对比较(P=2.46×10⁻²⁶)。这张图承担了"眼见为实"的论证:轨迹-放电叠加图让人第一眼看到位置结构,Gaussian 对平面的胜利则把它定形为场。
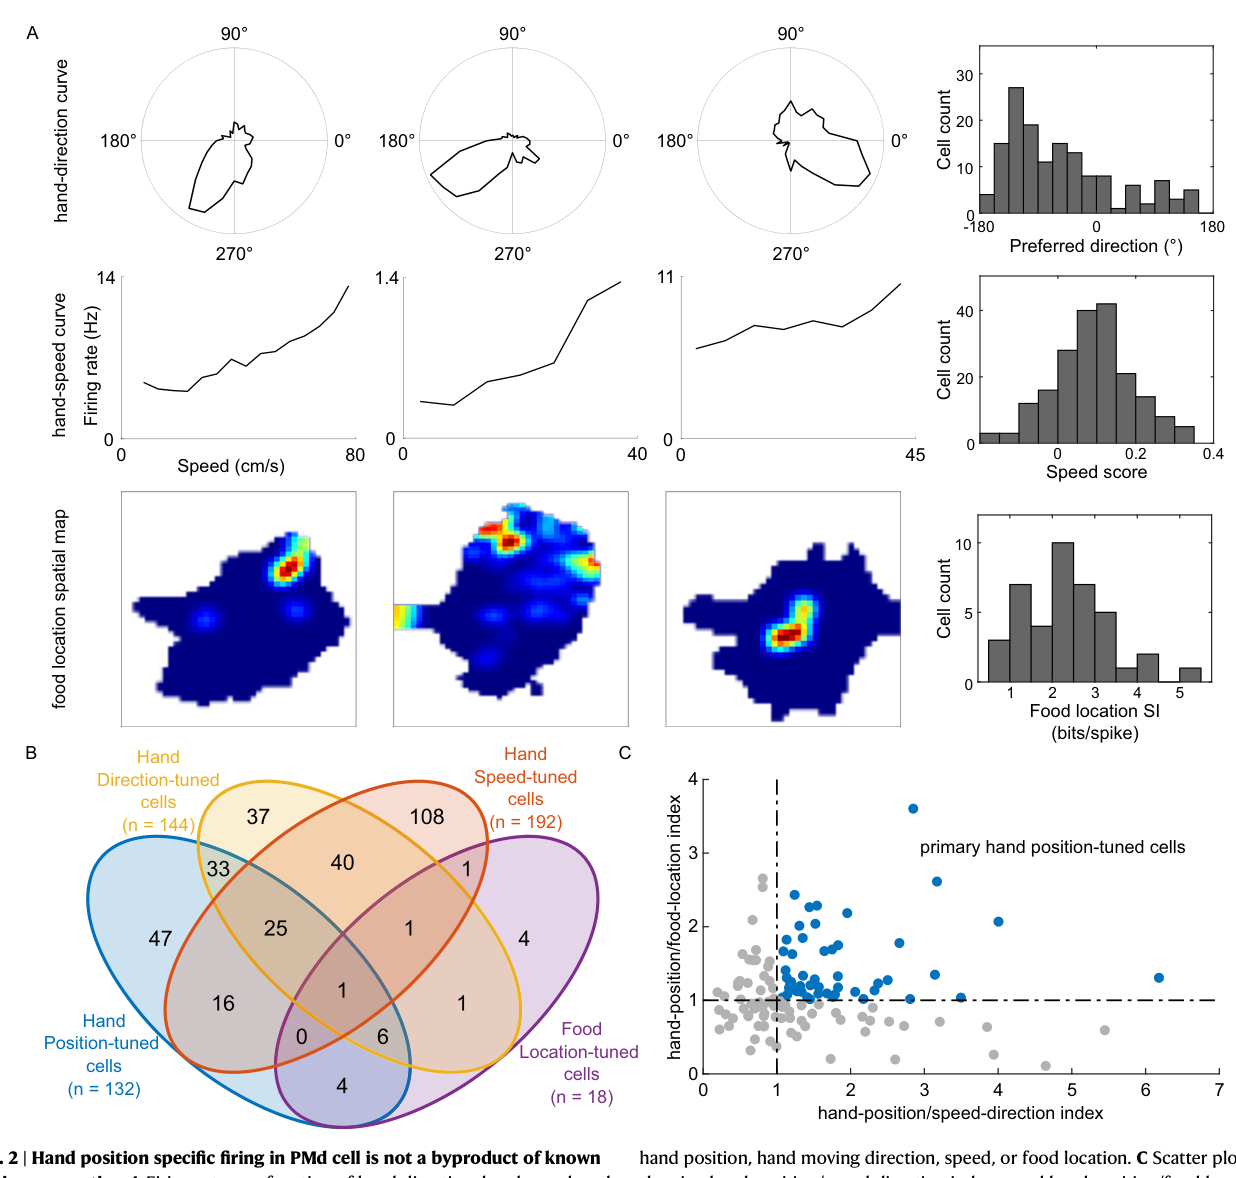
来源:原文 Fig. 2,PDF 第 5 页。
图 2 · 位置调谐不是已知调谐性质的副产品。 (A) 三个示例细胞分别展示方向调谐曲线(附 144 个方向细胞的 preferred direction 分布)、速度调谐曲线(附 192 个速度细胞的 speed score 分布)和食物位置空间图(附 18 个食物位置细胞的 SI 分布)——这三种解释位置结构的候选变量各自都有真实的调谐群体;(B) 四类调谐细胞(位置 132、方向 144、速度 192、食物 18)的群体计数汇总,混合选择可以看出;(C) 132 个位置调谐细胞在两个 reconstruction 指数平面上的散点:横轴为位置/速度–方向指数,纵轴为位置/食物位置指数,蓝点(n=50)为两个指数都大于 1 的 primary hand position-tuned cells。这张图是全文的关卡:只有穿过两道 reconstruction 筛子的细胞,才配谈"位置场"。
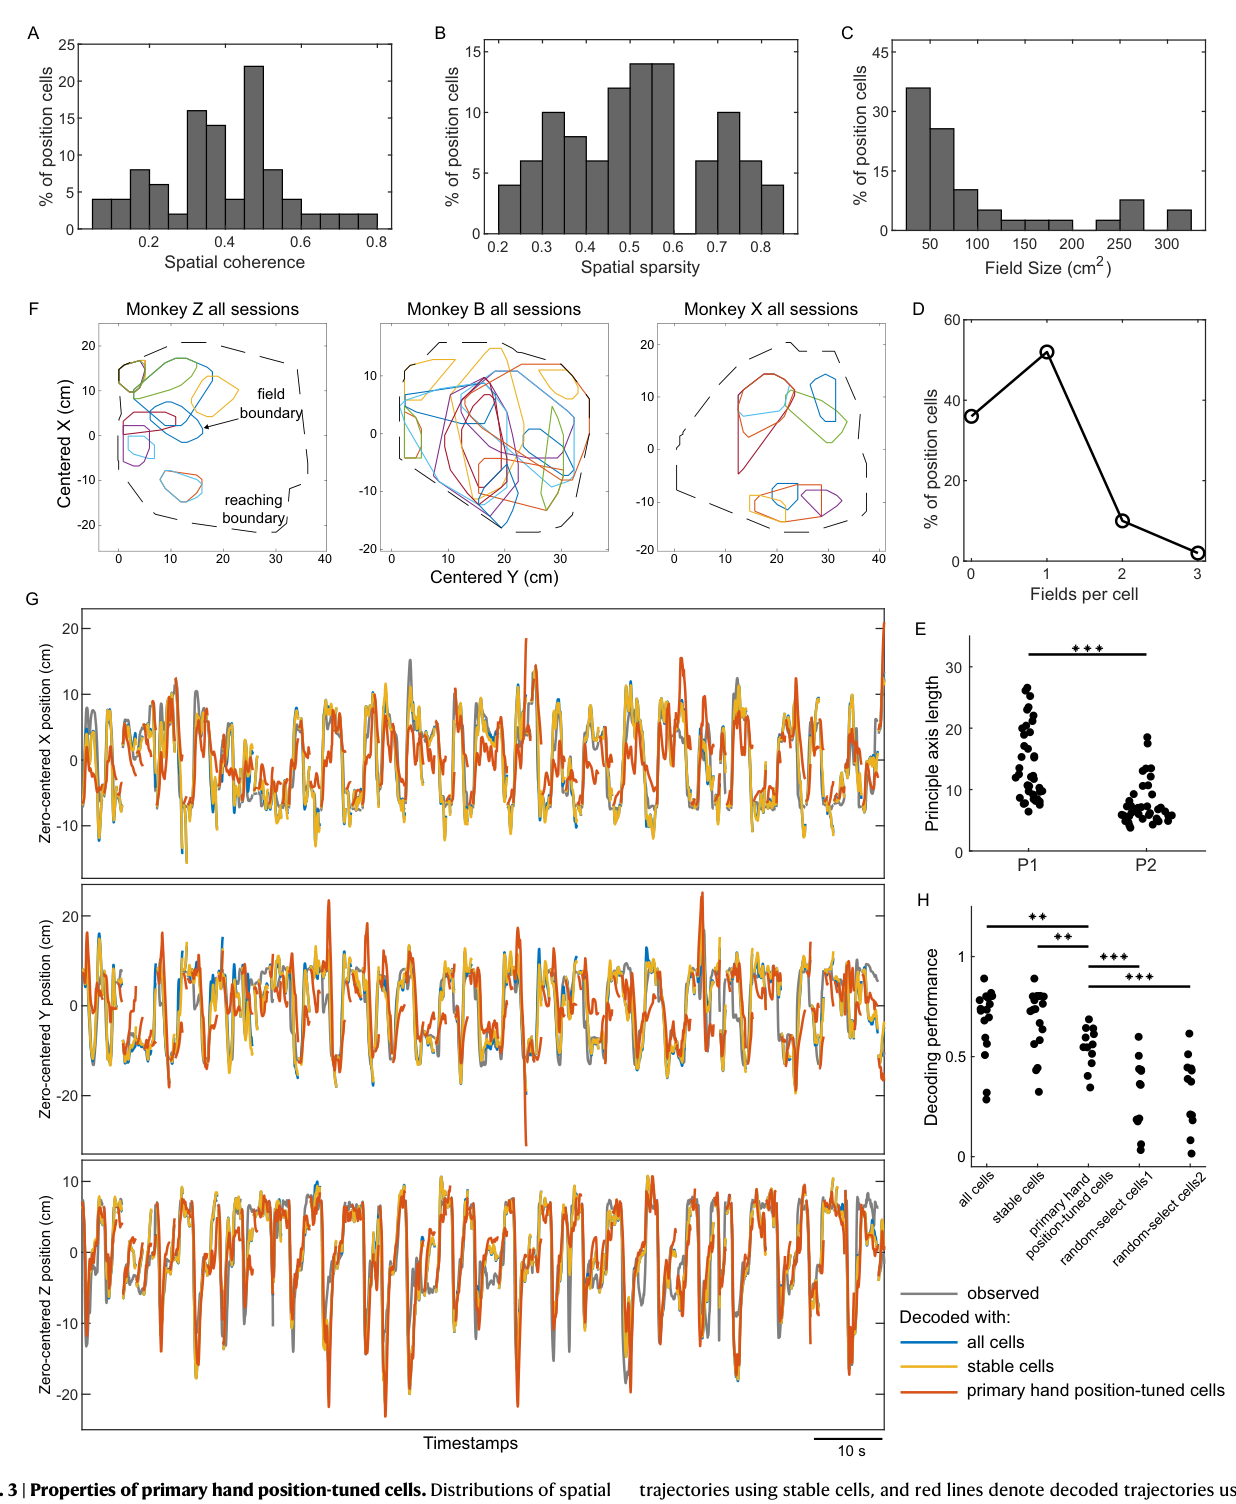
来源:原文 Fig. 3,PDF 第 6 页。
图 3 · primary 位置细胞的场性质与解码效率。 (A–D) 50 个 primary cells 的空间连贯性(0.39±0.16)、空间稀疏度(0.52±0.17)、场面积(均值 98.7 cm²)和每细胞场数(多为 1 个,12% 多场)的分布;(E) 39 个合格场两主轴长度的两两比较,显著拉长(P=1.71×10⁻¹²);(F) 各猴所有 session 的合格场叠加在以鼻子为原点的可达空间上,彩色线区分不同细胞,场覆盖了大部分可达范围;(G) 一个 session 的手轨迹解码实例:灰线为观测,蓝、黄、红线分别为全细胞、稳定细胞、primary cells 的解码结果;(H) 五组细胞的解码性能对比,primary cells(cc≈0.54)显著高于两组等量随机对照(≈0.31–0.33),达到全群和稳定细胞性能的八成以上。读这张图要把 (E) 和 (H) 串起来:拉长的场意味着单个细胞在空间里划出一条"敏感带",而一群朝向各异的敏感带叠加起来,就能以极少的细胞铺满整个空间——这是一种可能的几何解释,原文没有单独操纵场形状来证明其因果作用。
讨论与解读边界
这项工作把经典位置调谐延伸到自然运动中的非线性空间场,并使用占据时间归一化、稳定性筛选和重建分析检验若干协变量。报告的22%以601个稳定细胞为分母,不是全部839个已记录单元;50个primary细胞也是跨实验汇总,不能理解为某一次记录同时使用50个。
场状响应与海马位置场相似,不足以证明两者具有相同回路机制。未测眼位、姿态或其他行为因素仍可能贡献位置选择性。约八成性能是相对全群体相关系数的水平,不是80%的分类正确率,也不是80%的信息量。场形状与少细胞解码同时出现,尚未证明拉长形状就是解码效率的原因;细胞筛选是否完全限定在训练段,也应在独立复现中严格核验。
思考问题
- 改变头、眼或身体位置后,手位置场保持在哪一种参考坐标系中?
- 仅用训练段完成稳定性与位置选择性筛选,再预测独立日期,少细胞解码的优势是否保持?