D05 · Multiscale low-dimensional motor cortical state dynamics predict naturalistic reach-and-grasp behavior
Abbaspourazad, H., Choudhury, M., Wong, Y.T., Pesaran, B., & Shanechi, M.M. (2021). Nature Communications, 12, 607. doi:10.1038/s41467-020-20197-x
连续自然伸手抓握中,spike 与 LFP 状态空间模型都识别出对行为预测较强的慢模态。联合建模可改善模态估计及关节运动预测,且这一模态不简单复制行为本身的动力学。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
自然伸手抓握不是由固定 go cue 切开的重复试次,而是物体位置不断变化、动作连续展开的序列。研究这种行为需要描述神经活动的时间结构,而不仅是某个事件前后的平均放电。spiking 与 LFP 提供了不同尺度的观察:前者更接近局部放电事件,后者反映较大范围的突触与群体过程。二者可能共享行为相关的慢模态,也可能只是同一电极中尖峰成分混入高频 LFP 所造成的表面一致,因此必须在同一行为和模型框架下比较。
状态空间模型可以把神经活动表示为一组具有衰减时间和频率特征的模态。真正稳定的模态不应随模型维度随意出现或消失,而且对行为预测应有可重复贡献。若 spiking 与 LFP 独立估计都出现位置相近、行为预测占优势的慢模态,联合建模便可能改善状态估计和运动学预测。反过来,若该模态只是关节运动的直接复制,其时间常数应与行为模态一致;若不同,则说明它包含不能简单归结为轨迹形状的动力学信息。模型中删改模态的敏感性分析也只是计算评估,不是干预脑内振荡。
Abbaspourazad 等在自然连续伸手抓握中分别拟合 spike、LFP 和联合状态空间模型,检查不同维度下的模态谱、行为预测和跨尺度位置,并用非重叠电极池及高低频段分析控制尖峰污染。研究希望回答:两类信号是否共享缓慢而行为相关的成分,联合估计能否提高预测,以及该成分是否具有不同于行为轨迹的时间尺度。结果支持跨尺度的慢模态,但不意味着两类信号有完全相同的生成过程,也不证明秒级时间常数是所有自然动作的生物学必要条件。
研究思路
作者分别拟合神经状态空间模型,比较不同维度下稳定出现的模态及其衰减和频率,并检验潜在状态对行为的预测。对拟合模态的删改评估的是模型功能,不是对生物神经回路的直接干预。
方法
两只雄性恒河猴(J、C),在运动对侧半球同步记录 spiking 和 LFP:J 覆盖 M1、PMd、PMv 和 PFC(137 电极的大规模微驱动阵列),C 覆盖 PMd、PMv(两个 32 电极微驱动),电极间距至少 1.5 mm;分析 J 的 7 个、C 的 4 个 session。任务是 3D 自然 reach-and-grasp:50 cm × 50 cm × 50 cm 工作区内,实验者持续把 wand 上的物体移到随机位置,猴子自发伸手、抓取、放回,没有 go cue、没有时间限制、没有 trial 结构。行为学用 23 个反光标记的运动捕捉(100 帧/s)加解剖学恒河猴肌肉骨骼模型反解关节角,J 追踪 27 个、C 25 个肩肘腕指关节角。神经特征方面,spike 按 10 ms 分箱成 0/1 序列,用 point process 建模;LFP 取 7 个频段(theta 4–8 Hz、alpha 8–12、beta1 12–24、beta2 24–34、gamma1 34–55、gamma2 65–95、gamma3 130–170 Hz)的 log-power,300 ms 因果窗每 50 ms 更新,用 linear Gaussian 模型描述。一个关键的设计决策:spike 通道池(30 个)与 LFP 通道池(30 个)完全不重叠,降低同一电极的spike成分混入LFP造成的混淆。三个模型——spike 单尺度、LFP 单尺度、spike–LFP 联合多尺度(用他们 2019 年提出的多尺度 EM 算法)——全部五折交叉验证,行为预测精度用 test set 上的 Pearson CC。
主要结果
首先,两个记录尺度各自呈现出结构稳定的模态谱。当模型维度从 1 变化至 25 时,spiking 与 LFP 群体活动的本征值在复平面上均形成紧密的竖直簇(图3),簇内点到质心的距离仅为 0.001–0.003,显著小于机会水平(0.021),表明这些模态对模型维度的选择具有稳健性(这并不意味着可将每个模态直接对应于孤立的生物物理机制);打乱时间结构的神经数据中复数共轭模态则无法成簇。其次,每个尺度中均存在一个对行为预测贡献突出的模态:spiking 尺度的该预测模态平均预测精度是次优模态的 3.2±0.96 倍(猴 J)和 2.2±1.11 倍(猴 C),LFP 尺度中为 2.2±0.71 倍和 3.3±1.9 倍;同时,该模态对神经活动自身的一步前预测精度也最高(图4)——在行为读出与动力学表征中均占据主要地位。
跨尺度分析显示,尽管两个尺度各自估计的模态集合存在差异(LFP 的复数共轭模态数量为 spiking 的 3.1–3.5 倍),两者的主要预测模态在复平面上的位置高度一致:本征值欧氏距离仅为 0.004–0.006,显著小于机会距离(图5)。将 spike 与 LFP 纳入联合多尺度状态空间模型重新估计,模型依然稳定收敛出一个同位的主要预测模态(对次优模态的预测优势分别为 1.7 倍和 4.4 倍)。该模态的时间常数(decay)约为 1.1±0.49 s,振荡频率约为 0.17±0.03 Hz,在不同 session 和不同猴之间均表现稳定(质心间距仅 0.004±0.002)。该模态与外在行为动力学参数存在明确差异:关节角轨迹的模态 decay 为 4–10 s,频率分布展宽至 0.49 Hz(末端手部运动学达 1.5 Hz),反事实模拟排除了神经模态仅是行为运动学简单线性镜像的解释。
预测关联与参数敏感性分析进一步验证了该模态的特性。通过 Monte Carlo 抽取 280(猴 J)和 160(猴 C)组随机通道子集,基于 spike+LFP 联合估计的模态相较单尺度估计更贴近最优预测模态,且模态距离缩短量与预测精度提升量之间呈显著正相关(R=0.49 与 0.52,图6);该预测模态在 LFP 的低频段(theta、alpha、beta)与高频段(gamma)中均可检出,排除了仅由高频电极尖峰泄漏导致的可能(图7)。模型参数敏感性分析表明:将预测模态的 decay 缩短至 0.1 s(缩短 10 倍),行为预测 CC 从 0.4 降至 0.07;若延长至 10 s,相关系数降至 0.35;频率的最优区间约为 0.17–0.3 Hz,decay 的最优窗口约为 1–2 s(图8)。这种秒级的时间常数构成了当前状态空间模型准确预测行为的关键动力学特征,尚不能直接等同于生物回路的必然因果律。
逐图解读
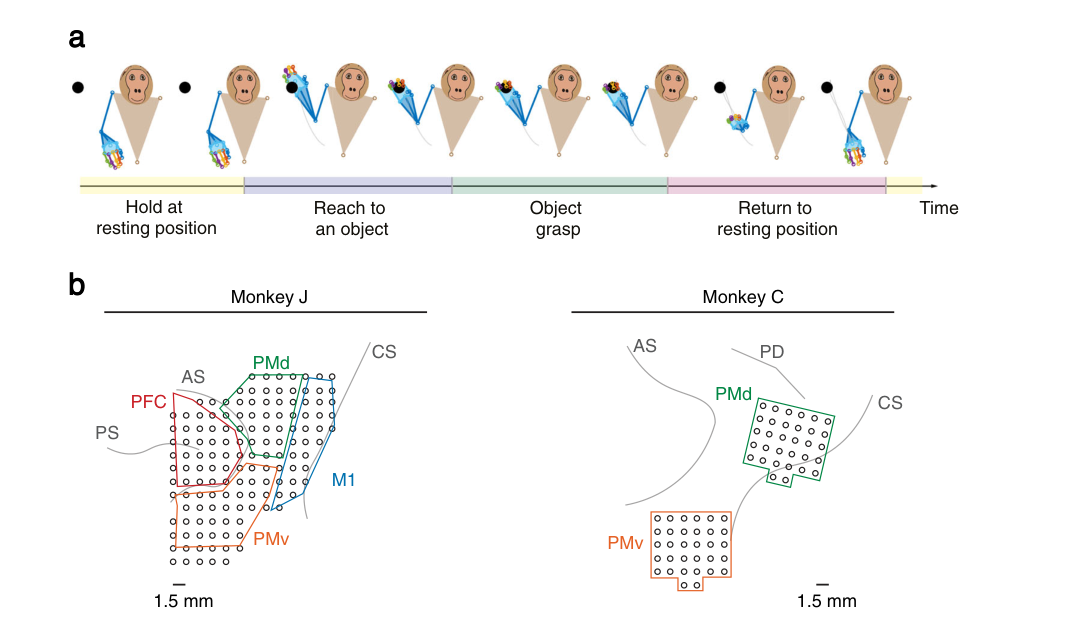
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 任务与记录位置。 (a) 3D 自然 reach-and-grasp 任务的示意,画面由一个 session 的标记点轨迹重建:猴子伸手—抓取 wand 上的物体—放回休息位,全程连续进行,没有 go cue 和 trial 结构;(b) 两只猴的记录区域,J 覆盖 M1/PMd/PMv/PFC、C 覆盖 PMd/PMv,黑点为电极位置,灰色线为主要沟回(PS、AS、CS、PD),电极间距 1.5 mm。这张图交代了全文的地基:一个故意不加约束的行为范式,加上一片跨越四个皮层区、可供 spike 与 LFP 分池记录的领土。
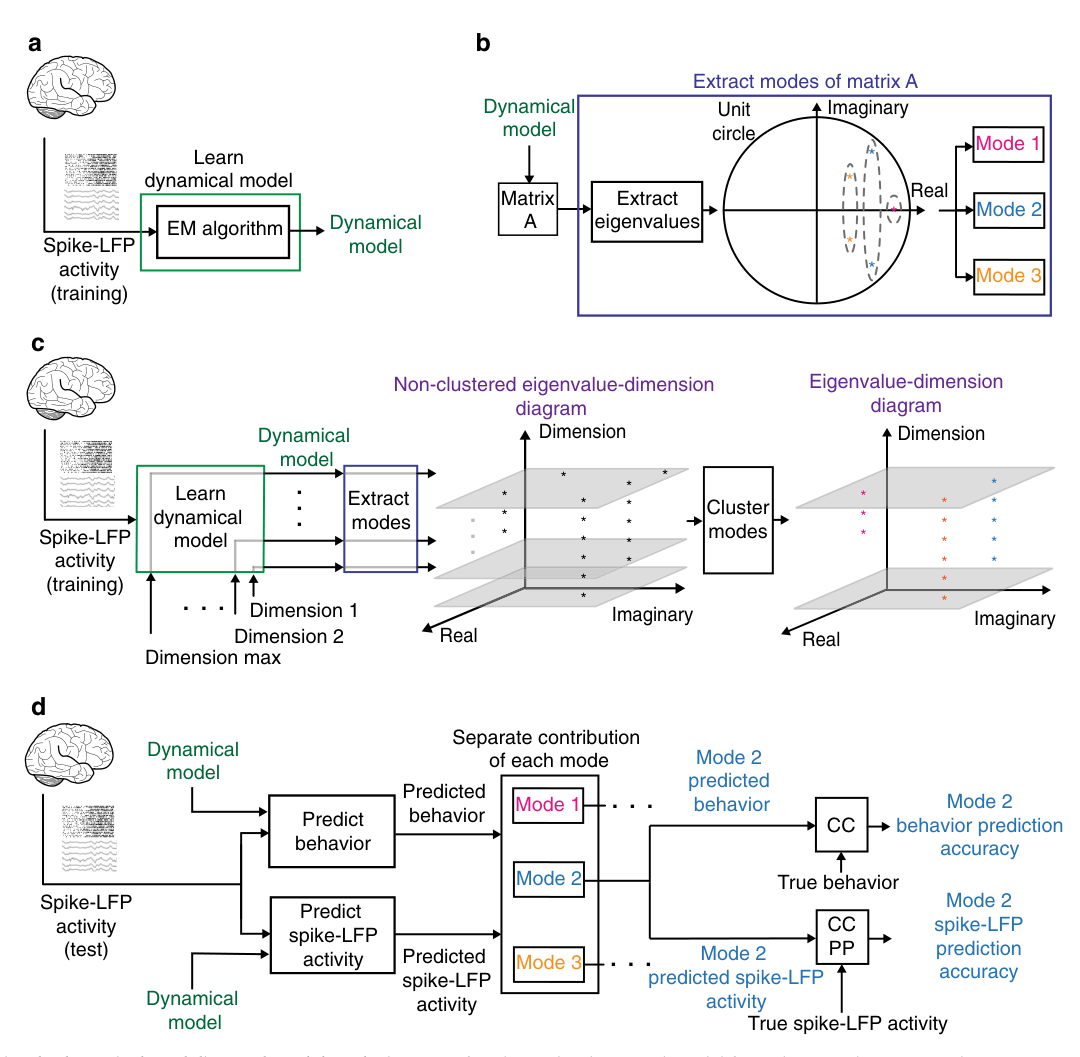
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · 多尺度动力学建模与模态分析流水线。 (a) 在训练集上从神经活动(spiking、LFP 或联合 spike–LFP)学状态空间模型;(b) 状态转移矩阵的每对共轭复本征值是一个模态,对应一对 decay–frequency,插图是本征值平面上的单位圆;(c) 模态验证的核心机制——对同一数据学维度 1 到 25 的一系列模型,把模态画进"本征值–维度"三维图,真模态应聚成竖直簇,再用 K-means 聚类提取;(d) 在 test set 上用学到的模型估计隐状态,分别预测行为(CC)和一步前预测神经活动(spike 用 prediction power,LFP 用 CC),并把每个模态的贡献切开单独评估。一张图讲清全文方法论,后面所有结果都是这条流水线的输出。
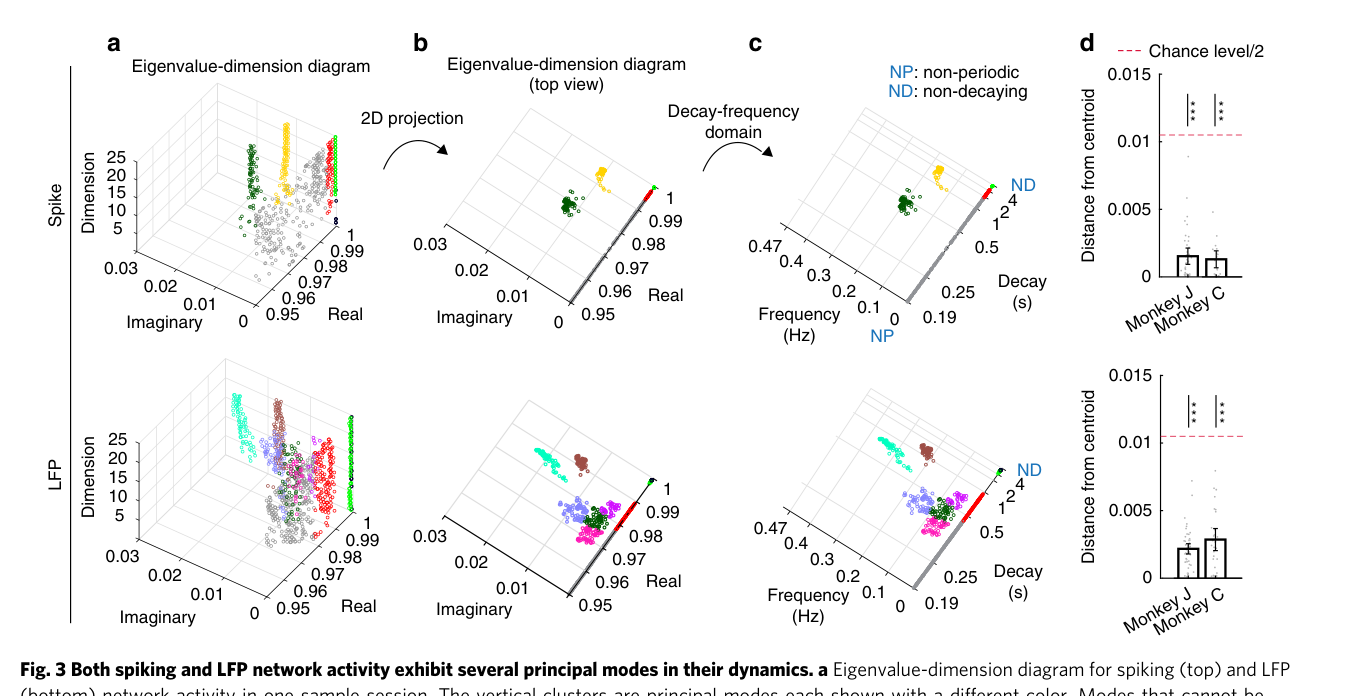
来源:原文 Fig. 3,PDF 第 5 页。
图 3 · spiking 与 LFP 都有多个 principal mode。 (a) 一个 sample session 里 spiking(上)与 LFP(下)的本征值–维度图,彩色竖直簇即各 principal mode,灰色为无法归簇的成分;(b) 顶视图(只画维度 10 以上);(c) 同一顶视图换算到可解释的 decay–frequency 域,NP/ND 分别标出非周期、非衰减的边界;(d) 所有 session、所有簇的成员到质心距离,两猴两尺度全部远低于 chance level 的一半(P < 1.6×10⁻⁴)。读这张图要点在于"竖直":模态位置不随模型维度漂移,才配称 principal mode。顺带能看出 LFP 的簇比 spiking 多——正文报告 LFP 的复数共轭模态数是 spiking 的 3 倍多,与其更大的时空尺度相符。
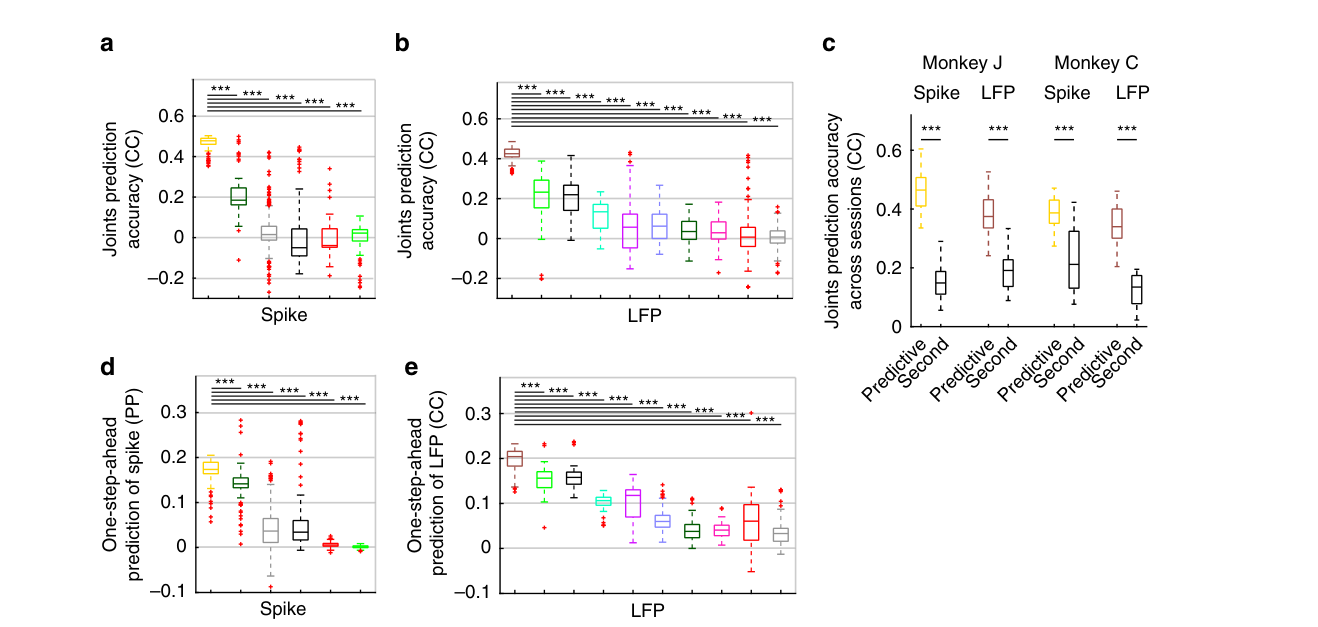
来源:原文 Fig. 4,PDF 第 6 页。
图 4 · 每个尺度里恰有一个支配性的 predictive mode。 (a, b) sample session 里 spiking(黄色簇)和 LFP(棕色簇)各模态簇成员的关节角预测精度,predictive mode 显著高于其他所有簇;(c) 跨 session 汇总:predictive mode 对第二好模态的优势在两猴两尺度上都达 2–3 倍以上;(d, e) 同一个 predictive mode 对 spiking 的一步前预测(prediction power)和 LFP 的一步前预测(CC)也最好。这点容易被忽略但很关键:它说明 predictive mode 不是回归出来的行为代理,而是群体动力学自身的枢纽成分——描述神经活动也最离不开它。
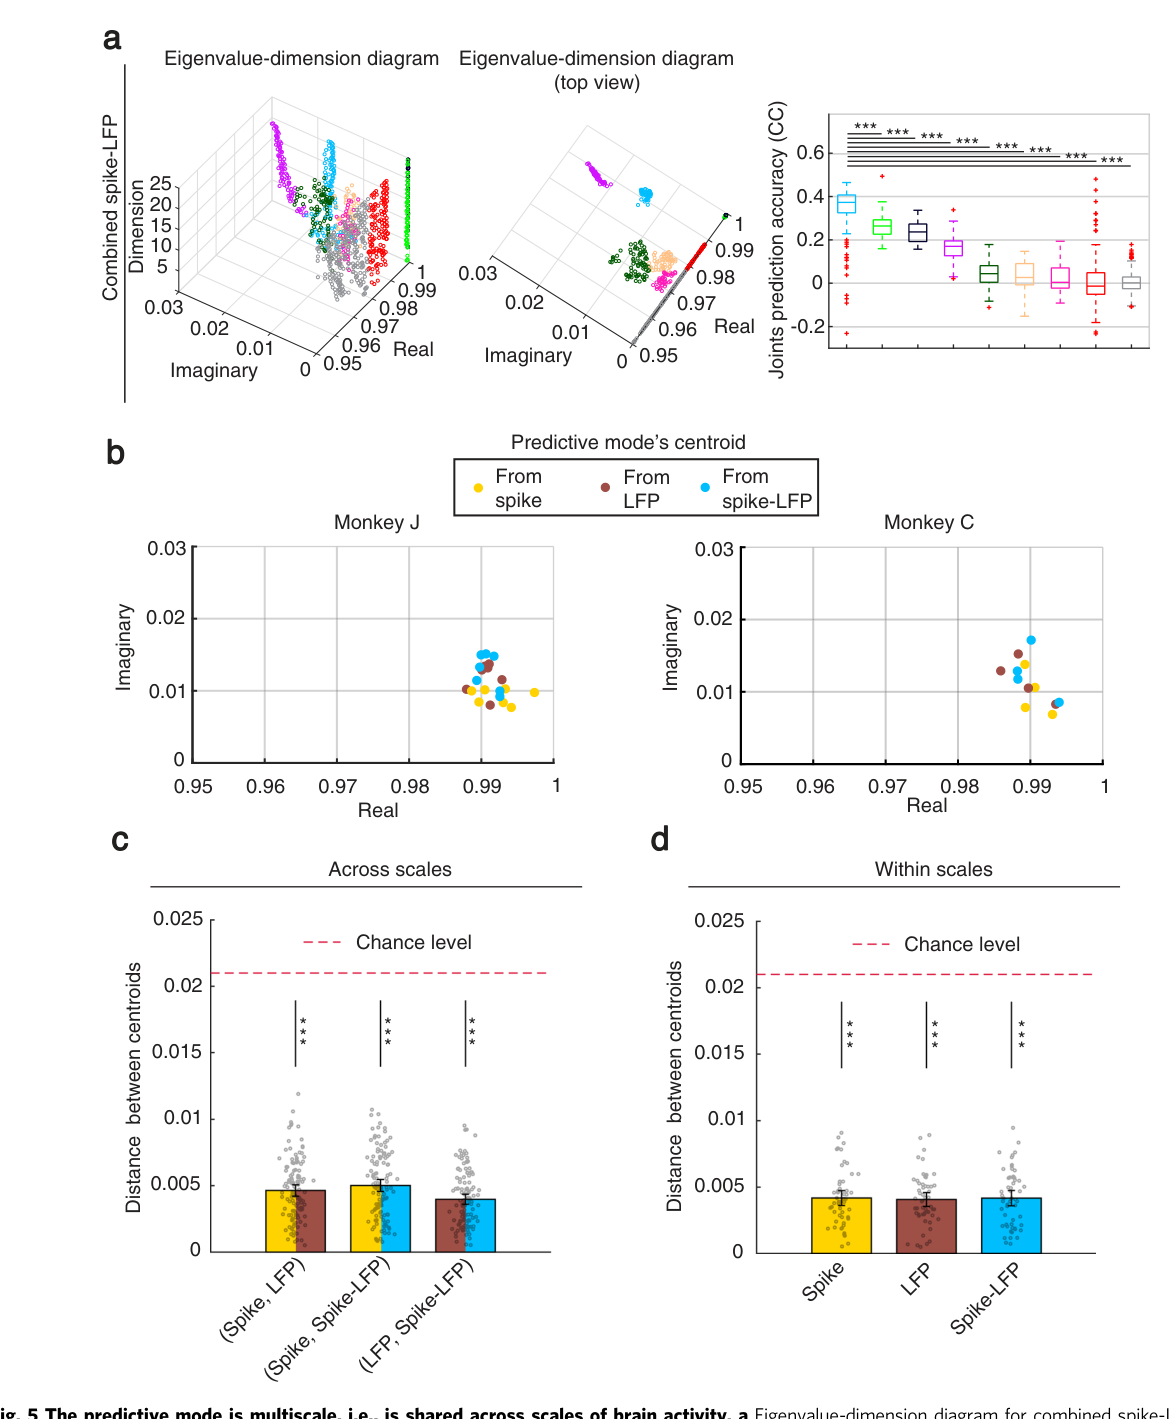
来源:原文 Fig. 5,PDF 第 8 页。
图 5 · predictive mode 是跨尺度共享的。 (a) 联合 spike–LFP 模型的本征值–维度图,青色 predictive mode 再次出现且支配行为预测;(b) 全文的核心散点图:每个点是一个 session 的 predictive mode 质心,黄色(spike)、棕色(LFP)、青色(联合)三种点几乎叠在同一处;(c) 跨尺度质心两两距离显著小于 chance level;(d) 同尺度内跨 session、跨猴的质心距离也远小于 chance。三色点重叠就是"多尺度"四个字的全部视觉证据:从单神经元放电和从大尺度场电位独立估计出的、对行为最重要的那个动力学成分,具有相近的衰减与频率特征。
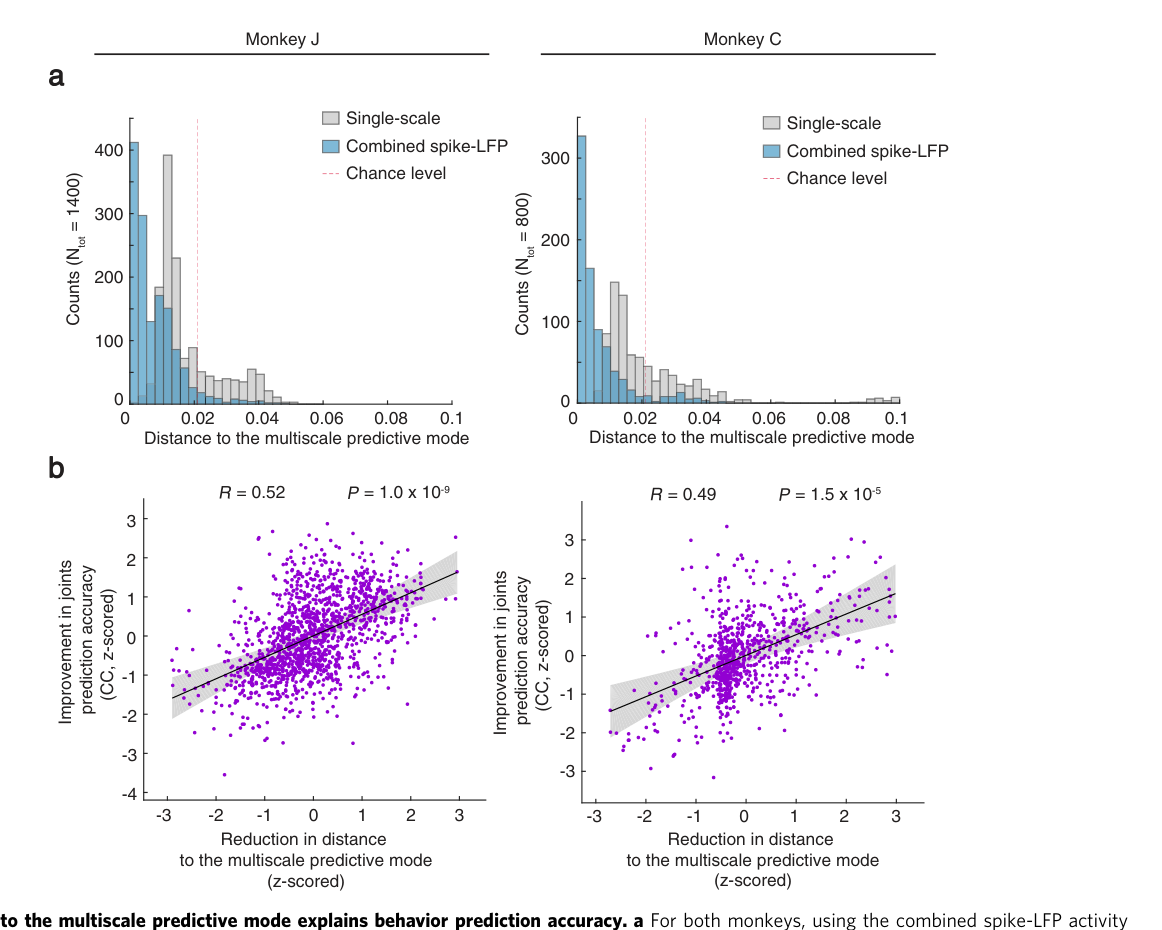
来源:原文 Fig. 6,PDF 第 10 页。
图 6 · 到 predictive mode 的距离解释预测精度。 (a) 随机通道组合实验(猴 J 280 组、猴 C 160 组,每组以 5 个单尺度通道为基线再加 25 个另一尺度通道):联合 spike–LFP 估计的模态到 predictive mode 的距离分布相对单尺度整体左移,落在 chance level 之下;(b) 距离的缩短量与预测精度的提升量显著正相关(R=0.49 / 0.52)。这是一张"剂量–反应"图:离正典模态越近,解码越好,而合并尺度确实让你更近——把"多尺度模态存在"升级成"多尺度模态有用"。
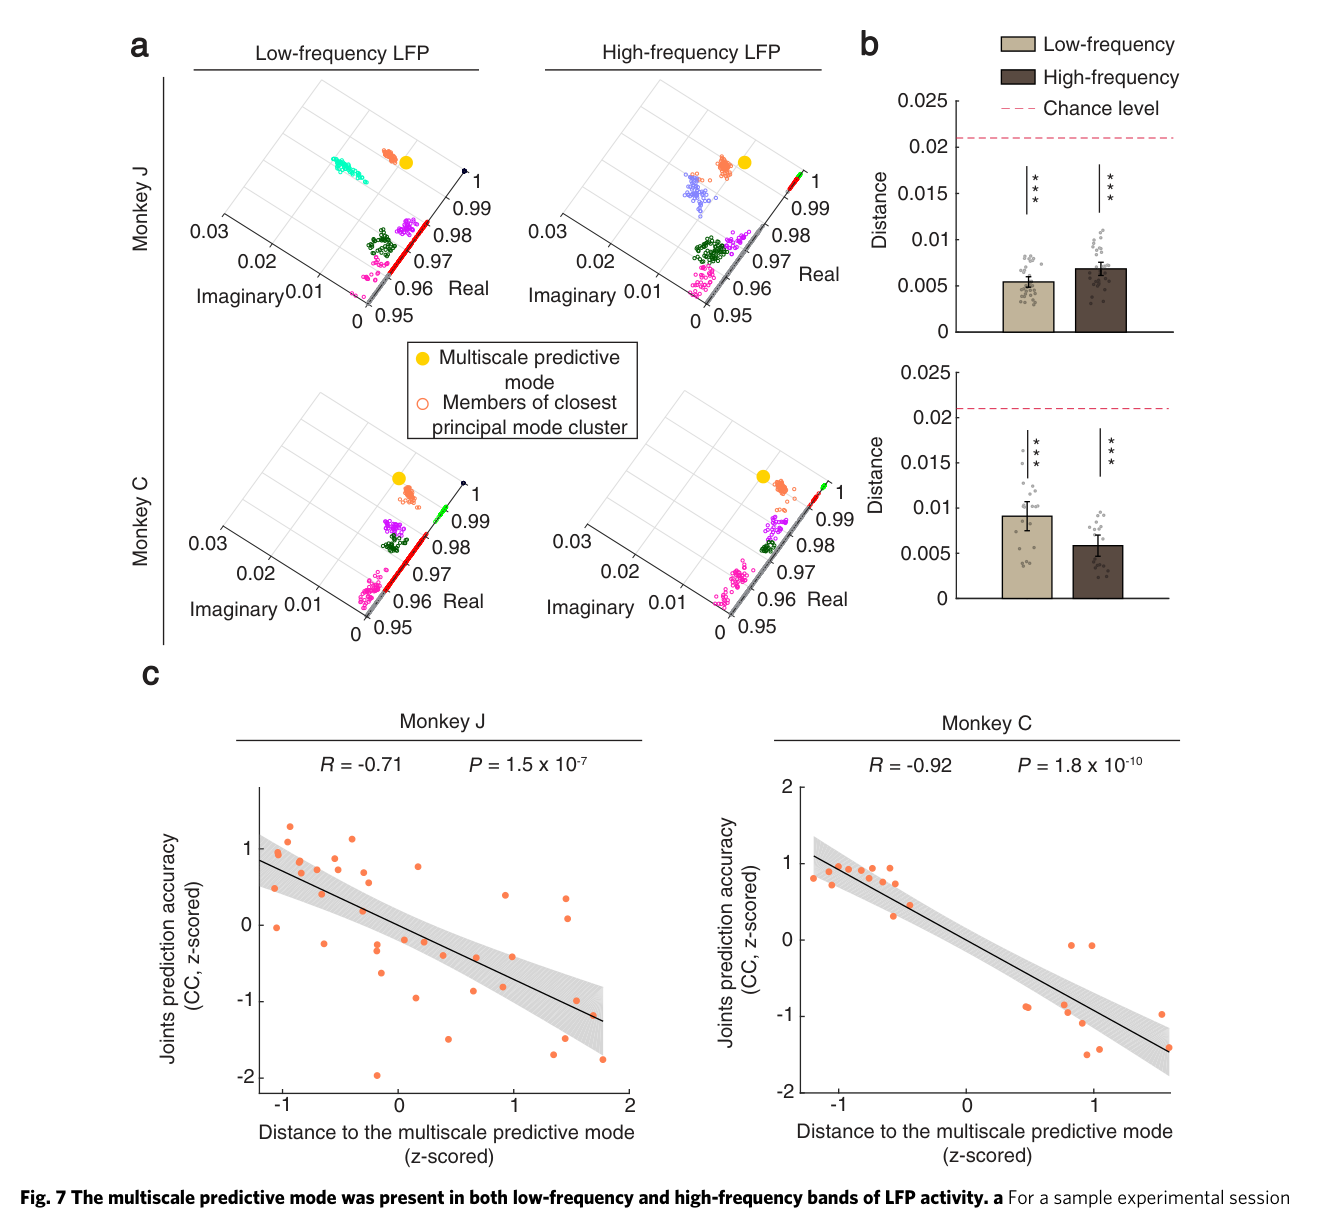
来源:原文 Fig. 7,PDF 第 11 页。
图 7 · predictive mode 在 LFP 的低频段和高频段都在。 (a) 分别对低频(theta+alpha+beta,左)和高频(gamma,右)LFP 做模态分析,黄圈是以 spiking 的 predictive mode 为 ground truth 的位置,橙色为最靠近它的估计模态簇;(b) 两猴两频段的距离都显著小于 chance;(c) 各种频段组合下,估计模态到 predictive mode 的距离与行为预测精度显著负相关(R=−0.92 / −0.71)。这张图专门堵一个漏洞:既然 gamma 段 LFP 可能混有 spike 成分,那"多尺度共享"会不会只是 spike 换了个马甲?低频段也有相近模态,因此仅用高频spike污染难以解释结果,控制分析里把高低频边界拉开 11 Hz 结论也不变。
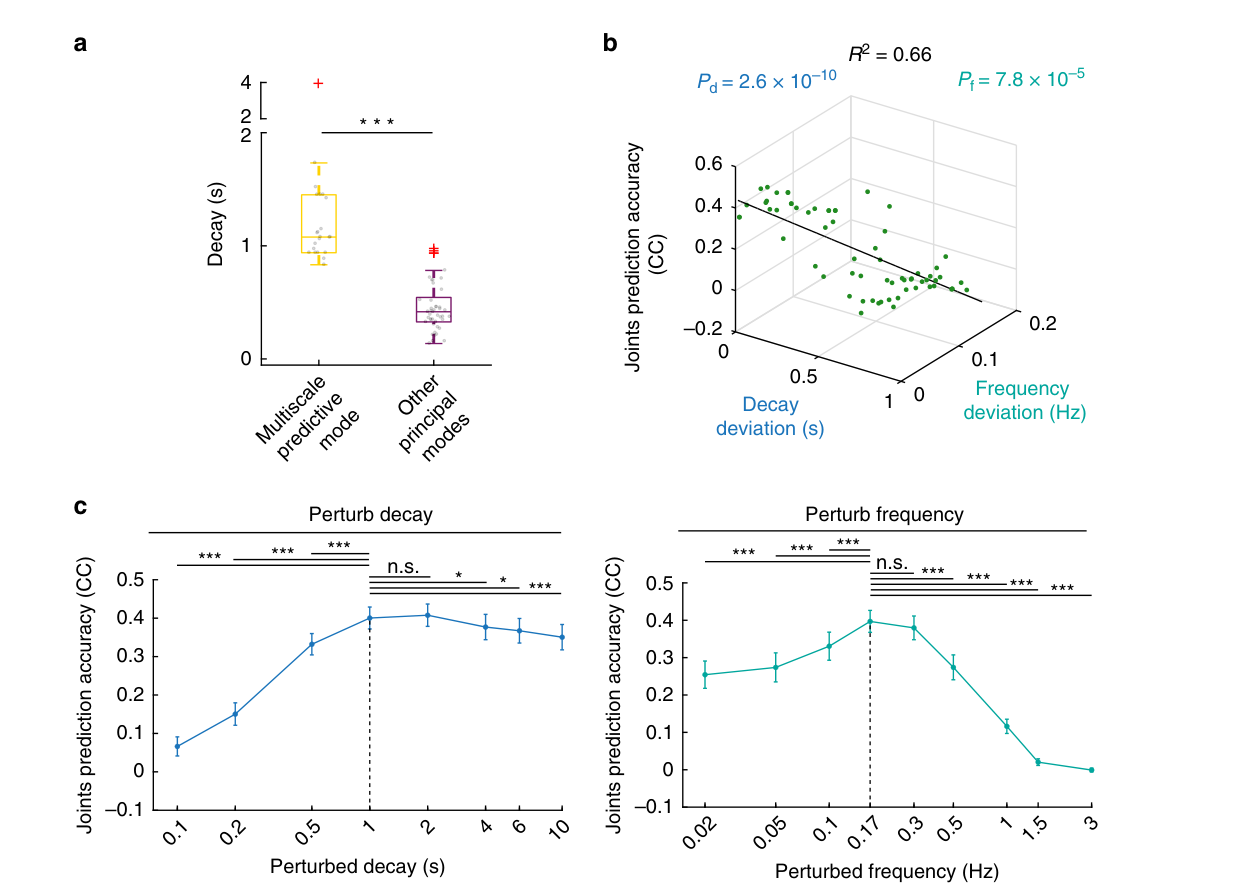
来源:原文 Fig. 8,PDF 第 12 页。
图 8 · decay 与 frequency 都对行为预测起作用。 (a) predictive mode 的 decay 显著大于其他复数共轭模态,即其他模态都是更瞬态的成分;(b) 多变量线性回归把每个模态的预测精度写成它到 predictive mode 的 decay 偏差和 frequency 偏差的函数,两个系数都显著为负(P_d = 2.6×10⁻¹⁰,P_f = 7.8×10⁻⁵,R² = 0.66);(c) 扰动分析:单独把 predictive mode 的 decay 从 0.1 扫到 10 s、frequency 从 0.02 扫到 3 Hz 再重学其余参数,预测精度在真实值附近(decay 约 1–2 s、frequency 约 0.17–0.3 Hz)达到峰值,且把 decay 缩小 10 倍的破坏远大于放大 10 倍。这是全文最接近"干预"的实验:秒级时间常数和约 0.2 Hz 的缓慢旋转不是拟合偶然,而是功能上有讲究的参数。
讨论与解读边界
跨尺度、跨频段和随机通道组合的结果支持这一预测成分具有可重复性。非重叠电极池与低频LFP分析降低了同电极尖峰污染这一简单解释,但不能排除全部共同输入或信号相关来源。本文行为较自然,同时仍发生于头固定、限定工作区和实验者持物条件。
衰减时间和频率扰动是在拟合模型中进行的敏感性分析,没有干预脑内振荡。它说明参数对这个模型的预测能力重要,不证明该时间常数是自然行为的生物学必要条件。跨尺度本征值接近也不意味着两类信号记录的是完全相同的神经生成过程。
思考问题
- 若改变动作节律、工作区或物体操作要求,优势模态的时间常数会如何变化?
- 将感觉输入和实验者移动物体的轨迹纳入模型后,跨尺度共享模态仍能独立预测行为吗?