D04 · Neural population dynamics in motor cortex are different for reach and grasp
Suresh, A.K., Goodman, J.M., Okorokova, E.V., Kaufman, M., Hatsopoulos, N.G., & Bensmaia, S.J. (2020). eLife, 9, e58848. doi:10.7554/eLife.58848
在本文抓握任务中,M1 的低维旋转和线性自主动力学特征弱于伸手;LFADS 对抓握解码的改善也较小。结果限制了从伸手推广自主模式生成框架的范围。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
伸手研究中的旋转群体轨迹和低维自主动力学,为理解运动皮层提供了有吸引力的框架。但伸手主要涉及肩肘和较大尺度的空间轨迹,抓握则要求手指预成形、众多关节协调以及物体相关的感觉输入。若把伸手中的机制直接推广到抓握,就默认两类行为共享相近的动力学组织,而这一假设需要实验检验,不能仅因单神经元在两种任务中都有复杂调制就接受。
检验行为边界需要多种分析互补。jPCA 可检查是否存在相似的旋转成分,一般线性模型可放宽旋转约束,LFADS 则允许更复杂的高维或非线性潜在结构。若这些模型对抓握的帮助都较小,说明伸手中的描述不能无条件移植,但模型未检出结构并不等于动力学绝对不存在。tangling 还可以不依赖具体方程,比较相近神经状态是否具有相容导数,从而判断群体轨迹更像被输入推动,还是更像自主模式生成。任务来源、动物和记录配置的差异也必须纳入解释。
Suresh 等在尽量减少肩肘运动的抓握任务中应用这些分析,并与既有伸手数据比较。研究希望回答:抓握是否也呈现强烈的低维旋转和自主动力学,LFADS 是否能像伸手中那样显著改善运动学解码,以及 M1 与体感皮层在轨迹缠绕程度上是否相似。结果整体削弱了把伸手框架普遍化的预期,同时保留了输入驱动和其他模型的可能。它针对的是接触前、近端手臂受限的抓握,不等同于自然连续伸手—抓握,也不能单独证明某一类皮层回路存在或不存在。
研究思路
抓握时物体移向手部,尽量减少肩肘运动;研究以jPCA、一般线性模型、LFADS及tangling分析M1,并比较伸手和体感皮层记录。不同任务的数据来源与动物并不完全匹配,模型未检出某类结构也不等于不存在动力学。
方法
抓握任务两只猴(Dataset 1、2),半慢性可调深度的 SC96 阵列同时覆盖 M1 和 SCx,6 和 9 个 session 的顺序记录:M1 各 58、53 个单元,SCx 各 26、28 个单元,用于 jPCA 和 tangling;另有单 session 同步 M1 群体记录(Dataset 3:猴 3,44 个单元,Utah 阵列加浮动微电极阵列;Dataset 4:猴 1 隔三年换阵列再记,37 个单元),用于解码。任务含 25 个物体(算上不同朝向共 35 种呈现),每 session 每物呈现 8–11 次;14 摄像头 VICON(100 Hz)加 OpenSim 肌骨模型重建腕指约 30 个关节自由度。伸手数据来自另两只猴的旧数据(Dataset 5、6:各 76、107 个单元,KINARM 外骨骼,单 session)。jPCA 沿 Churchland 2012 流程(归一化、减跨条件均值、PCA),维度取 10(原版 6 维,此处为兼顾更高维的 grasp 数据折中);伸手对齐运动开始、抓握对齐最大张指时刻,分析窗约 700 ms;35 个物体按接触前 10 ms 的手姿态用 Ward 法聚成 8 簇,以匹配伸手的 8 个条件(中位簇含 4 个物体)。LFADS 固定 30 个 factors、2 个 continuous controllers;解码用 Kalman 滤波(最优延迟 150 ms,10 折交叉验证)。tangling 在 20 维(grasp)或 6 维(reach)状态空间计算,窗口为对齐事件前 200 ms 到后 100 ms。
主要结果
jPCA 分析首先复现了伸手任务的结果:单神经元响应各异(图1A),群体状态在前两维 jPCA 平面上展开为规则的椭圆旋转轨迹(图1C)。在抓握任务中,单神经元同样表现出显著的条件特异性调制(图1B),但群体层面并未观察到旋转轨迹(图1D):旋转动力学对 dx/dt 的方差解释率(FVE)在 reach 与 grasp 间存在显著差异(t(16) = 19.44,p = 4.67e-13)。放宽旋转对称性约束后,不限旋转的一般线性系统对 grasp 的拟合同样较差(t(16) = 21.37,p = 1.57e-14)——说明拟合差异不仅限于旋转约束,所测试的一般线性自主模型对抓握的拟合普遍不足。作者随后检验了对齐事件、运动时段、峰值放电率(抓握高于伸手)、平滑窗口宽度、群体神经元数量(从 76 个重抽样至 55 个结果不变)以及条件数量等潜在混淆因素。
LFADS 检验了动力学呈现高维或非线性特征的假设。虽然 LFADS 对两类任务的单 trial 放电率重建均有改善,但 reach 的改善幅度显著大于 grasp(t(311) = 7.07,p = 5.11e-12)。在行为解码方面:统一使用 37 个 M1 神经元训练时,Kalman 滤波器基于 LFADS 因子解码伸手终点坐标,R2 从 0.57(高斯平滑放电率)提升至 0.93;而解码抓握的 22 和 29 个关节自由度时,R2 仅从 0.37 提高至 0.46。调整因子数量或引入外部输入参数后,抓握解码性能均未出现对应的大幅改善。这表明在当前模型假设下,抓握运动学解码从该类生成动力学结构中获益相对有限。
轨迹缠绕度(Tangling)分析提供了另一角度的比较。伸手时神经轨迹的 tangling 显著低于手臂运动学(Q 值更低),符合自主动力学模式生成器的特征预期;而在抓握时,M1 神经轨迹的 tangling 与手部运动学相当甚至更高,且与体感皮层 SCx 之间未见显著差异(对数比值上 grasp 的两项比较均与 reach 显著不同,t(2978) = -43 和 -39),表明抓握阶段的 M1 活动呈现更强的外源输入驱动特征。此外,针对数据维度的检验显示:scree 方差谱未现急剧截断,Gine-Ajne 检验不拒绝球面均匀分布假设(p > 0.5),支持神经元作为潜在流形随机投影的观点;逐步剔除高阶主成分后,群体活动对物体的分类与运动学解码仍显著高于机会水平——这说明高阶主成分包含有效行为信号,但在所分析的状态空间内,抓握任务仍未表现出与伸手类似的高拟合度低维自主结构。
逐图解读
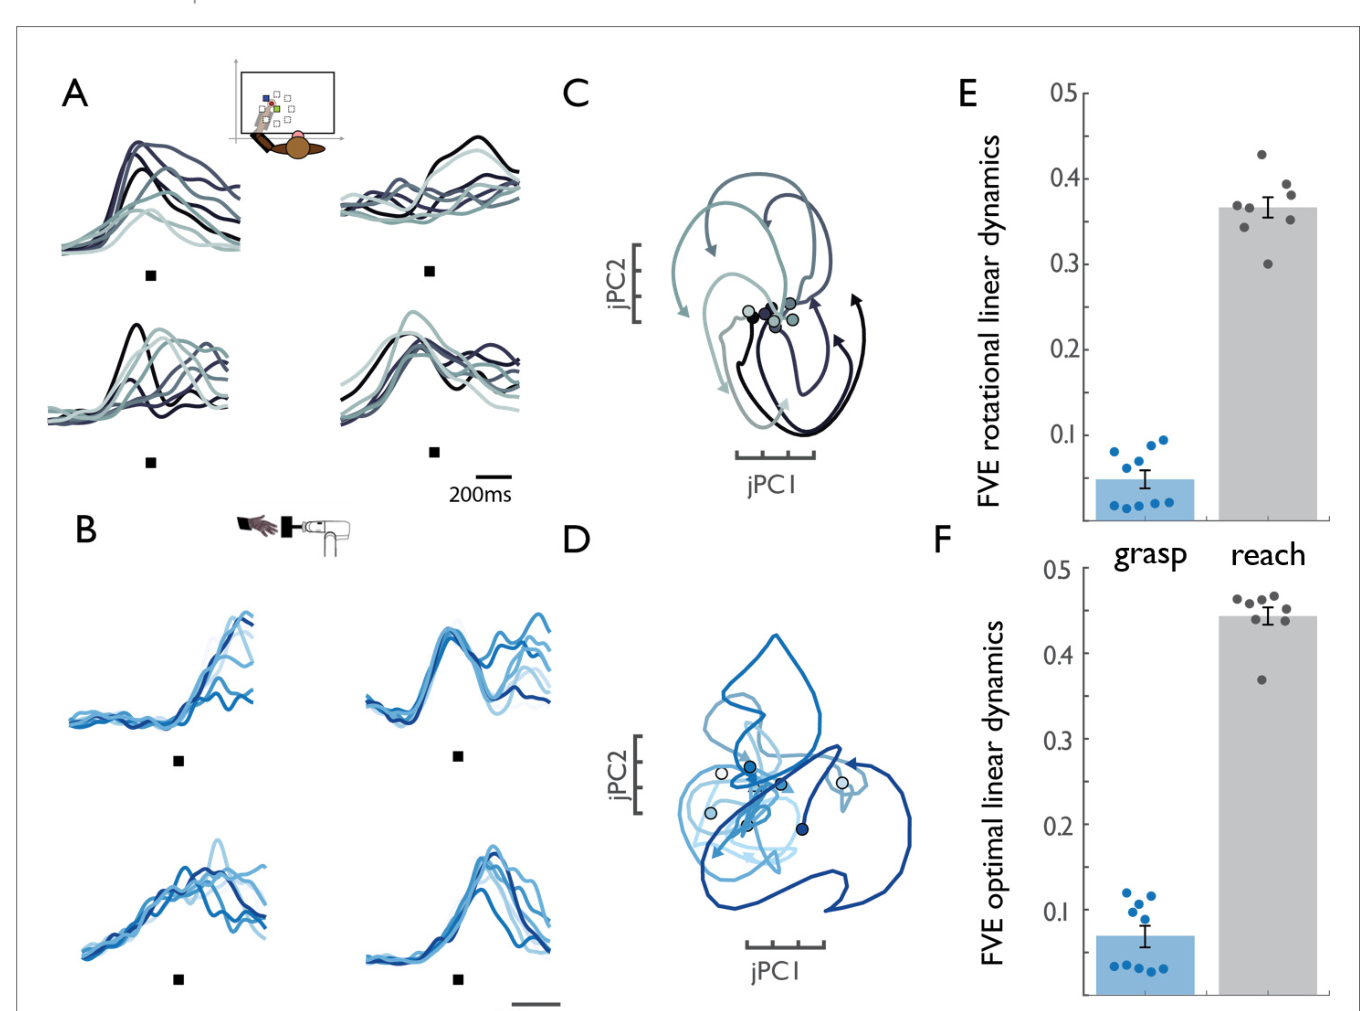
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · jPCA:伸手有旋转,抓握没有。 (A) 伸手任务四个示例神经元(猴 4,Dataset 5),运动开始对齐,八种灰度对应八个方向——熟悉的多相位杂乱响应;(B) 抓握任务四个示例神经元(猴 2,Dataset 2),最大张指时刻对齐,不同深浅的蓝对应物体簇——单神经元层面照样有丰富的条件调制,说明旋转较弱并非缺少可测神经调制;(C) 伸手的群体投影在第一 jPCA 平面上转出干净的轨迹;(D) 抓握的群体投影不成旋转;(E) 旋转系统对 dx/dt 的 FVE:reach 远高于 grasp(t(16) = 19.44,p = 4.67e-13);(F) 不限旋转的线性系统结论相同(t(16) = 21.37,p = 1.57e-14),数据点是跨条件交叉验证的各折、两猴汇总。读这张图先看 (C)(D) 的反差,再用 (E)(F) 确认反差不是错觉——即使把动力学放宽到任意线性系统,grasp 的 FVE 也趴在地上。
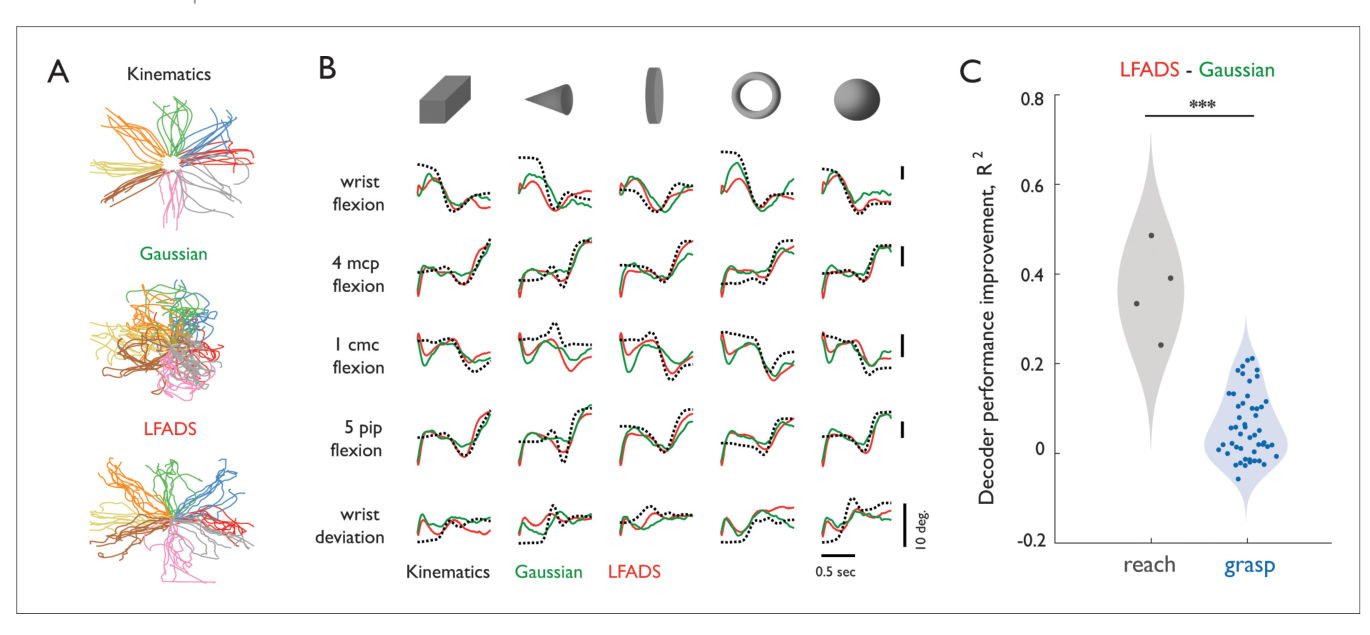
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · LFADS:放开线性和维度约束也救不回 grasp。 (A) 伸手终点坐标:真实(上)、高斯平滑解码(中)、LFADS 解码(下),按八方向着色——两种都能分离条件,LFADS 更平滑可靠;(B) 猴 3 抓五种物体时五个手关节角度(黑色虚线,含第四掌指、第五近端指间、第一腕掌关节的屈伸)的解码:高斯平滑(绿)与 LFADS(红)误差相当;(C) LFADS 相对高斯平滑的解码提升:reach(灰)显著大于 grasp(蓝)(Mann-Whitney,***),reach 是 2 猴 × 2 个自由度,grasp 是 2 猴 × 22/29 个自由度。这张图的论证很巧:LFADS 的收益本身依赖数据里的动力学结构——reach 的 R2 从0.57增至0.93,grasp 从0.37增至0.46;增益差异不能单独判定动力学有无。该LFADS配置的增益有限,仍不能排除其他非线性或输入驱动模型。
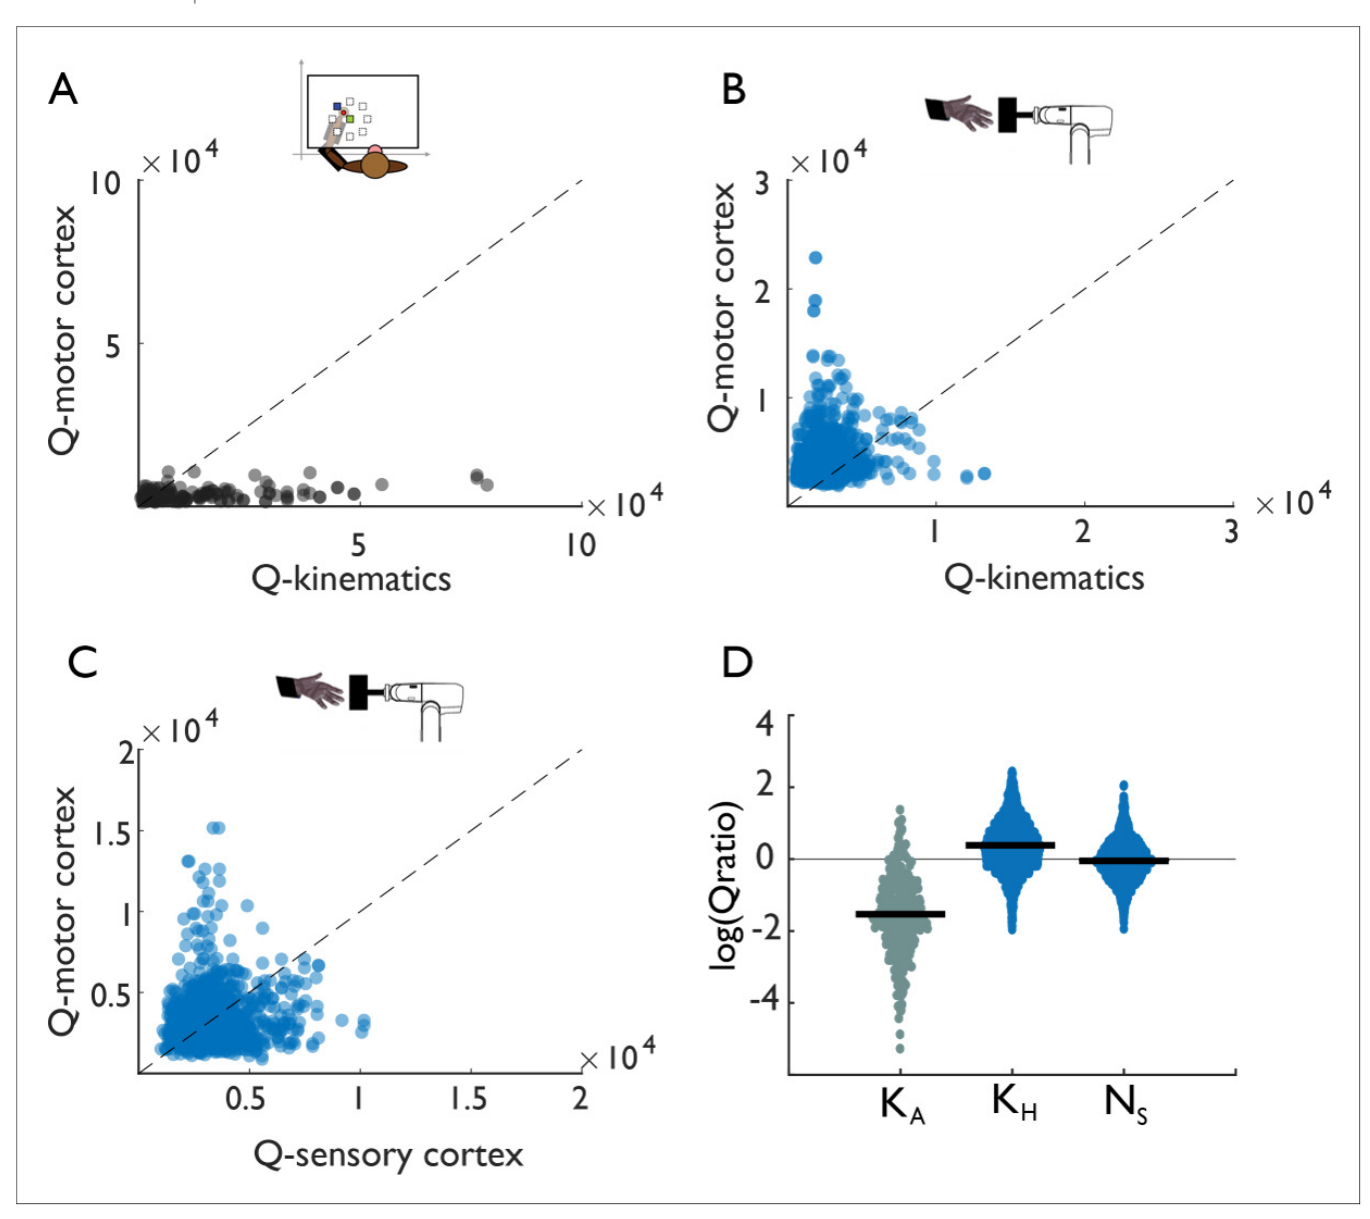
来源:原文 Fig. 3,PDF 第 5 页。
图 3 · Tangling:抓握期间的 M1 更像感觉皮层。 (A) 伸手:每个点是某时刻某条件的神经状态的最大 tangling(Q)对运动学 Q 作图,运动学的 tangling 高于神经——皮层轨迹比输出"顺",pattern generator 的签名;(B) 抓握:反过来,神经的 tangling 与手运动学相当甚至更高;(C) 抓握期间 M1 与 SCx 的 tangling 没有差别;(D) 三个对数比值汇总(运动/伸手运动学、运动/抓握运动学、运动/SCx),grasp 的两个比值都显著低于 reach(t(2978) = -43 和 -39,p 均极小)。抓握示例使用猴1 Dataset 1;A为另一组伸手记录,D 汇总两猴。这张图使用了不同于 jPCA 的局部导数一致性指标:它不拟合任何方程,只问"相近的状态是否有一致的导数",结论却与图 1、图 2 同向。
讨论与解读边界
jPCA、一般线性拟合、LFADS 和 tangling 从不同方面比较了伸手与抓握,整体上支持两类任务的群体结构存在差异。抓握分析集中在接触前、近端手臂受限制的条件;它与自然的连续伸手—抓握不是同一行为范式。
模型拟合差不能证明动力学不存在,LFADS 收益较小也无法穷尽非线性、时变和输入驱动的可能。伸手与抓握来自不同动物及记录配置,控制分析降低了部分混淆,但不构成完全匹配的任务因果比较。与体感皮层相似的 tangling 支持输入影响较强的解释,尚未直接辨认或操纵这些输入。
原文图 3 图注将 A–C 一并标为 Monkey 1、Dataset 1,但 A 面板展示伸手,Dataset 1 在方法中被列为抓握数据。这里保留任务层面的比较,具体面板与数据集编号的对应仍需向作者核实。
思考问题
- 在同一动物、同一阵列上比较伸手、独立抓握和连续伸手抓握,差异是否保留?
- 显式加入视觉及本体感觉输入的动力学模型,能否更好地预测抓握单试次活动?