D01 · Neural population dynamics during reaching
Churchland, M.M., Cunningham, J.P., Kaufman, M.T., Foster, J.D., Nuyujukian, P., Ryu, S.I., & Shenoy, K.V. (2012). Nature, 487, 51–56. doi:10.1038/nature11129
伸手期间的运动皮层群体活动具有短暂而一致的旋转成分。jPCA 揭示了单细胞复杂响应背后的群体结构,简单动力学模型能复现其中若干特征并拟合肌电。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
运动皮层单神经元在伸手中的响应常常很复杂:有的先升后降,有的出现多个峰,有的准备期与运动期偏好方向完全不同。若逐个细胞寻找固定的方向或速度调谐,很难用一套简洁规则解释这些现象。另一种思路是考察群体状态随时间如何演化:许多神经元是否共同参与一个较简单的动力过程,使单细胞复杂性成为不同神经元对该过程的不同投影?这一问题把研究重点从“每个细胞编码什么”转向“群体活动怎样产生运动相关时程”。
节律运动中的旋转和振荡较容易理解,因为循环动作本身具有周期性;非周期性伸手只有明确起点和终点,是否存在类似结构并不显然。若旋转只反映外部轨迹,反向或弯曲伸手应当呈现不同的旋转方向;若它反映共享的内部动力学,不同条件可能以不同初始状态进入相似的旋转过程。要区分这些解释,需要比较真实神经群体、运动学模型和肌电,而不能只凭某张低维投影中出现圆形就宣布发现了振荡器。
Churchland 等据此用 jPCA 分析延迟伸手中的群体活动,寻找斜对称动力学较强的平面,并与速度调谐、复杂运动学模型、真实 EMG 和简单生成模型比较。研究希望回答:非周期伸手中是否存在可重复的旋转成分,准备状态如何决定其相位,以及这种结构能否解释复杂单元响应和部分肌肉时序。快慢伸手的角速度比较还用于区分固定时间结构与按运动速度缩放的轨迹表征。结果为群体动力学提供了有力描述,但 jPCA 旋转本身不能证明皮层自主振荡,也不能排除感觉输入、反馈或其他模型的贡献。
研究思路
作者以降维和jPCA分析运动期群体轨迹,并与肌电及若干调谐模型对照。旋转成分对响应与肌肉信号的重建,用于评估这一描述的解释力,不能单独证明皮层是不依赖输入的自主振荡器。
方法
四只恒河猴(A、B、J、N),延迟伸手范式(instructed delay,运动前有准备期),直线伸手(A、B)或绕障弯曲伸手(J、N)。核心数据是 9 个 data set:7 个用传统单电极记录(共 469 个单神经元隔离),2 个用双 96 通道阵列(146 和 218 个隔离),外加猴子在跑步机上自由行走时的 32 通道无线记录、以及每个 data set 6–12 条 EMG(三角肌、肱二头肌等 6 组肌肉)。平均每个神经元 810 个 trial——这个 trial 数是后面能看到精细时间结构的关键。
分析上的核心发明是 jPCA:先对群体活动做 PCA 降维(保守地只取前 6 个 PC),再在这 6 维空间里拟合一个斜对称矩阵 M_skew(ẋ = M_skew·x),取其最大本征值对应的一对本征向量张成的平面(jPC1/jPC2)投影。直观说,就是在最强的主要成分里找出"旋转最猛"的那个平面。并与多个 shuffle 对照比较。单神经元放电率在分 epoch(target/go/move)对齐后做跨 trial 平均,高斯平滑去噪。
主要结果
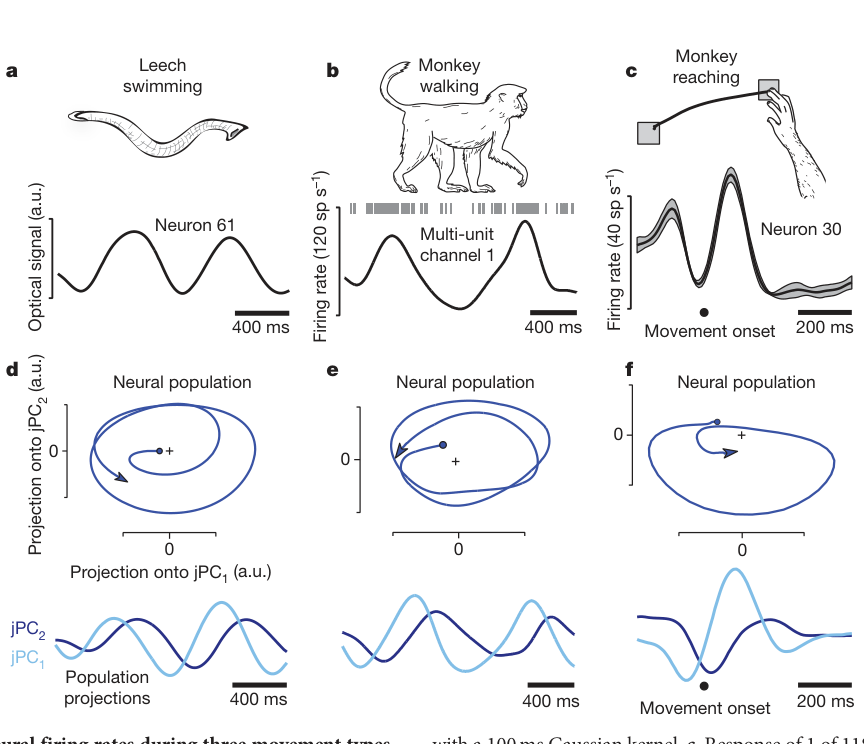
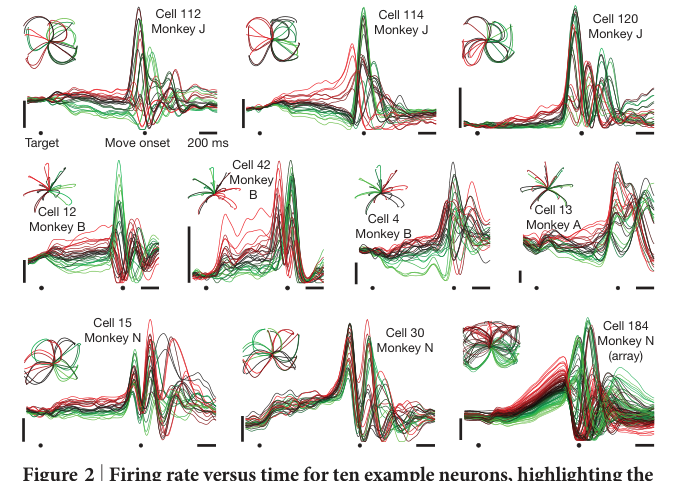
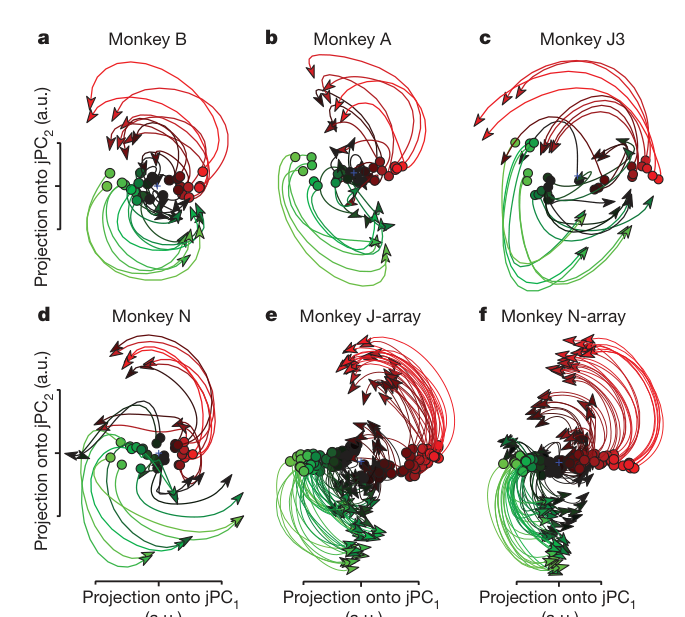
单神经元层面还是那副熟悉的乱象(图2),但群体层面出现了非常干净的旋转:在运动相关分析窗口内,神经状态在 jPC 平面上呈现一致方向的短暂旋转;图3主要展示最初200 ms,不能将完整响应的周期数直接套入这一窗口,而且旋转的相位由准备期状态直接决定——不同条件的轨迹从不同的初始点(圆圈标记)出发,转出平行的圈。这个结构在 M1 和 PMd 中独立存在,单是第一个 jPC 平面就平均解释 28% 的总方差(作为参照,PC2+PC3 也才 29%),加上其他旋转平面可达 50–70%——旋转是群体响应的主导结构,不是边角料。
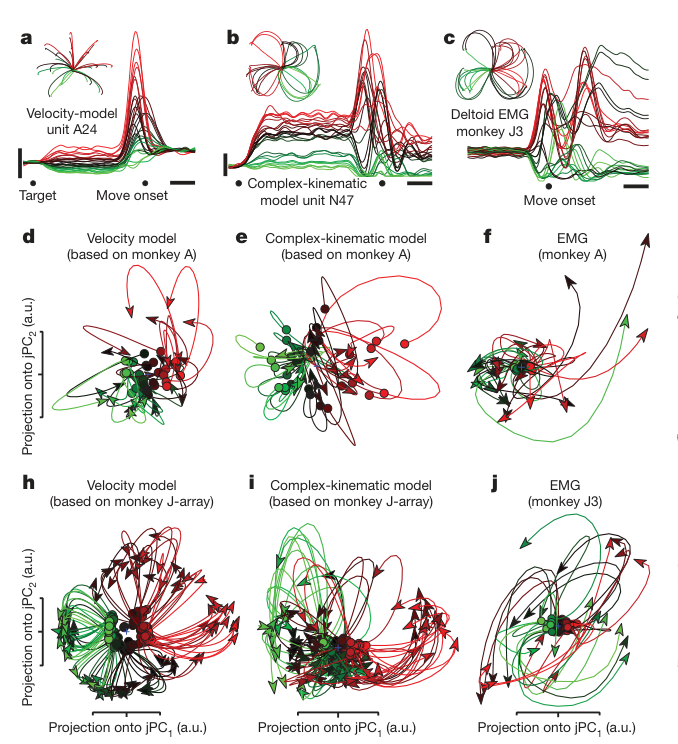
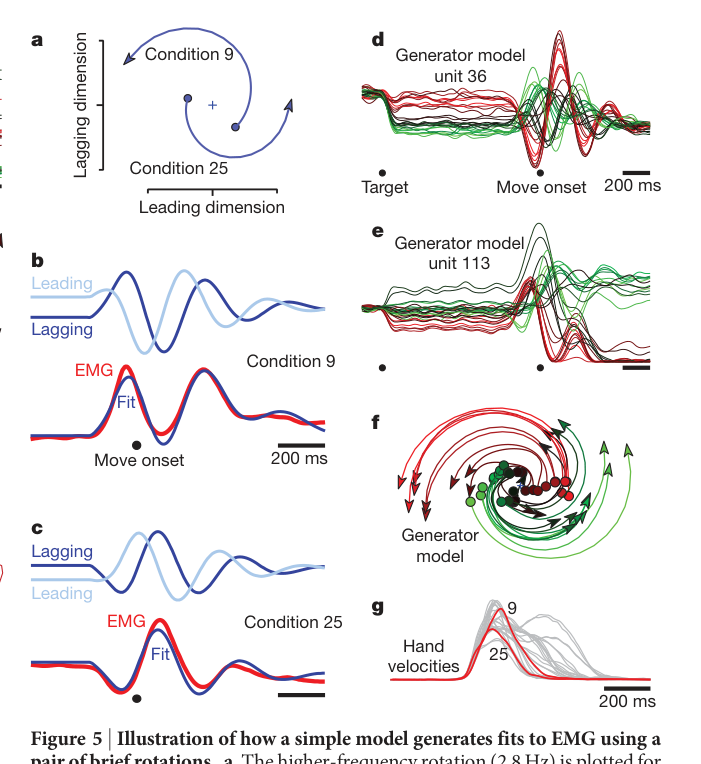
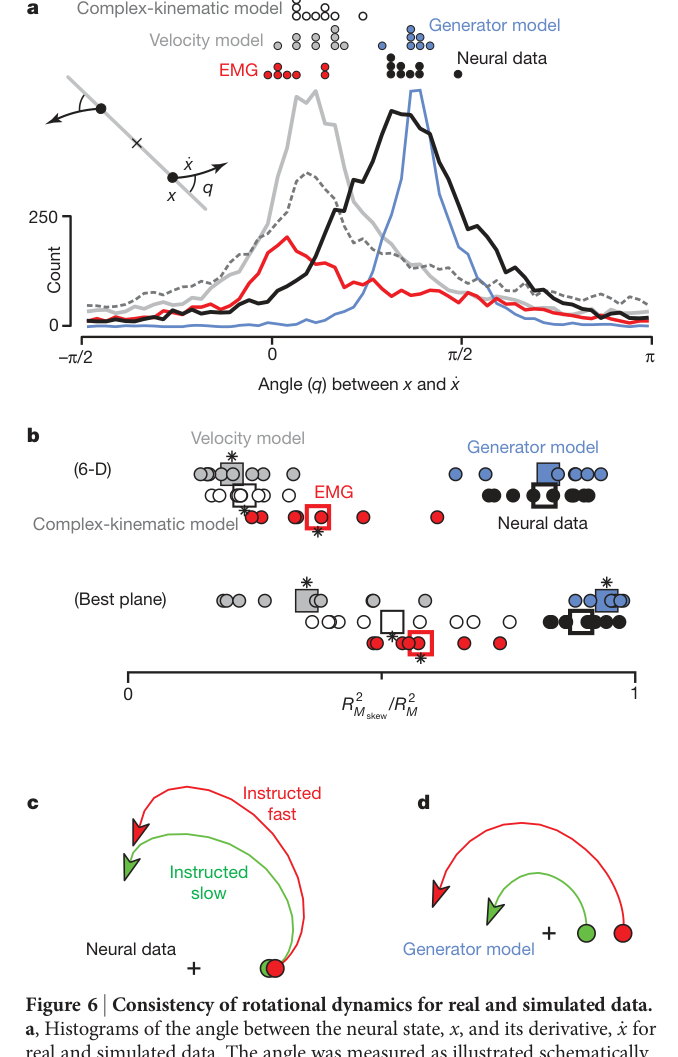
两类对照与一个生成模型共同约束解释:速度调谐模型和复杂运动学模型都能产生多相位响应,但都没有一致旋转;真实 EMG 群体同样没有。而"generator model"(两个固定频率的旋转,2.8 Hz + 0.3 Hz,相位幅度由初始状态决定)不仅能以 0.97–0.99 的相关拟合三角肌 EMG,其模拟神经元也复现了真实神经元那些"怪癖"(preferred direction 翻转、准备期与运动期调谐几乎不相关)。值得关注的预测——快速和慢速伸手的旋转角速度相同、只有幅度不同——也被数据证实(快慢条件分开拟合时 M_skew 最大本征值甚至略小,8.8 vs 9.8 rad/s)。这支持以群体动力学描述运动相关活动,但旋转结构本身不能区分自主动力学、外部输入或反馈的贡献。
逐图解读
来源:原文 Fig. 1,PDF 第 2 页。
图 1 · 三种运动类型中的振荡与群体旋转。 该图比较了不同运动形式下的群体动力学特征,左列为单神经元/局部场电位,右列为对应的 jPCA 低维投影。(a, d) 水蛭游泳(164 个电压敏感染料记录神经元):呈现 ~1.5 Hz 的放电振荡与圆环形群体轨迹;(b, e) 猕猴跑步机行走(PMd 32 通道无线记录):~1 Hz 的放电振荡与手臂步态节律一致,群体状态同样表现出旋转;(c, f) 为非周期性伸手运动:单个 M1 神经元在运动开始后表现出短暂振荡,群体轨迹在前 200 ms 内完成约 1–1.5 周期的旋转。该图展示了从已知节律运动向离散伸手的跨任务比较。
来源:原文 Fig. 2,PDF 第 2 页。
图 2 · 十个示例神经元的多相位响应。 图中展示十个示例神经元;中排左侧并列展示 Cell 12 和 Cell 42。示例来自不同动物和记录方式;曲线展示跨越目标出现、go cue 和运动起始三个阶段的平均放电率。单神经元响应形态呈现出高度多样性,包括先兴奋后抑制、双峰响应,以及准备期活跃而在运动期静息等模式。右上角小图是各自的伸手轨迹。轨迹颜色按准备期响应强度从红到绿排序,方便追踪"准备期调谐好的条件在运动期发生了什么",可见准备期与运动期的条件排序并不简单保持不变。这些复杂的单元响应为进一步考察群体共同结构提供了动机。
来源:原文 Fig. 3,PDF 第 3 页。
图 3 · 核心结果:六组数据的 jPC 平面投影。 六个面板对应六个 data set(B、A、J3、N、J-array、N-array),每条轨迹是一个条件(27–108 个),从圆圈标记的准备期状态出发,展示运动开始后 200 ms 的演化。四件事可以看出:(1) 旋转无处不在;(2) 所有条件转向相同——包括方向完全相反的伸手(J、N 的直线+顺时针弯+逆时针弯混合条件);(3) 起点分布(相位)由准备状态决定,知道初始状态就能大致预测后续轨迹;(4) 旋转与运动轨迹曲率无关。第 (2) 点最关键:如果皮层只是在"表征"运动学,反向运动的群体轨迹没有理由同向旋转——同向旋转支持共享的动力学结构,但不能据此排除外部输入或全部编码模型。
来源:原文 Fig. 4,PDF 第 4 页。
图 4 · 对照:模拟群体与肌肉群体都没有旋转。 三列分别是速度调谐模型(上排 a 示例单元,d、h 投影)、复杂运动学模型(b、e、i)、真实 EMG 群体(c 三角肌示例,f、j 投影)。每个模拟都基于真实记录的运动学/EMG 生成,神经元数、trial 数、噪声水平全部对齐,所以"没有旋转"不是因为数据质量差。注意多相位响应三者都有(这正是单神经元响应复杂性的来源),但相位相差恒定 90° 的"成对模式"只有真实神经群体才有。这一图堵住了"多相位响应自然导致旋转"的漏洞。
来源:原文 Fig. 5,PDF 第 4 页。
图 5 · 生成模型:简谐旋转成分重构肌电与复杂的单神经元响应。 (a) J3 数据集拟合三角肌 EMG 的高频旋转(2.8 Hz),条件 9 和 25 从不同初始状态出发、相位差约 180°;(b, c) leading/lagging 两个维度的时间过程(蓝线),lagging 维度直接叠加出 EMG 拟合(低频 0.3 Hz 旋转补齐慢成分)。(d, e) 从模型状态空间随机线性加权得到的模拟神经元响应,复现了图 2 中单细胞的多峰调制与偏好方向随时间翻转的现象;(f) 对模拟群体重新进行 jPCA 分析,准确恢复出 (a) 中的旋转动力学结构;(g) 在 27 个不同运动学条件下,手部速度曲线在持续时间和峰值速度上差异显著,但均可由固定频率的旋转成分拟合。该图表明准周期旋转动力学能够作为基底生成复杂的皮层响应与肌肉控制时序。
来源:原文 Fig. 6,PDF 第 5 页。
图 6 · 定量汇总:旋转强度与速度实验。 (a) 群体状态 x 与其导数 ẋ 的夹角直方图(schematic 见插图):纯旋转对应 π/2。神经数据(蓝)和 generator model 在 π/2 处尖锐成峰;速度模型、复杂运动学模型、EMG 都在 0 附近——即纯粹的增长/衰减。(b) M_skew 相对于无约束矩阵 M 的拟合质量(6 维和平面各一行):只有神经数据与 generator model 的斜对称拟合几乎不吃亏(RM²/RT² 接近 1),星号标出与神经数据显著差异的对照。(c, d) 快/慢伸手指令下的平均轨迹(真实数据 c,模型 d):两组旋转角速度几乎相同,幅度不同。这不符合简单按运动速度缩放神经时间过程的预测,却正是动力系统的签名:同一个系统,不同的初始能量。
讨论与解读边界
论文的主要证据是条件平均群体活动的结构,以及它与所检验运动学模型、肌电和生成模型的比较。jPCA 寻找斜对称动力学解释较好的投影;在多个数据集和对照中出现一致结构,使旋转值得解释,但投影本身不是神经回路机制的直接测量。
旋转不能单独证明皮层是自主振荡器,也不能排除输入、反馈或更丰富的编码模型。生成模型说明一种实现具有解释能力,不是唯一机制或必要性检验。200 ms的展示窗与整个响应约1–1.5周期应区分,不能写成200 ms内完成1–1.5圈同时频率约2.5 Hz。
思考问题
- 在控制感觉反馈时延后,旋转的速度、相位和强度是否改变?
- 用单试次而非条件平均活动估计动力学,旋转结构能解释多少行为变异?