C10 · Small, correlated changes in synaptic connectivity may facilitate rapid motor learning
Feulner, B., Perich, M.G., Chowdhury, R.H., Miller, L.E., Gallego, J.A., & Clopath, C. (2022). Nature Communications, 13, 5163. doi:10.1038/s41467-022-32646-w
模块化 RNN 表明,少量且相关的局部权重改变可以支持快速适应,同时使群体协方差大体保持。因此,协方差稳定本身不足以排除局部突触可塑性。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
稳定的群体协方差常被用于支持连接保持不变,但活动统计与连接并非一一对应。本文用网络模型直接检验这一推断是否必然成立。
研究思路
研究训练含上游、PMd和M1模块的RNN,分别限制学习发生在上游或运动皮层内,再比较活动、协方差和权重变化。更大旋转及重新关联任务用于提出可区分模型的实验预测;权重变化数值是模型结果。
方法
实验数据来自 C03 的原始记录再加新session:11 个 30° 旋转 session(猴 C 5 个、猴 M 6 个)、3 个无扰动对照 session(猴 C 1 个、猴 M 2 个),另有只记录 M1 的更大旋转 session(猴 C:30° 九个、45° 两个、60° 两个)。行为为 instructed-delay center-out 伸手(八目标、目标 2 cm 方块、延迟 500–1500 ms),spike 以 10 ms 分箱、50 ms 高斯平滑,只用获奖 trial;早期/晚期适应分别取扰动相的前/后 150 个 trial。两个指标都算在 go cue 前后 ±600 ms 窗口内:活动变化为 |PSTH 晚期 − PSTH 基线| 除以该神经元基线标准差再取中位数;协方差变化为两 epoch 协方差矩阵逐元素的相关系数取 1 减。统计用线性混合模型(脑区与有无扰动为固定效应,猴与 session 为随机效应,P = 0.05)。模型为三个各 400 单元的 tanh 递归模块,upstream 与 PMd 接收相同的三维输入(目标 x、y 加 go 信号),upstream→PMd→M1 全连接前馈,输出从 M1 线性读出,时间常数 50 ms、积分步长 10 ms。初始训练用全部实验 session 基线期拼出的 2238 条 4 秒真实手轨迹(90/10 训练测试划分),PyTorch 加 Adam(学习率 1e-4)、批 80、500 个训练 trial,权重(α = 0.001)与放电率(β = 0.8)正则,梯度范数裁剪 0.2;训练后模型的手轨迹、动力学与两模块的 PCA 群体活动都与对应脑区记录相符(Procrustes 分析确认区特异性)。VR 适应再训练 100 个 trial(旋转后的目标轨迹),重联合任务则打乱刺激与伸手方向的对应关系、同样给 100 个 trial。权重变化幅度 dW 定义为逐元素 |ΔW|/W 的中位数,维度用 ΔW 奇异值的 participation ratio。突触噪声模拟为在学到的 ΔW 上叠加标准差十倍于 ΔW 的随机扰动。所有模拟用 10 次网络初始化。
主要结果
实验端先立好靶子:VR 适应伴随 PMd 与 M1 可测量的活动变化,显著超出无扰动对照 session(t = 4.4,P = 0.0017),且 PMd 的变化大于 M1(t = 8.9,P < 0.0001);协方差变化虽小但同样超出对照(t = 2.6,P = 0.026)。模型端,Hinput 如预期般复现了数据——活动变化幅度相当、PMd 略大于 M1、协方差高度保持。意外在 Hlocal:限定学习只发生在 PMd/M1 内部,网络照样成功适应,协方差的保持程度与 Hinput 几乎没有差别,都落在实验观测范围内。也就是说,"协方差稳定 ⇒ 连接稳定"这条被广泛默认的推理不成立。本文 30° 旋转模拟中区分两个假说的一项稳定差别是活动变化的空间格局:Hlocal 下 M1 模块变得比 PMd 多,而实验数据(PMd > M1)更贴合 Hinput。
机制上,答案藏在权重改变本身:无论学习发生在哪里,成功适应只需要平均 1–2% 的权重变化——远小于初始从随机权重学出伸手任务时的 4–31%——而且这些改变是低维的(ΔW 的 participation ratio 很小),即"小而相关"。低维性带来在这些模拟条件下的稳健性:给学到的权重改变叠加十倍于其标准差的随机噪声后,权重变化的维度暴涨、学到的信号被完全淹没,但手的轨迹误差、模块活动、协方差全都未见明显变化——在本文所设随机噪声条件下,低维学习改变对应的行为较稳健。既然 30° 旋转分不开两个假说,模型接着设计分辨实验:把旋转加大到 60° 和 90°,两种假说仍都能学会,但协方差变化随角度增长的方式不同——Hinput 下 PMd 与 M1 同步增长,Hlocal 下 M1 增长得比 PMd 多;猴 C 的 45°/60° 初步 M1 记录看起来贴合 Hinput 的预测。更极端的"重联合"任务(网络学一套新的 cue-方向随机对应)则把区分做到极致:通过输入重联合实现学习时活动变化巨大、协方差却一丝不变(活动模式本身没换,只是被重新分配给不同目标),而 Hlocal 下两者都变——未来的判别性实验有了明确图纸。
逐图解读
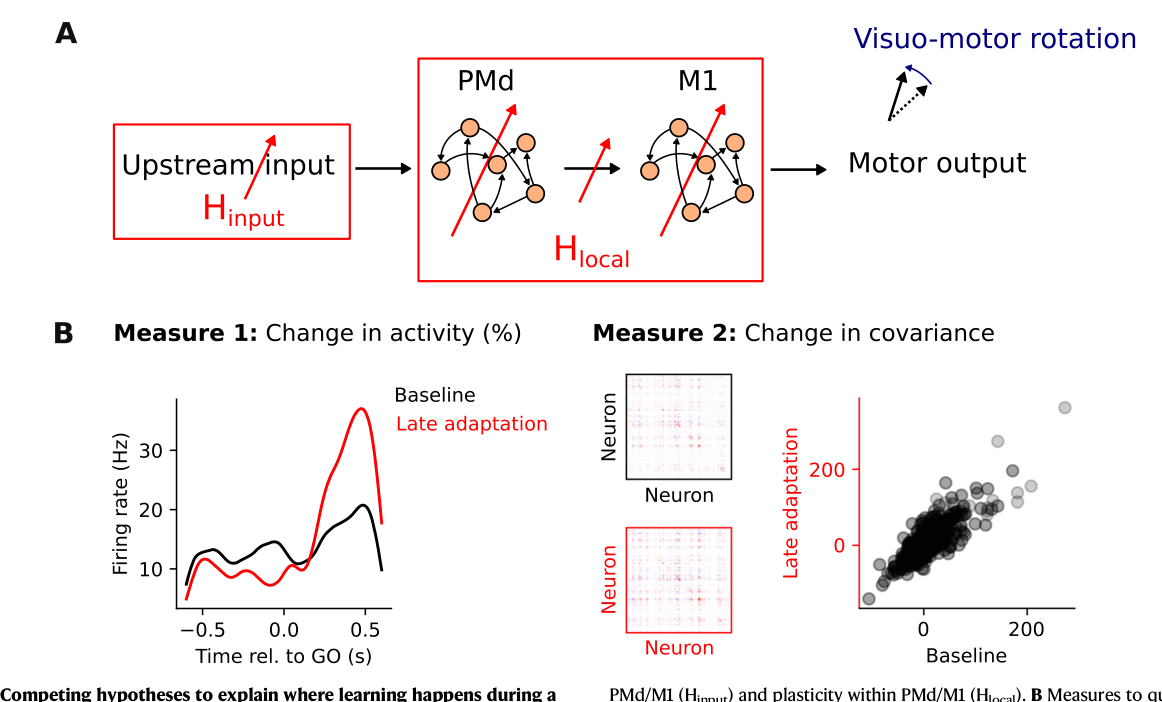
来源:原文 Fig. 1,PDF 第 2 页。
图 1 · 两个假说与两个裁判指标。 (A) 学习要么发生在 PMd/M1 的上游(Hinput),要么发生在 PMd/M1 内部(Hlocal),本文用 modular RNN 同时实现两种情形并与实验对表——注意这张框架图与 C03 图 1 的四假说表同源,这里把 Hplan/Hmap 收起、只留最针锋相对的一对。(B) 两个量化指标:trial 平均活动的相对变化(单神经元层面)与协方差的变化(群体层面),都取基线对晚期适应的比较,示例来自猴 C 的一个代表 session。这张图定义了全文的"裁判规则":模型与数据比的不是能不能学,而是学完之后这两个指标像不像。
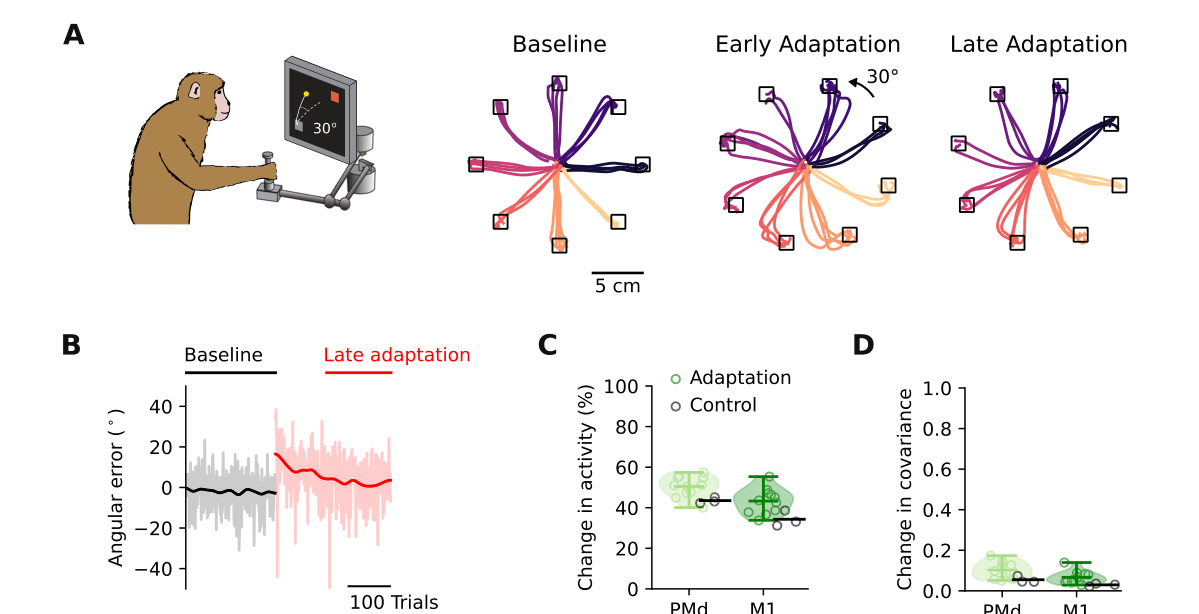
来源:原文 Fig. 2,PDF 第 3 页。
图 2 · 实验数据:小而可测的活动变化。 (A) 猴 C 一个 session 的手轨迹:基线前 30 个 trial、早期适应(前 150 个 trial,轨迹被旋转推弯)、晚期适应(后 150 个 trial,轨迹重新拉直),按目标着色;(B) 起飞角误差的经典适应曲线,CW 与 CCW 趋势一致故可合并分析;(C) 跨 11 个 session 的活动变化(绿点):PMd 与 M1 都显著超出无扰动对照 session(黑点;t = 4.4,P = 0.0017),且 PMd 大于 M1(t = 8.9,P < 0.0001)——这个"PMd > M1"的格局后来成为分辨两个假说的关键指纹;(D) 协方差变化同样小而显著地超出对照(t = 2.6,P = 0.026)。数据端的说服力在于:变化虽小,但不是零,模型必须连这个"小"都复现出来。
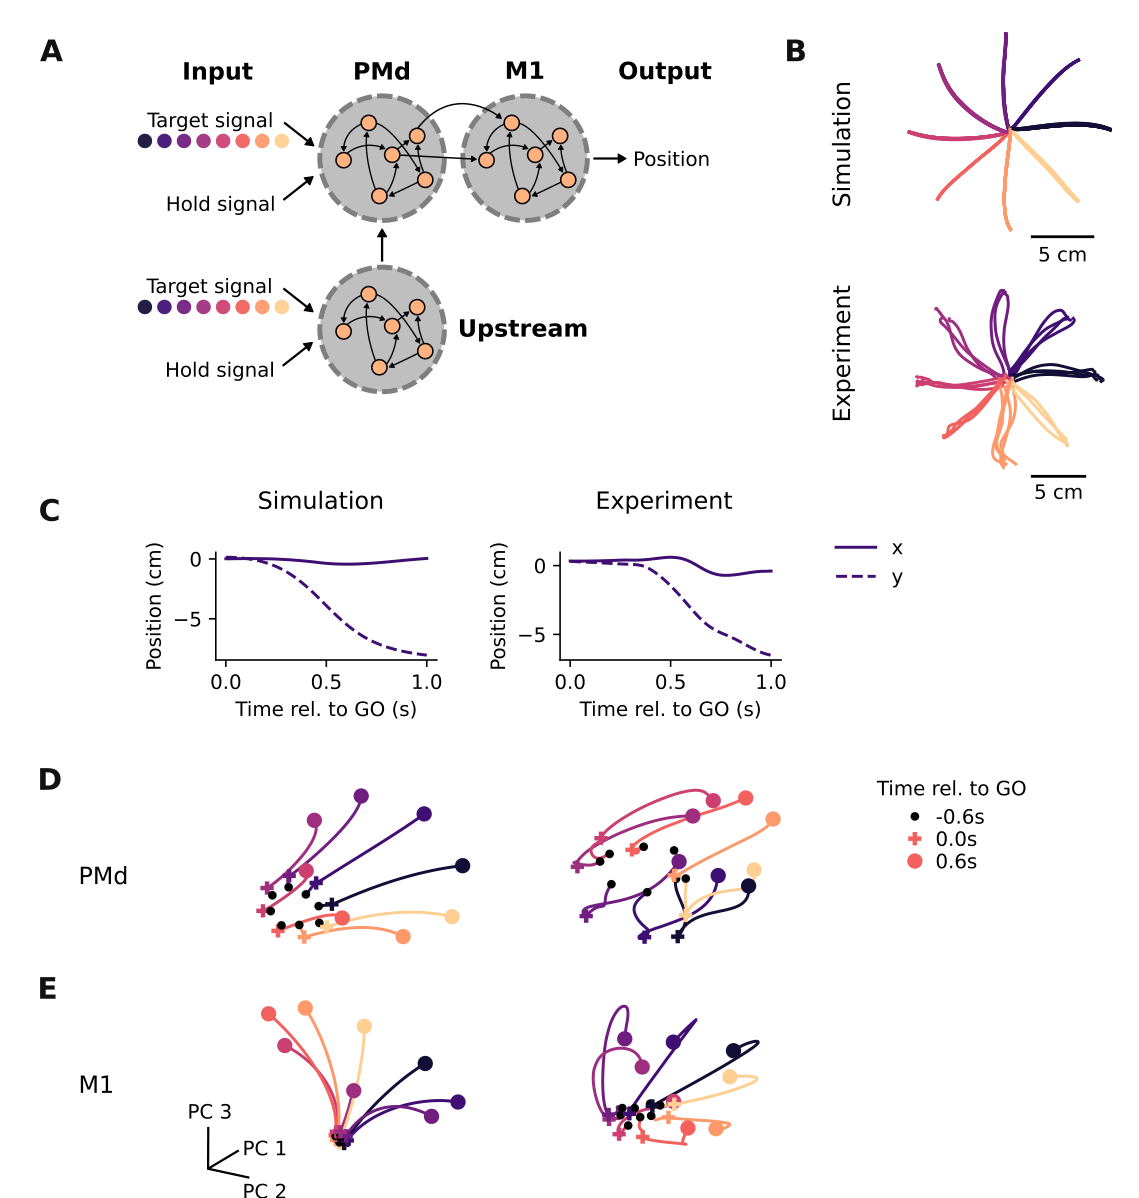
来源:原文 Fig. 3,PDF 第 4 页。
图 3 · 模型的资格证。 (A) 三模块 RNN:upstream 与 PMd 接收相同的目标位置加 go 信号输入,upstream→PMd→M1,输出从 M1 读出;(B) 模拟(上)与真实(下)的手轨迹逐目标对比;(C) 单目标示例轨迹,模型与实验的运动学几乎无差;(D, E) 模拟的 PMd、M1 群体活动(go cue 前 600 ms 到后 600 ms 的神经轨迹)与两区记录各自相符,Procrustes 分析确认 PMd 模块更像 PMd、M1 模块更像 M1。这张图负责回答"你有什么资格用这个模型下结论"——先检验模型能否复现若干关键观测,再解释模型预测及其局限。
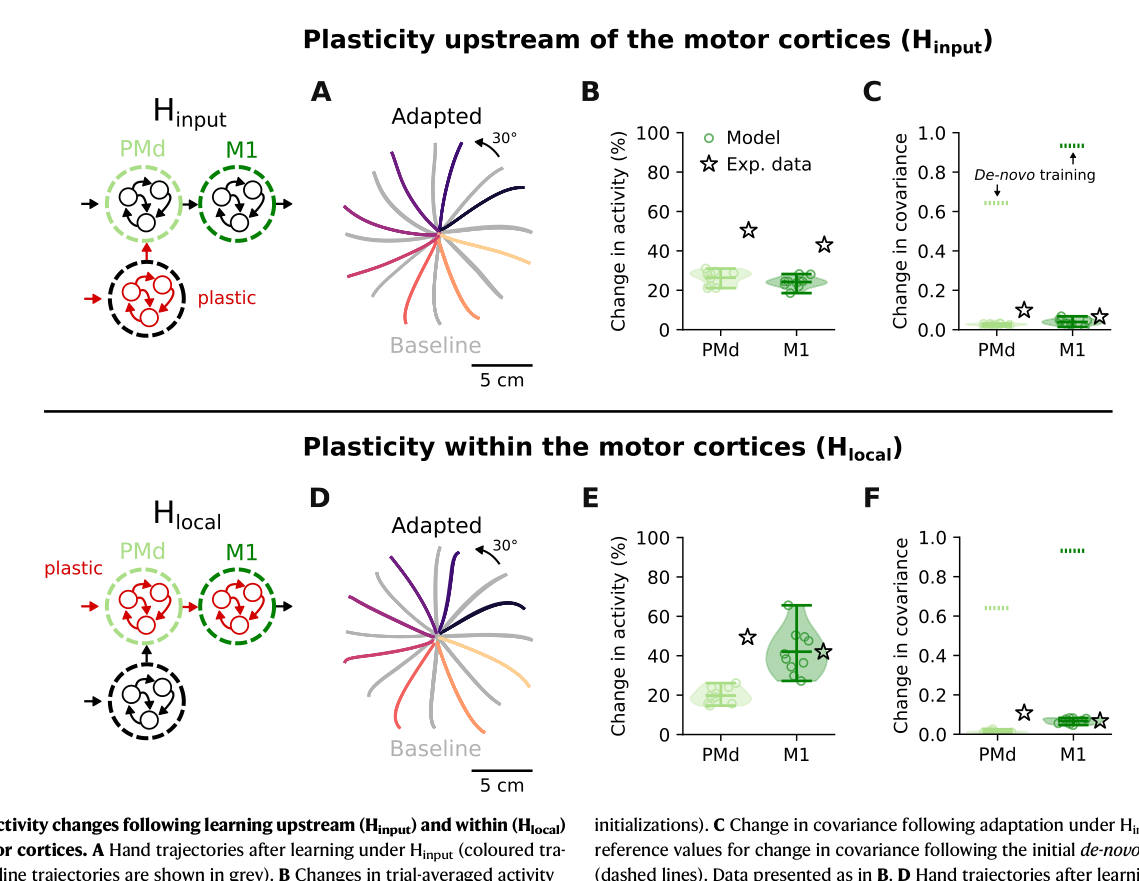
来源:原文 Fig. 4,PDF 第 5 页。
图 4 · 核心意外:Hlocal 也能保住协方差。 (A–C) Hinput:学完后轨迹正确旋转 30°(A),活动变化幅度与实验(黑星)相当、PMd 略大于 M1(B),协方差高度保持、与初始 de-novo 训练的参照(虚线)同量级(C);(D–F) Hlocal:同样学得会(D),活动变化中 M1 反超 PMd(E,与数据相反),但协方差照样几乎保持(F)。这一张图就是标题里"surprisingly"的全部含义——按直觉 Hlocal 应该把协方差搅得天翻地覆,实际上它只需要动一点点。全文的批判性结论(协方差稳定不能反推连接稳定)和建设性线索(PMd/M1 变化格局分辨两假说)都从这组对比里长出来。
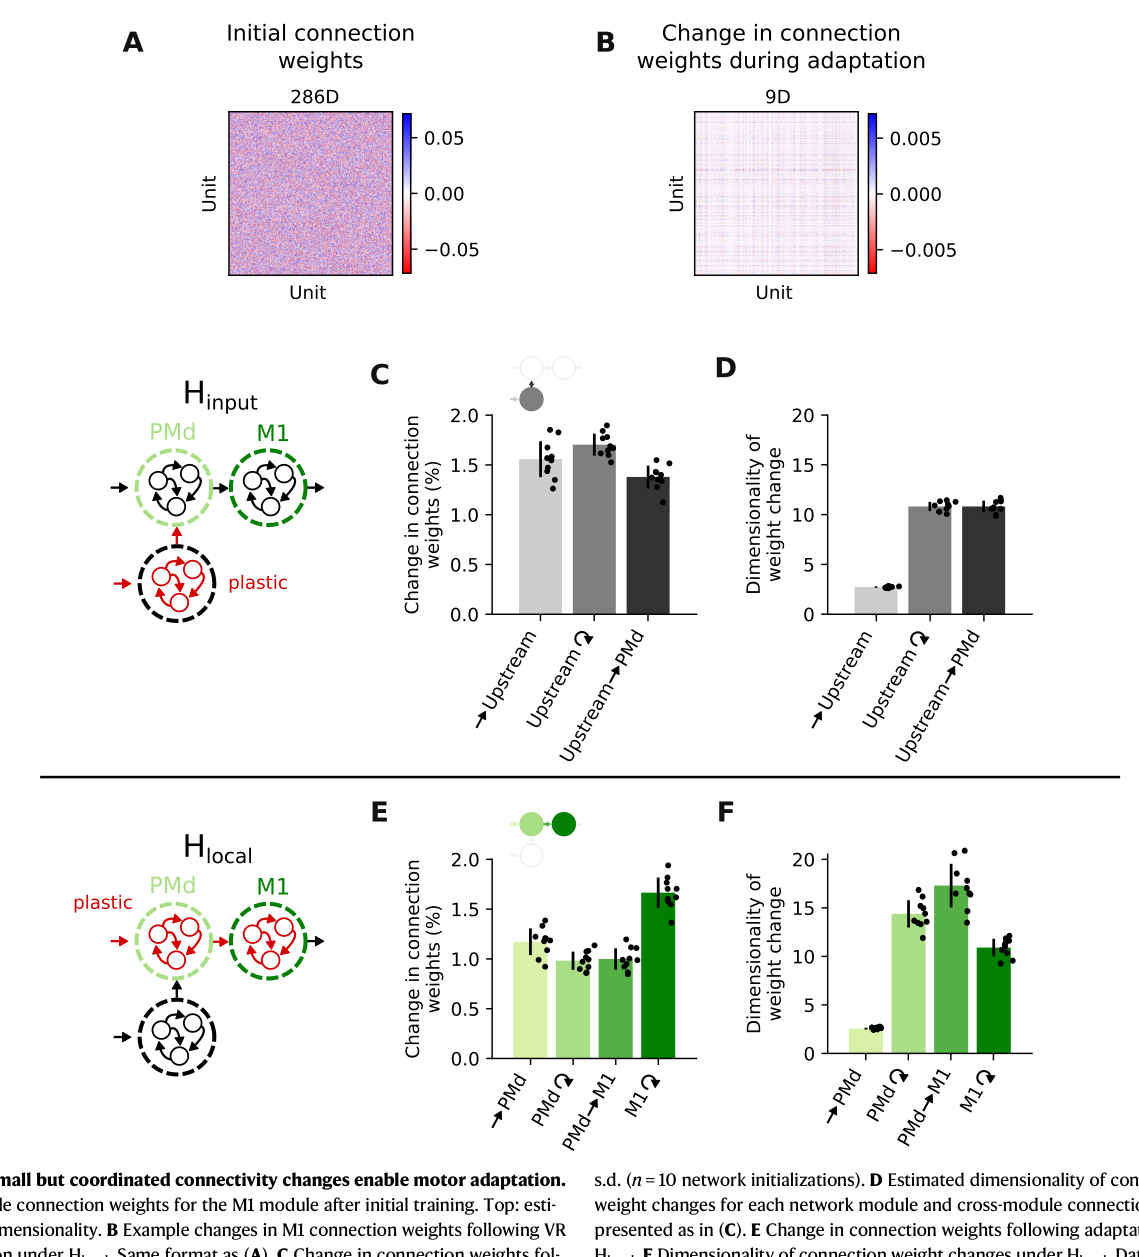
来源:原文 Fig. 5,PDF 第 6 页。
图 5 · 小而相关的权重改变。 (A) 初始训练后 M1 模块的递归权重矩阵示例,上方标注其估计维度;(B) Hlocal 学习后该矩阵的改变量——幅度微小且维度很低;(C, D) Hinput 下各模块及跨模块连接的权重变化幅度(C,约 1–2%)与变化维度(D),n = 10 次初始化;(E, F) Hlocal 下同样格式:变化同样小、同样低维。与初始训练期 4–31% 的权重变化相比,适应所需的 1–2% 微不足道——协方差的稳定由此得到机制解释:不是没学,是学得太"轻"。低维性则暗示大量突触按同一模式协同改变,这为后面"少数调控信号即可指挥学习"的讨论提供后续分析的依据。
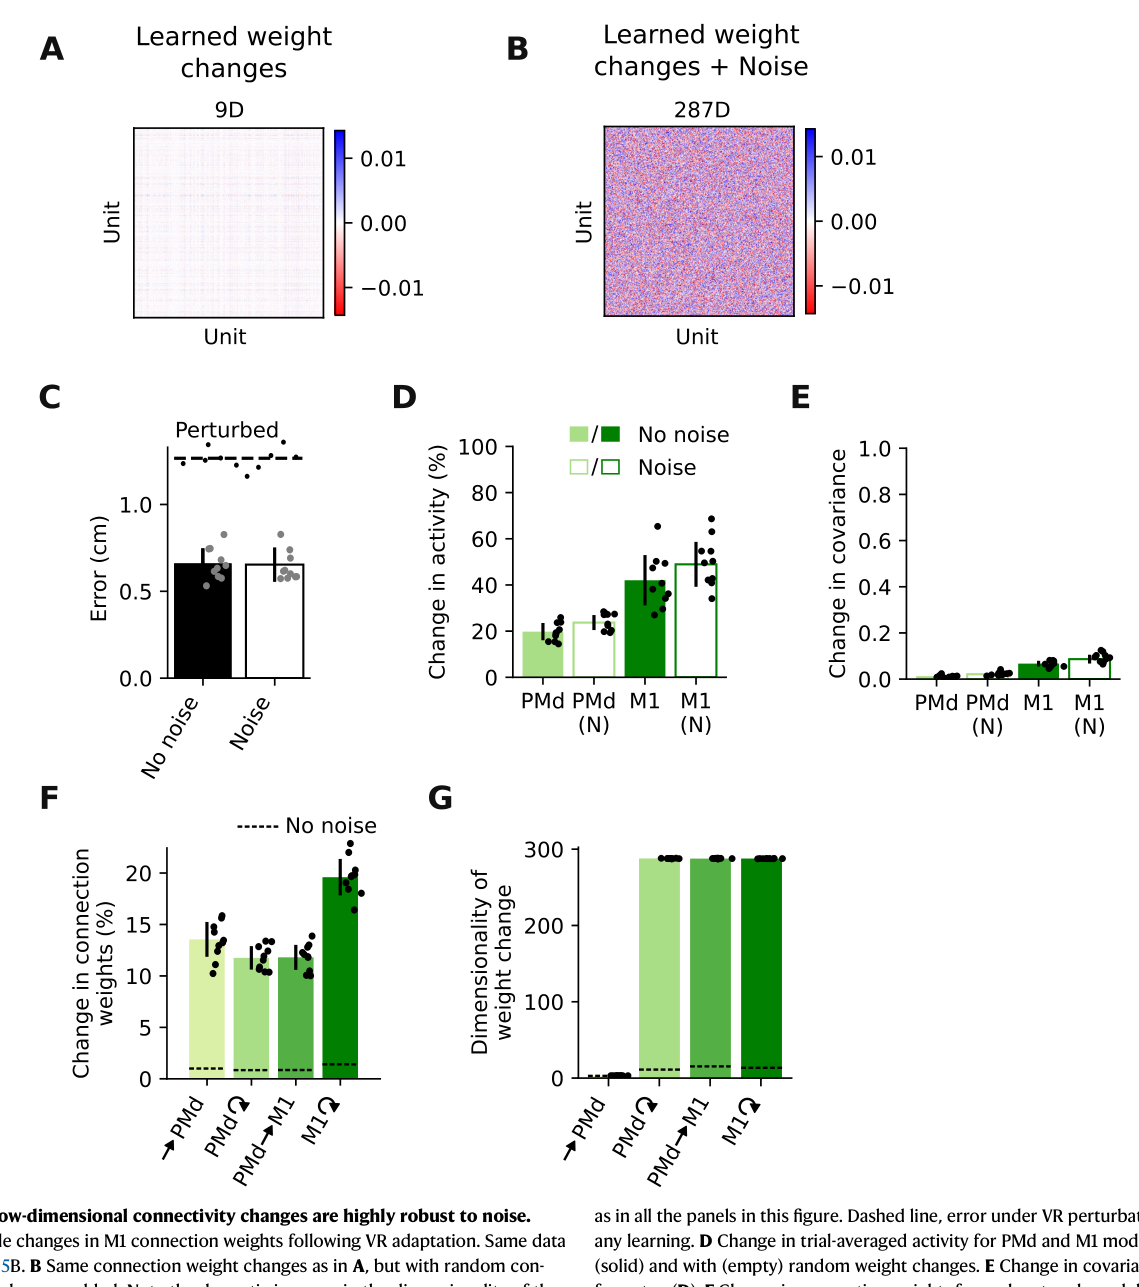
来源:原文 Fig. 6,PDF 第 7 页。
图 6 · 低维改变的对所测随机噪声的稳健性。 (A) Hlocal 学到的 M1 权重改变(同图 5B);(B) 叠加随机连接改变后,权重变化的维度暴涨、学到的模式被完全淹没;(C) 然而有噪与无噪模型的轨迹误差变化很小(虚线为施加视觉旋转但不进行适应时的误差参照);(D, E) 活动变化与协方差变化同样不受影响;(F) 所加噪声的幅度是学习信号的十倍;(G) 维度的对比可以看出。这张图回答了一个真正生物学的问题:突触无时无刻不在涨落,微弱的学习痕迹凭什么存活?答案是结构性免疫——在此模型及所测随机噪声下,噪声对任务相关变化的影响较小,这也为"不稳定突触上的稳定记忆"(Susman 2019、Rule 2020)提供了一个解法。
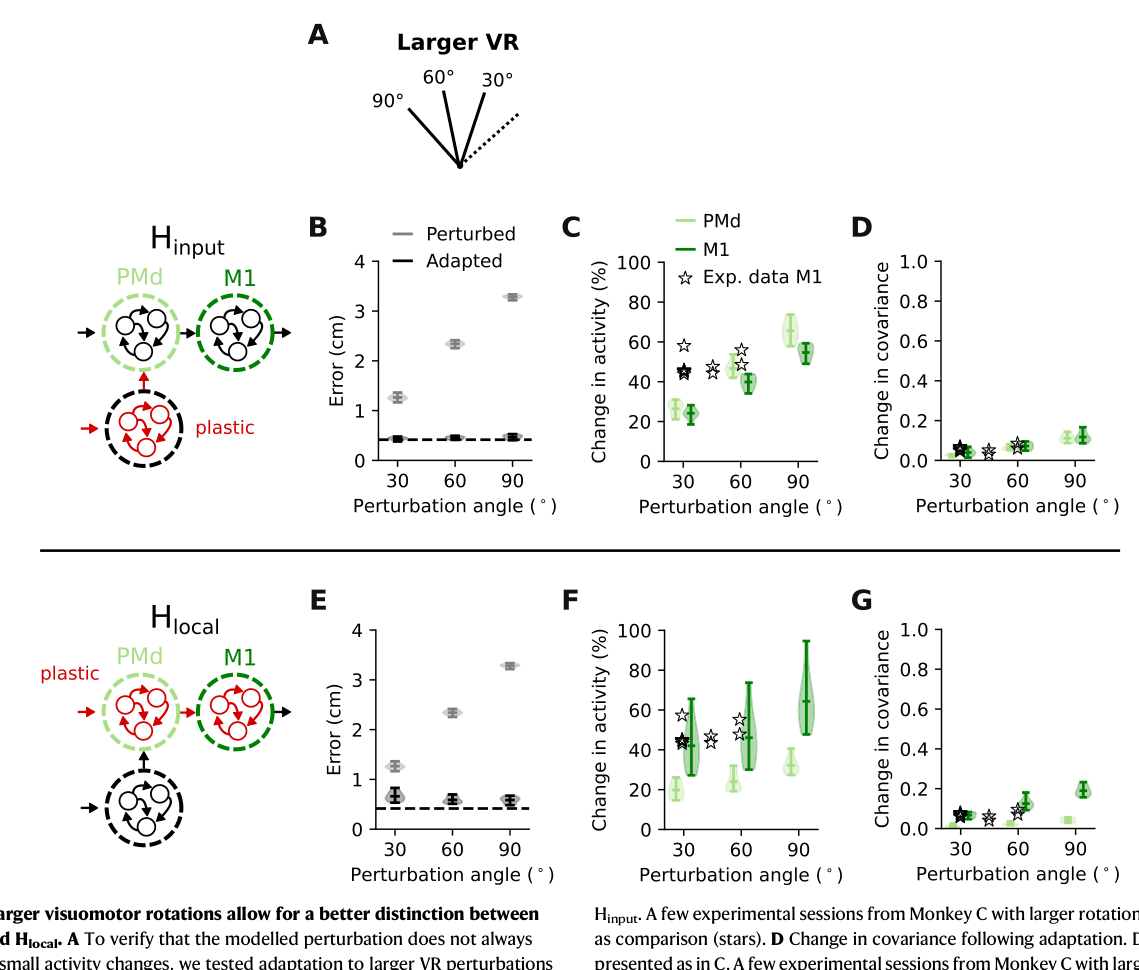
来源:原文 Fig. 7,PDF 第 8 页。
图 7 · 用更大的旋转撕开两个假说的差别。 (A) 把扰动加大到 60° 和 90°;(B, E) 两种假说下网络都能学会(误差从灰到黑);(C, F) 活动变化:Hinput 下 PMd 变化更大(90° 时最明显),Hlocal 下相反;(D, G) 关键差别在协方差——Hinput 下 PMd(浅绿)与 M1(深绿)的协方差变化随角度同步增长(D),Hlocal 下 M1 增长远超 PMd(G);星号是猴 C 更大旋转(45°/60°,仅 M1)的初步记录,看起来贴合 Hinput 的预测而非 Hlocal。这张图的价值是"给实验家的图纸":想分辨学习发生在哪里,就用足够大的扰动,然后盯着 M1 与 PMd 的协方差变化是否同步。
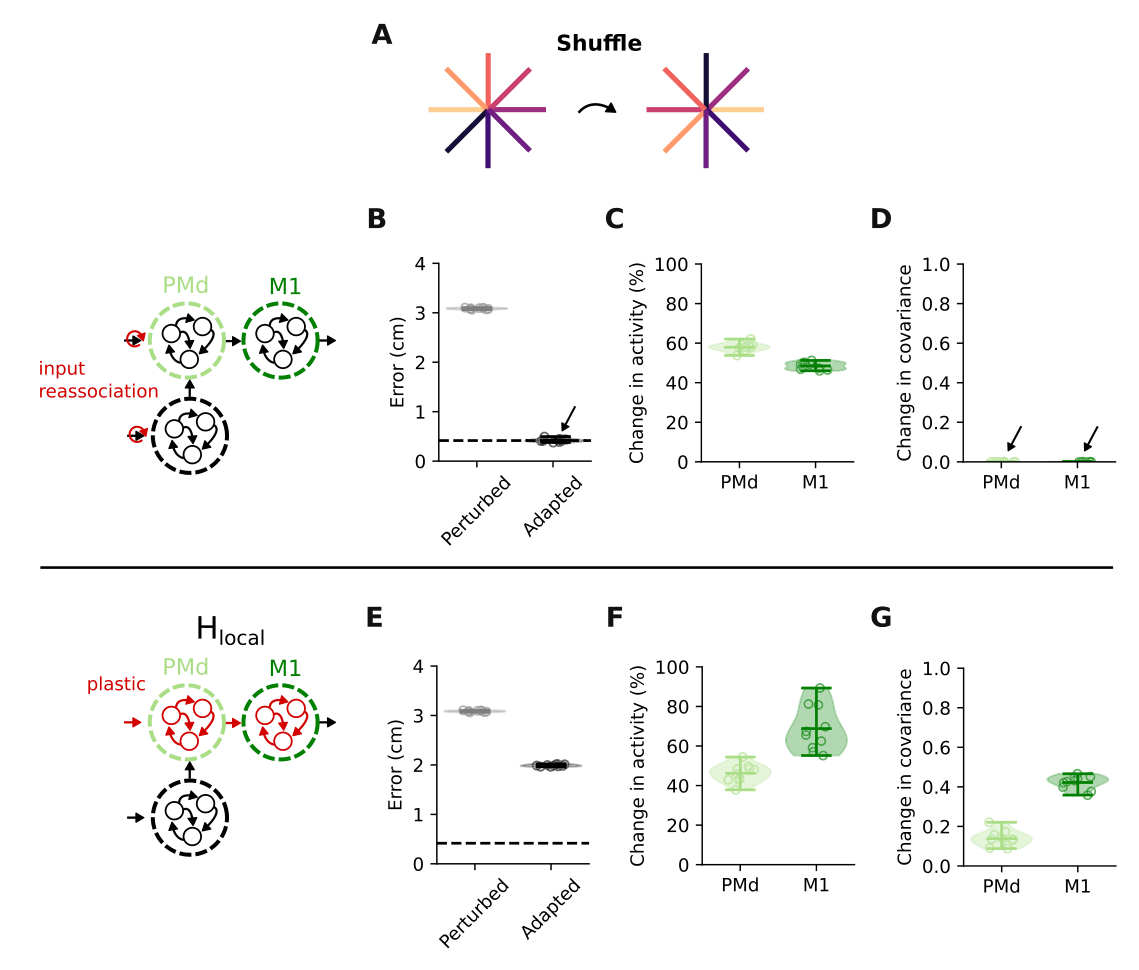
来源:原文 Fig. 8,PDF 第 9 页。
图 8 · 重联合任务:把区分做到极致。 (A) 网络学习一套新的 cue-方向随机对应("Reassociation",概念直接承自 Golub 2018 的 neural reassociation);(B) 通过输入重联合学习后误差同样归零;(C) 但活动变化巨大——与 Hlocal 同量级(F);(D) 协方差却一丝不变:因为输入信号本身没有变,只是被重新分配给不同目标,网络的活动模式集合原封未动;(E–G) 同一任务下的 Hlocal:活动变(F)、协方差也变(G)。不同模型对活动及协方差变化的预测,可用于设计进一步的判别实验;模型结果本身尚不能确定真实突触的变化位置。
讨论与解读边界
本文的贡献是提供一个模型反例,检验从群体统计量推断学习位置是否充分。实验数据对模型有约束,但模型与轨迹、低维活动相似,并不使其成为真实皮层连接的唯一实现。Hinput 与 Hlocal 在某些指标上相近,反映了现有观测的可辨识性限制。
约1–2%的权重改变和对随机噪声的稳健性均是此模型中的结果,没有在猴脑直接测量。有限幅度、特定结构噪声下性能保持,不能推广为对任意突触扰动免疫。较大旋转和重联合任务给出了可检验预测;仅M1的初步大角度数据不足以最终定位学习来源。
思考问题
- 同时记录并扰动上游、PMd与M1,哪一种跨区指标最能区分两种学习位置?
- 若噪声沿学习相关的低维权重方向集中,模型的稳健性是否仍然存在?