C01 · Preparatory activity in motor cortex reflects learning of local visuomotor skills
Paz, R., Boraud, T., Natan, C., Bergman, H., & Vaadia, E. (2003). Nature Neuroscience, 6, 882–890. doi:10.1038/nn1097
单方向视觉旋转学习后,偏好方向接近所学手运动方向的 M1 神经元表现出准备期活动增强。这种改变具有方向局部性,并在同日学习后阶段保留。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
视觉运动适应研究借助光标旋转考察动作与视觉结果之间的映射如何更新。练习后误差下降、撤除旋转后出现后效,说明运动系统会利用先前经验调整后续动作;但这种调整能否推广到未练习的方向,是理解学习表征的另一关键。行为研究中的局部泛化提示,学会一个方向的补偿未必意味着建立了对所有方向通用的变换规则。若学习只影响训练方向附近的动作,那么相应神经变化也可能集中于具有特定方向偏好的群体,而非整个运动皮层一致改变。Paz 等把这一行为问题推进到 M1,考察局部技能是否具有可以辨认的神经对应。
困难在于,学习时的放电变化不一定代表新技能的保持。旋转适应会逐步改变真实手部方向、轨迹和肌肉活动,运动期神经信号因而可能只是跟随当前输出。准备期提供了动作尚未开始的观察窗口,却仍可能受到重复练习、注意或即将执行方向的影响。要把学习相关变化与这些解释区分开,需要在学习前后恢复同一默认任务,使行为尽量可比;还要利用原有调谐曲线预测实际运动方向应产生的放电,并检查肌电及无旋转重复运动条件。神经变化出现的时刻也有辨别力:若它晚于行为改善,就不能简单视为促成最初误差校正的信号。
本文让两只猴只针对一个目标学习旋转,再返回八方向默认任务,将准备期和执行期的变化按细胞偏好方向与所学手运动方向的关系比较。这个设计把局部后效、同日保持与神经选择性联系起来,也保留了区分视觉目标和真实动作方向的条件。研究发现的主要变化,是偏好方向靠近所学动作的一部分细胞在准备期活动增强,而非全体细胞的偏好方向统一旋转。增强在行为已经改善后出现,并可在同日后续阶段保留,因此更适合被理解为学习后状态的相关痕迹。它尚未证明这些细胞是记忆保持所必需;方向分组阈值也不是生理边界。次日未检出同样的后效和活动增强,只限定了本范式能观察到的保持,不能据此断言潜在记忆已全部消失。
研究思路
动物学习针对单一方向的旋转,学习前后执行同一默认任务。作者比较准备期和运动期活动,并按偏好方向与学习运动方向的关系分组,同时评估后效应、保持和再学习;次日后效应减弱不等于所有记忆被清除。
方法
两只雌性恒河猴(Macaca mulatta,约 4.5 kg),双侧各埋一个 27×27 mm 记录仓,每侧 8 根微电极同时推进(Alpha-Omega 系统,spike 波形以 24 kHz 采样)。猴子坐在暗室里,双手操作两个 x–y manipulanda 控制屏幕上的光标(屏幕距眼 50 cm,腕部固定以减少远端运动)。单 trial 流程:双手居中至少 1 s → laterality cue 提示用哪只手 → 保持 1–1.5 s → 目标出现(8 个位置,距中心 4 cm,直径 0.8 cm)→ 再保持 1–1.5 s → go signal(中心圆消失),2 s 内沿一条 0.8 cm 宽的隐形走廊把光标移到目标 → 保持 750 ms 后获得果汁奖励。每个 session 分四段:pre-learning(默认八方向任务)、learning(单目标变换任务,目标恒为上方 90°,手与光标方向之间施加当天随机抽取的旋转变换)、post-learning(默认八方向)、re-learning(同变换重学)。每个变换在每只猴至少跨天重复四次;从图 2d 看,整个记录期分成早、中、晚三段各约 10 天。PA 取 target onset 后 600 ms(在 hold period 内),MRA 取 go signal 后 600 ms。最终样本:PA 分析 129 个细胞(猴 X 38、猴 W 91),MRA 分析 259 个(分别为 104 和 155),全部要求在 pre、learning、post 三段全程稳定隔离。入选标准还包括:ICMS(300 Hz、200 µs 阴极脉冲、50 ms 串)在 ≤40 µA 引出单关节肩或肘运动、每方向前后各至少 5 个 trial、第一段 hold 期活动前后无显著变化(Mann-Whitney U-test)、方向效应 ANOVA 显著、余弦拟合 R² > 0.5。行为指标是 signed normalized deviation(s.n.d.):峰值速度时刻所需手方向减实际手方向,再按当天变换归一化。另记 12 块上肢肌肉的表面 EMG,MRI(4.7 T)核对穿刺位置,猴 X 还做了解剖学重建。显著性水平取 P < 0.01。
主要结果
行为层面,学习确实是局部的。learning epoch 平均要十几个 trial 才到平台(先快后慢两个阶段),post-learning 头三个 trial 出现显著 aftereffect,且 aftereffect 幅度随目标偏离 90° 学习目标的角距、以及 trial 数递减(图 2a),与人类的局部泛化完全对应。re-learning 时成绩 1–3 个 trial 就回到平台,说明学到的东西保持了至少 1–2 小时(post-learning epoch 的时长);但第二天未检出显著 aftereffect(图 2c),且早、中、晚三段记录期的学习曲线和 aftereffect 都一样(图 2d–f)——本范式下未发现明显的跨日保持或持续学习加快,但不能据此证明全部记忆被清除。pre 与 post 两段默认任务的运动学几乎一致:反应时 298±93 对 296±97 ms,运动时 1087±219 对 1130±249 ms,平均速度曲线在学习方向与非学习方向之间也无显著差异(图 3)。
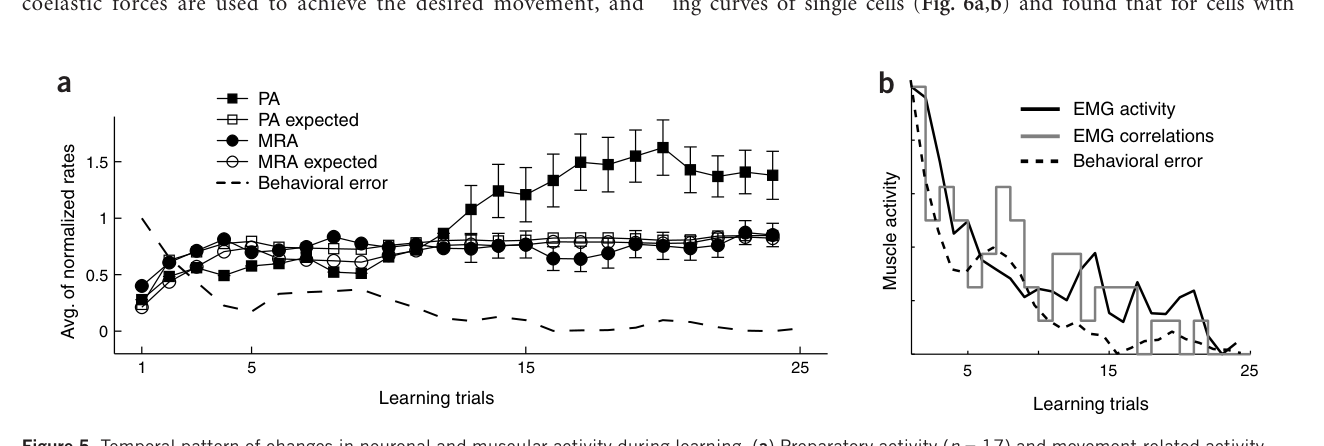
神经层面,改变只出现在准备期、只出现在一小群细胞里。示例细胞(图 4)在 learning epoch 的 PA 随 trial 逐渐升高,但要到约十个 trial 之后才启动——而行为在前十个 trial 内就已经改善;MRA 则全程不动。为了排除"PA 升高只是反映了学习期间实际运动方向的逐步偏转",作者用 pre-learning 调谐曲线加上每个 trial 的实际运动方向算出"期望活动",结果只有 PD 在学习-运动方向 30° 以内的细胞(PA,n = 17)的实际活动在学习后期显著超过期望值,而且是行为达标之后才超过(图 5a);MRA(n = 37)全程贴着期望走。EMG 总幅度和肌肉间相关则随行为改善同步下降(图 5b),与"早期靠共收缩、后期靠内部模型"的图景一致——行为、肌肉、神经三条时间曲线的错位本身就是信息。
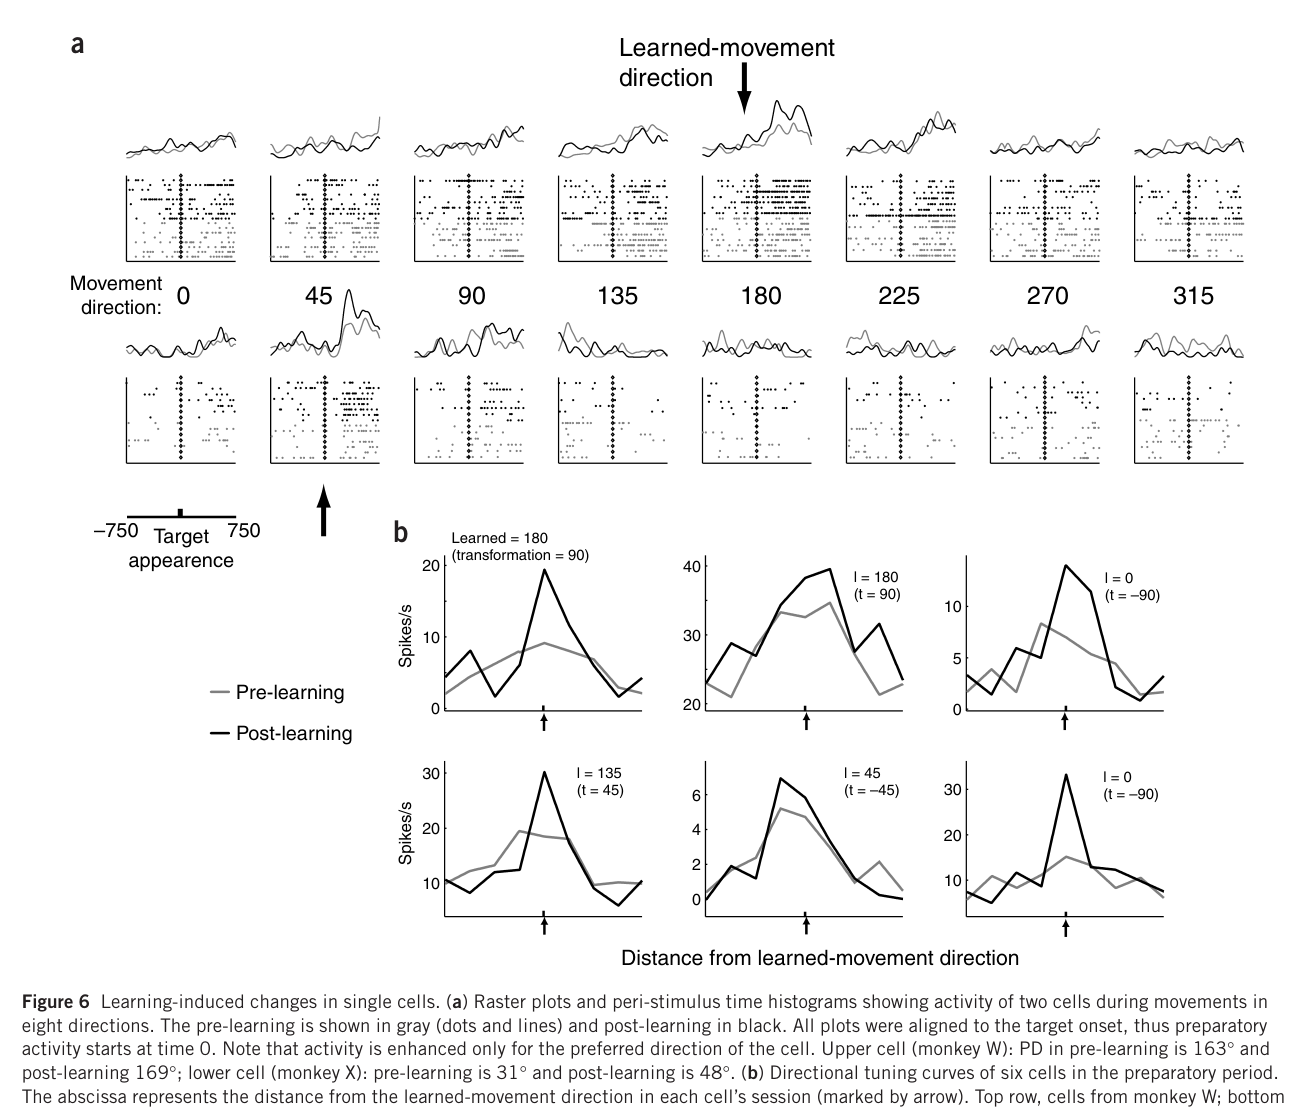
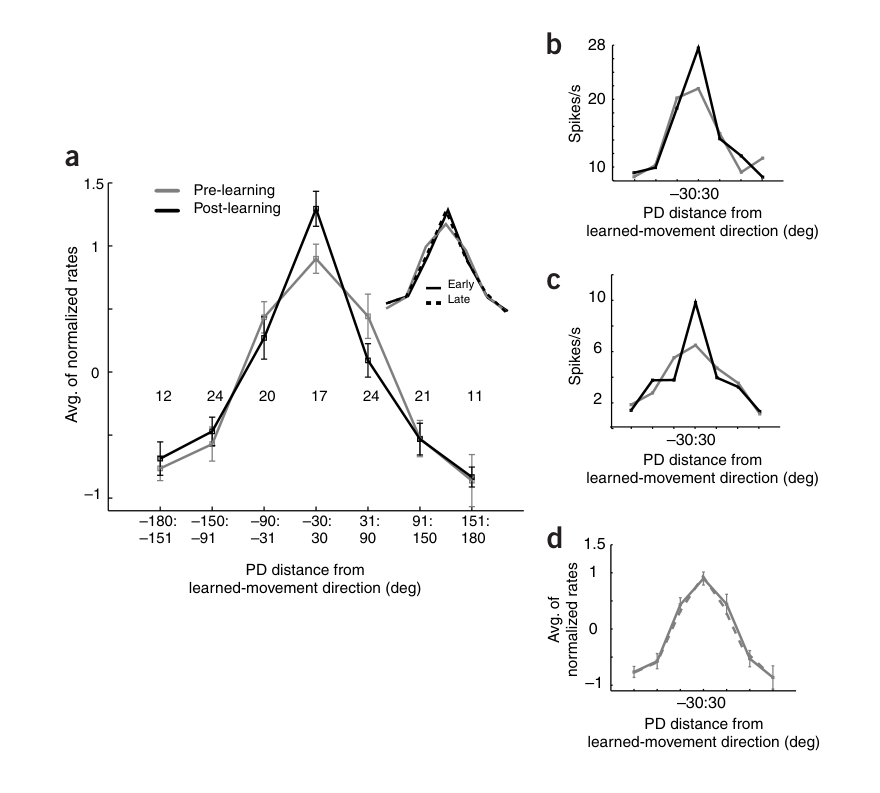
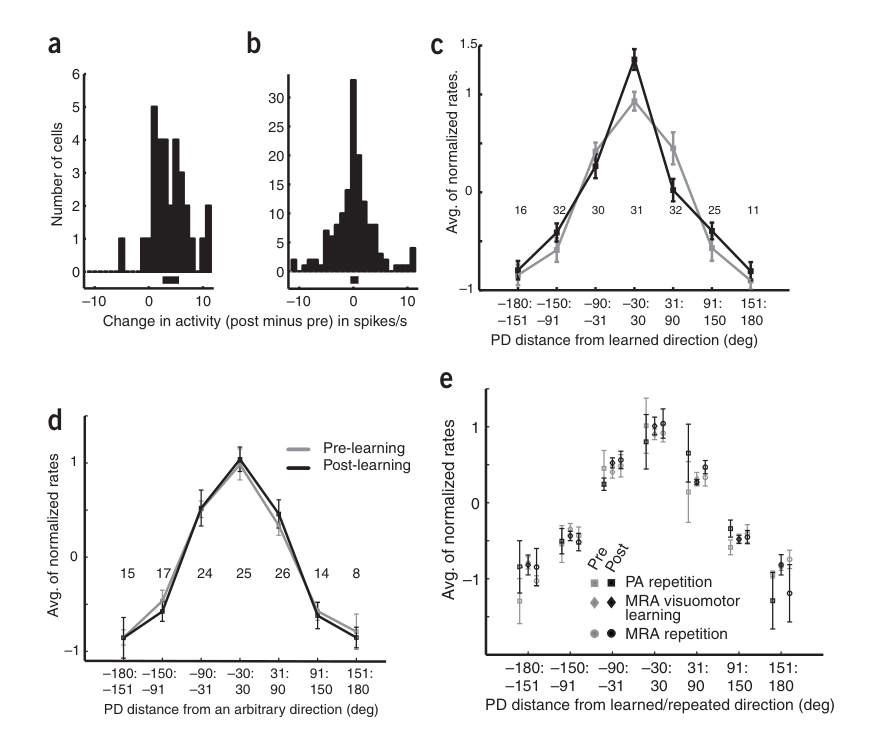
学习结束回到默认任务后,改变仍然在。PD 没有系统性移动(bootstrap),PD 分布均匀(Rayleigh test),但 PD 靠近学习-运动方向的细胞恰好在对应方向上的放电被抬高(图 6)。群体层面(图 7),pre/post 对比中只有 PD 距学习-运动方向 ±30° 以内的细胞 PA 显著上升(2-way ANOVA 加 post-hoc),把每个细胞的调谐曲线按各自 PD 对齐后,抬升也集中在中心附近。放宽余弦拟合标准、把样本扩到 177 个细胞后结论不变(图 8a–c)。一组对照支持方向和时段特异性:换成任一非学习方向对齐,无变化(图 8d);其余七个运动方向无一关联改变;MRA 无变化;单目标重复运动(无变换)的 control session 里 PA、MRA 都不变(图 8e),不支持仅由所测无变换重复运动解释这一变化。改变的保持与行为保持平行:post-learning epoch 内 early 与 late 各三个 trial 的抬升无差异(bootstrap,P = 0.3),而第二天未再检出相同的显著抬升(图 7d),与行为的 overnight washout 一致。
逐图解读
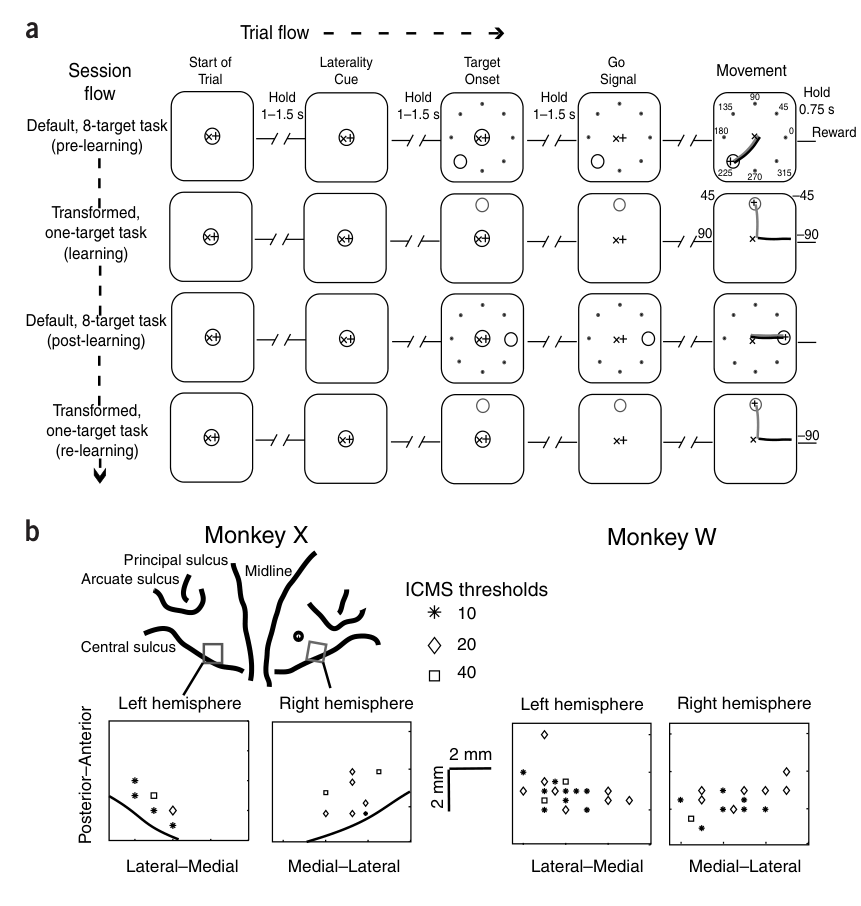
来源:原文 Fig. 1,PDF 第 2 页。
图 1 · 任务设计与记录位置。 (a) 上半是 session 流程(自上而下四段:pre-learning 默认八方向、learning 单目标变换、post-learning 默认八方向、re-learning),下半从左到右展开单 trial 的流程:laterality cue → 随机延迟 1–1.5 s → target onset → 再保持 1–1.5 s → go signal → 运动 → 保持 750 ms → 奖励。设计的所有关键都画在这里:learning epoch 只用上方 90° 一个目标,变换每天从 ±45°/±90° 里随机抽(图中示例为 –90°,即手向右移 0° 才能让光标向上到 90°),pre/post 两段的一对一映射则保证前后比较时运动学相同;黑线是手、灰线是光标,两者在学习段的分离可以看出。(b) 是两只猴的皮层表面图,猴 X 有解剖重建,两猴都标出 ICMS 引出肩/肘单关节运动的阈值(10–40 µA),支持记录位置位于 M1 手臂相关区域。该设计确立了后文区分"学习-运动方向与目标方向"的基准。
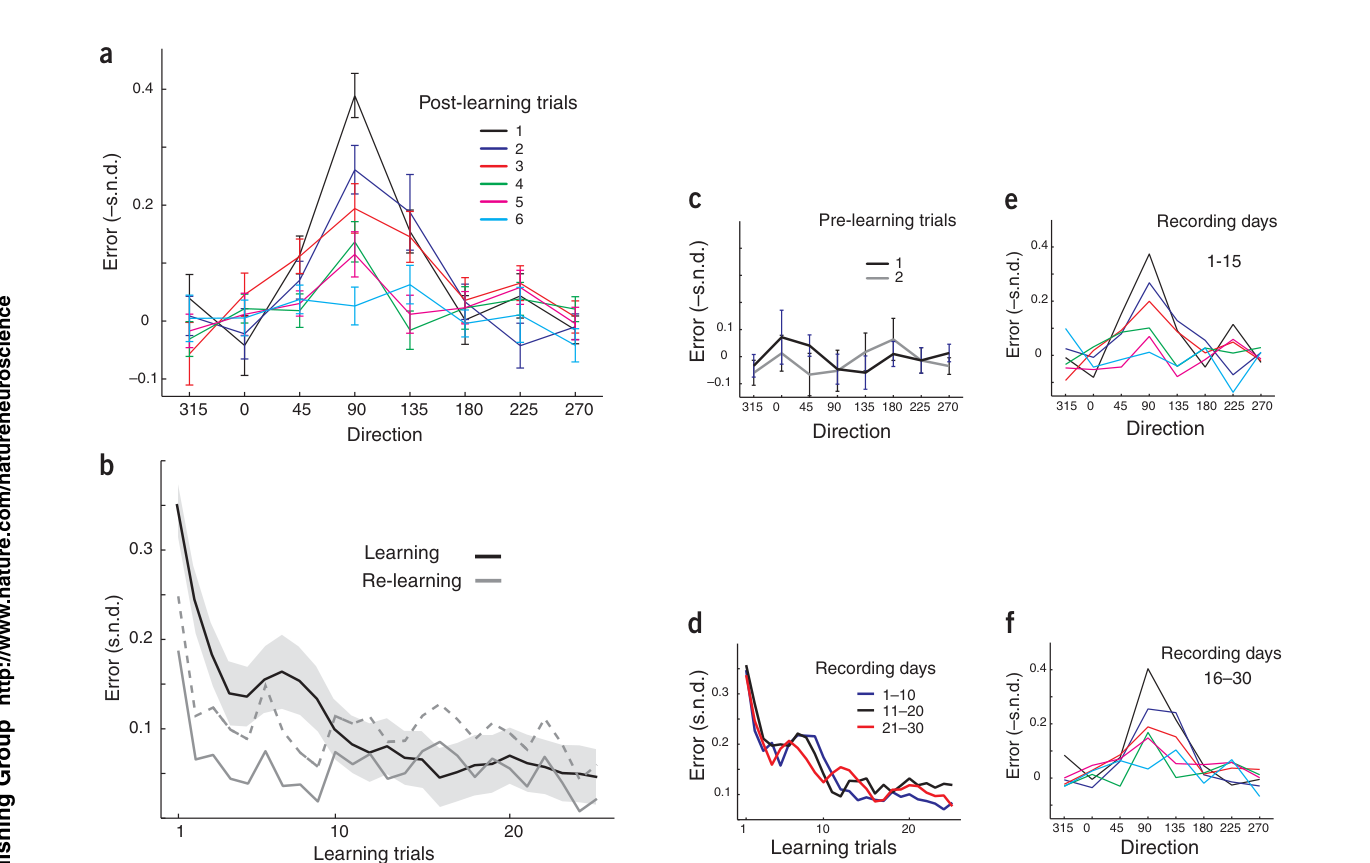
来源:原文 Fig. 2,PDF 第 3 页。
图 2 · 行为:局部 aftereffect、保持与隔夜洗掉。 (a) post-learning 里标准运动的 aftereffect(s.n.d.)在学习目标 90° 处最大,随目标角距和 trial 数衰减,是局部内部模型最直接的行为证据。(b) learning epoch(黑线)十几个 trial 缓慢到平台,re-learning(灰线)1–3 个 trial 即回平台,说明保留至少 1–2 小时。(c) 把第二天 pre-learning 头两个 trial 按前一天的变换归一化,偏差为零——未检出隔日后效应。(d–f) 把记录期分成三段各 10 天(d)和前后两半(e、f),学习曲线与 aftereffect 未呈现明显的系统差异,未见明显跨日改善,不足以排除潜在记忆。这张图既是行为结果,也是后面所有神经分析能够跨天合并样本的合法性前提。
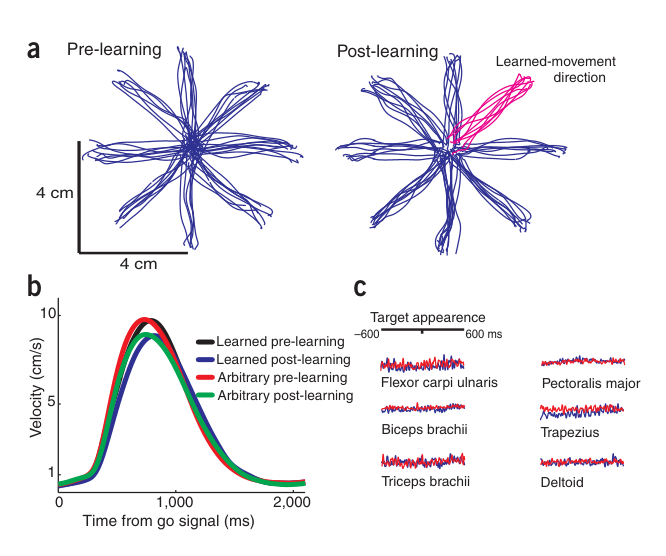
来源:原文 Fig. 3,PDF 第 4 页。
图 3 · 前后行为相同的对照。 (a) 同一天 pre/post 的真实手轨迹(红色为该天学习-运动方向),排除头三个带 aftereffect 的 trial 后两者无差别;(b) 所有记录日平均的速度曲线,学习方向与非学习方向、pre 与 post 两两对齐,无显著差异;(c) 从 target onset 前 600 ms 到后 600 ms 的 EMG(pre 蓝色、post 红色)显示 hold period 内六块肌肉均无肌电活动增强。这些对照削弱了已测运动学和肌电差异的解释,但不能排除全部未测运动或认知因素。
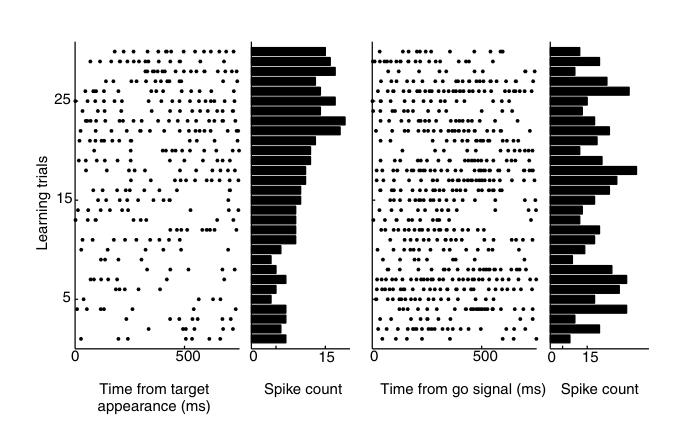
来源:原文 Fig. 4,PDF 第 4 页。
图 4 · 一个细胞:PA 在学、MRA 不动。 左右两列是同一细胞在 learning epoch 各 trial 的 raster 加 spike count,窗口 750 ms:target onset 后的 PA(左)从下往上可见放电率在约十个 trial 的平稳期之后逐渐爬升,go signal 后的 MRA(右)未见明显变化。注意时间上的错位——行为在前十个 trial 内就改善了,而这个细胞的活动是之后才起来的,提示它反映的不是误差纠正过程本身,而是学习成立之后的状态。
来源:原文 Fig. 5,PDF 第 4 页。
图 5 · 学习期间神经与肌肉活动的时间格局。 (a) 对 PD 在学习-运动方向 30° 以内的细胞(PA n = 17,MRA n = 37),把实际活动与按 pre-learning 调谐曲线和当 trial 实际运动方向算出的期望活动对比:MRA 全程贴期望,PA 却在行为达标(虚线,与图 2b 同一时间轴缩放)之后显著超过期望。(b) EMG 总幅度(黑)与肌肉间显著正相关对数(灰)随行为改善同步下降,对应"早期共收缩、后期内部模型"的经典图景。在同一时间轴上,准备期活动的晚期上升与肌电共收缩的消退呈现出时间上的反差。
来源:原文 Fig. 6,PDF 第 5 页。
图 6 · 单细胞调谐曲线的学习性改变。 (a) 两个细胞八方向的 raster/PSTH,灰色为 pre-learning、黑色为 post-learning,均对齐 target onset:上细胞(猴 W)PD 从 163° 挪到 169°,下细胞(猴 X)从 31° 到 48°——PD 基本没动,放电的抬升集中在各自 PD(也就是靠近该天学习-运动方向)的方向上。(b) 六个细胞在准备期的方向调谐曲线,横轴是到该天学习-运动方向的角距(箭头标出),增强无一例外以此为中心。该图清晰表明神经调谐改变表现为增益调整而非方向重映射。
来源:原文 Fig. 7,PDF 第 6 页。
图 7 · 群体证据:按偏好方向分组的局部变化。 横轴是细胞 PD 到学习-运动方向的角距,灰线 pre、黑线 post,三个面板分别采用不同归一化方式((a) 按基线和调制深度归一,(b) 不归一的原始放电率,(c) 仅按基线归一),均仅在 ±30° 以内组检出显著上升——按各格标注的细胞数(12/24/20/17/24/21/11)可知这关键一格只有 17 个细胞。(a) 插图比较 post-learning 里 early/late 各三个 trial 的抬升,bootstrap 检验 P = 0.3,说明印记贯穿整段 post-learning。(d) 换成与前一天学习-运动方向对齐的跨天比较(两组不同细胞,定性结果),效应不存在——隔夜洗掉,与行为平行。
来源:原文 Fig. 8,PDF 第 7 页。
图 8 · 特异性的全套对照。 放宽余弦拟合标准、扩到 177 个细胞后:(a) PD±30° 内细胞在学习方向上的改变直方图(post 减 pre)整体右移,下方短杠为总体均值的 0.95 置信区间;(b) 其余细胞的改变对称分布在零附近。(c) 在扩展样本上重复图 7a 的分析,结论不变。(d) 换成任一非学习方向对齐做同样的群体分析,pre/post 无差异,说明不是全向性的兴奋性变化。(e) 把 visuomotor learning 的 MRA(菱形)和单纯重复运动 control session 的 PA(方块)、MRA(圆圈)画在同一坐标里,全部平坦——只有 visuomotor learning 的 PA 隆起。这些对照支持准备期变化的任务特异性,但没有直接操纵注意力,也不能排除所有替代解释。
讨论与解读边界
研究将行为的局部泛化与准备期调谐变化联系起来。前后默认任务、肌电及无旋转重复运动对照,降低了实际运动改变和单纯重复的解释力。神经变化较行为改善出现得晚,更适合被解释为学习状态或保持的相关信号,而非已经证明的误差更新机制。
次日未检出后效应、跨记录期未见学习加快,支持本范式下缺少明显的跨日保持;这不能证明所有形式的记忆都被清除。跨日神经比较也并非持续追踪同一细胞。±30° 是分析分组尺度,不应当作可塑性的生理硬边界;未见执行期改变也只适用于本文的采样、指标与统计灵敏度。
思考问题
- 若隔日先做短暂再学习而非只测后效应,能否检出潜在的 savings?
- 选择性扰动学习方向附近的准备期活动,会损害同日保持还是只改变运动准备?