B08 · Frontal and parietal planning signals encode adapted motor commands when learning to control a brain–computer interface
Ferrea, E., Morel, P., & Gail, A. (2025). PLoS Biology, 23(9), e3003408. doi:10.1371/journal.pbio.3003408
在两只猕猴的三维 BCI 视觉运动旋转任务中,M1-PMd 与 PRR 的适应信号都更接近适应后的运动指令而非受扰的视觉反馈,包括不直接驱动解码器的非控制单元;规划期与运动期的适应变化逐试次相关,且这种关联在额叶随学习增强、在顶叶较弱。结果支持跨额顶网络的运动参照系"再关联",但显性瞄准策略的贡献无法排除。
核对依据:本文献为 2026-10-09 因外部评审意见新增,未入 Zotero 集合;核对依据本地 PDF(references/pdfs/B08_2025.pdf,正式发表版,2025-09-29 在线出版)。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。DOI:https://doi.org/10.1371/journal.pbio.3003408。
背景
视觉运动旋转研究长期借助一种可控的错配来追踪运动适应:转动手部位移与光标反馈之间的方向关系,观察初始偏差如何减小,以及撤除旋转后是否出现反向后效。行为上的补偿说明感觉运动映射发生更新,却不足以确定神经元在编码什么。真实伸手时,手臂运动、本体感觉、视觉反馈与运动指令彼此关联,适应后的放电变化可能对应其中多个变量。此前的局部旋转实验已在 M1 准备期发现学习相关变化,BCI 研究也观察到准备状态调整及向真实手臂运动的部分迁移;这些工作使问题进一步转向:适应是否在运动开始前形成,又是否由额叶与顶叶共同表达。
脑机接口为区分这些解释提供了条件。手保持静止时,神经活动仍可经固定解码器驱动光标,旋转反馈便无需伴随真实肢体方向和本体输入的同步改变。接入解码器的控制单元直接决定光标输出,但它们的变化本身不足以说明适应的网络范围;未接入的单元是否也携带补偿信息,是另一个需要检验的问题。尤其是顶叶伸手区 PRR,其活动可以与视觉目标、动作计划及反馈有关,不能仅凭区域名称判断其适应信号属于视觉还是运动参照系。比较额顶两区,并改变 PRR 是否参与在线控制,有助于区分直接输出要求与更广泛的群体协同。
Ferrea 等在两只猕猴的三维 BCI 伸手任务中引入视觉旋转,以基线解码器重构扰动期的活动输出,比较控制与非控制群体的偏转方向,再追踪规划期与运动早期偏转的逐试次关系。由此,研究把适应的空间参照系、网络分布和时间演变放进同一框架。结果支持额顶群体携带运动样适应,并与复用既有活动结构的再关联解释相容,但额叶与 PRR 的效应强度及学习轨迹并不一致。较长的规划窗仍允许显性再瞄准参与;非控制单元的离线解码也只能证明相关信息存在,不能证明其驱动了补偿。任务虽有三维显示,旋转仅施加于额平行平面,因此结论还不能直接推广到深度扰动或动态目标拦截。
研究思路
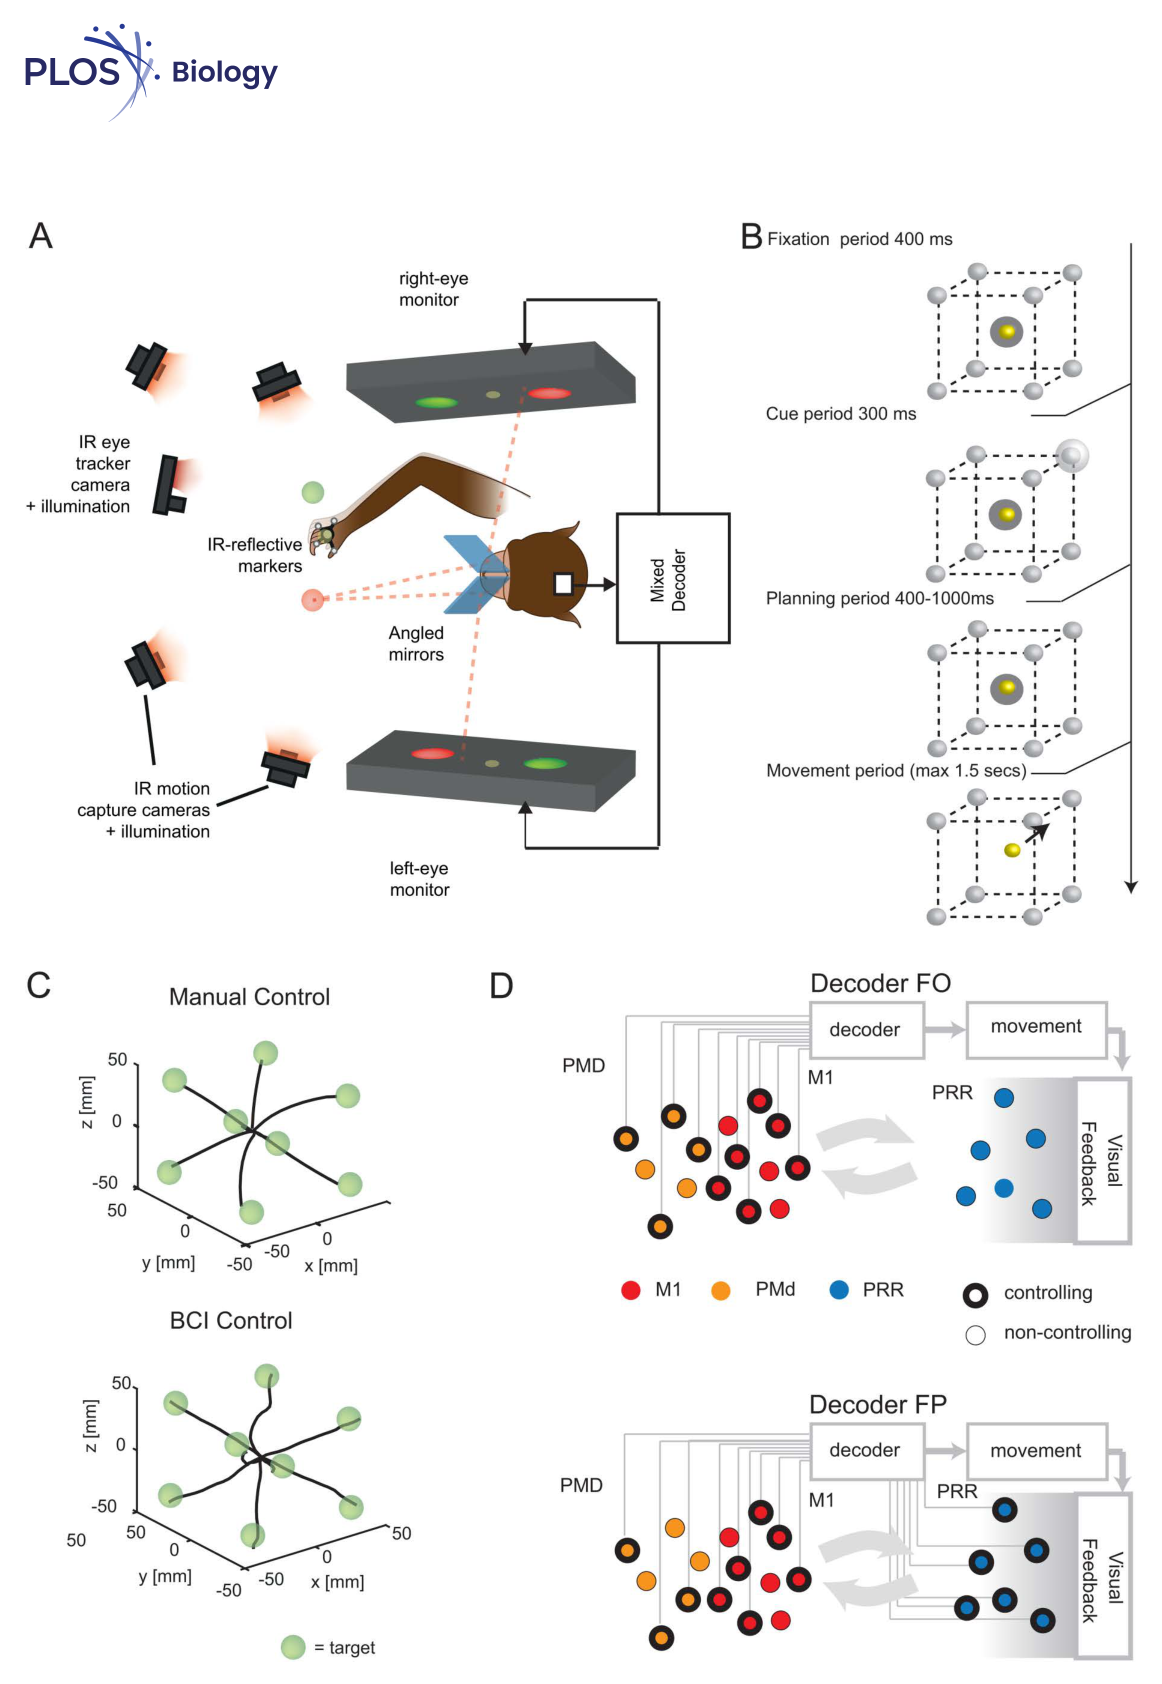
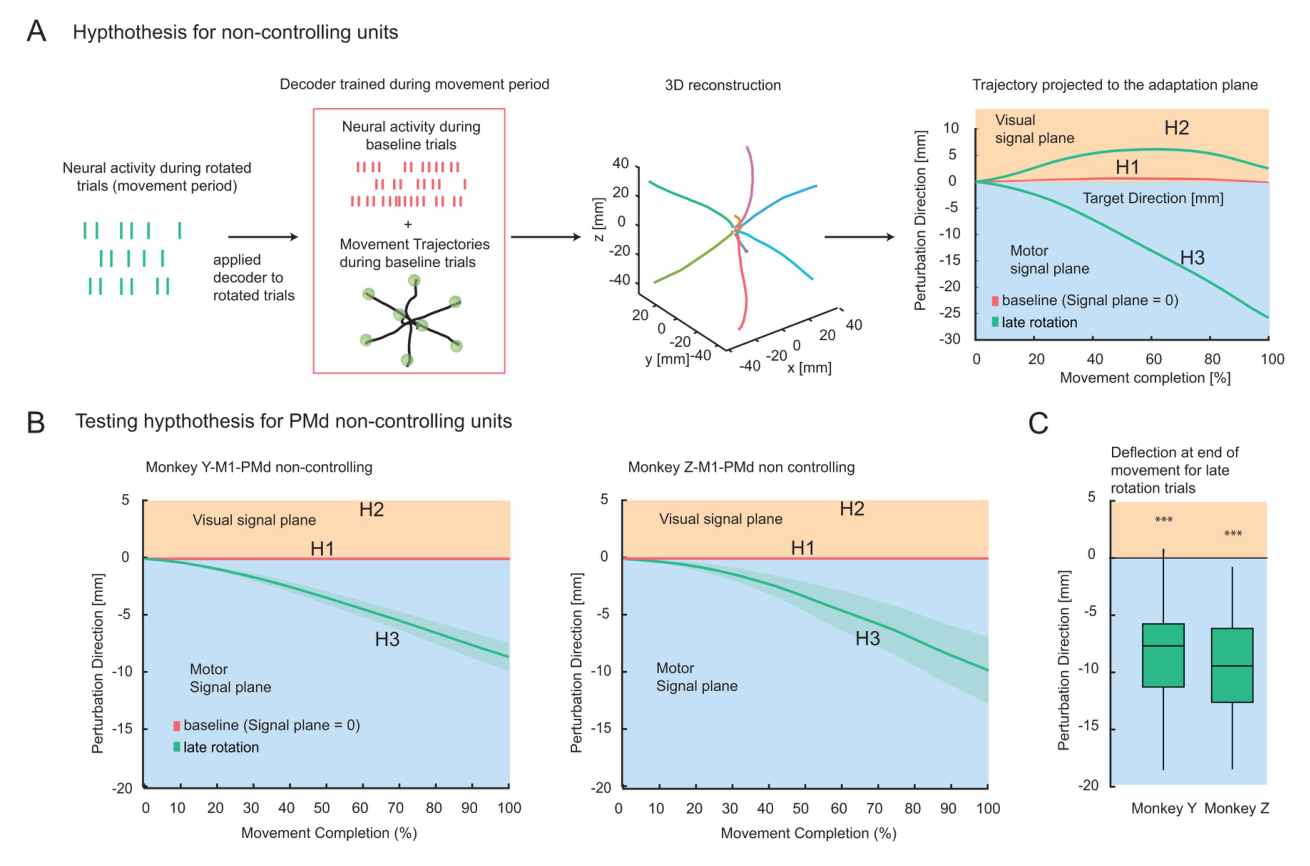
作者把 VMR 移植到 Gail 实验室的三维 VR 伸手任务,并用 BCI 控制光标(手动控制 MC 仅用于校准解码器)。关键设计是把记录单元分成两组:接入解码器的"控制单元"(controlling)与不接入的"非控制单元"(noncontrolling);PRR 则通过两种解码器配置切换角色——FO(frontal-only,只用 M1+PMd 子集,PRR 全部断开)与 FP(fronto-parietal,M1+PMd 子集加全部 PRR 单元)。行为上确认适应发生后,作者检验"再关联"(re-association,复用既有神经流形)假说的三个推论:(i)适应是否分布到远离控制单元的 PRR;(ii)非控制单元编码的是适应后的运动指令还是受扰的视觉反馈——用基线期离线训练的 Kalman 滤波解码器重构非控制单元在扰动期的"虚拟轨迹",投向扰动平面后按偏转方向区分三种假设(H1 不适应、H2 视觉样、H3 运动样);(iii)记忆/规划期的适应是否与运动期逐试次共变,且该关系是否随学习改变。
方法
两只恒河猴(Y 和 Z;正文与方法均未注明性别),左半球植入 32 通道浮动微电极阵列(FMA,MicroProbes):猴 Y 在 M1、PMd、PRR 各两枚(每区 64 电极),猴 Z 在 M1 两枚(64 电极)、PMd 与 PRR 各三枚(各 96 电极);PMd 瞄准臂区,M1 沿中央沟前岸不同深度,PRR 阵列覆盖 MIP 区域的 PRR 后部(短电极可能部分覆盖 5 区/PEc)。单 session 同时记录 128(Y)或 256(Z)电极;30 kHz 采样,250 Hz–7.5 kHz 带通,−4.5 倍 RMS 阈值,在线人工分选,离线用 BOSS 软件对非控制单元重新分选。立体 3D VR 装置为双显示器(BenQ 27 英寸,60 Hz)加 45° 半透半反镜的镜像式立体显示(非头戴显示器),工作空间投射到眼平面以下;四台 Vicon 相机 100 Hz 跟踪右手标记点,EyeLink 1000 Plus 以 2 kHz 监测注视。
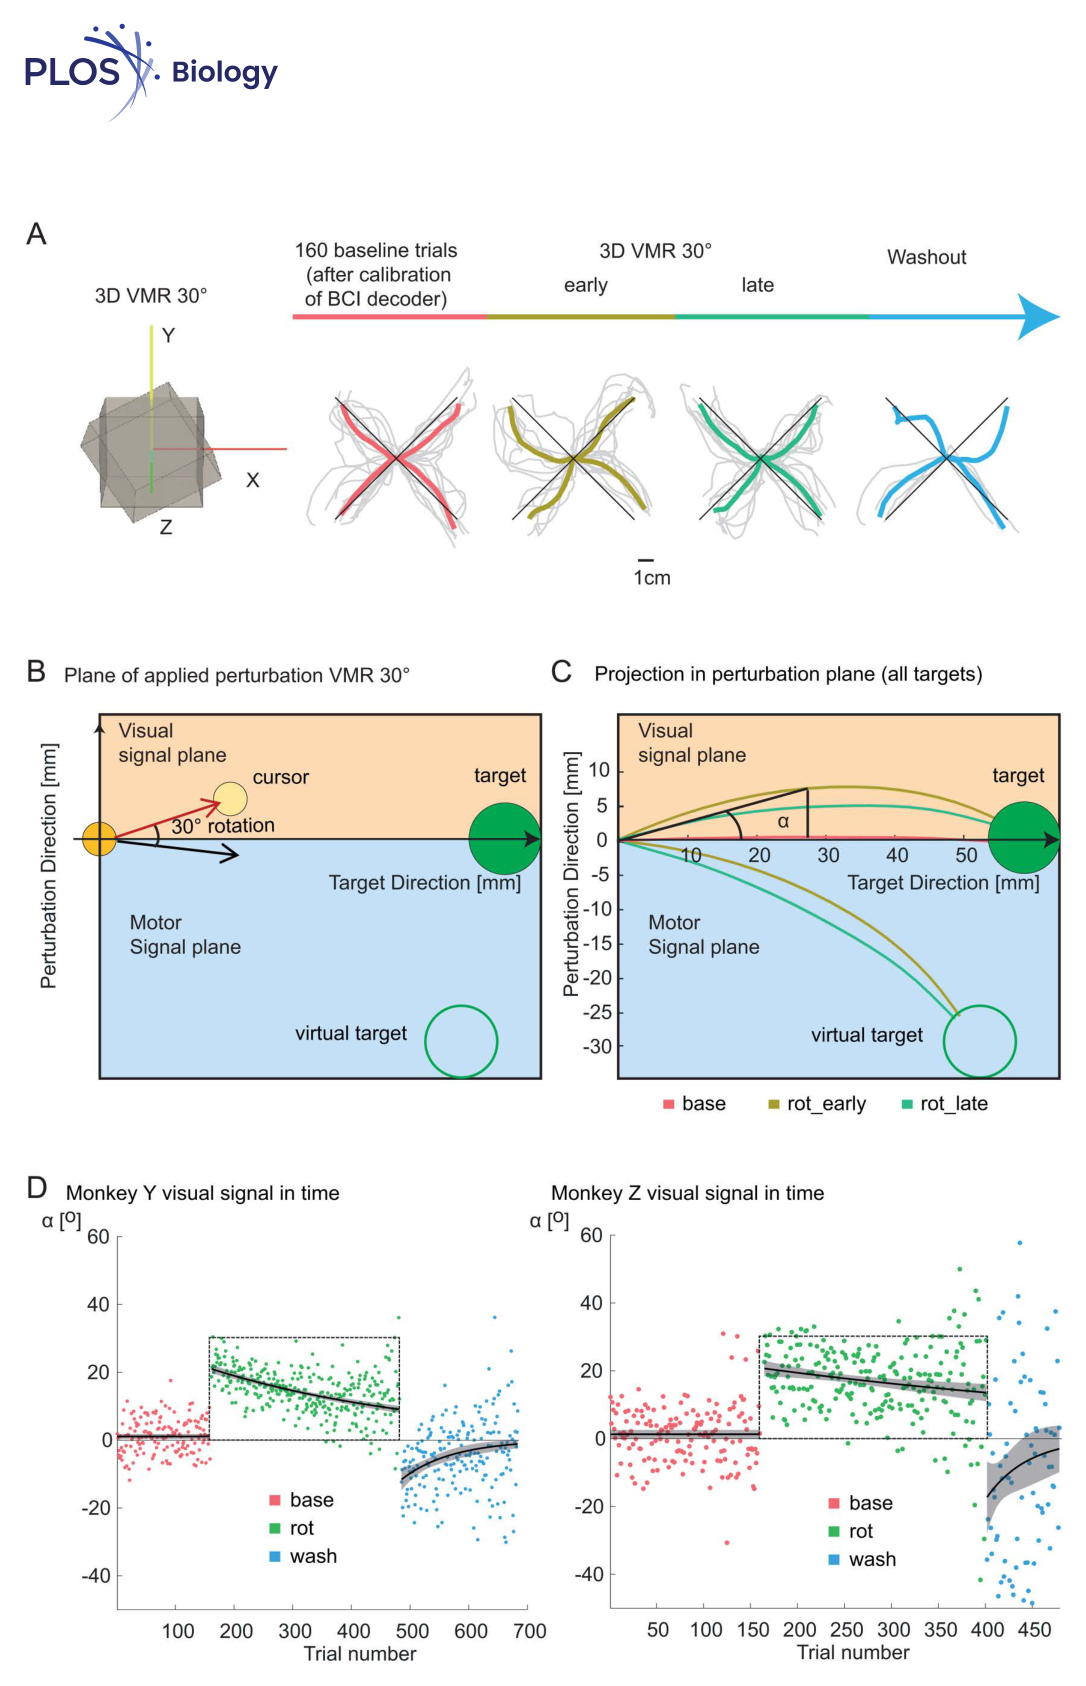
任务是记忆引导的三维 center-out 伸手:目标为以注视点为中心、边长 70 mm 立方体的八个顶点。试次流程为手+眼中央固定 400 ms → 目标提示 300 ms → 规划期 400 ms 加最长 600 ms 随机延迟 → go 信号 → 运动期(时限 1500 ms);固定期注视偏差超过 30 mm 或手偏离起点超过 15 mm 则试次中止。BCI 试次中手保持静止(残余手运动与光标速度的相关极低:Y,r=0.085;Z,r=0.072)。解码器为仿生速度 Kalman 滤波(50 ms 不重叠时间窗);每日先用约 60 个 MC 试次初始化,再经意向式再训练(目标方向速度向量)并逐步减少计算机辅助(70%→0%,每 20–30 试次一档)直至纯脑控。每个 session 先记录 160 个基线试次,随后施加 30° VMR(仅作用于额平行 X–Y 平面,深度方向不受扰;顺时针或逆时针按天固定;结果部分写 300 试次,方法部分写"最多 320 试次"),最后撤除扰动进入洗脱期直至动物停止工作。适应分析纳入猴 Y 51 个、猴 Z 15 个 session(洗脱期分别为 26 和 4 个 session)。仅分析成功试次。
主要结果
行为适应成立。 基线期角度误差(轨迹中点相对中心-目标连线的偏角)接近零且不随时间变化(指数拟合截距与衰减均不显著)。扰动引入后误差升至约 20°,随后指数式下降(Y:截距 20.99,p<0.001;Z:截距 20.69,p<0.001);洗脱期出现显著的负向后效(Y:−11.63,p<0.001;Z:−17.255,p=0.0018)。基线成功率:Y 的 MC 99% / BCI 89%,Z 的 MC 97% / BCI 85%。
流形结构保持,支持再关联而非网络重构。 用基线期主成分(前 4 个 PC)计算 alignment index,晚旋转期与交叉验证基线之间的平均差异在所有神经群体中小于 1%(S2 图),提示 VMR 适应在既有神经流形内完成。
非控制的 M1-PMd 单元编码运动样适应。 离线重构的非控制单元轨迹在晚旋转期显著偏向运动信号平面(运动终点偏转:Y −8.69 ± 4.43 mm,均值±SD,t(50)=−14.010,p<0.001;Z −9.88 ± 5.27 mm,t(14)=−7.250,p<0.001),即与控制单元一样是"运动指令"而非"视觉反馈"。以控制群体最终适应量为基准的"相对增益",M1-PMd 非控制群体在 Y 达 59%、在 Z 达 94%。单神经元偏好方向(PD)在 M1 与 PMd 均出现系统性旋转(S4 图)。
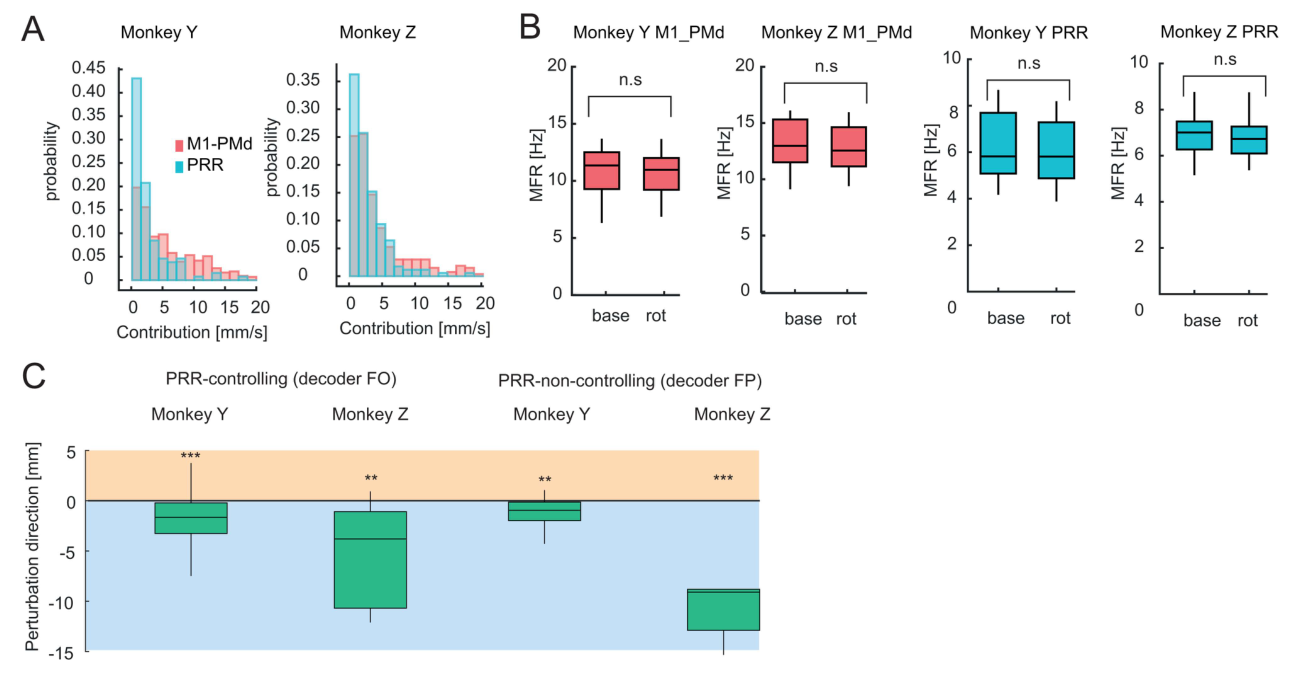
PRR 无论是否接入解码器都表现运动样适应,但幅度较小。 FP 配置下 PRR 与 M1-PMd 对解码输出的贡献分布差异不大(Cohen's d:Y 0.67,Z 0.38),且适应期平均发放率相对基线无显著下降(Mann–Whitney,p>0.05),排除了"PRR 被静默"的解释。PRR 重构轨迹的终点偏转在两种配置下均显著为负(Y:FP −1.64 ± 1.56 mm,t(10)=−3.48,p=0.006;FO −1.85 ± 2.25 mm,t(39)=−5.20,p<0.001;Z:FP −10.90 ± 2.87 mm,t(4)=−8.49,p=0.001;FO −5.18 ± 5.08 mm,t(4)=−12.37,p=0.0001)。相对增益:PRR 控制单元 Y 13% / Z 64%,非控制单元 Y 14% / Z 37%。注意猴 Z 的 FO 数据存在内部不一致(均值 −5.18、SD 5.08、df=4 与 t=−12.37 不能同时成立,见讨论)。
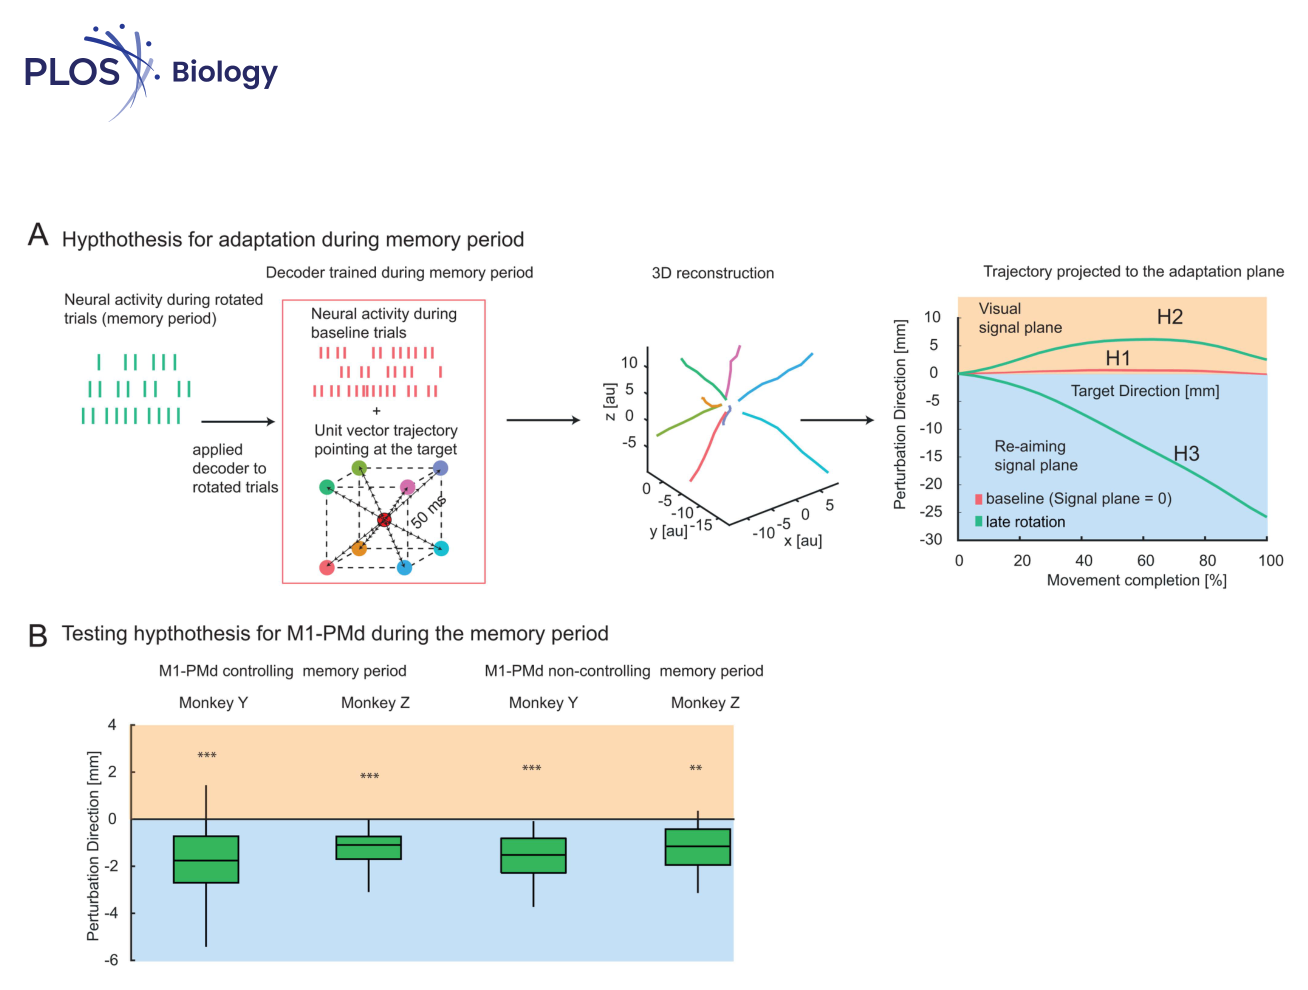
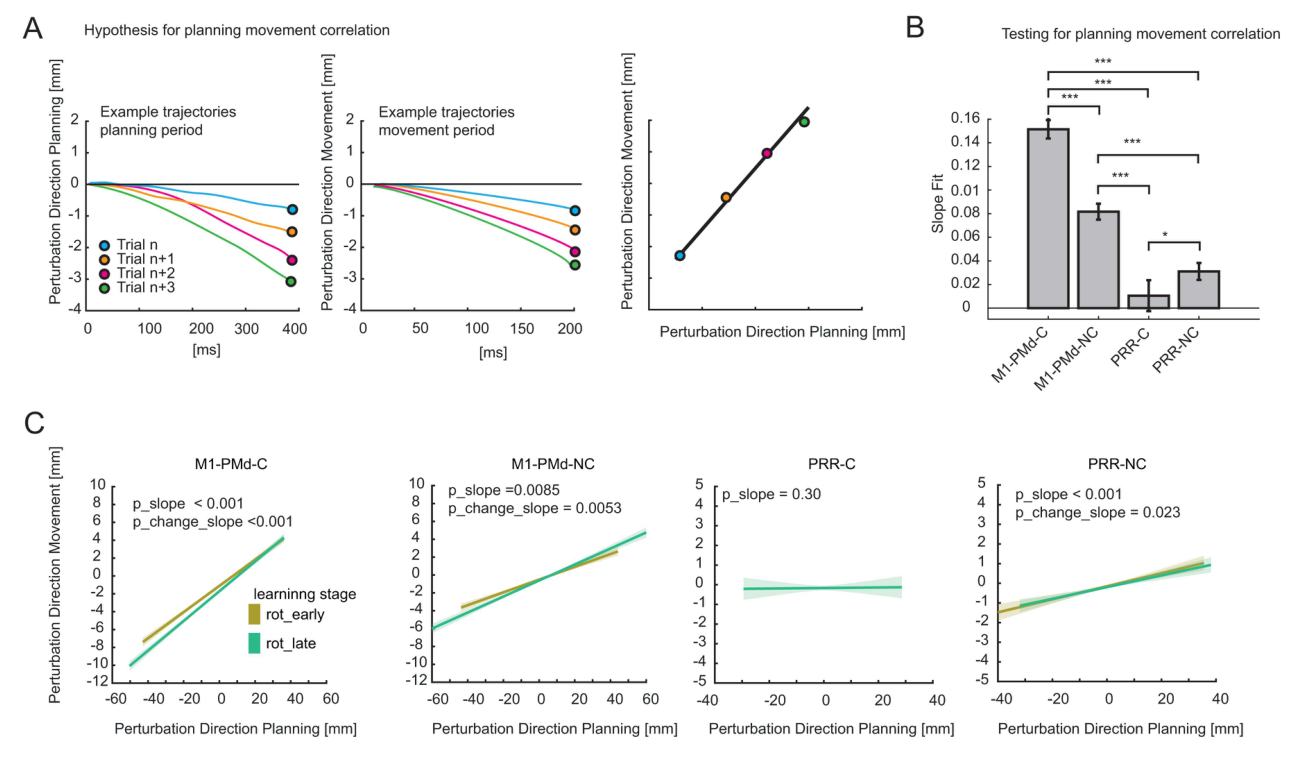
规划期已携带适应,且规划-运动关联随学习演化。 用记忆期(go 前 400 ms,50 ms 分箱,以指向目标的单位向量回归)离线解码发现,M1-PMd 控制与非控制单元在规划期即表现显著的负偏转(运动样再瞄准);PRR 仅在部分群体显著(Y 的控制单元、Z 的非控制单元显著,另一组为不显著趋势,S6 图)。规划期偏转与运动后 200 ms 偏转的逐试次混合效应回归显示:M1-PMd 控制(p<0.001)、M1-PMd 非控制(p=0.0085)与 PRR 非控制(p<0.001)斜率显著,PRR 控制单元不显著(p=0.30);各群体斜率两两比较均显著(额叶斜率最大)。斜率还随试次数变化——M1-PMd 控制与非控制的规划-运动关联随学习增强(交互作用 p<0.001 与 p=0.0053),PRR 非控制反而减弱(p=0.023),PRR 控制无变化(p=0.4)。作者据此认为学习后期同样的规划期适应能驱动更大的运动修正,额叶的"传递效率"高于顶叶。
逐图解读
来源:原文 Fig. 1,PDF 第 5 页(图注跨第 5–6 页)。
图 1 · 装置、任务与两种解码方案。 (A) 镜像式立体 3D VR 装置:双显示器经 45° 半透镜产生双眼视差,四台红外动捕相机跟踪手部反光标记,红外眼动仪监测注视——这是"三维虚拟反馈"的物理实现,但动物注视的是镜面虚像而非头戴式沉浸显示。(B) 试次时序:固定 400 ms、提示 300 ms、规划期 400–1000 ms、运动期最长 1.5 s;目标为立方体八个顶点之一,规划期目标已消失,这是全文把"规划"与"执行"分开分析的实验基础。(C) 猴 Y 一个 session 的 BCI 控制三维轨迹示例,八方向中心出发、总体可直达目标,说明每日重校准后的基线控制质量。(D) 两种解码器:FO 只接 M1+PMd 子集(PRR 全部断开),FP 额外接入全部 PRR 单元。这张图定义的 controlling/noncontrolling 身份是后文所有"远端适应"论证的前提。
来源:原文 Fig. 2,PDF 第 7 页(图注跨第 7–8 页)。
图 2 · VMR 范式与行为适应。 (A) 扰动只加在额平行 X–Y 平面(Z 轴即深度方向不受扰),协议为 160 基线试次 → 30° VMR → 洗脱,下方示例轨迹显示基线直、早旋转弯向扰动方向、晚旋转变直、洗脱反向弯曲的典型过程。(B) 扰动平面的定义:虚线圆为"虚拟目标"(抵消扰动所需瞄准的方向),零线以上属视觉信号平面、以下属运动信号平面——这个坐标约定是全文的读图钥匙。(C) 跨目标旋转对齐后的平均光标轨迹与"运动信号"轨迹(同一神经活动经未扰动解码器的输出),两者的分离就是视觉反馈与运动指令的分离。(D) 逐试次角度误差:两只猴都在扰动开始时跳到约 20°、指数衰减、洗脱期反号。支持"动物确实在 BCI 下完成了 VMR 适应"。注意图注写"扰动角接近 30°",而正文报告的初始误差约 20°、指数拟合截距约 21°——图注措辞偏松,以正文数字为准。
来源:原文 Fig. 3,PDF 第 9 页。
图 3 · 离线解码逻辑与 M1-PMd 非控制单元的答案。 (A) 分析管线:用基线期真实光标轨迹训练 KF 解码器,再把它施加到旋转期非控制单元活动上,重构"这些神经元以为自己在做什么"的虚拟轨迹并投向扰动平面;三种假设一目了然——H1 不适应(零偏转)、H2 视觉样(正偏转)、H3 运动样(负偏转)。基线期视觉与运动信号重合,所以只有扰动期才有区分效力。(B) 两只猴的 M1-PMd 非控制单元在晚旋转期都稳定偏入运动信号平面(绿线,阴影为 bootstrap 置信区间)。(C) 运动终点偏转箱线图,两猴均显著小于零(***)。这是全文核心结果:不驱动光标的邻近神经元同样按"适应后的运动指令"改变活动,与再关联假说"网络结构不变、邻近单元协同改变"的推论一致。图中面板标题有"Hypthothesis"拼写错误(原文如此)。
来源:原文 Fig. 4,PDF 第 11 页。
图 4 · PRR 的贡献控制与适应方向。 (A) FP 配置下每个控制单元对解码速度的贡献(回归向量范数加基线发放)分布:PRR(青)众数低于 M1-PMd(红)但分布重叠,Cohen's d 0.38–0.67,说明 PRR 在 FP 解码器中具有实际贡献。(B) 基线与晚旋转期平均发放率无显著差异,排除"某区域被静默"。(C) PRR 重构轨迹的终点偏转,四组(两猴 × 控制/非控制)全部显著为负(/*),即 PRR 无论是否接入解码器都表现运动样适应。但本面板标题疑似印反:图中标注"PRR-controlling (decoder FO)"与"PRR-non-controlling (decoder FP)",而按图 1D 的定义 FO 时 PRR 全部断开(应为非控制)、FP 时接入(应为控制);对照正文数值(Z 的 FP −10.90 mm、FO −5.18 mm)与图中箱体大小,左侧组实为 FO(非控制)、右侧组实为 FP(控制)。阅读时应按正文定义理解,这属于原文图表标注的内部矛盾。
来源:原文 Fig. 5,PDF 第 13 页。
图 5 · 记忆期解码:规划期已出现再瞄准。 (A) 与图 3 相同的离线思路,但训练标签改为始终指向目标的单位向量(而非瞬时速度),把记忆期活动逐 50 ms 解码成"假想瞄准方向",再累积成假想轨迹投向扰动平面;此时运动信号平面改称"Re-aiming signal plane"。基线期解码终点经八选一分类器验证与提示目标一致(S5/S6 图),说明方法本身有效。(B) M1-PMd 控制与非控制单元在两猴的规划期终点偏转均显著为负(/*)。支持判断:适应不是运动开始后才由反馈驱动的在线修正,而是在规划期就写入了神经状态——与"初始状态更新"的动力系统图景一致。PRR 的规划期结果较弱(仅部分群体显著,S6 图),主图未展示。
来源:原文 Fig. 6,PDF 第 14 页。
图 6 · 规划-运动的逐试次传递及其随学习的变化。 (A) 分析示意:把规划期末(go 前 400 ms)的偏转与运动早期(go 后 200 ms,选取该窗口是为减少在线反馈修正的影响)的偏转逐试次回归。(B) 四个群体的回归斜率:M1-PMd 控制最高(约 0.15),M1-PMd 非控制次之,PRR 控制接近零且不显著,PRR 非控制低但显著;两两比较均显著(Bonferroni 校正)。斜率单位为任意值(两期解码方式不同),只有相对比较有意义。(C) 学习前半段(黄)与后半段(绿)的分段拟合:M1-PMd 两个群体的斜率随学习变陡,PRR 非控制反而变缓,PRR 控制始终平。支持"规划期初始状态的适应被传递为运动期的修正",且额叶的传递效率随学习提高;顶叶的弱且方向相反的演化提示两区适应轨迹不同。
讨论与解读边界
本文的主要价值在于用 BCI 把视觉反馈从本体感觉中解耦,并同时记录控制单元与非控制单元、额叶与顶叶,从而证明快速 VMR 适应是分布在额顶网络中的、以运动参照系为主的再关联。这与库内证据互补:C01 Paz 2003 在手动局部旋转学习中看到 M1 准备期活动改变,A03 Stavisky 2017 显示视觉增益相关的内模型状态在运动前即可读出,C07 Vyas 2018 看到 BCI 旋转学习伴随准备期群体状态偏移并可部分迁移到真实手臂;本文把"准备期已携带适应"这一点扩展到了 PRR,并给出规划-运动逐试次传递的定量关系。相对 B07 Orsborn 2014 关注的解码器参数适应,本文的解码器在适应期内固定,神经侧的变化被分离得更干净。
需要保留的边界:
- 不是沉浸式 VR 拦截研究。 本文使用 Gail 实验室镜像式立体 3D 显示加 3D VMR 范式,任务是记忆引导的 center-out 定点伸手;它证明"猕猴+三维虚拟反馈+上肢+额顶多区记录"可行且已有先例,但不涉及沉浸式头戴 VR、运动目标拦截或在线拦截控制。
- 显性与隐性策略无法区分。 连续视觉反馈的 VMR 在人类研究中常被认为以隐性再校准为主,但本文任务含 400–1000 ms 规划期,给显性再瞄准留出了时间窗;作者明确表示不能排除显性策略贡献。
- n=2 只动物,且 PRR 部分结果跨动物不一致(相对增益 13%/64%、规划期显著性的群体归属都不同),不宜概括为稳定的区域差异规律。PRR 记录产额较低,FP 配置中 PRR 控制单元始终与 M1-PMd 子集混合,"PRR 单独能否驱动适应"未被检验。
- 非控制单元的结论是离线解码层面的。 重构轨迹的偏转说明这些单元携带运动样信息,不构成它们参与因果驱动的证据;控制单元的因果性也只是"接入解码器"这一操作意义上的。
- 原文存在若干内部不一致(见下),不影响主要方向,但引用具体数字时需以正文为准。
待核实项(原文内部矛盾):
- 图 4C 面板标题中 controlling/noncontrolling 与 FO/FP 的对应与图 1D 定义及正文数值相反,疑似标注互换。
- 猴 Z 的 PRR 非控制(FO)终点偏转报告为 −5.18 ± 5.08 mm、t(4)=−12.37、p=0.0001:由均值与 SD 推算 t 应约为 −2.3,三者不能同时成立;同段其他三组的 t 值均与均值、SD、自由度自洽。
- 扰动期试次数:结果部分写 300 试次,方法部分写"最多 320 试次"。
- 图 2D 图注写"扰动角接近 30°",正文报告初始误差约 20°(指数拟合截距约 21°)。
思考问题
- 把规划期压缩到约 250 ms 以下(人类研究中足以抑制显性再瞄准),或改用误差钳制(error clamp)反馈,规划期的运动样偏转是否仍出现?这能区分本文的规划期适应是隐性再校准还是显性瞄准策略。
- 扰动改到深度轴或斜交轴(人类 VMR 中更难学的方向)时,PRR 是否仍按运动参照系适应,且流形对齐是否仍保持在 1% 以内?若不保持,说明本文的 within-manifold 结论依赖扰动平面选择。
- 用 PRR-only 解码器(或在 FP 中严格匹配各区域贡献)重复实验,PRR 控制单元的规划-运动传递是否恢复显著?这能判断图 6 中 PRR 控制斜率近零是区域特性还是贡献稀释所致。