B06 · Learning to control a brain–machine interface for reaching and grasping by primates
Carmena, J.M., Lebedev, M.A., Crist, R.E., O'Doherty, J.E., Santucci, D.M., Dimitrov, D.F., Patil, P.G., Henriquez, C.S., & Nicolelis, M.A.L. (2003). PLoS Biology, 1, e42. doi:10.1371/journal.pbio.0000042
猕猴可利用额顶叶群体活动控制包含平面位移和握力的 BMI,学习伴随调谐与群体相关变化。装置具有多自由度,并不意味着实验同时解码了全部机械臂自由度或自然手形。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
在皮层内 BMI 的早期研究中,关键问题不仅是能否从神经活动预测手部运动,还包括这种预测能否驱动真实执行器并支持持续学习。离线回归即使能重建轨迹,也可能在接入机械臂后因延迟、惯性和视觉反馈改变而失效。控制对象从光标扩展到带夹爪的机械臂后,研究者必须同时处理运动参数读出、执行器响应、反馈延迟和动物对映射的适应。由此,开环预测精度与闭环可用性成为两个不同层级的指标。
伸手与抓握还提供了不同类别的控制量。平面位移和速度描述手在空间中的运动,握力则决定何时以及如何对物体施力。自然上肢动作往往不是各自由度同时改变,而是先到达物体,再逐步增加握力。若同一神经群体能在这种序列中支持不同参数,才能说明 BMI 不只是重复单一光标运动。不过,机械臂硬件具有多个自由度,并不意味着实验实际解码了全部关节或恢复了自然手形;评价时必须明确哪些变量被估计、哪些只是装置能力。
Carmena 等在这一背景下用额顶叶群体活动训练线性预测器,再把杆控切换到脑控,并接入机械臂形成视觉闭环。研究分别检验位置、速度、握力及二者的组合,比较不同脑区与单元规模的贡献,同时追踪调谐、跨单元相关和跨日表现。它要回答的是:神经群体能否支持多维上肢控制,闭环练习能否稳定性能并伴随特异的学习变化,以及执行器动力学是否可能参与这种重组。本文为后续 BCI 研究奠定了工程与生理框架,但二维位移加一维握力仍不是完整自然抓握,肌电抑制也不等于身体所有权或全部肌肉活动的消失。
研究思路
作者以杆控记录训练线性预测器,再切换到脑控并引入机械臂闭环。行为表现、神经元贡献、方向调谐和相关结构用于描述控制及学习变化。机械臂的硬件自由度应与实际解码和控制维度分开报告。
方法
两只成年雌性恒河猴,使用左手操作操纵杆。微电极阵列(由 16–64 根不锈钢微丝构成,微丝间距 300 μm)植入双侧大脑皮层 M1、PMd 与 SMA,猴 1(共 96 根微丝)额外植入 S1,猴 2(共 320 根微丝)额外植入后顶叶内侧顶内区(MIP);神经信号由 512 通道 Plexon 数据采集系统同步记录。单日稳定记录规模达到 90 个单单位加 95 个多单位(猴 1),以及 75 个单单位加 175 个多单位(猴 2),群体记录可在数周至数月内保持稳定。解码器采用多元线性维纳滤波器(Wiener filter):时间分箱为 100 ms,利用过去 10 个时间窗(共 1 秒)的神经放电率线性组合预测各项外周运动学与动力学参数;脑控模式下预测速度经实时积分输出为空间位置坐标(引入 2 Hz 高通滤波以防止漂移累积)。离线状态下曾测试卡尔曼滤波、归一化均方误差(NLMS)及前馈人工神经网络,未表现出相对于维纳滤波器的稳定统计优势。机械臂经 CAN 总线以 60 ms 刷新周期与控制器通信,算法计算至机械末端响应的硬件延迟约为 60–90 ms,屏幕光标实时映射机械手末端 x/y 空间位移,光标圆形直径反馈夹爪受力传感器的输出。行为基线采用基于蒙特卡洛随机游走算法模拟的虚拟轨迹(速度范围 1–500 mm/s,每个速度测试 10000 次试次)。空间方向调谐划分为 8 个方向区间并执行 z 分数标准化,调谐深度(DTD)定义为标准化调谐曲线的极差;神经元剔除分析在每个单元规模梯度下重复抽样 30 次。
主要结果
行为测试表明,两只猕猴在三项任务中的脑控操作表现均接近手动操纵杆水平,且显著优于蒙特卡洛随机游走基线;进入完全脑控后,动物肢体运动趋于平息,腕屈肌、腕伸肌与肱二头肌的肌电活动显著减弱(手动操作与脑控状态下的肌电标准差之比分别为 14.67、9.87 与 2.77)。实体机械臂首次接入实时控制环路时,操作性能出现暂时性下降,但在约 7 个训练会话后逐步恢复至基线水平。在线固定参数条件下,线性预测器在持续超过 1 小时的连续记录中保持稳定(握力预测相关系数 R = 0.84±0.005,位置预测 R = 0.63±0.003,速度预测 R = 0.73±0.005),表明持续视觉反馈对系统闭环具有稳定作用。
解码能力的系统评估界定了线性模型对多维参数的拟合上限:在充分训练的动物中,线性模型分别解释了手部位置方差的 85%、速度方差的 80%、握力方差的 95%,以及多肌肉肌电信号方差的 61%。神经元剔除分析表明,所有记录脑区均包含被测运动参数的信息,但编码效率存在区域差异——M1 采样群体(33–56 个神经元)对各项参数的预测能力最高(解释位置方差的 73%、速度的 66%、握力的 83%);后顶叶对握力的预测贡献相对突出(解释方差 73%);SMA 对运动学参数具有预测能力(位置与速度各解释 51%),但对握力的预测贡献较低(19%)。对于大多数参数,通常需要随机抽取 30 个以上的神经元才能形成可用的预测性能。单单位放电的预测性能比多单位高出 17–20%,增加约 30 个多单位记录通道能够弥补 20 个单单位的性能差额。
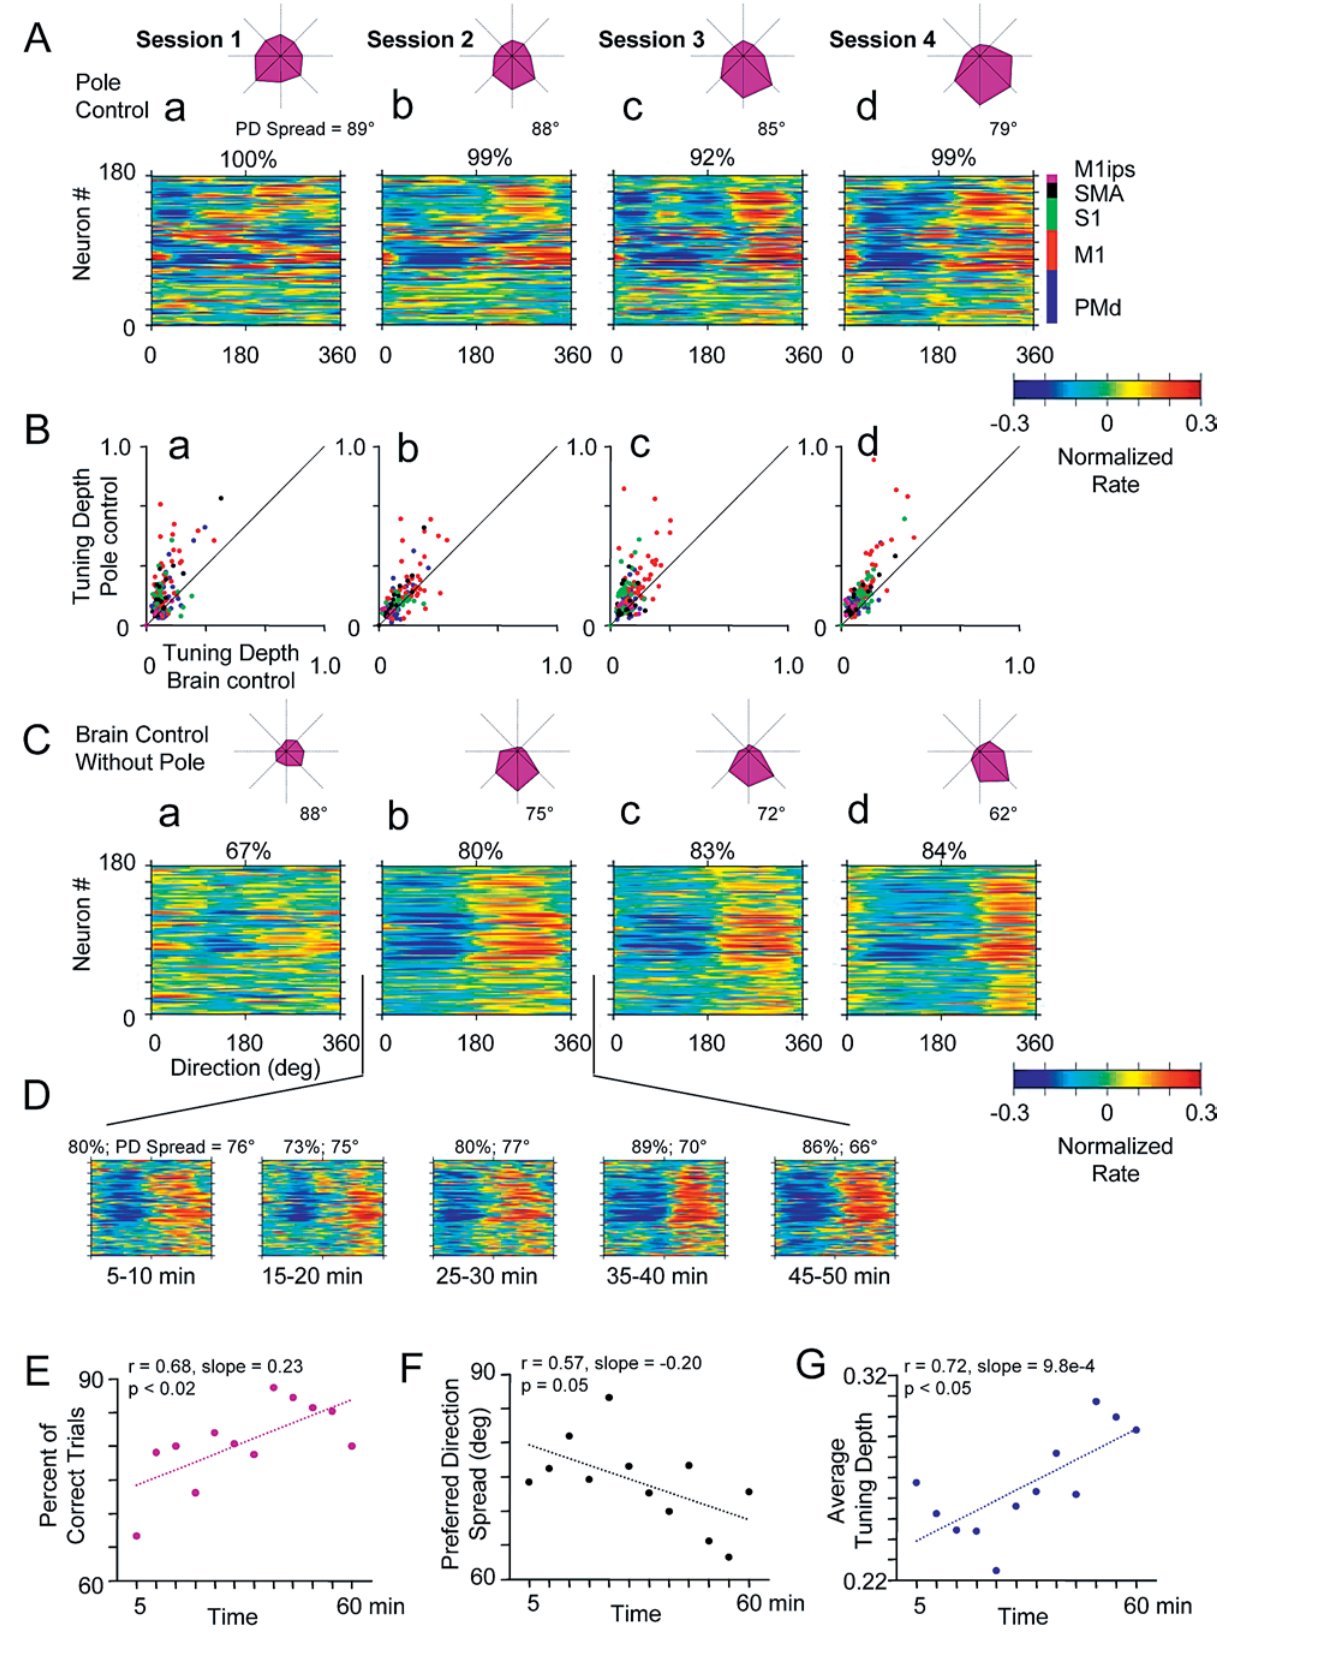
神经可塑性追踪揭示了学习过程中的皮层表征演化。在连续 42 个实验会话的追踪中,单个神经元对位置模型预测的平均贡献呈现持续上升(跨会话平均 R = 0.80, p < 0.001),训练晚期 SMA、PMd 与 S1 的贡献度逐步接近初始阶段即占主导的 M1;而同一群体对速度模型的预测贡献未发生显著变化(R = 0.05)——该时期脑机接口实际部署的正是位置解码模型,表明可塑性强化集中于直接参与控制输出的参数。切换至完全脑控后,神经元方向调谐深度普遍下降(68% 的神经元调谐深度降低,14% 维持不变,18% 呈现升高);调谐曲线与手动操作模式的相关系数由伴随手臂运动时的 0.70 下降至无手臂运动时的 0.48。在跨会话尺度上,脑控条件下的择优方向逐渐聚集为若干优势方向,群体平均调谐曲线向顺时针方向发生轻微偏转;在单个 60 分钟会话内部,调谐深度呈现自适应收敛与缓慢回升(但仍低于手动操作阶段)。与此同时,神经元对之间的放电相关系数均值由 0.02 增加至 0.06(p < 0.0001),该增长在 M1、S1、PMd 内部以及 M1 与 S1 之间尤为明显。
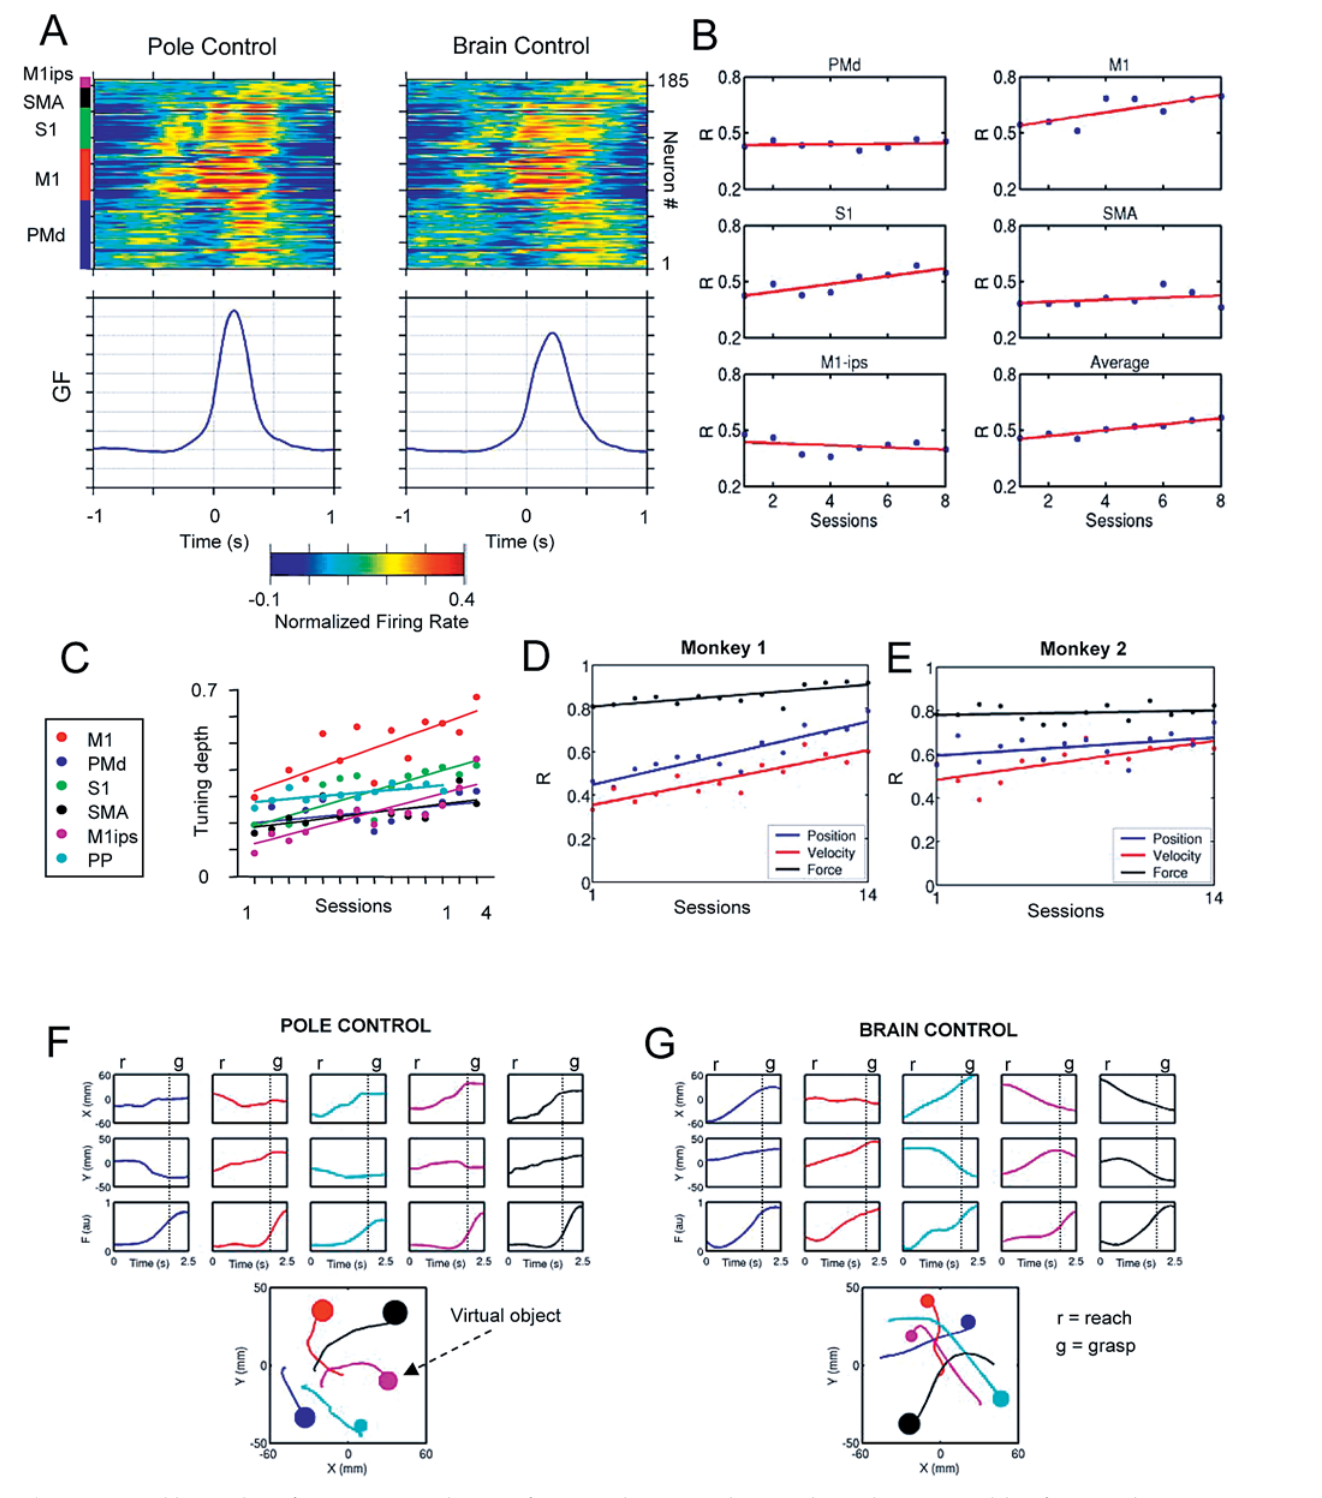
多参数整合任务展现了时间维度的控制结构。在纯握力控制任务(任务 2)中,动物经历 7 至 8 个会话即完成习得,期间 M1 与 S1 对握力模型的预测贡献显著上升(R 分别达到 0.77 与 0.85),PMd 与 SMA 未呈现相同的显著上升趋势。在位移与抓握串联任务(任务 3)中,手动操作阶段的调谐深度随训练呈近线性增长,M1 增幅最为显著;在 14 个测试会话中,空间位移与速度的实时预测稳步提升,握力预测维持在较高水平(猴 1 的 R = 0.86±0.04,猴 2 的 R = 0.79±0.03)。在行为轨迹结构上,无论处于手动操纵杆还是脑机接口控制模式,系统均呈现先完成空间到达(x/y 坐标变化而握力平稳)、到达后逐步建立抓握力(握力上升而位置坐标维持恒定)的运动序列,再现了自然伸手与抓握的协同控制模式。
逐图解读
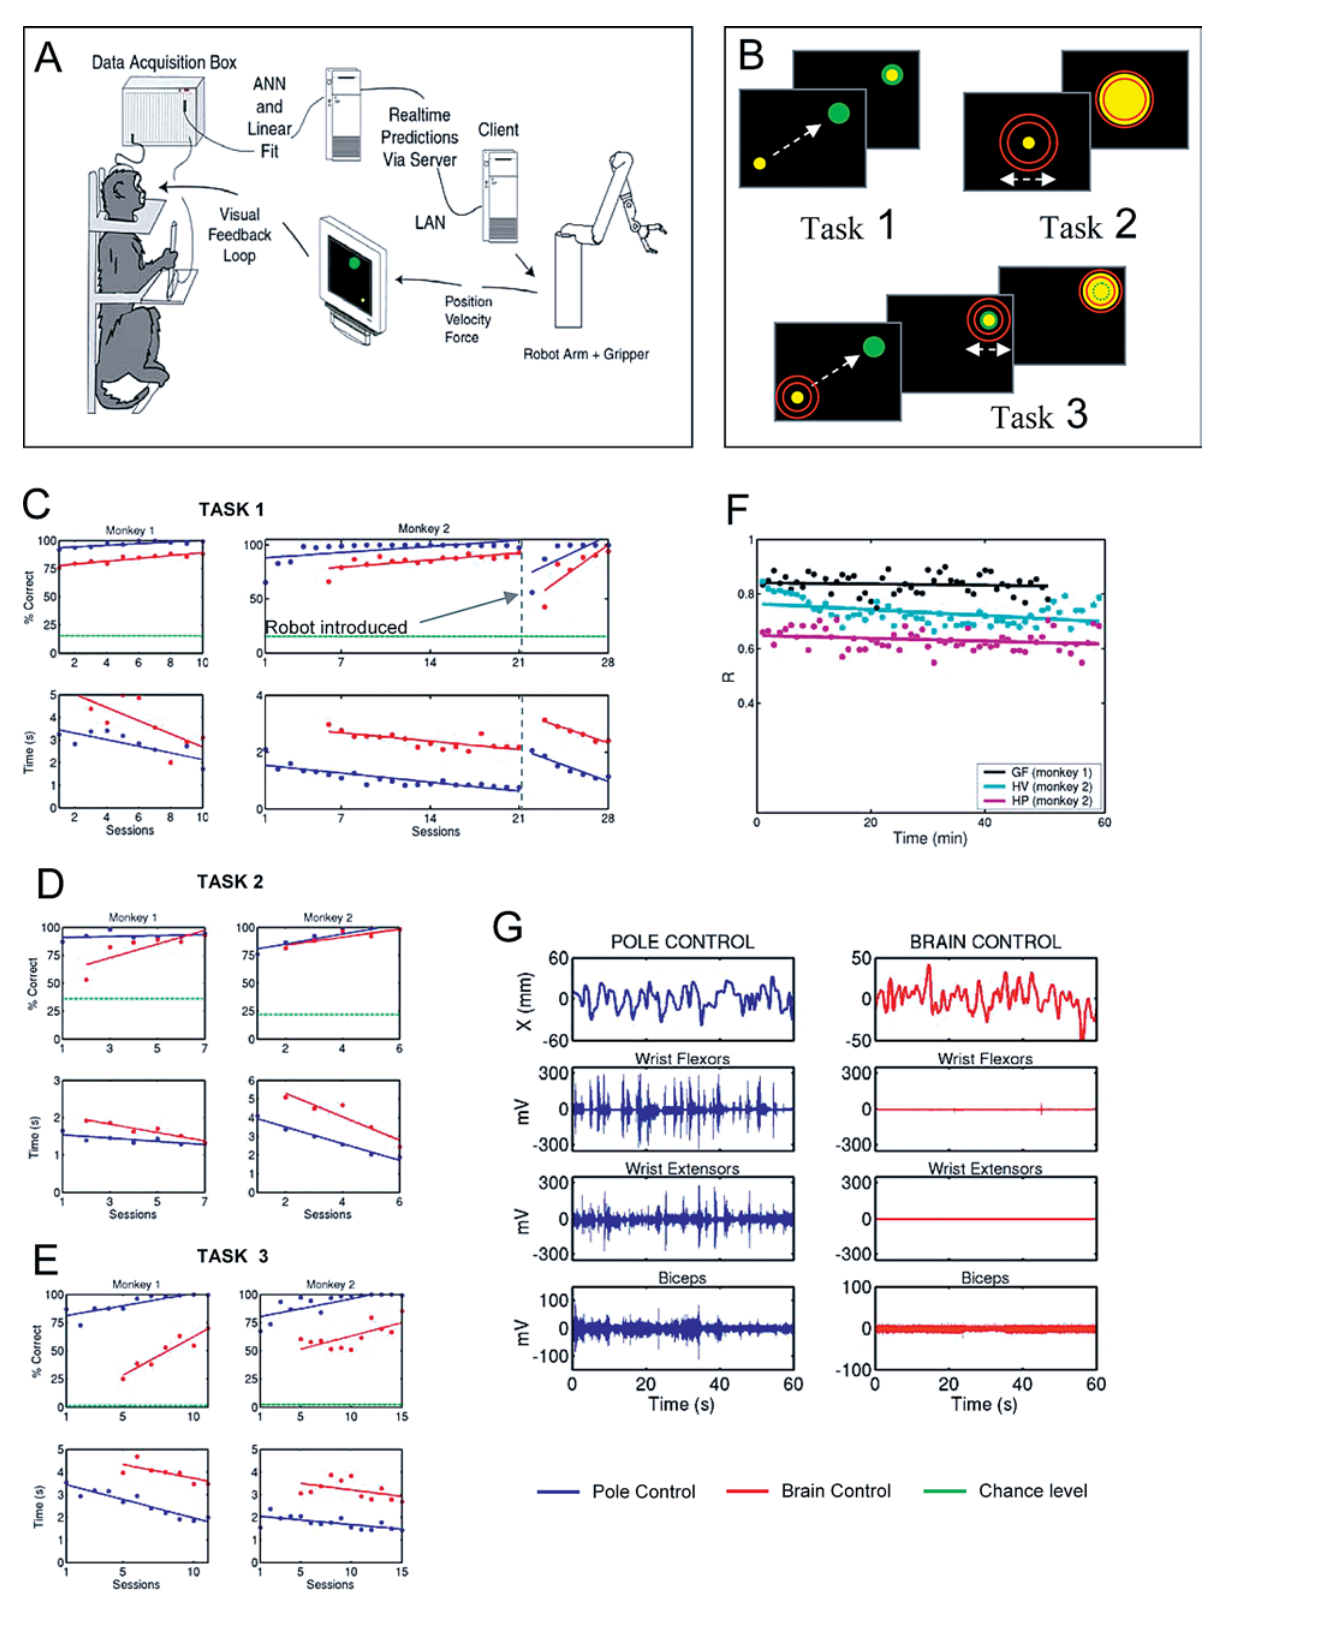
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 闭环脑机接口系统架构与行为学习曲线。 (A) 实时实验配置:包含多通道电生理记录系统、并行运行多个线性解码器的计算机集群、集成受力传感器的机械臂、视觉反馈显示器,以及配备力传感器的操纵杆。(B) 三项行为任务示意:任务 1 为光标到达,任务 2 为环形提示下的等长握力控制,任务 3 为到达与抓握的串联执行。(C–E) 两只猴在三项任务中的达标率与耗时演变:蓝色为操纵杆控制,红色为脑控,绿色虚线指示蒙特卡洛随机游走基准;实体机械臂引入闭环后(任务 1)引起初期性能波动,随后在约 7 个会话内恢复。(F) 固定解码权重条件下模型在长达 50 分钟的会话中输出保持稳定。(G) 完全脑控(无外周手臂运动)状态下的表面肌电信号监测。
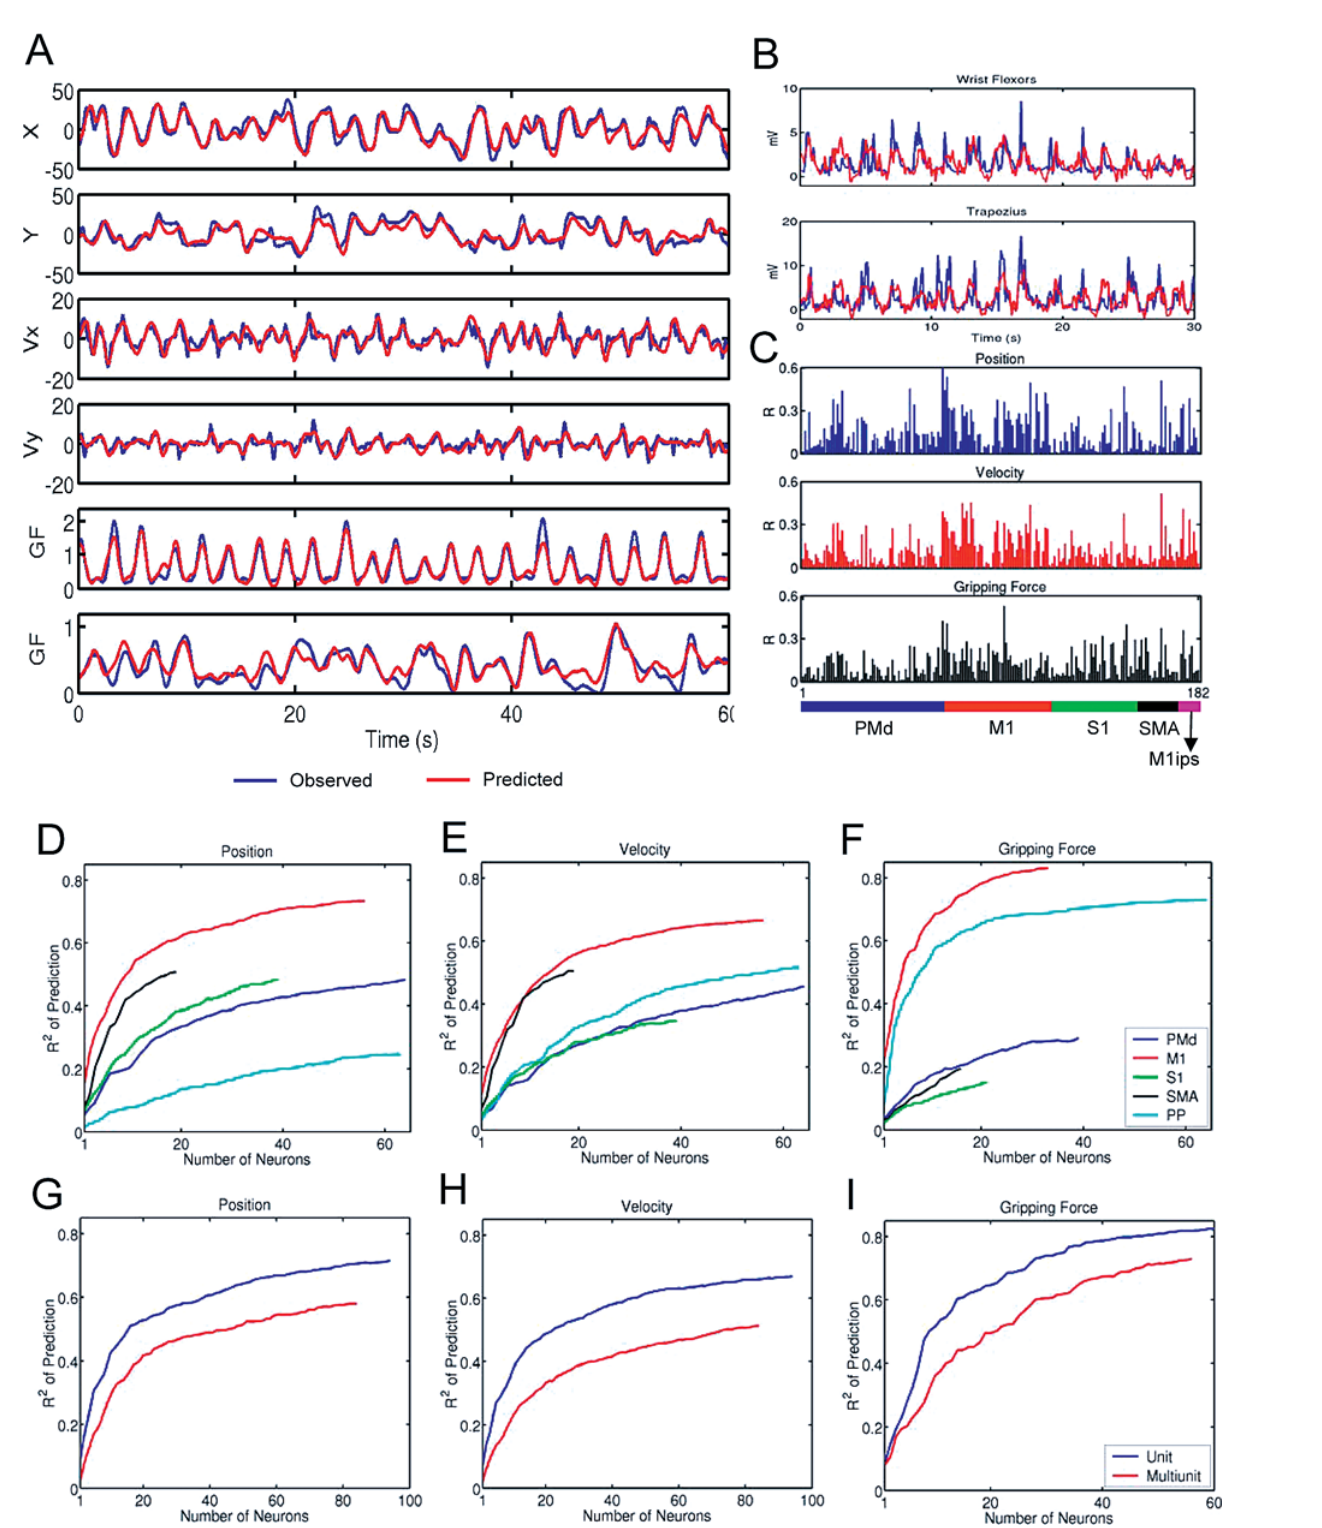
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · 线性解码模型对多参数的实时拟合表现与神经元贡献分布。 (A) 手部空间位置(HPx、HPy)、移动速度(HVx、HVy)及握力大小(GF)的实测值(蓝色)与预测值(红色)的时间曲线对比。(B) 目标肌群肌电信号实测与预测波形。(C) 单神经元对多维参数预测的贡献度矩阵(相关系数 R 伪彩色编码),表明多数记录神经元同时携带多维运动信息。(D–F) 按解剖皮层划分的神经元剔除分析曲线:M1 群体对各项参数的预测能力最高,后顶叶对握力的预测贡献相对突出,SMA 对握力预测较弱。(G–I) 单单位与多单位信号的预测能力对比。
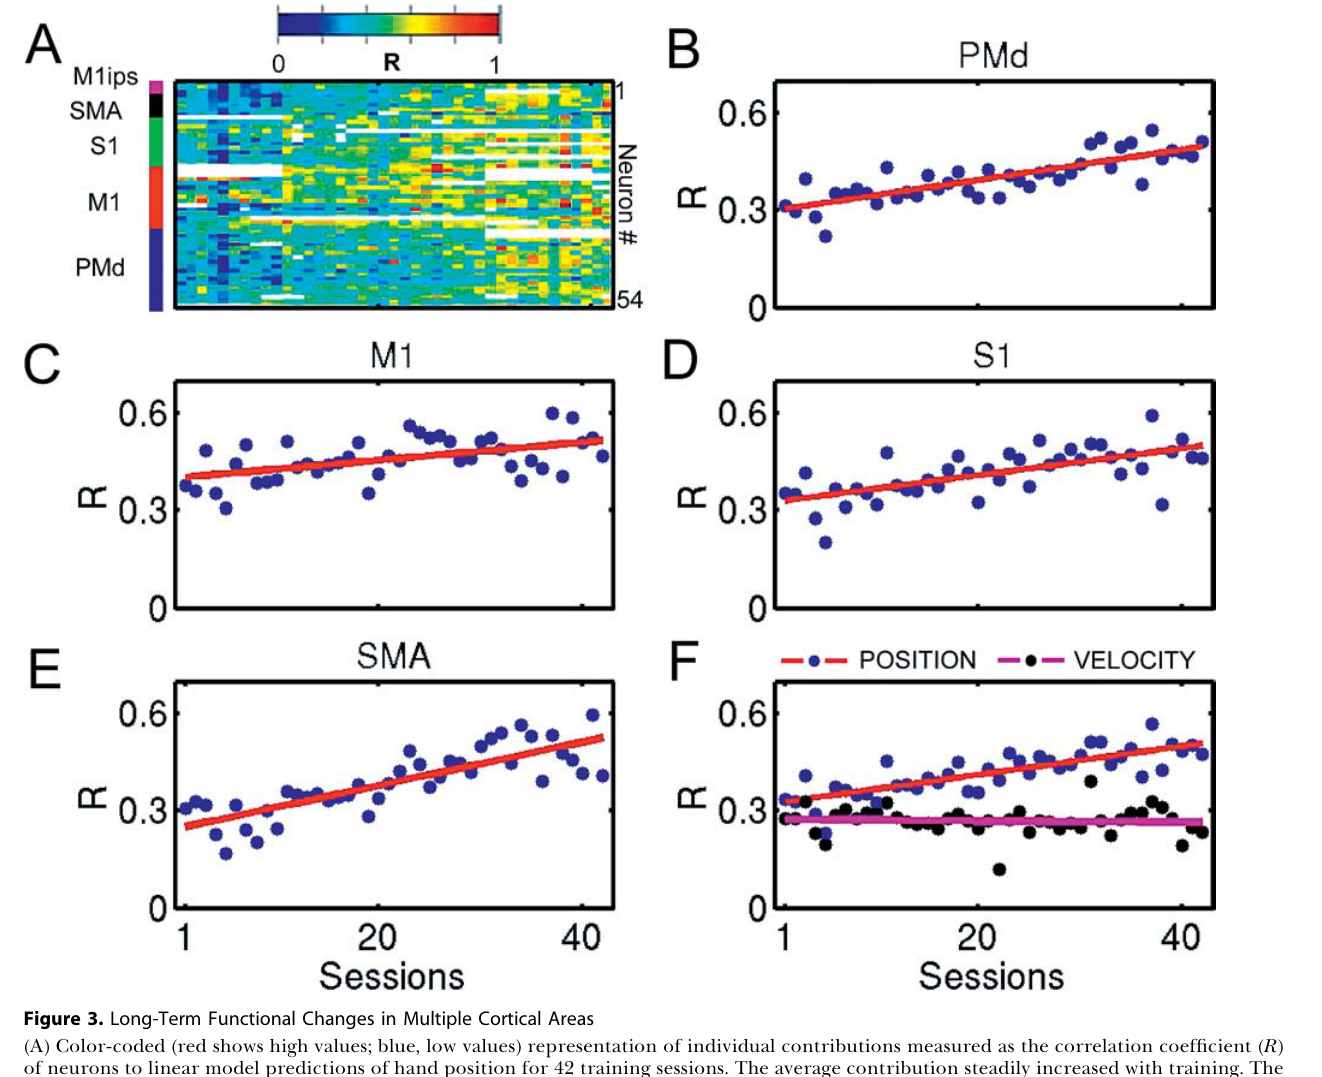
来源:原文 Fig. 3,PDF 第 7 页。
图 3 · 跨 42 个实验会话的皮层功能重构。 (A) 单个神经元对空间位置模型预测贡献度随 42 个训练日的变化矩阵(每行代表一个单元,按解剖皮层排列),整体贡献水平随时间呈上升趋势。(B–E) 各功能皮层区(PMd、M1、S1、SMA)平均预测贡献度的演变轨迹:初始阶段 M1 表现最高,随训练推进其余三区贡献逐步增长。(F) 全记录群体对位置模型与速度模型贡献度的演变对比:仅参与闭环在线控制的位置模型展现出显著线性增长,未参与控制的速度模型预测贡献保持平稳。
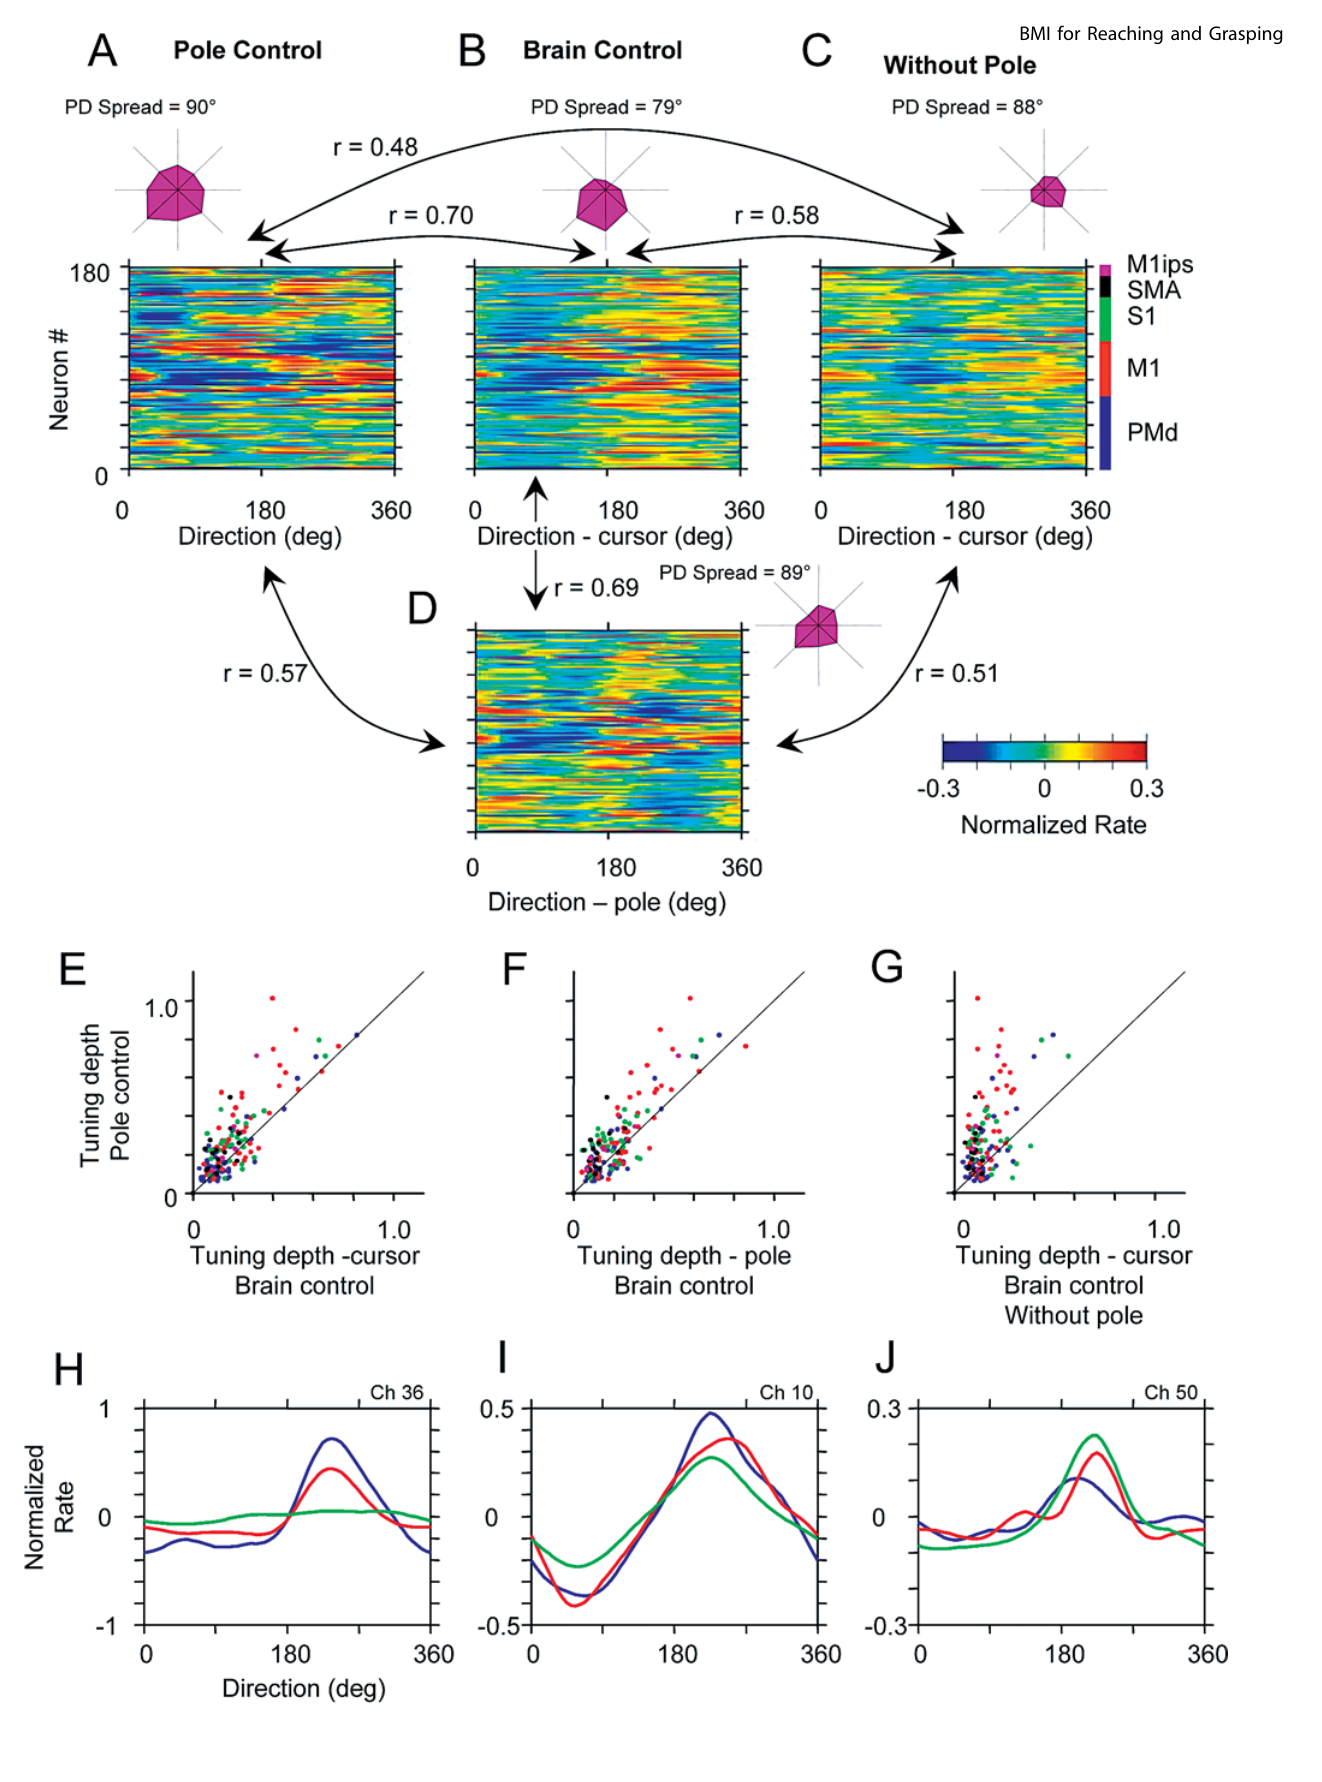
来源:原文 Fig. 4,PDF 第 8 页。
图 4 · 不同运动控制模式下的神经元方向调谐特征。 (A–D) 同一群体神经元在四种状态下的调谐矩阵与极坐标平均调谐曲线:手动操纵杆操作(A)、伴随肢体运动的脑控模式(以光标为参考坐标系,B)、无肢体运动的脑控模式(C)、以物理操纵杆为参考坐标系的脑控模式(D)。(E–G) 手动控制与脑控模式下调谐深度(DTD)的散点对比,脑控状态下调谐深度普遍减弱。(H–J) 三个典型神经元在不同控制模式下的调谐演化示例。
来源:原文 Fig. 5,PDF 第 10 页。
图 5 · 脑控技能习得过程中的方向调谐演变。 (A, C) 同一神经群体在连续四个训练会话中手动控制(A)与脑控(C)下的调谐曲线演化,脑控下的调谐峰值向优势方向聚集,极坐标平均曲线呈现顺时针偏转。(B) 手动控制与脑控调谐深度的逐日对比散点图。(D–G) 单个 60 分钟实验会话内部的动态微调(按 5 分钟时间窗切片):调谐离散度逐步收缩(D),控制性能同步提升(E),择优方向离散度降低(F),调谐深度呈现缓慢恢复(G)。
来源:原文 Fig. 6,PDF 第 12 页。
图 6 · 抓握力的群体表征与伸手抓握运动序列重构。 (A) 任务 2 中对齐握力起始点的刺激时间直方图(PETH),手动控制(左)与脑控(右)模式表现出高度相似的皮层时空激活模式。(B) 任务 2 学习期间各脑区对握力预测模型贡献度的演变,M1 与 S1 呈现显著增长。(C) 任务 3 手动训练期间六个脑区调谐深度的线性增长趋势。(D, E) 14 个测试会话中位置、速度与握力三类模型实时解码表现的演进轨迹。(F, G) 训练后期代表性到达与抓握轨迹(圆盘直径代表握力),显示无论在手动控制还是脑机接口驱动下,运动均表现为“先完成空间到达、到位后再施加抓握力”的两阶段时序特征。
讨论与解读边界
这项研究把运动参数解码、真实执行器和闭环学习联系起来。本文行为主要限制在二维位移与一维握力,伸手后用力的时序可以重现,但不能据此宣称完整自然抓握已得到恢复。文中“最多解释 85%、80%、95%、61% 的方差”分别对应位置、速度、握力及 EMG,不能改写为相同数值的相关系数 R。
学习中贡献度、调谐和相关结构的变化是重要观察,但与执行器动力学被“写入大脑”之间仍有推论距离。EMG 控制削弱了所测肌肉运动的解释;它既不测量所有肌肉,也不验证身体所有权。跨论文比较解码精度,还须匹配任务、变量、时间对齐与评估指标,不能据年份或单个 R 值判断某种算法全面优越。
思考问题
- 若保持视觉反馈与任务不变,只改变机械臂延迟或惯性,哪些神经变化可归因于执行器动力学?
- 从握力控制扩展到独立手指姿态时,原有神经群体和线性解码是否仍足够?