B03 · An intracortical brain-machine interface based on macaque ventral premotor activity
De Schrijver, S., Garcia Ramirez, J., Iregui, S., Aertbeliën, E., De Schutter, J., Theys, T., Decramer, T., & Janssen, P. (2026). Scientific Reports, 16, 8407. doi:10.1038/s41598-026-38536-1
在两只猕猴的二维 BMI 任务中,PMv/F5c 可提供有效的在线控制信号。与 M1、PMd 的比较受到有效通道数、任务和辅助算法影响,不能概括为所有条件下等效。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
皮层内 BCI 常以 M1 手臂区作为主要信号源,但电极可植入的位置、长期信号质量和可解码信息在不同个体中并不相同,因此有必要寻找其他运动相关脑区。腹侧前运动皮层(PMv,本文靶向 F5c)参与抓握,也包含动作执行与动作观察相关响应。这样的生理特点带来两个有吸引力但尚需验证的设想:PMv 是否能提供足够的在线控制信号,以及被动观察光标或机械臂运动时,是否更容易形成可用于初始化的神经表征。仅凭观察到“镜像样”响应,还不能推断该区域能独立完成闭环控制。
比较多个脑区必须尽量控制解码器、任务和记录条件,否则区域差异可能只是通道数、信号稳定性或算法辅助的差异。观察训练与真实闭环也不能混为一谈:离线拟合表现好,不代表动物能用同一信号完成实时到靶;换成拟真机械臂化身,也不一定比简单光标更有利,因为深度线索、任务时限和共享控制都会改变难度。区域间的长期进步还可能受到术后阵列恢复影响,而不是单纯反映动物学习。于是,同动物、同任务的轮换比较与对通道质量的追踪,成为解释结果的核心。
De Schrijver 等在同一批猕猴中植入 M1、PMd 和 PMv/F5c 阵列,统一采用基于 PSID 的解码管线,比较手部执行加观察、纯光标观察和虚拟机械臂等任务,并考察从训练相到解码相的单位选择性与群体子空间变化。研究要回答:F5c 能否支撑二维在线控制,观察数据能否提供可用初始化,以及各区域在闭环中的表征是否保持。它还检验 avatar 与辅助控制条件下的表现。由此,论文既是在评估一个新信号源,也是在检验“观察即可训练、拟真更有利”等常见预期;区域等效、无需重复校准或临床可用性都不能由这些结果直接推出。
研究思路
在同一批动物和任务中轮换使用M1、PMd和PMv信号,并尽量统一解码参数。观察训练、主动控制、光标或虚拟身体及辅助条件的比较,用于评估各区域的表现和由观察转入控制时的表征变化。
方法
两只成年雄性恒河猴(体重 8–10 kg,年龄 6–8 岁),头部固定,使用对侧手操作触屏,同侧手臂施加物理约束。三枚 96 通道 Utah 微电极阵列(微针长度 1.5 mm,电极间距 400 μm)依据立体定位坐标结合表面解剖标志植入 F5c(PMv)、F2(PMd)与 M1 手部代表区;术后经 3T 结构 MRI(空间分辨率 0.6 mm)确认阵列解剖位点,M1 手部代表区进一步通过皮层电刺激诱发对侧肢体抽搐予以确认。神经电信号经 Cerebus 系统(192 或 256 通道)以 30 kHz 采样率采集并经 750 Hz 高通滤波,直接使用负向阈值穿越事件作为多单位放电,未执行单神经元脉冲分选。基线任务为八方向中心向外触屏到达任务(时限 1500 ms),在此基础上衍生出三种实验范式:协同任务(Parallel task,猴子肢体执行触屏任务的同时,屏幕呈现橙色光标同步由中心移向外周目标,两者均需在时限内进入目标判定区方获奖励);被动光标任务(Passive cursor task,肢体完全静止,仅被动注视屏幕光标执行中心向外移动);被动虚拟机械臂任务(Passive avatar task,将抽象光标替换为 Kinova Gen3 虚拟机械臂,以第一人称视角呈现于屏幕右侧)。每个实验会话先完成约 200 次训练阶段试次(每个目标方向 25 次),利用单一脑区的放电数据训练初始解码器,随后进入闭环解码阶段。任务成功标准:光标或机械臂末端进入目标窗(光标任务半径为 2.75 cm,机械臂任务为 6 cm)并稳定停留 500 ms,单试次时限在光标任务为 4 s,在机械臂任务为 7.5 s。解码流程采用优先子空间辨识(PSID)结合非线性映射:放电率先按 50 ms 时间窗分箱,筛选与运动速度皮尔逊相关系数绝对值 ≥0.3 的运动敏感通道;利用 PSID 提取与外周行为紧密关联的低维潜变量状态,经径向基核函数(采用 Nyström 快速近似以确保实时性)进行非线性升维,最终通过岭回归实时输出二维速度向量,每步更新时间窗为 50 ms。在线解码阶段引入基于意图重标定的闭环再训练策略(将预测速度向量向真实目标中心方向投影旋转后更新模型权重),在光标任务中每 16 次试次、机械臂任务中每 8 次试次触发一次后台拟合,维护包含 200 次试次的先进先出(FIFO)数据缓存。猴 V 分别完成 42、33、39 与 26 个实验会话(对应协同、被动光标、被动机械臂及辅助机械臂任务),猴 L 完成 48、39、21 与 21 个会话,各脑区平均测试 11–12 个会话。眼动仪全程追踪视线注视点。
主要结果
实验证实 PMv/F5c 能够作为闭环运动脑机接口的有效控制信号源。在协同任务中,猴 V 使用 M1 与 PMd 在前三个会话中成功率即突破 55%,而 PMv 初期表现相对较低(卡方检验相对 M1 为 χ² = 55.79,相对 PMd 为 χ² = 191.81,p < 0.001);但随着训练进程,PMv 控制性能逐步提升,在实验后半段其成功率甚至显著高于 M1(p = 0.0095),两脑区均维持在 50% 以上;在肢体静止的被动光标任务中,PMv 的性能提升更为显著,后半段表现同时优于 M1 与 PMd(p < 0.001)。猴 L 整体任务成绩更高,PMv 在协同任务后半段的成功率追平 M1(p = 0.6516),略低于表现最优的 PMd。到达目标的速度方面,猴 V 在三个脑区之间无统计学显著差异;猴 L 使用 PMd 到达稍快(平均到达时间比 M1 快 87 ms,比 PMv 快 237 ms)。在无实际肢体运动的纯观察任务中,PMv 神经放电同样能够被解码出可用的运动意图,为感觉运动系统的无动作初始化提供了电生理证据。
在扩展条件与信号机制层面,研究呈现出进一步的边界特征。在虚拟机械臂任务中,改用拟真机械臂后所有脑区的解码成功率均显著下降(即使时限延长至 7.5 s 且目标窗扩大至 6 cm);猴 V 的 PMv 表现与 M1 相当(在速度制导场 RVGF 共享辅助下成功率约为 60%,p = 0.58),猴 L 的 PMv 则显著落后。作者推测这可能与平面屏幕缺乏立体双眼视差等真实空间深度线索有关。在神经信号层面的排查显示:尽管三枚阵列硬件规格相同,筛选出的运动敏感通道数量在脑区之间存在系统性差异(猴 V 的运动敏感通道在 PMv、M1、PMd 分别平均为 33、49 与 23 个;猴 L 分别为 29、52 与 45 个),且 F5c 控制成绩在数月间的爬升过程与该阵列记录质量随时间的自发改善(术后早期电极信号不稳定)高度吻合,表明性能演进中交织了电极组织界面恢复的物理因素。群体放电率、变异系数与 Fano 因子等信号指标在两只猴之间未表现出与任务成功率的稳定简单相关。
在神经表征层面,从被动动作观察阶段切换至主动闭环控制阶段,三个脑区的群体神经模式保持了较好的几何稳定性。单电极调制敏感度 d' 在两阶段间的相关性在协同任务中较高(猴 L:PMv 为 r = 0.87,PMd 为 0.80,M1 为 0.88);而在无肢体运动的被动光标任务中相关性显著下降(r 介于 0.12 至 0.25 之间),反映出协同任务中的高相关性部分来自外周肌肉运动与本体感觉的持续反馈。在被动光标任务中,闭环阶段新募集(方向选择性增强)的位点数量多于协同任务,且 PMv 的方向选择性重构幅度显著大于 PMd、与 M1 相当。利用子空间重叠度指标(alignment index)评估前 10 个主成分构成的低维状态空间,发现训练观察阶段与在线控制阶段的群体动力学子空间呈现高度重合,且在三个脑区及两种任务中均维持稳定。
逐图解读
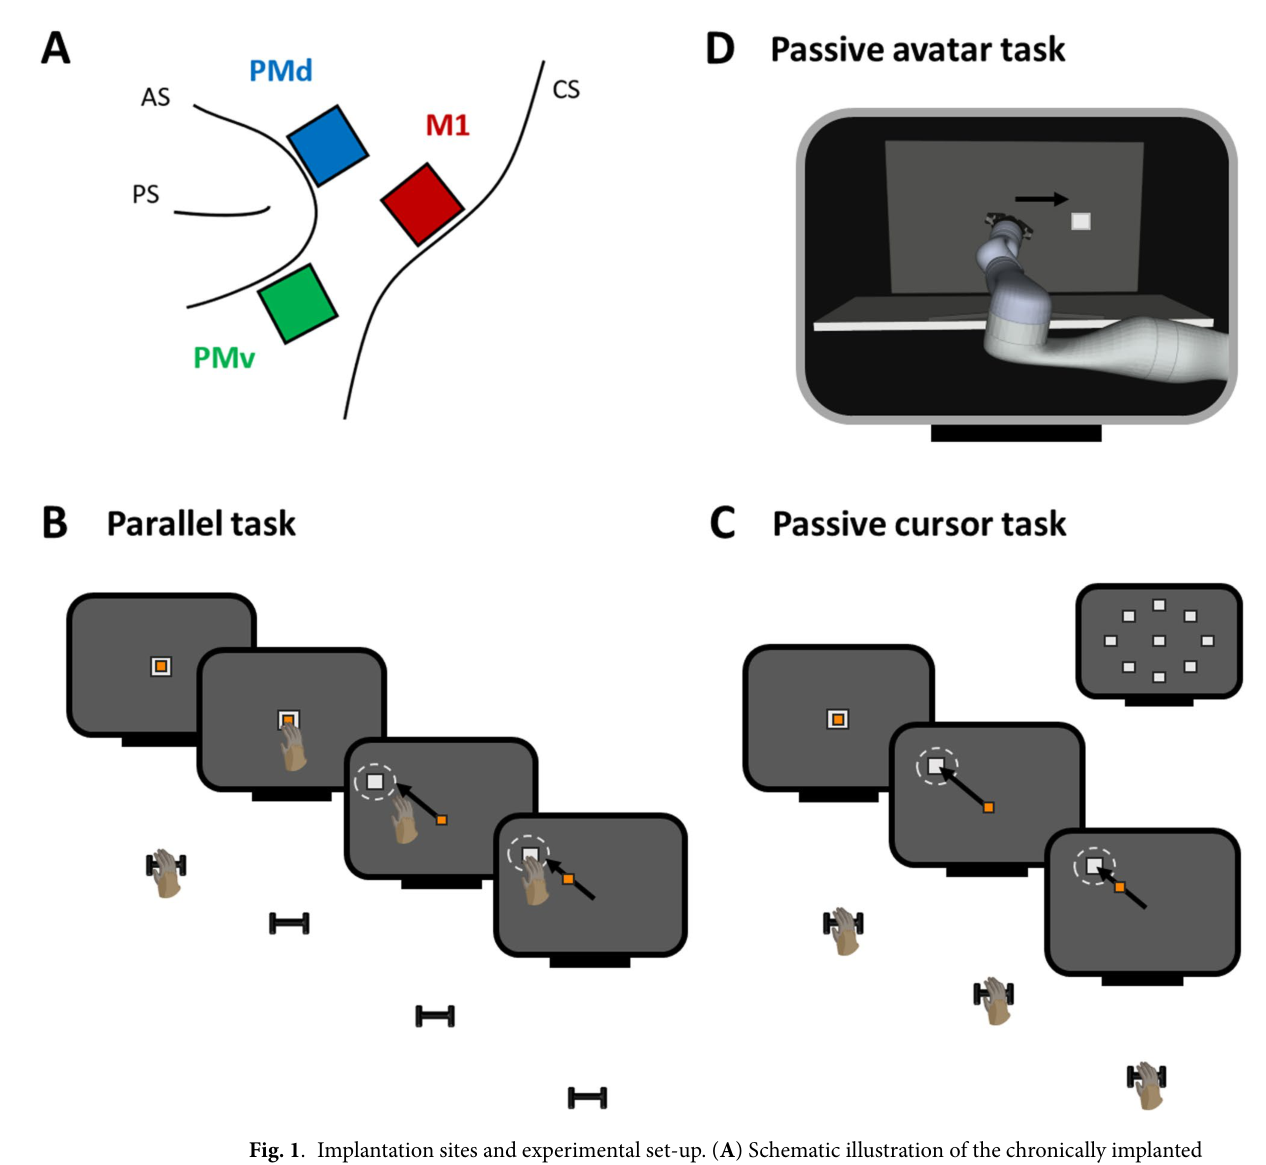
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 植入脑区解剖定位与实验任务设计。 (A) 三枚 Utah 阵列在左侧大脑皮层的植入位置:F5c(绿色)、F2/PMd(蓝色)与 M1(红色),标出主沟、弓状沟与中央沟。(B) 协同任务时序:猴子触碰中心目标后,橙色光标与真实手部同步向外周目标移动,两者均需在时限内进入判定区。(C) 被动光标任务:肢体保持静止,仅被动注视光标执行中心向外移动。(D) 被动虚拟机械臂任务:将光标替换为 Kinova Gen3 虚拟机械臂。
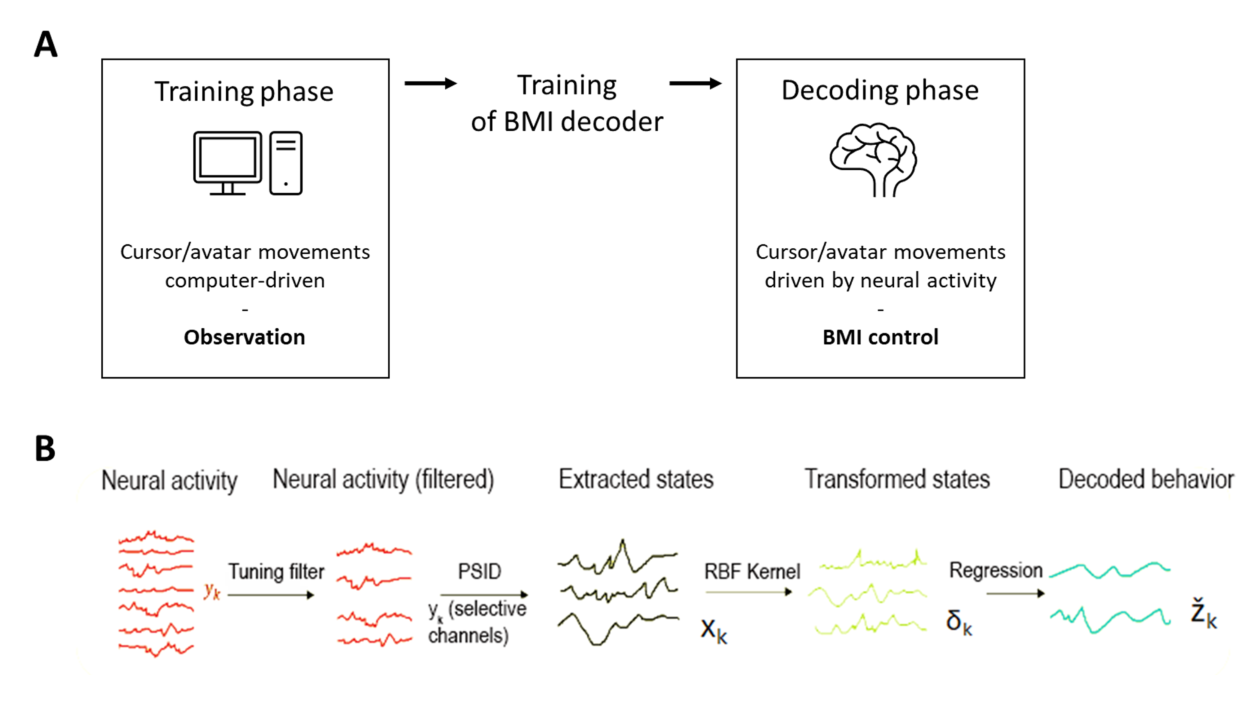
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · 闭环脑机接口系统流程与解码计算架构。 (A) 实验阶段结构:训练阶段(计算机驱动视觉位移并采集神经电信号)→ 离线训练模型 → 实时解码阶段(神经活动驱动运动)。(B) 算法处理流程:多单位阈值穿越率以 50 ms 分箱,筛选皮尔逊相关系数 ≥0.3 的运动敏感通道,利用优先子空间辨识(PSID)提取行为关联潜变量,经径向基函数(RBF)升维后由岭回归实时解算二维速度向量。
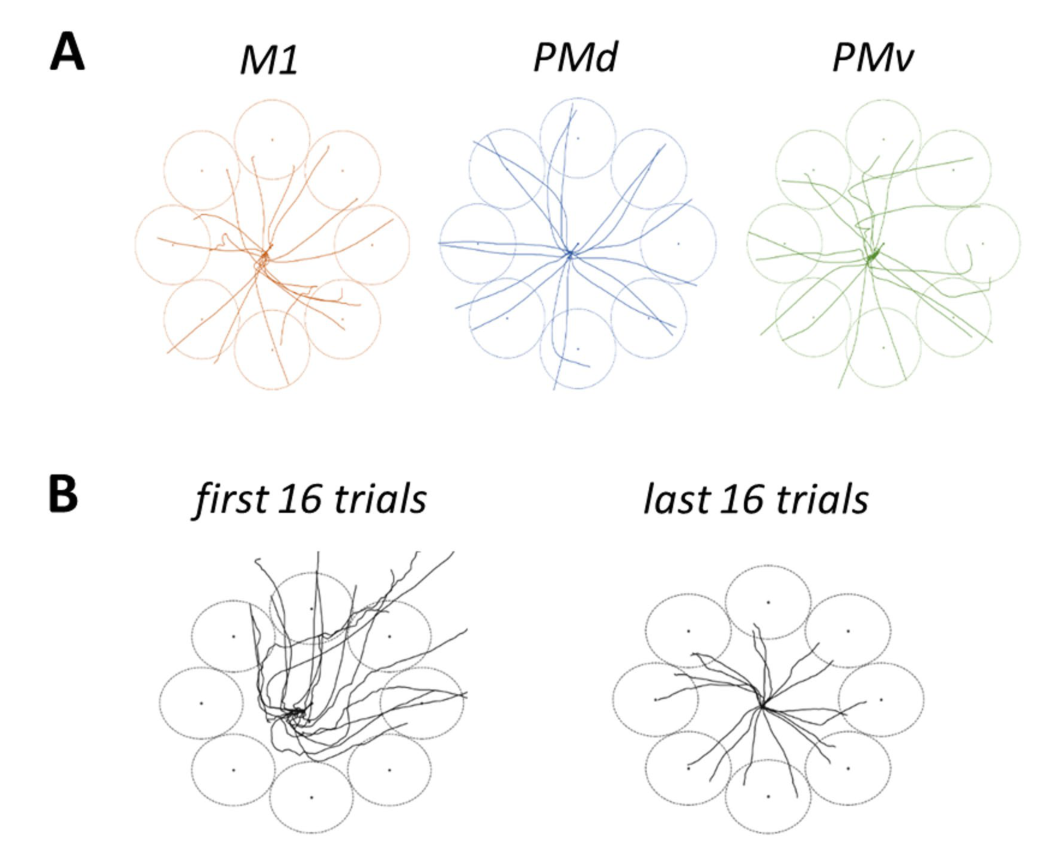
来源:原文 Fig. 3,PDF 第 7 页。
图 3 · 闭环运动轨迹形态与在线自适应调整。 (A) 各脑区示例会话中射向 8 个外周目标的闭环光标轨迹(每个方向两条,圆形框代表目标容差窗),显示三脑区均具备将效应器导引至目标区域的能力。(B) 示例 PMd 会话在前 16 次试次与后 16 次试次的轨迹对比:经历 7 次基于意图重标定的在线再训练后,光标游走离散度明显收敛。
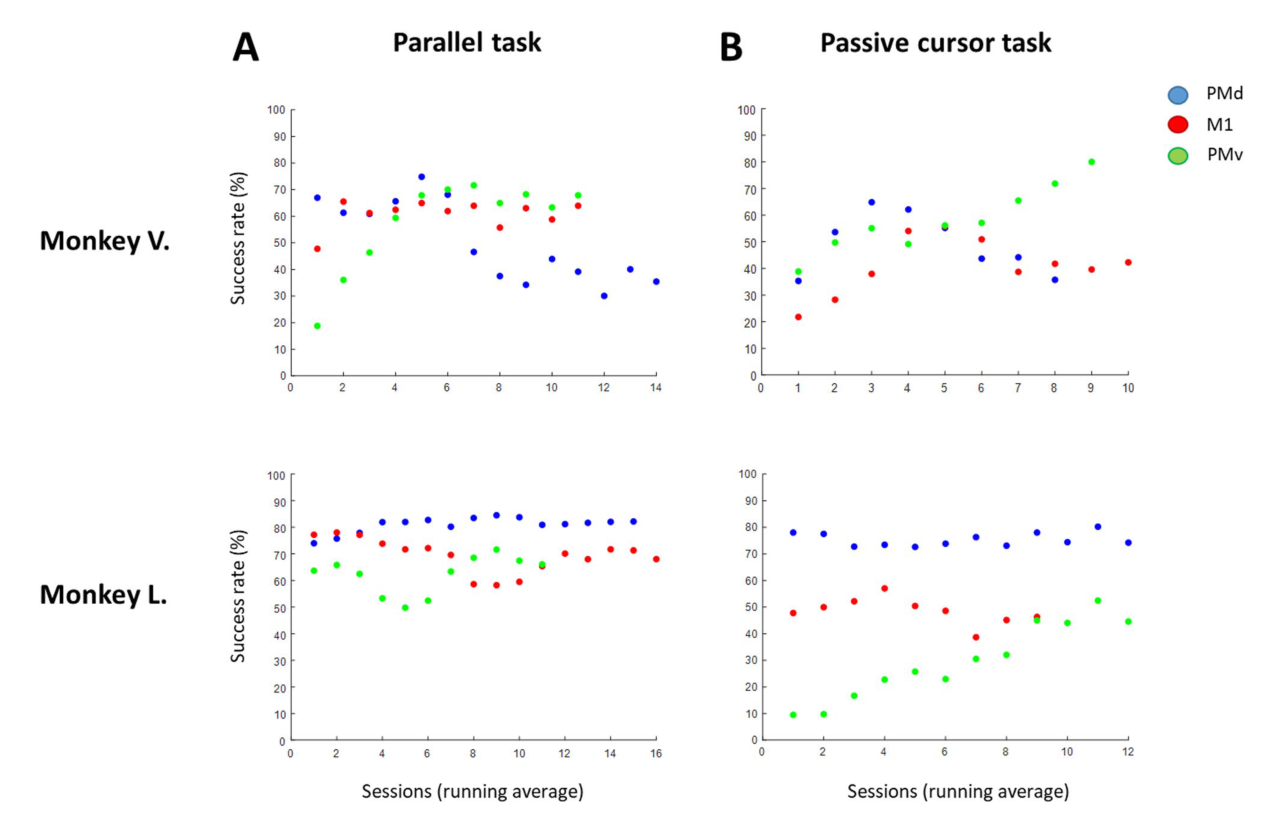
来源:原文 Fig. 4,PDF 第 8 页。
图 4 · 光标控制任务在不同脑区下的长期表现趋势。 (A) 协同任务与 (B) 被动光标任务中两只猴的成功率滑动平均曲线(3 会话时间窗;蓝色代表 PMd,红色代表 M1,绿色代表 PMv/F5c)。两只猴在两项任务中均呈现出 PMv 随时间逐步提升的趋势,在部分后半段测试中追平或超越 M1。讨论中指出该表现爬升与 F5c 阵列运动敏感通道数量的术后恢复周期存在时间重叠。
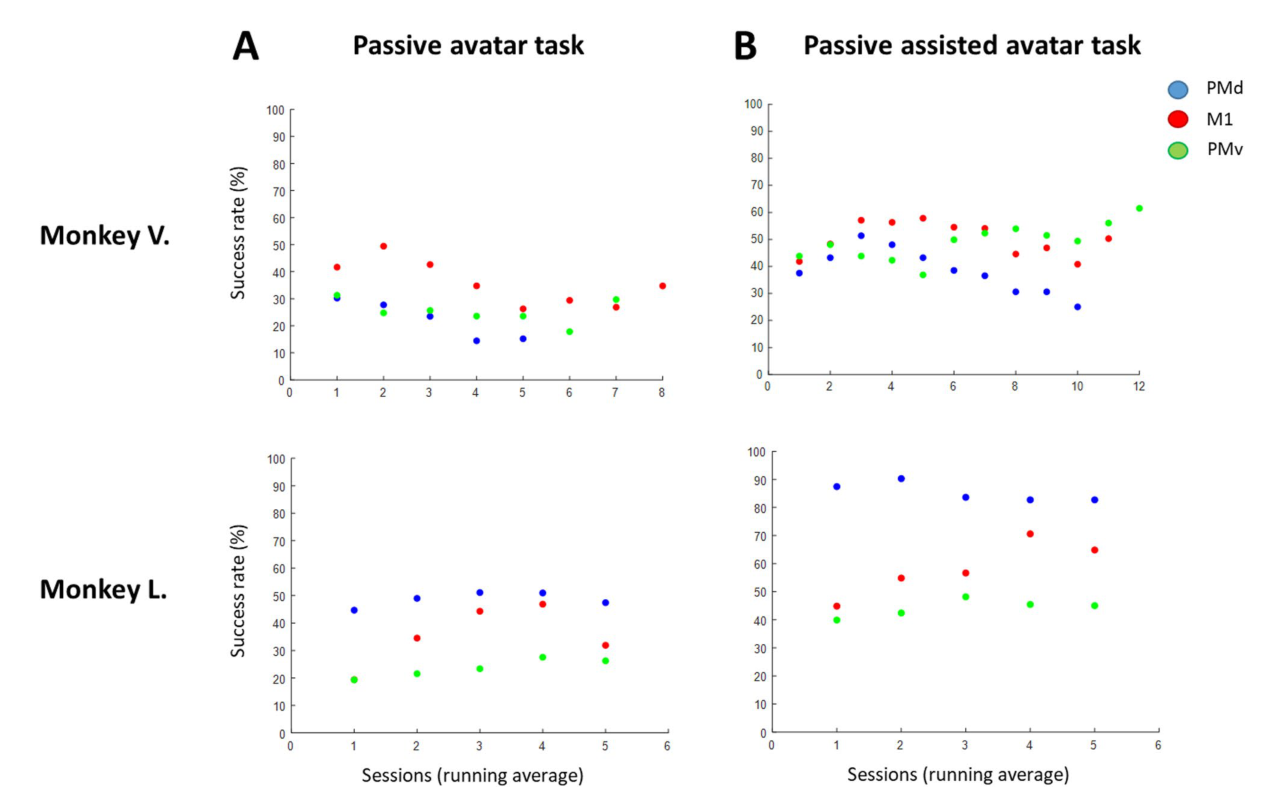
来源:原文 Fig. 5,PDF 第 9 页。
图 5 · 虚拟机械臂控制任务的表现与辅助控制效果。 (A) 被动机械臂任务(完全自主神经控制)与 (B) 引入速度制导场(RVGF)共享控制辅助下的成功率演变。虚拟机械臂任务的整体达标率显著低于光标任务;共享控制在一定程度上提升了各脑区的任务表现,但整体未达到简单光标任务的控制水平。
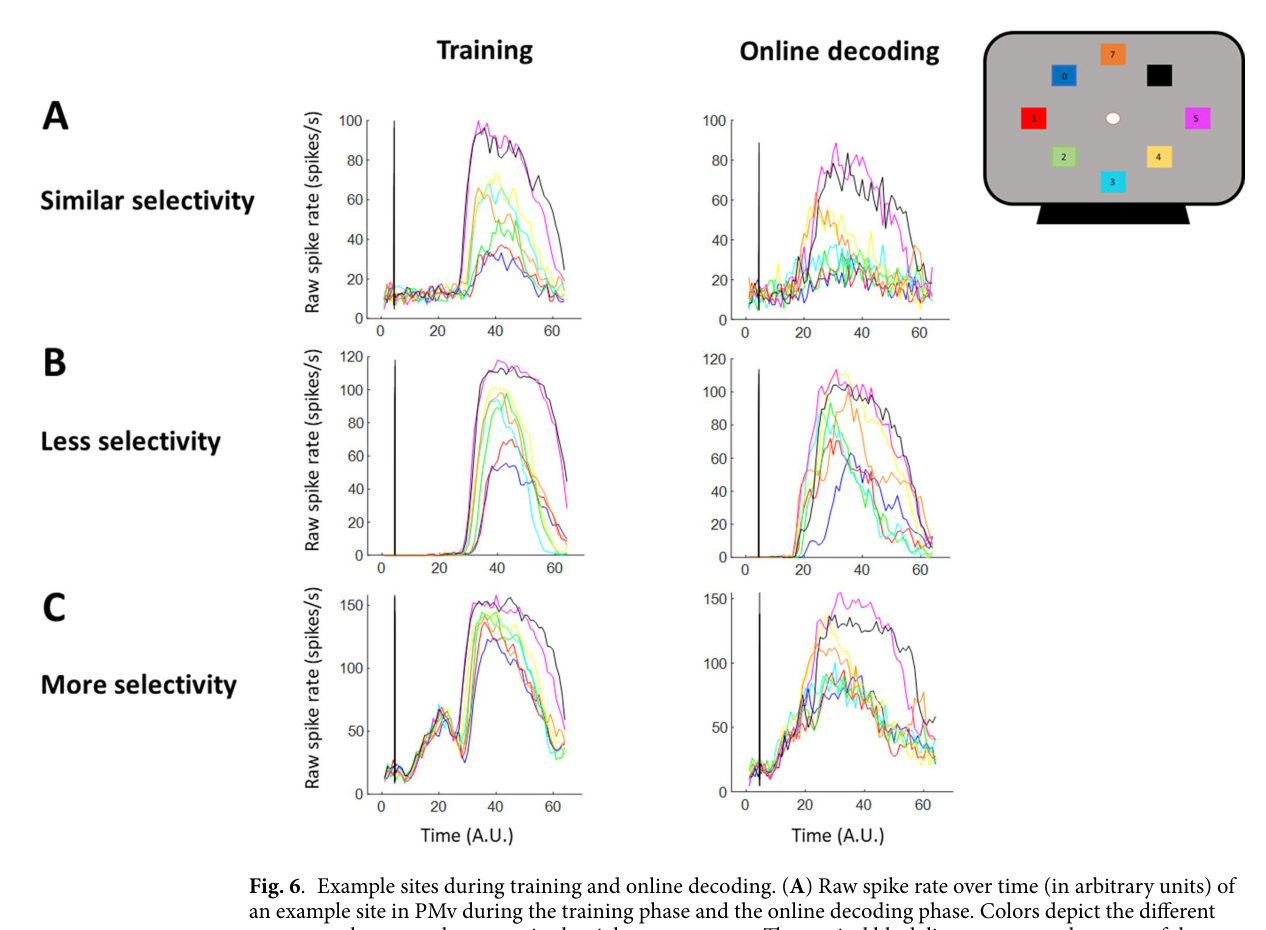
来源:原文 Fig. 6,PDF 第 10 页。
图 6 · 单电极通道在观察阶段与闭环控制阶段的放电转换。 三个典型通道在 8 个运动方向上的标准化放电率时间曲线,上下分别对应训练阶段与在线解码阶段:(A) PMv 通道:在观察期与解码期均表现出对向右运动的稳定调谐(d' 分别为 0.66 与 0.68);(B) M1 通道:调谐方向保持但调制深度下降(d' 从 0.35 降至 0.25);(C) 另一个 M1 通道:在线控制期方向选择性显著提高(d' 从 0.33 升至 0.46)。统计显示多数记录位点在两阶段间维持调谐特性。
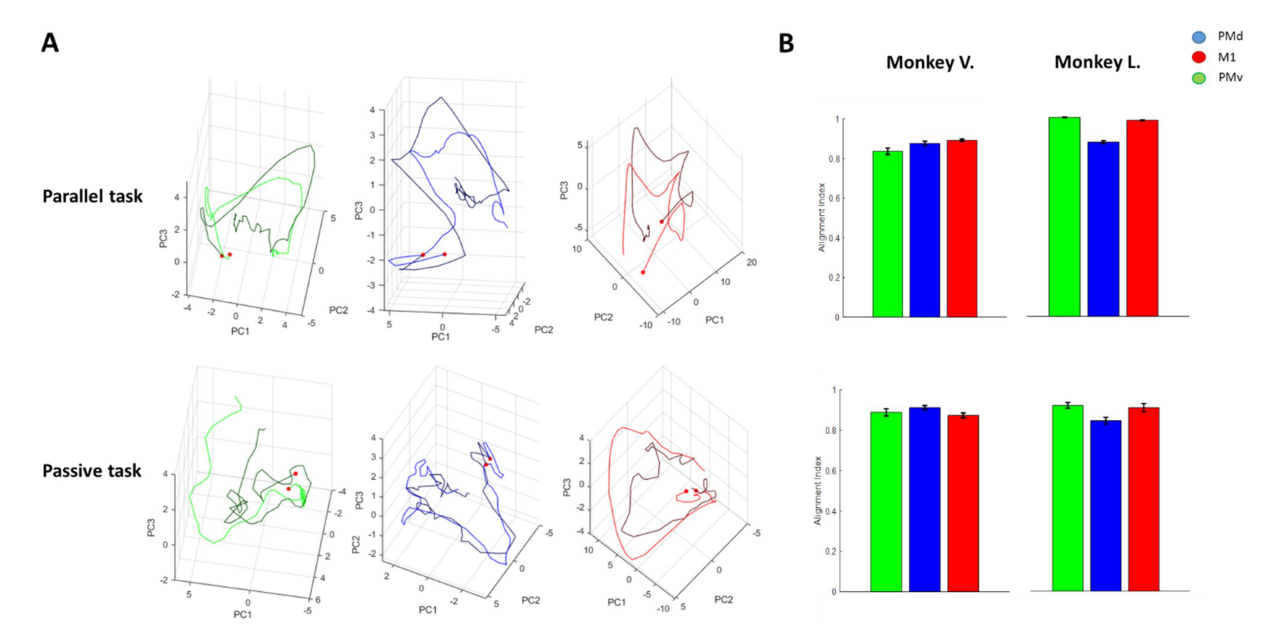
来源:原文 Fig. 7,PDF 第 11 页。
图 7 · 神经群体动力学在训练与解码阶段的子空间重叠度。 (A) 示例会话中训练阶段(浅色)与解码阶段(深色)的神经轨迹投影至相同的三维主成分空间,轨迹起点以红点标示,两者展现出高度一致的空间几何拓扑。(B) 子空间对齐指标(alignment index)定量统计:各脑区、两项任务以及两只动物均表现出高水平的子空间重合度,各脑区之间无统计学差异。
讨论与解读边界
同动物比较多个脑区,是本文的主要价值。F5c 的结果支持把 PMv 纳入候选信号源,但不同阵列的有效通道数不一致,跨月改善又与信号恢复交织,因此不能单独归因于区域特异的学习。Avatar 条件的表现也不一致:猴 L 的 PMv 仍低于其他区域;辅助控制成绩应与纯脑控分别解释。
观察与控制阶段具有相似的主成分子空间,并不表示全部动力学、单次试次活动或解码映射不变。本文实际使用在线再训练,不能由高子空间对齐度推出“患者不必反复校准”。缺乏立体深度线索是 avatar 表现较差的一种解释,并非单独操纵验证的原因。
思考问题
- 在各脑区严格匹配有效通道数与信号稳定性后,PMv 与 M1 的性能差异还在吗?
- 将同一任务扩展到真实抓握,并分别移除共享控制和在线再训练,F5c 能独立支持哪些控制量?