B01 · Active tactile exploration using a brain–machine–brain interface
O'Doherty, J.E., Lebedev, M.A., Ifft, P.J., Zhuang, K.Z., Shokur, S., Bleuler, H., & Nicolelis, M.A.L. (2011). Nature, 479, 228–231. doi:10.1038/nature10489
猕猴通过 M1 活动控制虚拟效应器,并利用 S1 微刺激提供的接触相关线索辨别虚拟物体。记录与刺激的时间复用使这一双向脑机接口在本文任务中可行。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
闭环运动假体除输出控制外,还需要反馈物体接触的信息。本文检验S1微刺激所携带的人工纹理,能否用于M1驱动的虚拟探索和目标选择。
研究思路
虚拟执行器接触物体时触发不同ICMS模式,动物据此辨别奖励目标。记录和刺激采用时间复用以减轻伪迹,并比较手控、脑控、探索行为及神经调制;人工纹理辨别不等于恢复了全部自然触觉。
方法
两只成年恒河猴(M、N),每只植入四个 96 通道不锈钢微丝阵列,左右半球各两个(上肢、下肢代表区各一),同时覆盖 M1 与 S1;实际用于解码的是右侧半球 arm array(两只猴都用左手操纵杆)。阵列内微丝按两个 4×4 的 triplet 网格排布,triplet 间距 1 mm,三根丝长度相差 300 μm,最长 2 mm。ICMS 为双相、电荷平衡脉冲,双极施加:猴 M 用两对微丝刺激 S1 手代表区(脉宽 105 μs),猴 N 用一对微丝刺激腿代表区(脉宽 200 μs)。人工触觉编码在两层频率里:奖励纹理 RAT 是 200 Hz 脉冲串按 10 Hz 打包(每个刺激子区间 9 个脉冲),UAT 是 400 Hz 按 5 Hz 打包(18 个脉冲),NAT 无刺激。任务要求猴子在最多三个视觉上完全相同的虚拟物体里找出 RAT 的那个,把 actuator 停留 0.8–1.3 s(HC)或 300–500 ms(BC)拿果汁奖赏;每个物体由中央 response zone 和外周 feedback zone 构成,进入 feedback zone 即触发 ICMS。控制模式三种:手控 HC(操纵杆)、脑控仍握杆 BCWH(杆已断开)、脑控无手 BCWOH(杆移除)。解码器为 Unscented Kalman Filter(多数 session 用 3 阶,最多试过 10 阶),10 Hz 更新,参数从手动操作或被动观察时的放电拟合。任务分五个难度层级:Task I 两物体固定位置(RAT vs NAT),II 位置逐 trial 随机,III 换成 RAT vs UAT,IV 三物体全随机,V 把 cursor 换成第一人称视角的虚拟猴臂(控制环 50 Hz、视觉刷新 30 Hz,末端直接控制加反向运动学约束)。全套行为训练共 72 个 session(猴 M)。
主要结果
行为上,两只猴子都学会了在脑控下靠 ICMS 找出目标物体。猴 M 在 Task I 第九个 session 超过 chance 水平(P<0.001,单侧二项检验;猴 N 只用四个),难度加到 Task V 还在继续进步。探索时间的分布最能说明判别的真实性:训练早期 RAT 与 NAT 上的停留时间没有差别,训练后 RAT 显著变长、NAT 显著变短——HC 下猴 M 在 RAT 平均停 1396±21 ms、UAT 452±13 ms、NAT 只有 304±8 ms(ANOVA,P<0.01;猴 N 为 1165/402/300 ms),三者干净地分开,而且判别是在几百毫秒尺度完成的,与外周触觉辨别的时程相当。状态转移分析进一步显示这是有策略的探索:第一站就落在 RAT 时留驻概率 0.70(M)/0.76(N),落在 UAT 时只有 0.05/0.01,NAT 干脆是 0.0;查完第二个物体后,从 NAT/UAT 转向 RAT 的概率升到约 0.7、回头重访降到约 0.2——直接识别与排除法两种策略并存。
闭环性能上有清晰代价:BCWH 下猴 M(>200 个记录神经元)正确率 73.75±3.00%(HC 为 91.48±1.20%),猴 N(仅 50 个神经元)掉到 50.37±3.74%(HC 91.45±1.91%),但仍显著高于 33% 的 chance。BCWOH 按每分钟奖励数计,猴 M 从 1.021±0.007 稳步升到 2.962±0.005,actuator 位移主频与成绩提升相关(X 向 R²=0.16,Y 向 R²=0.26,P<0.001)——猴子在调制脑活动让扫描更快,且 NAT 上的探索时间(3620±350 ms)显著短于 UAT(4270±310 ms),说明快速掠过"没纹理"的物体是主动策略而非随机游走。Psychometric 测量给出 ICMS 门槛:每相位至少 8 nC(100 μs、80 μA 的脉冲)才能完成判别;Task II 中约 1% 的 catch trial(零幅度刺激)成绩回到 chance(P=0.90),削弱了依赖伴随视觉或听觉线索完成辨别的解释。
神经层面两条发现撑住了整个方案。其一,M1 神经元的方向调谐在不同 ICMS 图案干扰下保持稳定(HC 与 BC 皆然),multiplexing 加 S1 刺激没有破坏 M1 对 actuator 运动的表征——这是闭环可行性最直接的证据。其二,当 actuator 运动被重放、猴子只是被动观看(手臂被限制)时,用一个单独训练的解码器仍能从 M1 活动以接近 HC 的精度重建 actuator 轨迹——与 Cisek、Graziano、Tkach 等人报告的动作观察调制一致,作者据此提出神经假肢有可能被纳入脑的 body schema。
逐图解读
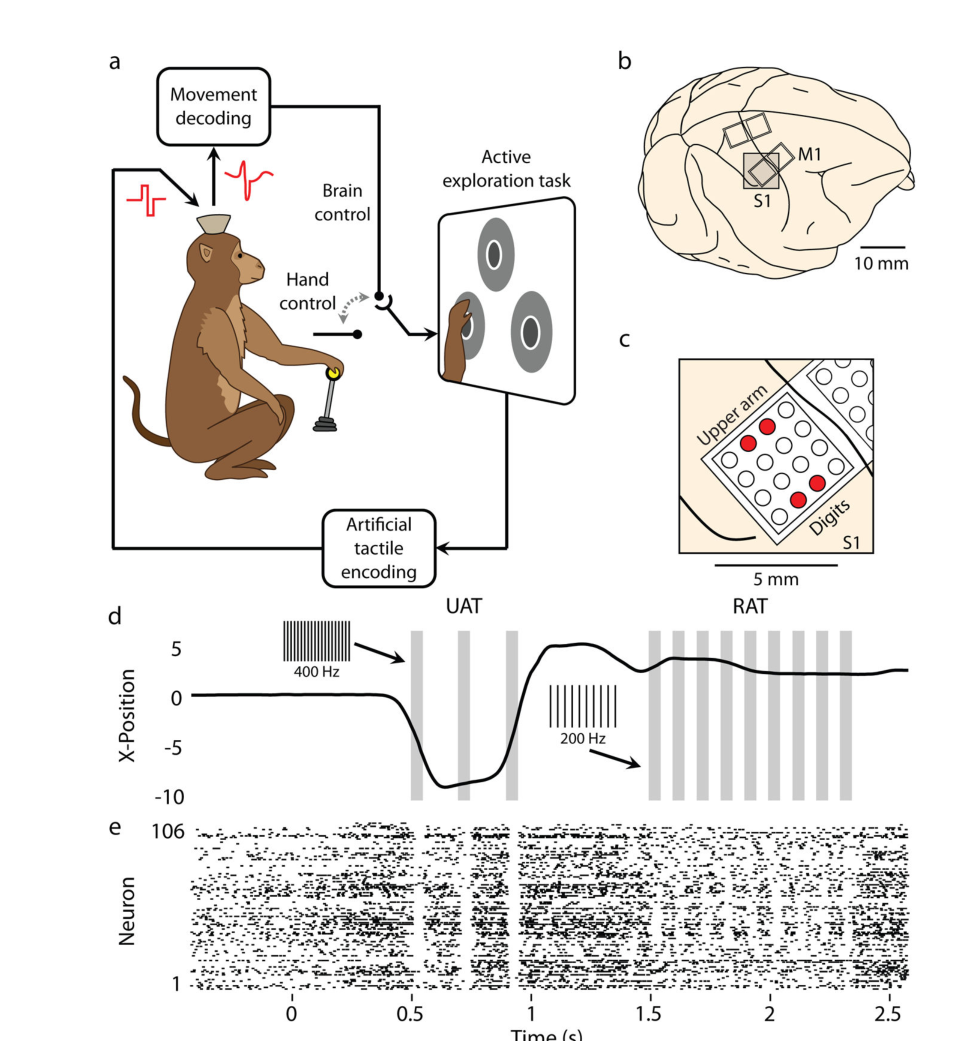
来源:原文 Fig. 1,PDF 第 9 页。
图 1 · BMBI 总体设计:M1 解码、S1 刺激与时间复用。 (a) 概念图:运动意图从 M1 解码驱动 actuator,actuator 触到虚拟物体时 S1 收到 ICMS,运动读出与感觉写入经脑机通路完成;具体有无手臂运动需区分 HC、BCWH 与 BCWOH 条件。(b) 双侧 M1/S1 的微丝植入;(c) 猴 M 实际用于 ICMS 的两对微丝(红色标出,落在 S1 手代表区)。(d, e) 是理解工程难点的关键:一个典型 trial 里猴子先探索 UAT(灰条为刺激时段,插图标出 400 Hz/5 Hz 的两层频率)再转向 RAT,下面的 raster 显示每个 ICMS 脉冲之后 5–10 ms 的伪迹如何把 M1 放电"打花"——正因为这样才有 20 Hz 时钟的记录/刺激交替。读这张图时重点看 d 里两种纹理刺激模式的差异,以及 e 里伪迹条带与正常放电的交错节奏。
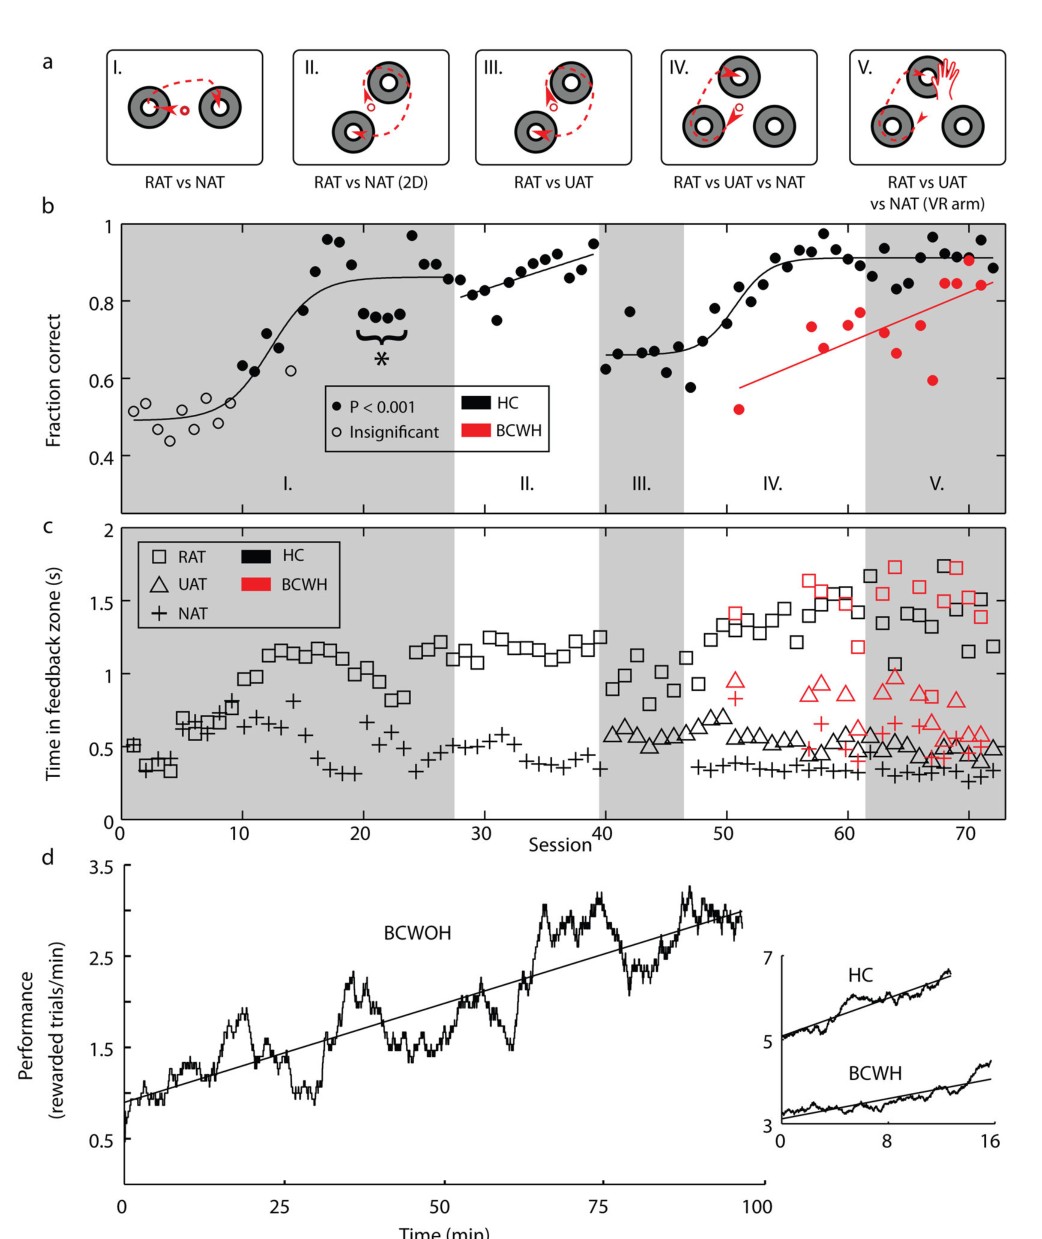
来源:原文 Fig. 2,PDF 第 10 页。
图 2 · 学习曲线:ICMS 是被读懂的。 (a) 五个任务层级的示意。(b) 猴 M 72 个 session 的正确率:Task I 早期接近 chance,第九个 session 已显著高于 chance;空心圆标记处于 chance 水平的点,此后每次难度跃迁都先回落再爬升,是标准的 skill learning 轨迹;星号标出用于 psychometric 测量的 session(阈值约 8 nC/相位)。(c) 三种纹理上的平均停留时间:训练后 RAT(方块)越来越长、UAT(三角)和 NAT(叉)越来越短,红色 BC 与黑色 HC 趋势一致——判别不是碰运气,且在脑控下照样成立。(d) session 内部的进步:BCWOH 主图(3 个 session)与 inset 里 HC、BCWH(各 12 个 session)的每分钟奖励数都在一天之内线性上升——学习同时发生在跨天和当天两个时间尺度上。
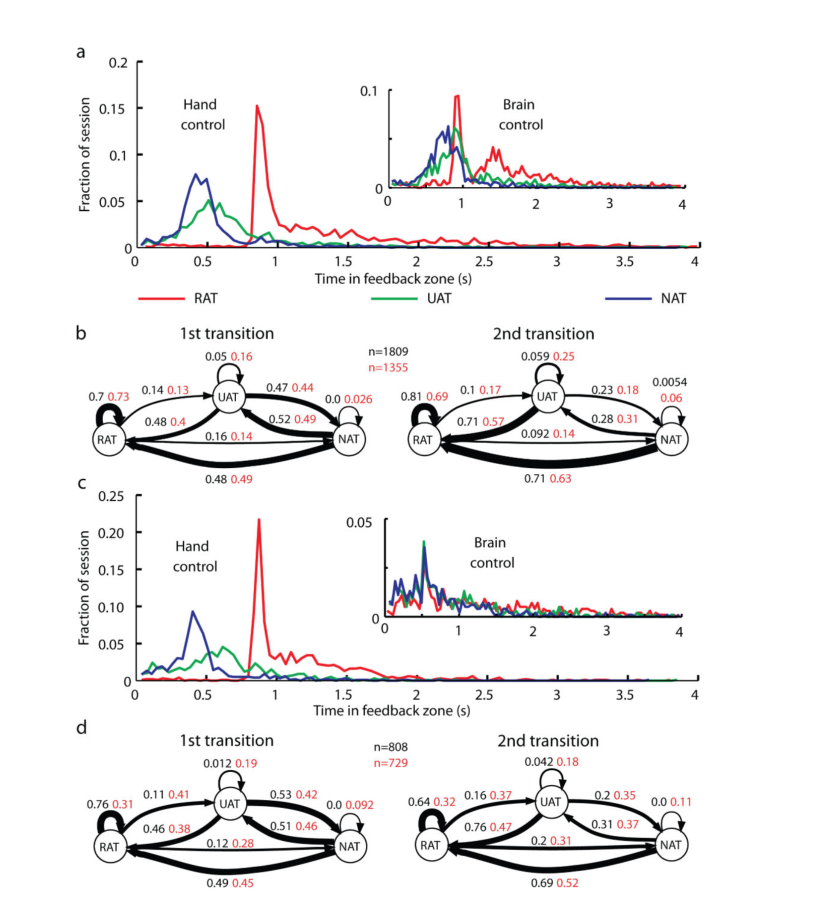
来源:原文 Fig. 3,PDF 第 11 页。
图 3 · 主动探索的行为学统计。 (a, c) 两只猴在三种纹理上的探索时间分布(猴 M:HC 1809 trials、BC 1355;猴 N:808/729),HC 下 RAT/UAT/NAT 平均停留约 1396/452/304 ms(猴 M),显著分层;BC(inset)下 UAT、NAT 略拖长但排序不变。(b, d) 是这张图最精彩的部分:状态转移图,箭头线宽正比于转移概率。第一跳落在 RAT 时留驻概率 0.70(M)/0.76(N),落在 NAT 时,所报告的留驻概率为 0.0;查完第二个物体后,从 NAT/UAT 移向 RAT 的概率升到约 0.7、重访降到约 0.2——直接识别加排除法两种策略并存的证据。红色 BC 数据与黑色 HC 基本吻合,说明脑控下的决策结构没有被 ICMS 干扰或解码噪声破坏。
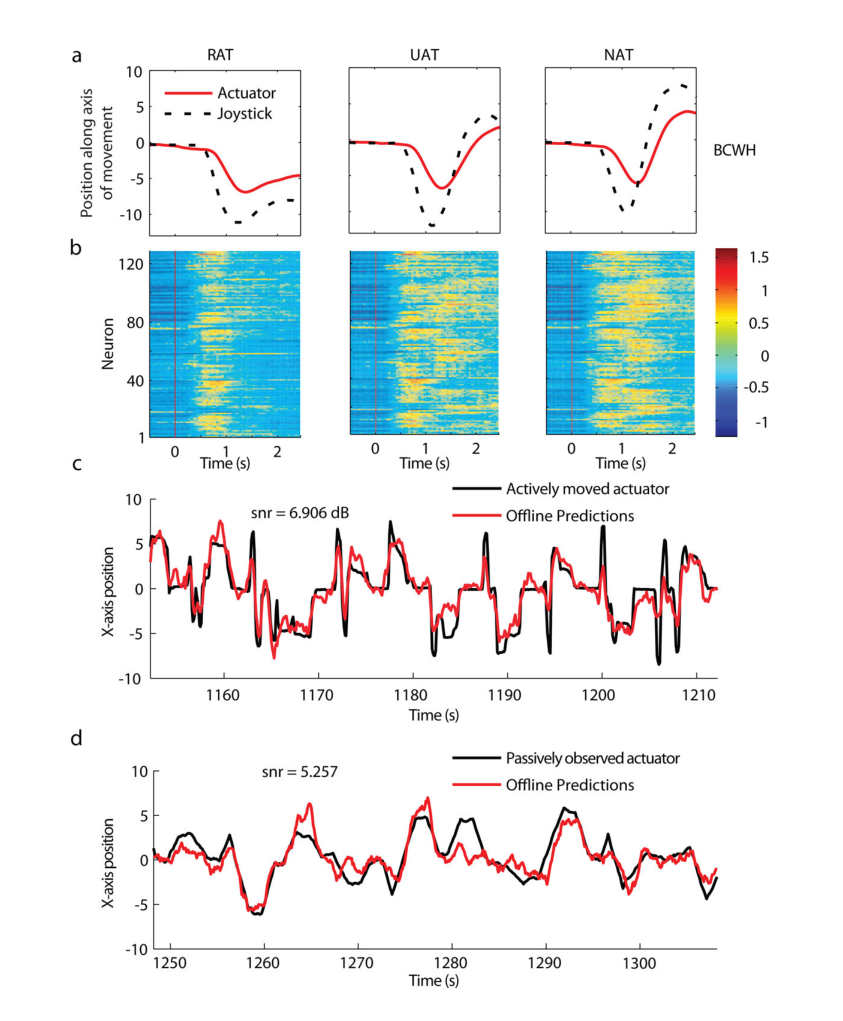
来源:原文 Fig. 4,PDF 第 12 页。
图 4 · M1 调谐的保持与被动观察时的表征。 (a, b) 猴 M 294 个 BC trial:物体出现在屏幕左侧时的平均 actuator 轨迹(a)与对应的 M1 神经元调制(b),红实线是 actuator、黑虚线是已断开的操纵杆——手还在比划(BCWH),但放电率(按 s.d. 归一)与 actuator 运动的关系在 RAT/UAT/NAT 三种刺激背景下同样稳定,方向调谐没有被伪迹或 S1-M1 干扰抹掉。(c, d) 主动控制(c)与被动观察(d)的对比:黑线是实际位置,红线是解码器离线重建——猴子只是看着 actuator 动时,M1 同样携带足够的运动信息,重建精度与手控时相当。这两组结果一个撑住闭环可行性,一个为"假肢可被纳入 body schema"提供后续分析的依据。
讨论与解读边界
实验将接触事件转成可辨别的刺激模式,而不只是预先给一条动作指令。行为学习、探索时间和去除刺激的对照共同支持动物确实使用了 ICMS 线索。这里的“人工纹理”指刺激模式定义的类别,不表示它已重现自然皮肤纹理的知觉。
需要区分手控、仍握操纵杆的脑控和移除操纵杆的脑控条件。不能把所有结果都描述为完全没有身体运动;图 4 的 BCWH 条件中手仍可运动。M1 调谐大体保留支持系统可用,并不证明刺激对神经处理毫无影响。动作观察时能解码轨迹也不是身体所有权的证据。解码器可从手控或被动观察数据训练,原笔记“始终从手控数据拟合”的说法不完整。
思考问题
- 将 ICMS 模式随机映射到不同纹理标签后,动物学到的是接触感觉、抽象类别,还是二者都有?
- 在真正的抓握与力控制任务中,接触时刻、接触位置和力大小分别需要多大的反馈带宽?