A02 · Strategy-dependent encoding of planned arm movements in the dorsal premotor cortex
Pearce, T.M., & Moran, D.W. (2012). Science, 337, 984–988. doi:10.1126/science.1220642
障碍物使目标方向与初始运动方向分离后,PMd 群体活动可分别携带两类信息。两只猴的准备活动时间过程不同,与各自的提前规划或等待策略相符。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
到达同一目标可以选择不同路径,常规中心外向伸手却容易把目标方向与初始运动方向混在一起。本文利用绕障任务,检验PMd准备活动在何时反映目标,何时反映计划路径。
研究思路
起点、目标和障碍物依次出现,将可用信息分成三个阶段。作者先从中心外向任务估计调谐与群体向量,再将读出用于绕障任务,并结合单细胞分析比较目标方向和初始运动方向的贡献。不同动物的计划策略是结果的一部分。
方法
两只恒河猴(G 和 H),训练方式相同、任务完全一致,急性微电极记录对侧 PMd,共 723 个单神经元(G 343、H 380)。行为在 VR 模拟器中完成,手的位置映射到额面(frontoparallel)平面,猴子看不到自己的手臂。center-out 任务:8 个运动方向 × 5 个起点位置,共 40 个中心–目标组合。obstacle 任务:单一中心起点,40 个目标–障碍组合;利用任务的旋转对称性,所有试次可归并为目标与障碍的 5 种相对朝向,等效放大每种条件的重复数。障碍物不挡道的 0° 试次与根本不出障碍、直接给 go 信号的 catch 试次合计约占三分之一——这个比例是理解"策略"的钥匙:三分之一的概率下,一个提前形成的"直奔目标"计划是有效的。神经与行为证据都表明参数解相关是成功的:信息呈现前,对相应参数的调谐比例不高于机遇水平。
主要结果
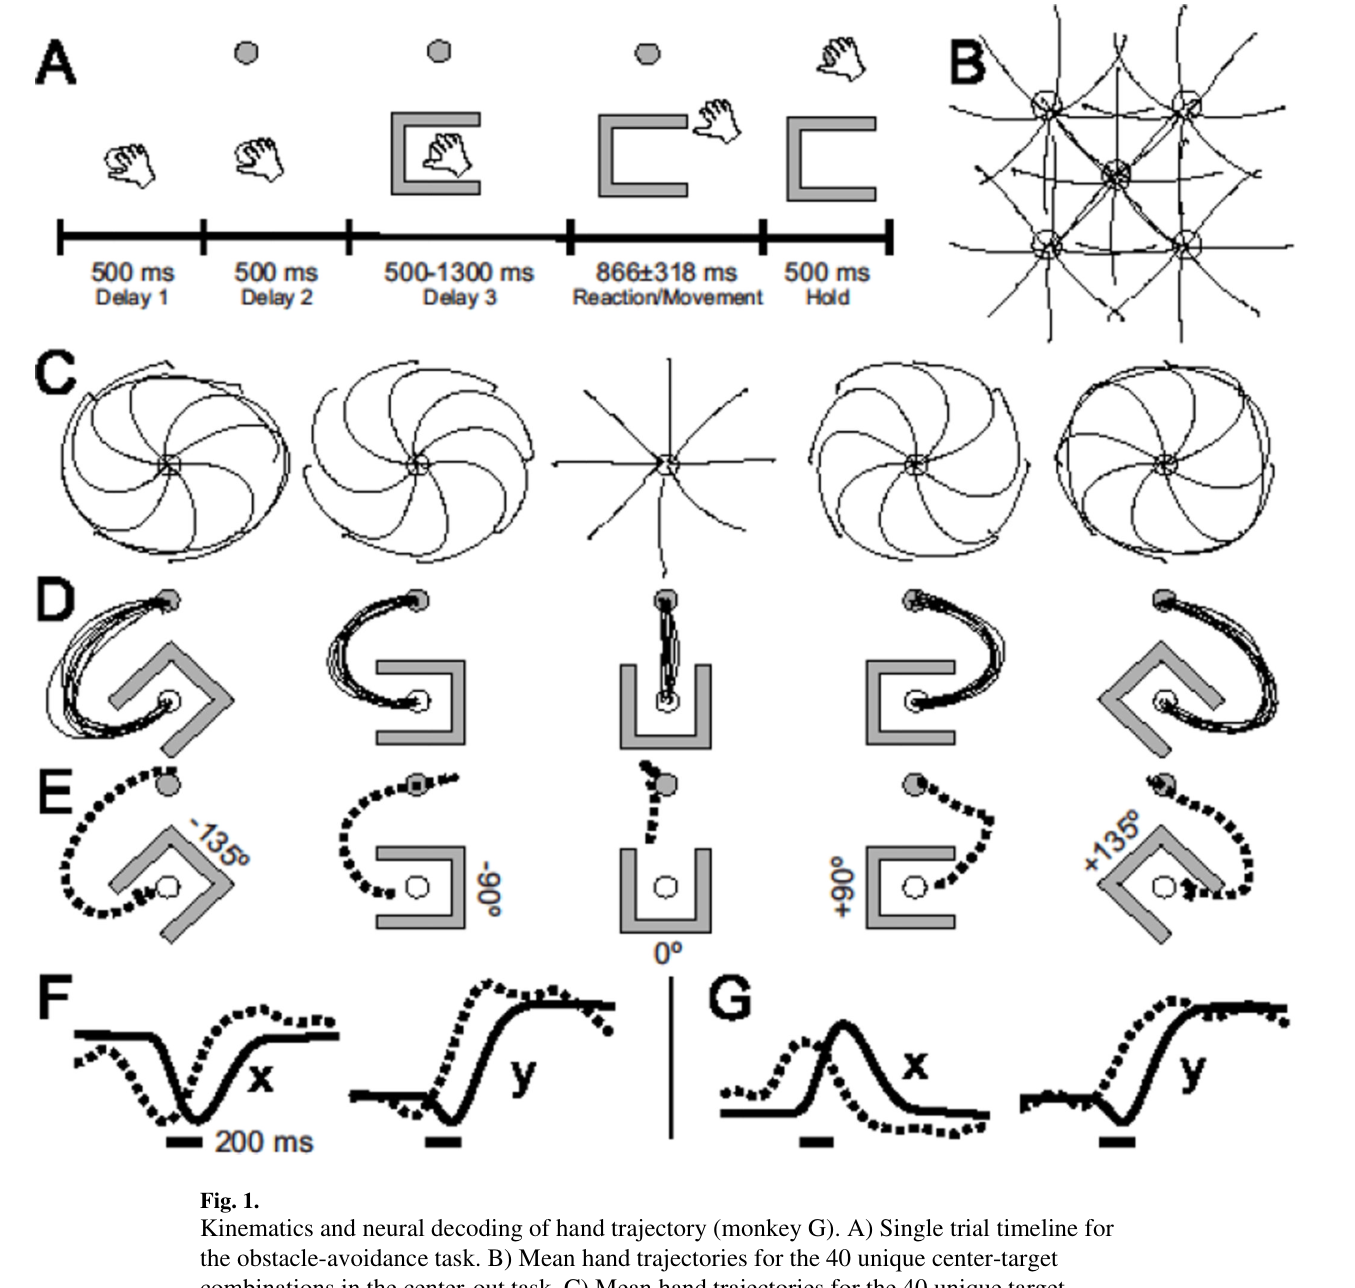
运动期先给出一个与 M1 的对照。position-PV 对手轨迹的解码保真度很高,神经预测领先真实运动约 200 ms;而 velocity-PV 在运动期的重建很差——同一实验室此前在 M1 的特定任务中观察到速度调制较强(Wang et al. 2007),到了 PMd 正好反过来,在本文的解码比较中,PMd 运动期活动对位置的预测优于速度。这与 PMd 此前被报道的位置编码(Fogassi 1992;Pesaran 2006)接得上。
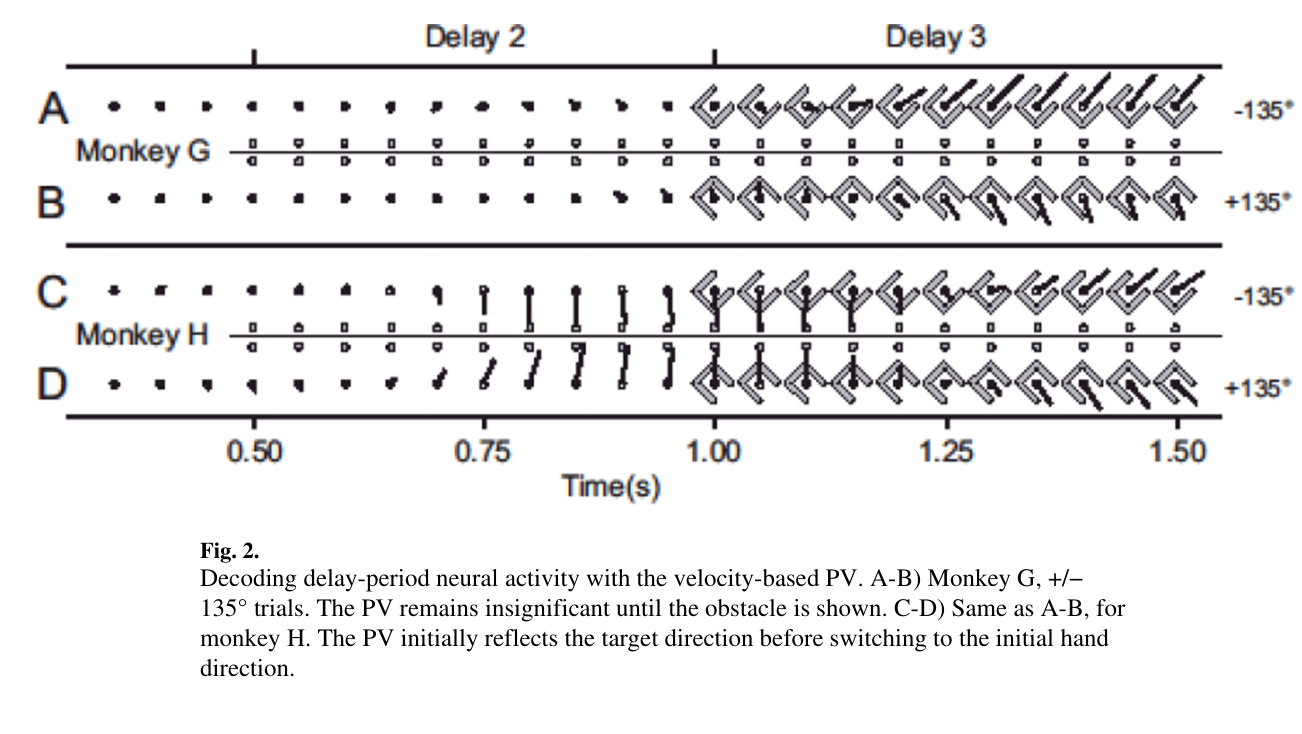
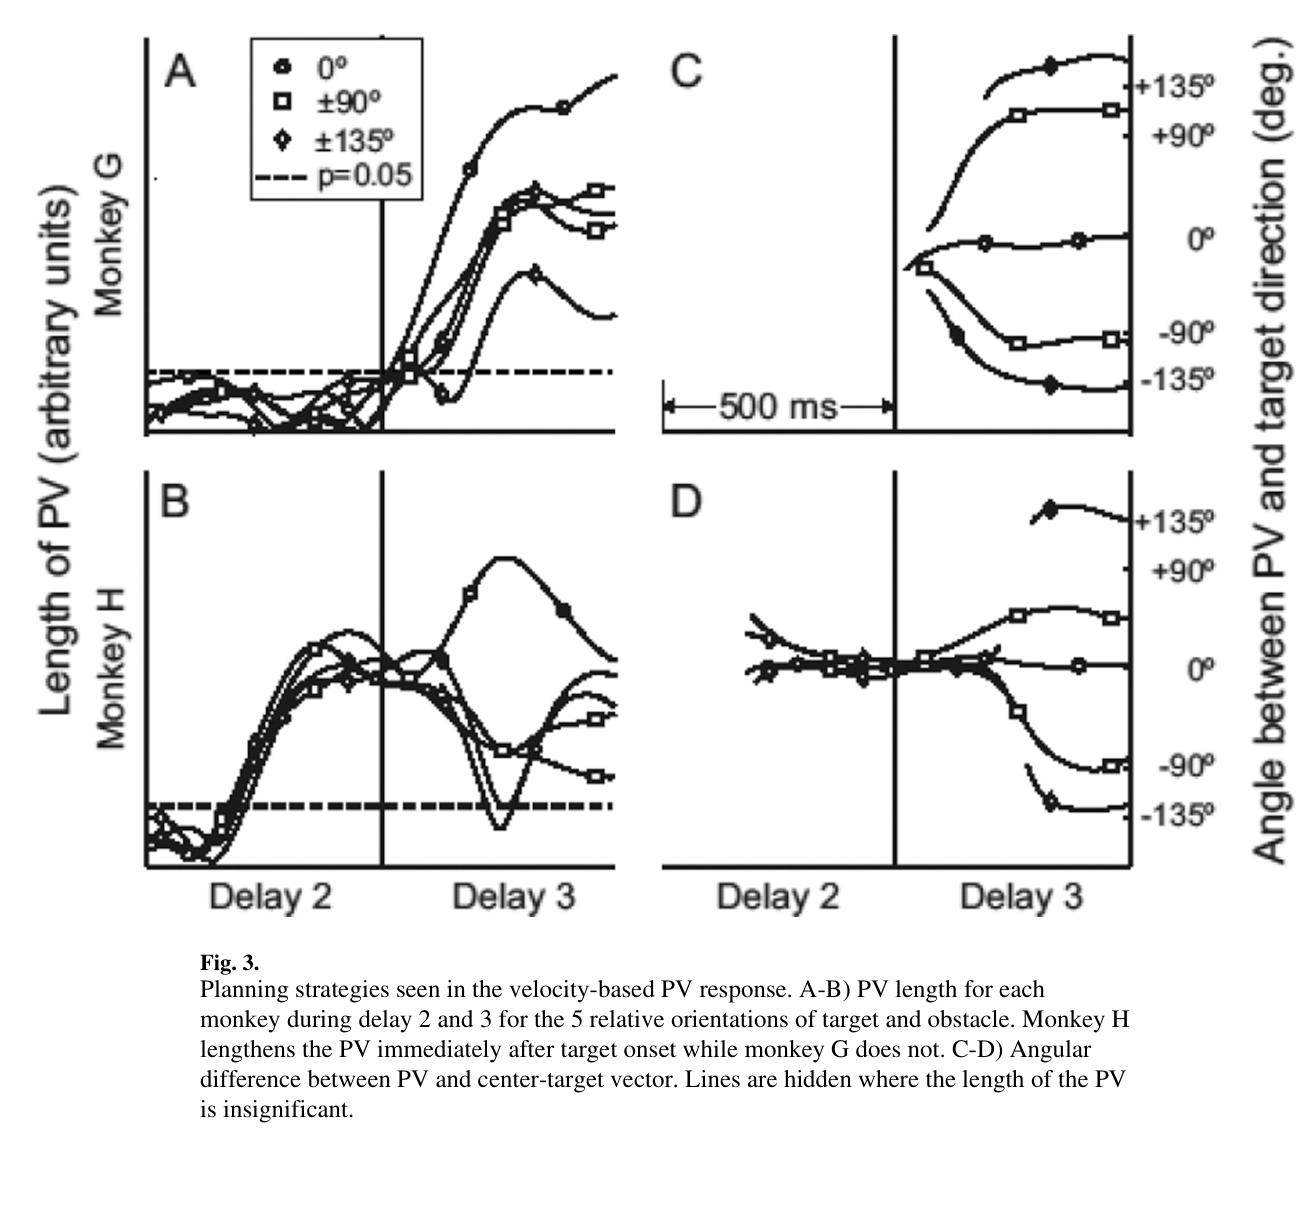
计划期的核心发现是策略差异。velocity-PV(用 center-out 的目标方向调谐构建)在两只猴身上最终都指向绕行所需的初始运动方向,而不是目标方向——经典方向调谐的真实身份是"计划的初始手方向"。但到达这个终点的路径完全不同:G 猴的 PV 在 delay 2 里长度不显著,直到障碍物出现(delay 3)才迅速变长、很快稳定到绕行方向,像"等信息齐了再计划";H 猴的 PV 在 delay 2(只看到目标时)就已经指向目标,障碍物出现后先缩短、再旋转到新的运动方向、再重新变长,像"先按直奔目标计划,被障碍纠正"。行为上这个差异有代价也有收益:用起飞角(运动起始时手方向相对目标方向的偏角)衡量,catch 试次里 H 的精度显著高于 G,而 0° 试次两者无差——提前计划换来了无障碍时的出手精度优势。
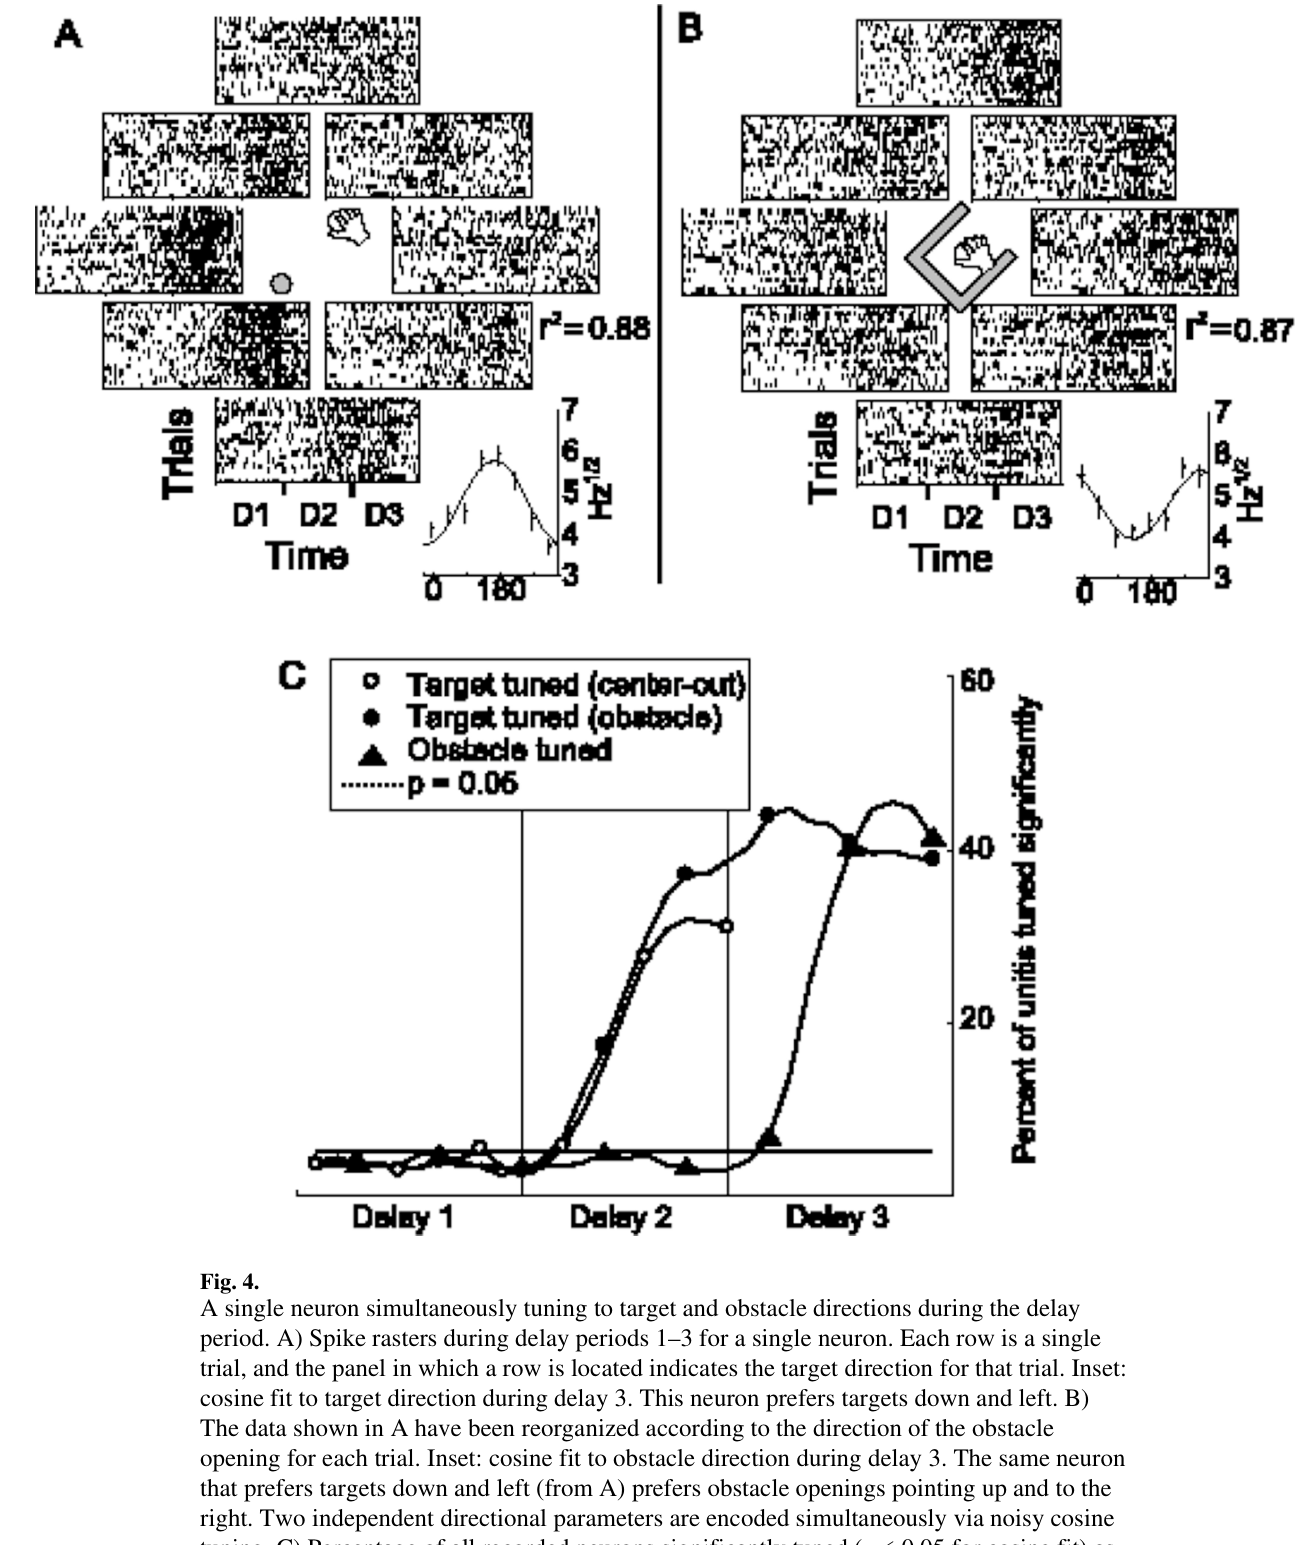
单神经元分析也显示目标方向也确实在代码里。同一个神经元的 spike raster 按目标方向排列时有干净的方向调谐;同一批 trial 重新按障碍物开口方向排列,又出现另一个方向的调谐——两个独立的空间参数被同一个神经元以带噪声的 cosine 形式同时编码。最终延迟期里超过 60% 的神经元至少对其中一个参数显著调谐。进一步的 target-PV 分析(用 obstacle 任务 delay 3 的目标调谐构建,留一交叉验证)确实能在计划期独立解出目标方向——但这个目标表征只在需要绕行的试次里出现(直行试次的 target-PV 显著更短),在 delay 2 中,该 target-PV 分析没有检出显著的目标表征。目标信息是按任务需要被招募进群体代码的,而异质性的单神经元响应恰恰构成了编码高维参数空间的 basis set。
逐图解读
来源:原文 Fig. 1,PDF 第 7 页。
图 1 · 任务、行为与位置解码(monkey G)。 (A) obstacle 任务的单 trial 时间线;(B) center-out 40 个组合的平均手轨迹;(C) obstacle 任务 40 个组合的平均轨迹,按障碍物相对目标的朝向分 panel;(D) 把 (C) 旋转对齐,让目标方向一律朝上;(E) position-PV 从运动期活动解码出的手路径预测;(F, G) ±135° 条件下手位置 x/y 分量(实线)与神经预测(虚线),scale bar 200 ms。这张图承担三件事:描述行为轨迹、评估 position-PV 的重建表现、给出"神经领先运动约 200 ms"这个时间标尺——后面的延迟期分析都要靠它校准。
来源:原文 Fig. 2,PDF 第 8 页。
图 2 · velocity-PV 在延迟期的时间演化。 A、B 是 G 猴的 ±135° 试次:PV 在障碍物出现前长度不显著,出现后随即指向绕行方向;C、D 是 H 猴同样的条件:PV 先指向目标,障碍物出现后才转向初始运动方向。读这张图要把"长度"和"方向"分开:长度反映所用群体向量中的方向性信号强度,方向反映其预测的运动方向;本文未直接测量计划的确信度。
来源:原文 Fig. 3,PDF 第 9 页。
图 3 · 两种计划策略的全景。 A、B 是两猴在 delay 2 与 delay 3 中、5 种目标–障碍相对朝向下 PV 长度的时间过程:H 在目标出现后立即拉长 PV,G 不动;C、D 是 PV 与中心–目标向量的夹角(PV 长度不显著时曲线被隐去)。C、D 的对比是关键:H 的夹角先贴目标方向、障碍出现后跳到运动方向,G 的夹角从有值起就贴运动方向,而且 G 完成这个定向比 H 更快;这描述的是群体信号定向的时间差,不能直接推断动物的主观果断程度。
来源:原文 Fig. 4,PDF 第 10 页。
图 4 · 单神经元同时调谐目标与障碍方向。 A 按目标方向排列的 delay 1–3 raster,插图是 delay 3 的目标方向 cosine 拟合,这个神经元偏好左下目标;B 同一批 trial 按障碍物开口方向重新排列,同一神经元给出右上方向的第二组调谐;C 全体记录神经元对各参数显著调谐(cosine 拟合 p<0.05)的比例随时间的变化——每条曲线只在对应信息呈现后才抬升,delay 3 时过半神经元携带至少一个参数。这张图把"异质性响应是群体编码高维参数空间的 basis set"这个假说落到了实处,也顺便演示了单神经元层面多么"脏":同一组 spike,两种排列方式讲出两个故事。
讨论与解读边界
这项实验说明,解释方向调谐必须同时考虑任务结构和所用解码器。在中心外向任务上训练的方向解码器,更好地预测绕障时的初始运动方向;用绕障任务的目标调谐另建解码器,仍能读出目标信息。因此不能将结论缩写为“PMd 只编码运动方向、不编码目标”。
两只动物的神经时间过程与行为差异相互支持,但每种策略只有一只动物,个体差异与策略差异未被实验分离。群体向量长度反映的是在该解码器下方向性信号的强弱,不是对主观确信度的直接测量。运动期位置解码较好的结果,也应限制在本文任务和模型下,不能推广成 PMd 与 M1 固定的功能分工。
思考问题
- 能否让同一只猴通过改变绕障概率,在两种规划策略间切换,从而分离策略与个体差异?
- 若同时解码目标和初始运动方向,目标信息是否只在绕障条件增强,还是也受注意和任务难度影响?