F05 · An ethologically motivated neurobiology of primate visually-guided reach-to-grasp behavior
Mitchell, J.F., Wang, K.H., Batista, A.P., & Miller, C.T. (2024). Current Opinion in Neurobiology, 86, 102872. doi:10.1016/j.conb.2024.102872
这篇综述以狨猴捕食为例,说明动态目标、主动视觉和身体自由度会改变伸手抓握研究的问题与测量结果。其重点是自然行为中的快速预测性控制及研究机会,不能直接视为猕猴VR实验的同物种验证。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
灵长类自然伸手抓握常面对移动目标并伴随主动视觉和全身运动。狨猴捕食提供了研究这些条件的行为样本,也补充了经典约束任务的观察范围。
研究思路
综述串联野外捕食描述、实验室蟋蟀追踪及记录技术。野外轨迹用于描述多样性,实验室模型比较用于讨论预测控制,解剖与工具部分用于提出未来研究方向;三者的证据性质需分开。
主要结果
作为综述,它的"结果"是三组论点。其一,野外捕食行为的复杂度远超经典任务:狨猴按猎物切换策略——对付群居不逃跑的蚂蚁白蚁用"mouth capture"(站在猎物上方直接用嘴),对付会急逃的豆娘和竹节虫用"stalk/pause and lunge"(缓慢接近、停顿、高速双手扑抓),抓飞虫则先视觉锁定再起飞抓取;而且没有哪两次捕食是刻板的,每次都要临场解题。其二,抓飞虫是灵长类自然视觉引导伸手的极端案例,其运动学已被量化:凝视与猎物运动在捕食前约 1.5 s 才开始锁相,头部速度在最后约 400 ms 陡增;手不抄最优直线而是带多个拐点、路径 tortuosity 高;速度峰值的潜伏期约 200 ms,从发起手部动作到捕获通常不超过 500 ms——意味着伸手发起之后仍在根据猎物轨迹变化做在线视觉修正。其三,也是另一条证据:实验室活蟋蟀版(Shaw 2023)测得狨猴伸手的 visuomotor delay 约 80 ms,不足猕猴 double-step 范式估计(200–300 ms)的一半,与眼动追踪同量级;零延迟才拟合得好的 reactive 模型(pure pursuit、proportional navigation)在生物学上不成立,而含预测时间常数、把猎物位置外推 80–150 ms 的预测性追踪模型显著胜出。这组数字的分量在于:在所比较模型中,加入目标运动预测更能解释连续追踪表现,而传统double-step设计与连续目标追踪对预测的需求不同,需专门对照才能分离——范式本身决定了你能看到什么。
逐图解读
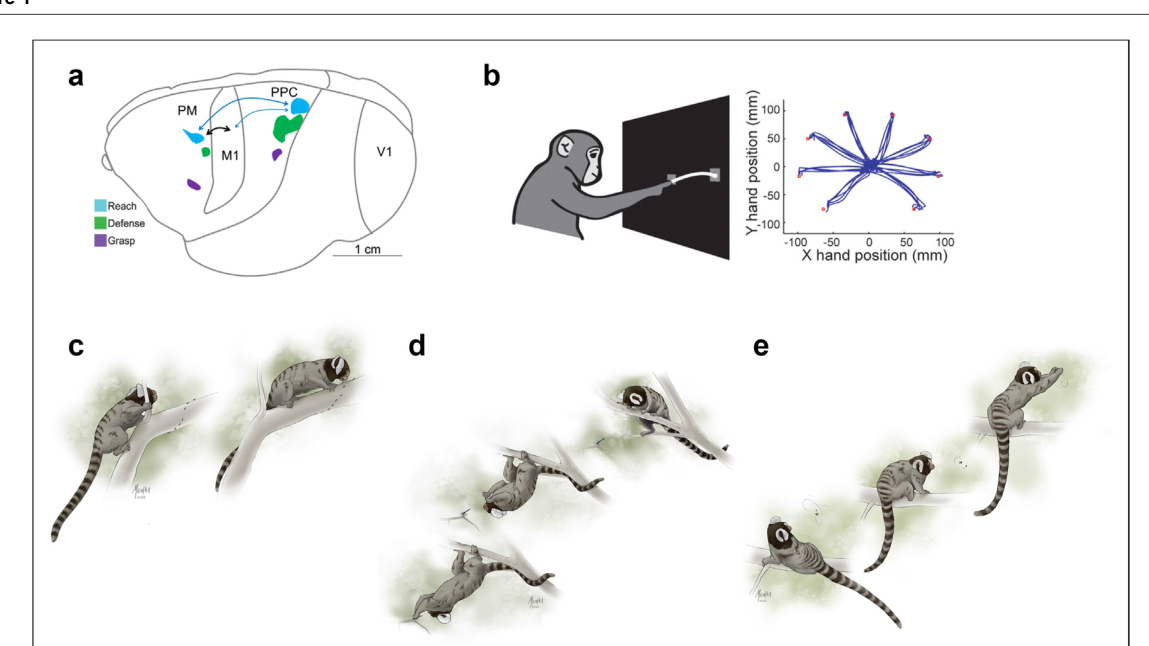
来源:原文 Fig. 1,PDF 第 2 页。
图 1 · 约束范式与自然语境的对照。 (a) Kaas 式 parieto-frontal 子网络示意:伸手子网络(浅蓝)由整合视觉与体感信息的顶叶节点前馈至运动前区并回流,抓取(紫色)另成一套;(b) 经典 center-out 任务:猕猴从中心点向屏幕外周点做准直线伸手;(c–e) 三种野外捕食策略的现场——嘴取、潜行-停顿-扑抓、飞行中抓取。这张图是全文的论点图:从 b 到 c–e 的落差,就是综述要说服读者去填的鸿沟,(a) 则提醒你相关解剖与刺激研究支持若干功能子网络,但不等于每类自然行为有独立固定模块。
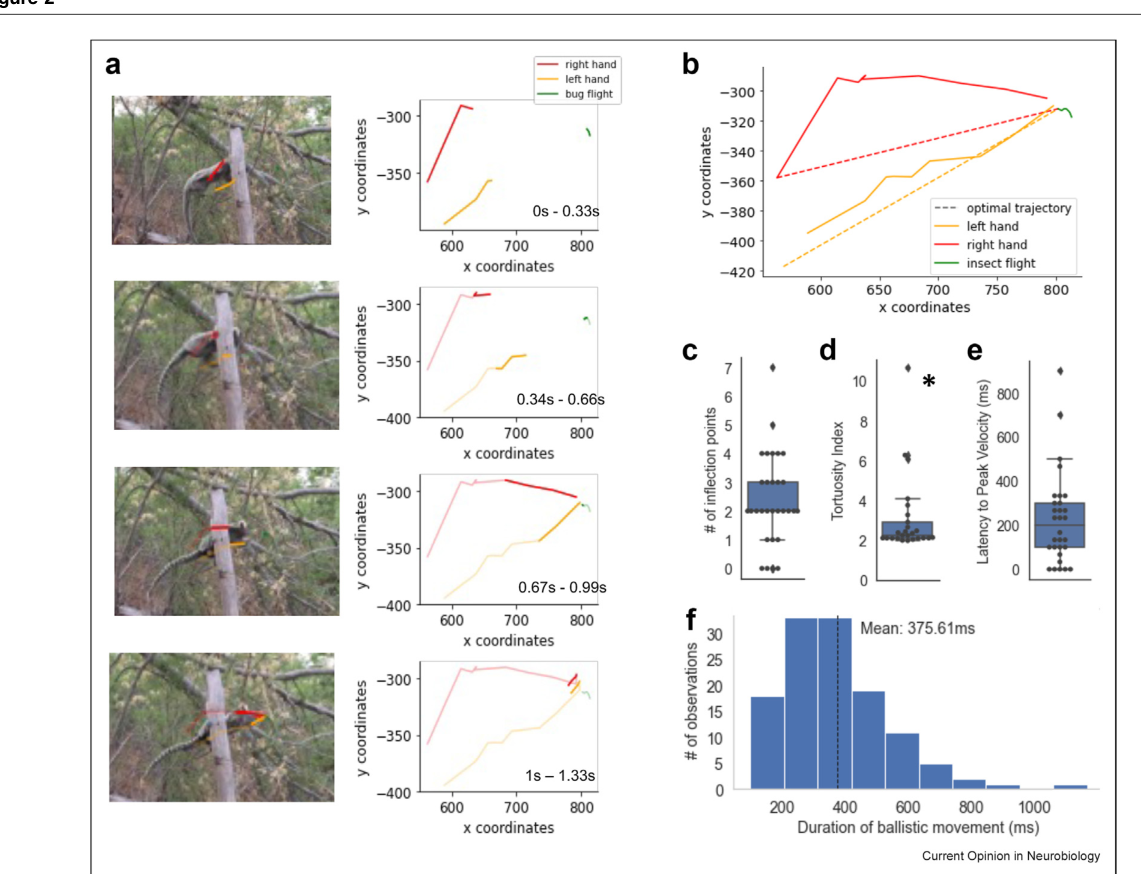
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · 野外捕食的运动学与主动视觉。 (a) 一次捕食事件的连续时间段落,左列为视频帧、右列为对应的右手(红)、左手(黄)与昆虫(绿)XY 轨迹;(b) 双手与猎物的整段路径,虚线标每只手的"最优轨迹";(c) 所有分析视频中伸手动作的拐点数分布;(d) 路径 tortuosity 指数;(e) 抓取速度峰值的潜伏期(约 200 ms);(f) 手部动作从发起到捕获的时长(多在 500 ms 以内)。读这张图抓两组对照:手与"最优直线"的偏离(b–d)与持续调整相符,但曲率本身不能唯一证明在线视觉修正,而 (e、f) 描述了较短的捕捉时程;单凭整段动作时长不能估计视觉反馈延迟。图 3 另用动态目标数据估计视觉运动延迟。
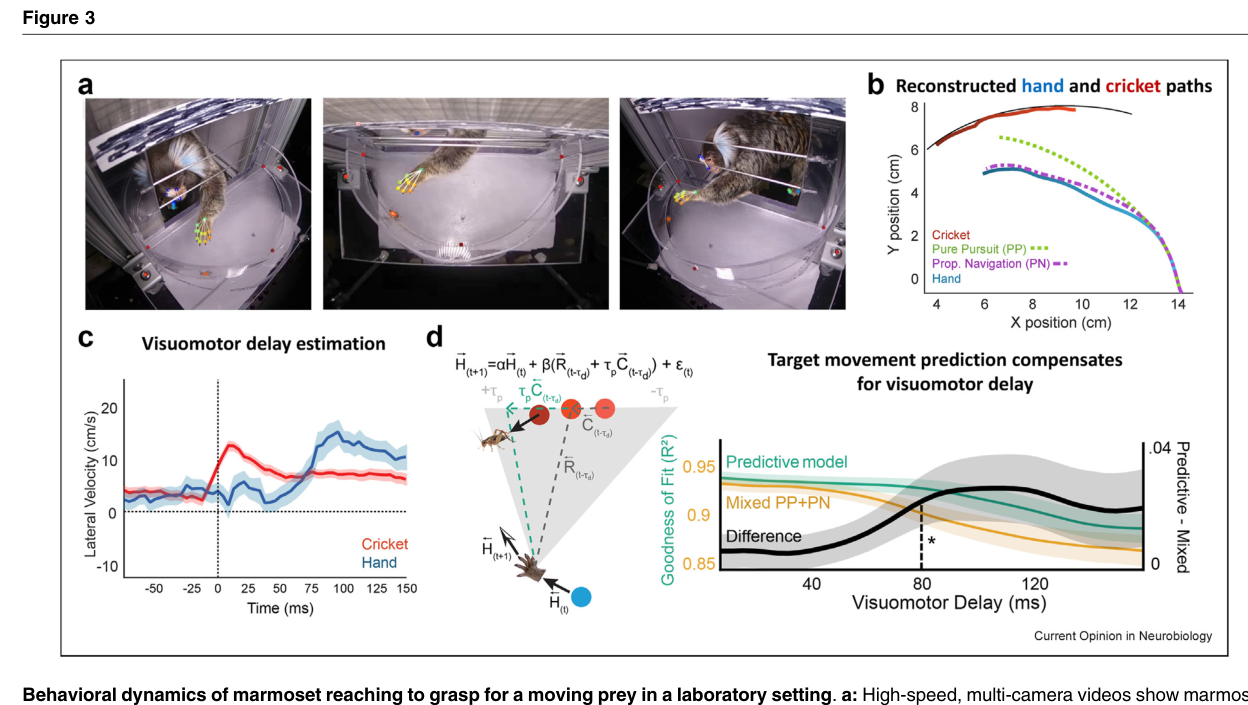
来源:原文 Fig. 3,PDF 第 5 页。
图 3 · 实验室里的动态猎物伸手。 (a) 三台高速相机同步拍摄狨猴伸手活蟋蟀,彩色点为 DeepLabCut 标注;(b) 单 trial 的手(蓝)与蟋蟀(红)三维轨迹重建,叠加 pure pursuit(绿,手速度对准视线)与 proportional navigation(紫,手速度旋转跟随视线旋转)两种策略的模拟——PN 拟合更好,但两者都假设零延迟;(c) 蟋蟀侧向速度(红)与手侧向速度(蓝)之间的滞后约 80 ms,即 visuomotor delay;(d) 含延迟与预测时间常数的多元线性模型:预测性追踪模型(青)对延迟的退化远比 steering 模型(橙)平缓。这张图承载三个主要结果——80 ms 延迟、80–150 ms 外推、预测模型胜出——支持在连续动态目标任务中检验预测控制,并不排除其他范式获得相关证据。
讨论与解读边界
野外轨迹描述和实验室活蟋蟀追踪互相补充:前者说明行为的多样性,后者通过延迟与模型比较检验控制策略。约80 ms反应时及80–150 ms预测范围来自文中引用的狨猴工作,并非本综述新做的一套猕猴实验。
手路径弯曲或有拐点本身不能证明每次变化都由在线视觉纠正造成。预测模型在所比较模型中拟合较好,也不等于唯一神经机制。与猕猴double-step范式的延迟比较同时混入物种、目标运动、行为和测量定义差异;不应概括为自然行为必然更快,或传统范式无法研究预测。技术路线与解剖图提供研究方向,尚非对具体捕食回路的因果验证。
思考问题
- 在同一物种、相同运动范围内比较目标跳变与连续移动,预测项和反应延迟各有多少变化?
- 若在猎物运动中加入不可预测的转向,怎样区分预测误差修正与纯反馈追踪?