B06 · Learning to control a brain–machine interface for reaching and grasping by primates
Carmena, J.M., Lebedev, M.A., Crist, R.E., O'Doherty, J.E., Santucci, D.M., Dimitrov, D.F., Patil, P.G., Henriquez, C.S., & Nicolelis, M.A.L. (2003). PLoS Biology, 1, e42. doi:10.1371/journal.pbio.0000042
猕猴可利用额顶叶群体活动控制包含平面位移和握力的 BMI,学习伴随调谐与群体相关变化。装置具有多自由度,并不意味着实验同时解码了全部机械臂自由度或自然手形。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
让脑活动驱动实际执行器,需要同时处理运动参数读出、执行器动力学和闭环练习。本文将伸手、握力及其组合放入同一BMI研究。
研究思路
作者以杆控记录训练线性预测器,再切换到脑控并引入机械臂闭环。行为表现、神经元贡献、方向调谐和相关结构用于描述控制及学习变化。机械臂的硬件自由度应与实际解码和控制维度分开报告。
方法
两只成年雌性恒河猴,用左手操作。多组 16–64 根微丝的阵列(相邻间距 300 μm)植入双侧 M1、PMd、SMA,monkey 1(96 根)另植入 S1,monkey 2(320 根)另植入后顶叶 MIP;512 通道 Plexon 系统同步记录。稳定的单日记录规模达到 90 个 single unit 加 95 个 multiunit(monkey 1)、75 个 single unit 加 175 个 multiunit(monkey 2),群体可维持数周甚至数月稳定。解码用 Wiener filter:100 ms bin、取过去 10 个 bin 的发放率线性组合预测各运动参数;脑控时预测速度经积分得到位置输出(2 Hz 高通防漂移)。他们还离线试过 Kalman filter、NLMS 和前馈神经网络,没有一种能稳定胜过 Wiener filter。机械臂经 CAN 总线以 60 ms 周期通信,模型输出到机械臂响应的延迟约 60–90 ms,光标位置显示机械手 X/Y 坐标、光标大小反馈夹爪受力。随机行为底线用 Monte Carlo 随机游走模拟(速度 1–500 mm/s、每个速度 10,000 trial)。方向调谐按 8 个方向 bin 计算并做 z 式归一化,调谐深度 DTD 取归一化调谐曲线的极差;neuron-dropping 每个规模重复 30 次。
主要结果
行为层面的结果干净利落:三个任务里脑控成绩都逼近杆控水平,且远超随机游走底线;猴子在脑控中很快停止手臂运动,腕屈肌、腕伸肌、肱二头肌的 EMG 活动基本消失(杆控与脑控的肌电标准差之比分别为 14.67、9.87 和 2.77)。机械臂接入闭环的瞬间性能确实跳水,但约 7 个训练 session 后就回到原有水平。与早年开环实验不同,模型系数冻结后预测在超过 1 小时的记录里几乎不漂移(握力预测 R = 0.84 ± 0.005,位置 R = 0.63 ± 0.003,速度 R = 0.73 ± 0.005),作者把这归功于连续视觉反馈带来的稳定化。
解码性能的系统刻画是给整个领域定标尺的部分:训练良好的动物身上,线性模型解释了手位置方差的 85%、手速度的 80%、握力的 95%、多肌肉 EMG 的 61%。neuron-dropping 分析显示每个脑区都含有所有参数的信息,但效率不同——M1 样本(33–56 个细胞)对全部参数都是最佳预测者(位置 73%、速度 66%、握力 83%),后顶叶对握力出奇地强(73%),SMA 擅长运动学(位置、速度各 51%)但对握力很弱(19%),通常需要 30 个以上随机采样的神经元才能达到可接受的预测。Single unit 比 multiunit 好 17–20%,但多加约 30 个 multiunit 通道就能补齐 20 个 single unit 的差距——支持在本任务中以更多多单元通道补偿部分信号质量差异,临床配置仍需独立评价。
可塑性部分是这篇文章今天仍被引用最多的原因。跨 42 个 session,单个神经元对位置模型预测的平均贡献持续上升(跨场次平均 R = 0.80,p < 0.001),到训练结束时 SMA、PMd、S1 的贡献赶上了起点就领先的 M1;而速度模型的贡献未见明显变化(R = 0.05)——这 42 个 session 里 BMI 用的正是位置模型,学习性的增强选择性地发生在"被用作控制输出"的参数上。切到脑控后方向调谐深度普遍下降,手臂完全不动时最明显(68% 的神经元 DTD 缩小,14% 不变,18% 反而增强);调谐模式与杆控的相关从有手臂运动时的 0.70 掉到无手臂运动时的 0.48。跨天看,脑控下的调谐曲线逐渐聚成若干共享偏好的集团,preferred direction 的散布收窄,群体平均调谐变尖并顺时针旋转;单个 60 min session 内部也可见调谐分布收紧、调谐深度缓慢回升(但始终低于杆控)。同时神经元两两间发放相关从 0.02 涨到 0.06(3 倍,p < 0.0001),M1、S1、PMd 内部和 M1–S1 之间的提升最猛。
抓握任务提供了另一组结果:task 2 七八个 session 就学会,期间 M1 与 S1 对握力模型的贡献显著上升(R 分别为 0.77 和 0.85),PMd 和 SMA 未呈现相同的显著趋势;这一差异与脑区贡献具有任务依赖性的解释相符,不能直接据此划分其功能。task 3 中,杆控期间的 DTD 随训练近乎线性增长,M1 增幅最大;14 个 session 里位置和速度的实时预测稳步改善,握力预测始终维持高位(monkey 1 R = 0.86 ± 0.04,monkey 2 R = 0.79 ± 0.03)。最关键的是行为轨迹:无论杆控还是脑控,猴子(以及 BMI 本身)都先完成位移(X、Y 变化、F 平稳)、到位后力量爬升(F 上升、X、Y 稳住)——同一群神经元在不同时刻输出了不同类别的运动命令,伸手与抓握的序列结构被完整复现。
逐图解读
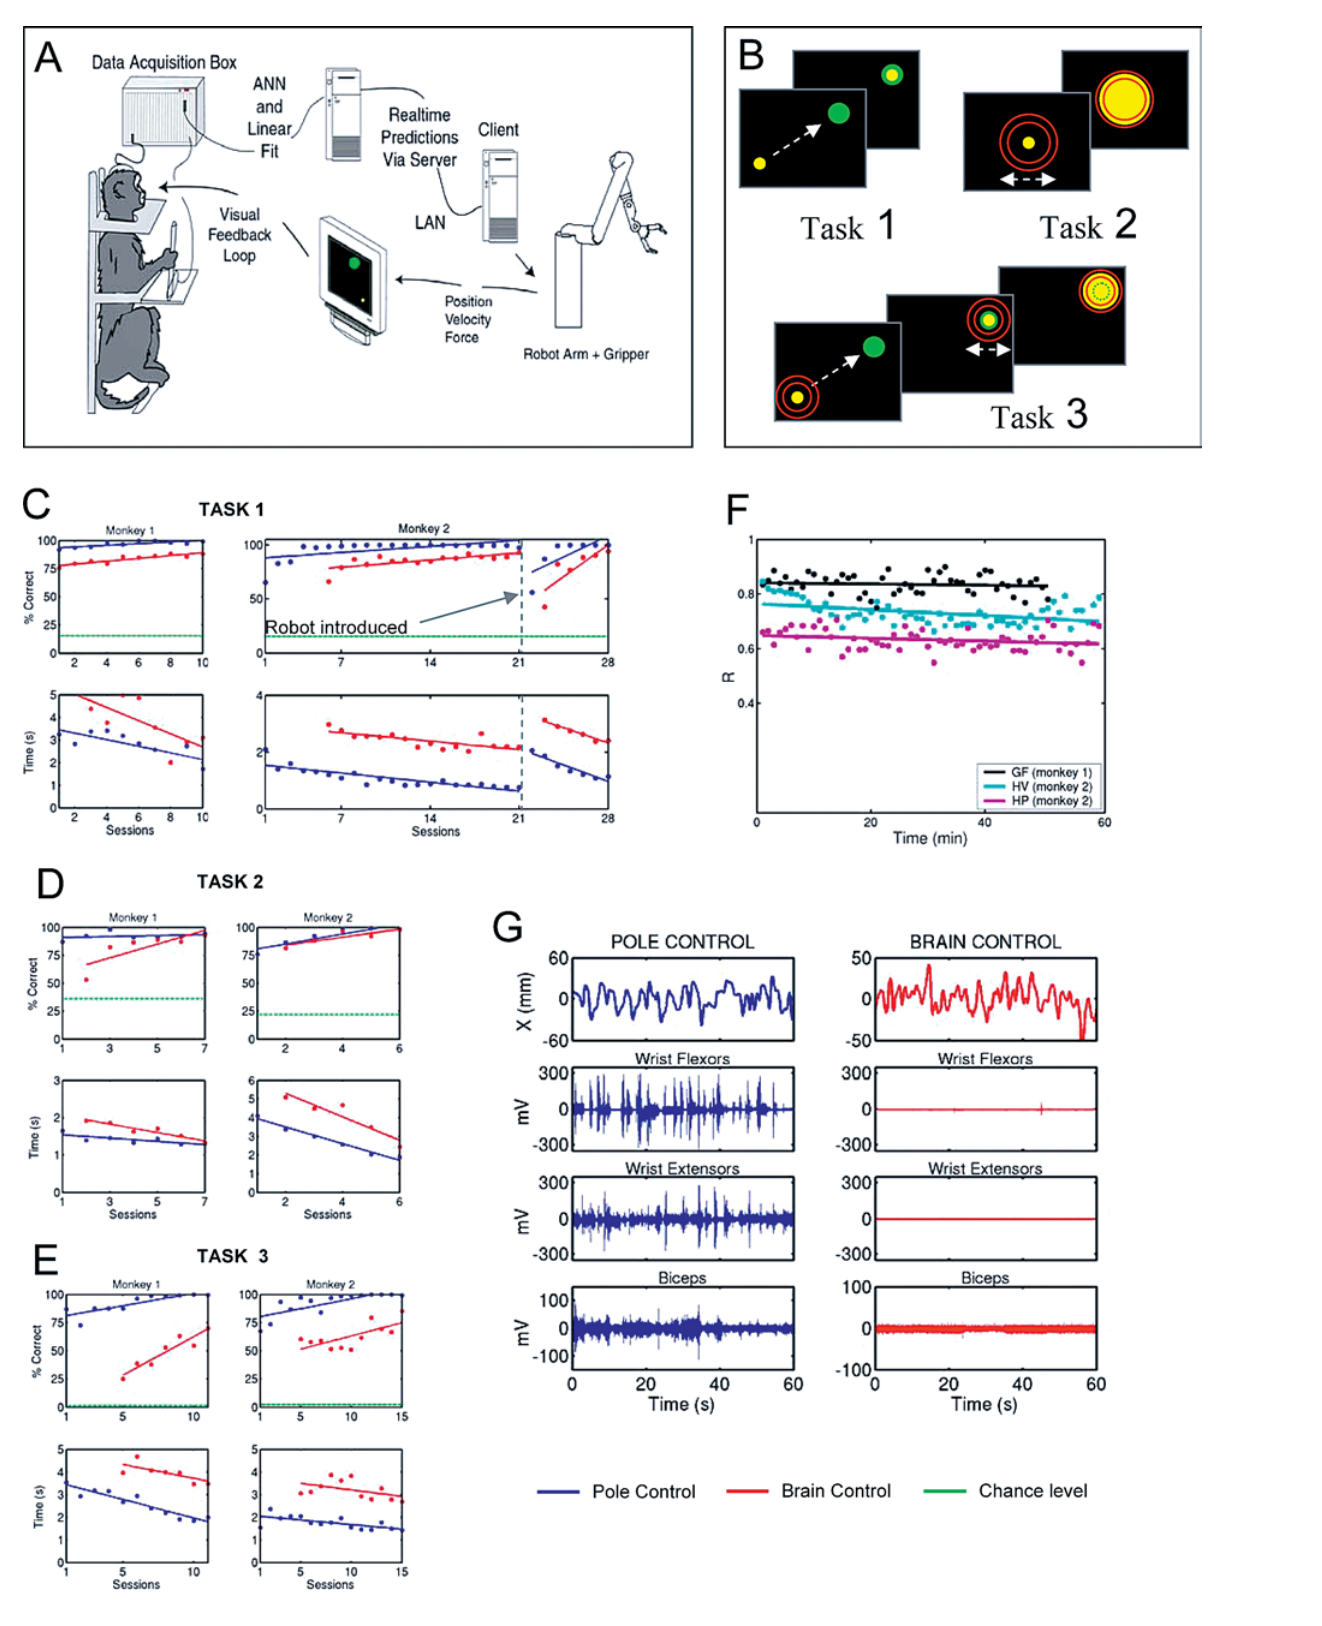
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 实验装置、三种任务与学习曲线。 (A) 整个闭环的骨架:采集系统、实时运行多个线性模型的计算机、带夹爪与力传感器的机械臂、视觉显示器,杆上装握力传感器。(B) 三个任务的示意图——task 1 光标到目标,task 2 按环形指示产生握力,task 3 二者串联。(C–E) 两只猴在三个任务里的正确率和完成时间:蓝为杆控、红为脑控,绿线是随机游走的底线,脑控成绩一路爬升逼近杆控;task 1 里机械臂接入闭环(图中可见)造成性能骤降,又在约 7 个 session 内恢复。(F) 模型冻结后在超过 50 min 的长 session 里预测保持稳定,这是与早年开环实验漂移问题的关键区别。(G) 脑控无手臂运动时的表面 EMG:腕屈肌、腕伸肌、肱二头肌全程安静,支持在没有明显所测肌肉活动时仍可进行脑控。这张图承载的信息量在今天看仍属奢侈——装置、任务、学习、稳定性、EMG 证据一网打尽。
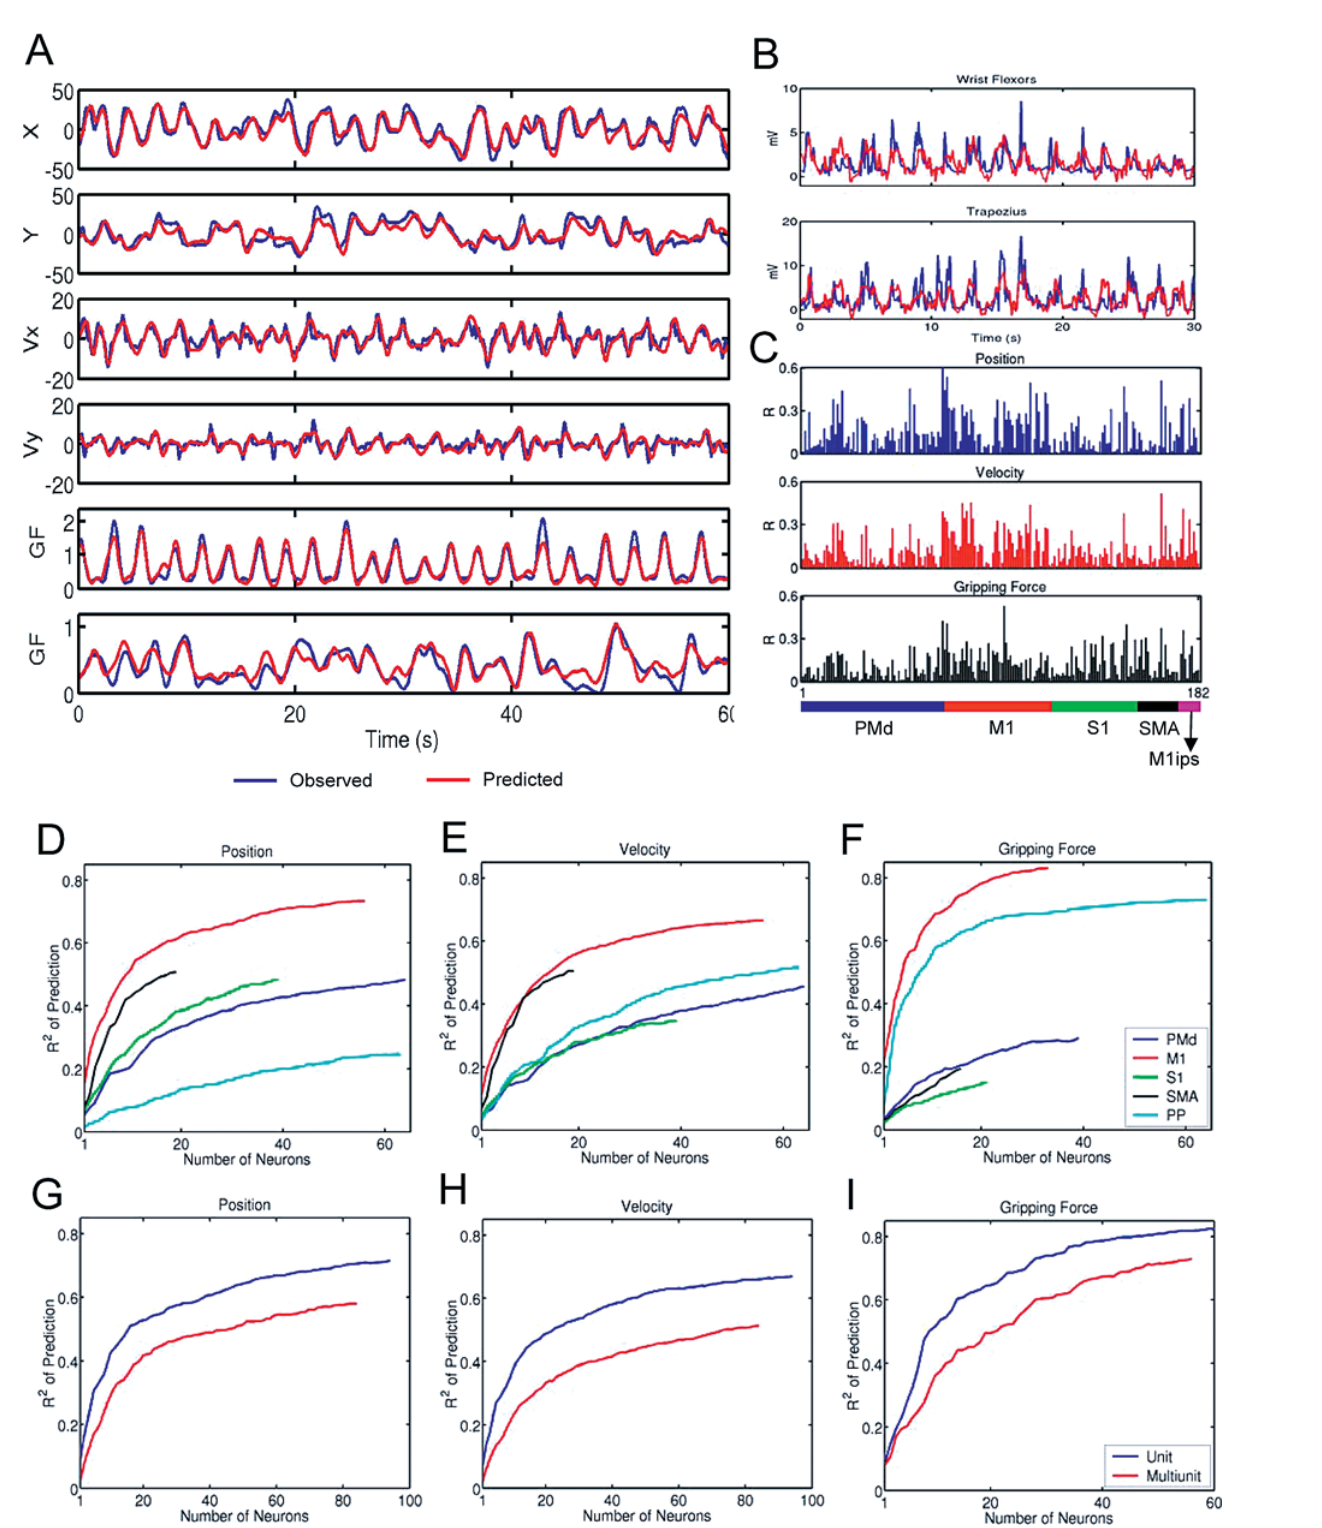
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · 线性模型能实时预测什么、需要谁。 (A) 手位置(HPx、HPy)、手速度(HVx、HVy)和握力(GF)的真实值(蓝)与模型预测(红)叠加,贴合度肉眼可见。(B) 多块肌肉 EMG 的记录与预测。(C) 单神经元对多参数预测的贡献(R 值色码):几乎每个神经元都对多个参数有贡献,每个脑区都含有所有参数的信息——这是"分布式编码"论点的直接证据。(D–F) 按皮层区分层的 neuron-dropping 曲线:M1 全面领先,后顶叶在握力上反超,SMA 握力垫底,达到可用预测一般需要 30 个以上神经元。(G–I) Single unit(蓝)与 multiunit(红)的贡献对比:单单元好 17–20%,但堆通道数可以弥补。这张图把"用什么信号、采多少、从哪儿采"三个当年吵得最凶的问题一次讲清。
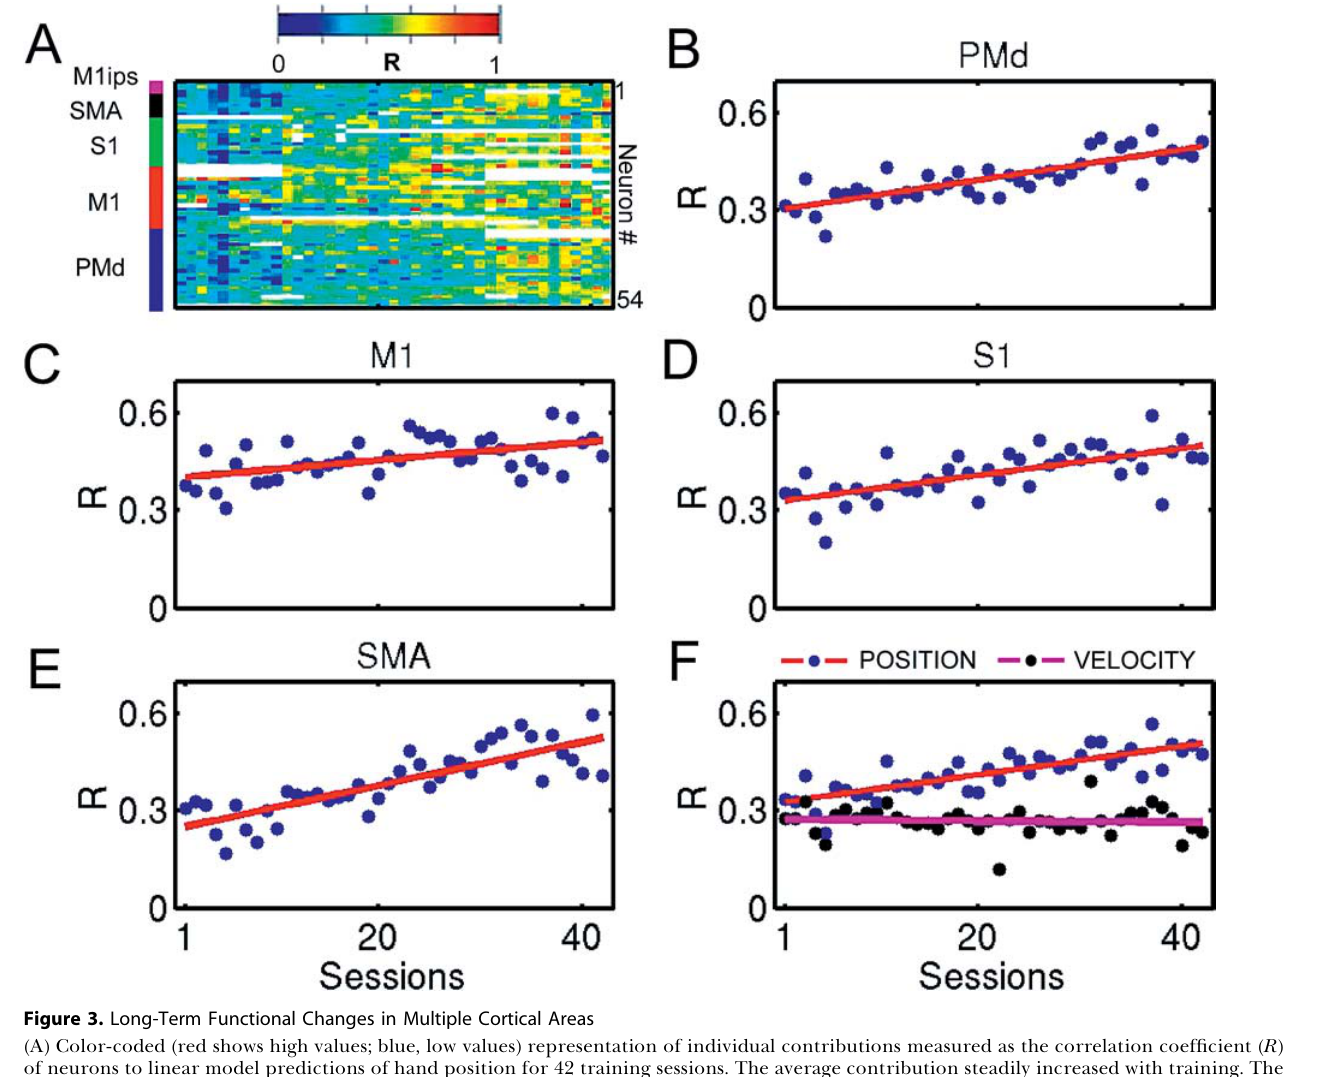
来源:原文 Fig. 3,PDF 第 7 页。
图 3 · 跨 42 个 session 的皮层功能重组。 (A) 每一行是一个神经元对位置模型预测的贡献(R 值色码),左侧色条标皮层位置,42 列是 42 个训练日——整体颜色随时间变暖,平均贡献持续上升。(B–E) 分区(PMd、M1、S1、SMA)的平均贡献演化:M1 起点最高,SMA、PMd、S1 随训练赶上,斜率均显著。(F) 全群体对位置模型与速度模型贡献的对比:只有位置模型的贡献线性增长,速度模型原地踏步。这一小格是全文最锋利的证据——这 42 个 session 里 BMI 恰好用位置控制,可塑性的增强精准地选择了他被"聘用"的那个参数,学习不是弥漫性的增益调节,而是有指向的。
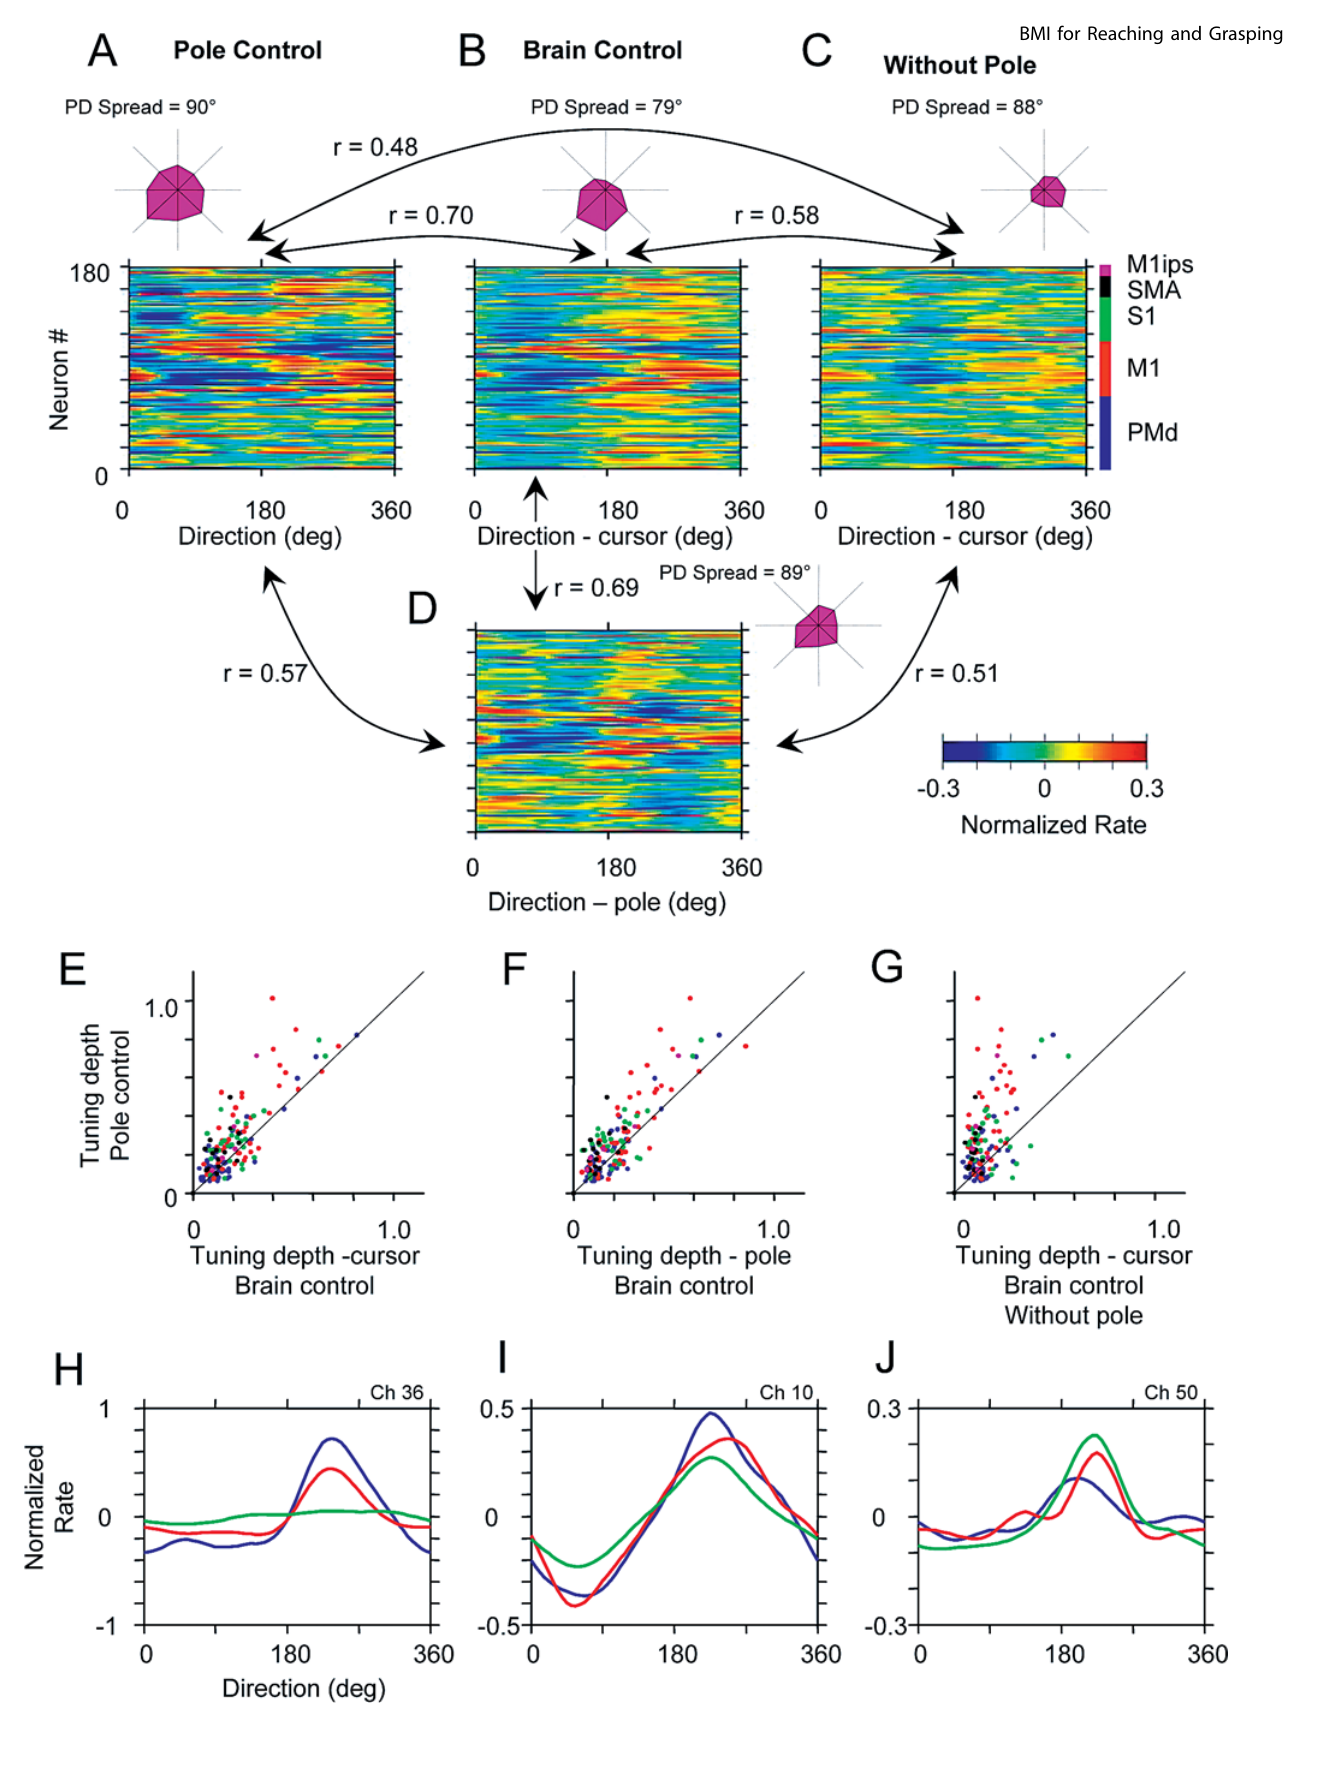
来源:原文 Fig. 4,PDF 第 8 页。
图 4 · 不同操作模式下的方向调谐。 (A–D) 同一群神经元的调谐曲线矩阵:杆控(A)、脑控有手臂运动以光标为参照(B)、脑控无手臂运动以光标为参照(C)、脑控有手臂运动以杆为参照(D),每幅配群体平均调谐的极坐标图和 preferred direction 散布角。杆控与脑控(有手臂、光标参照)的相关最高(R = 0.70),手臂停掉后掉到 0.48——调谐跟着光标走、也跟着手臂走,两者都在起作用。(E–G) 杆控与脑控 DTD 的散点:大多位于对角线下方,脑控调谐普遍变浅,无手臂运动时最狠。(H–J) 三个示例神经元:有只在有手臂运动时调谐的,有各模式都调谐但深度递减的,也有少数在脑控下反而调谐更好的。这张图论证的核心是:调谐深度下降既不能全用本体感觉消失解释(有手臂运动的脑控也降),也不能全用运动动力学解释,方向调谐是动力学与抽象目标的混合物。
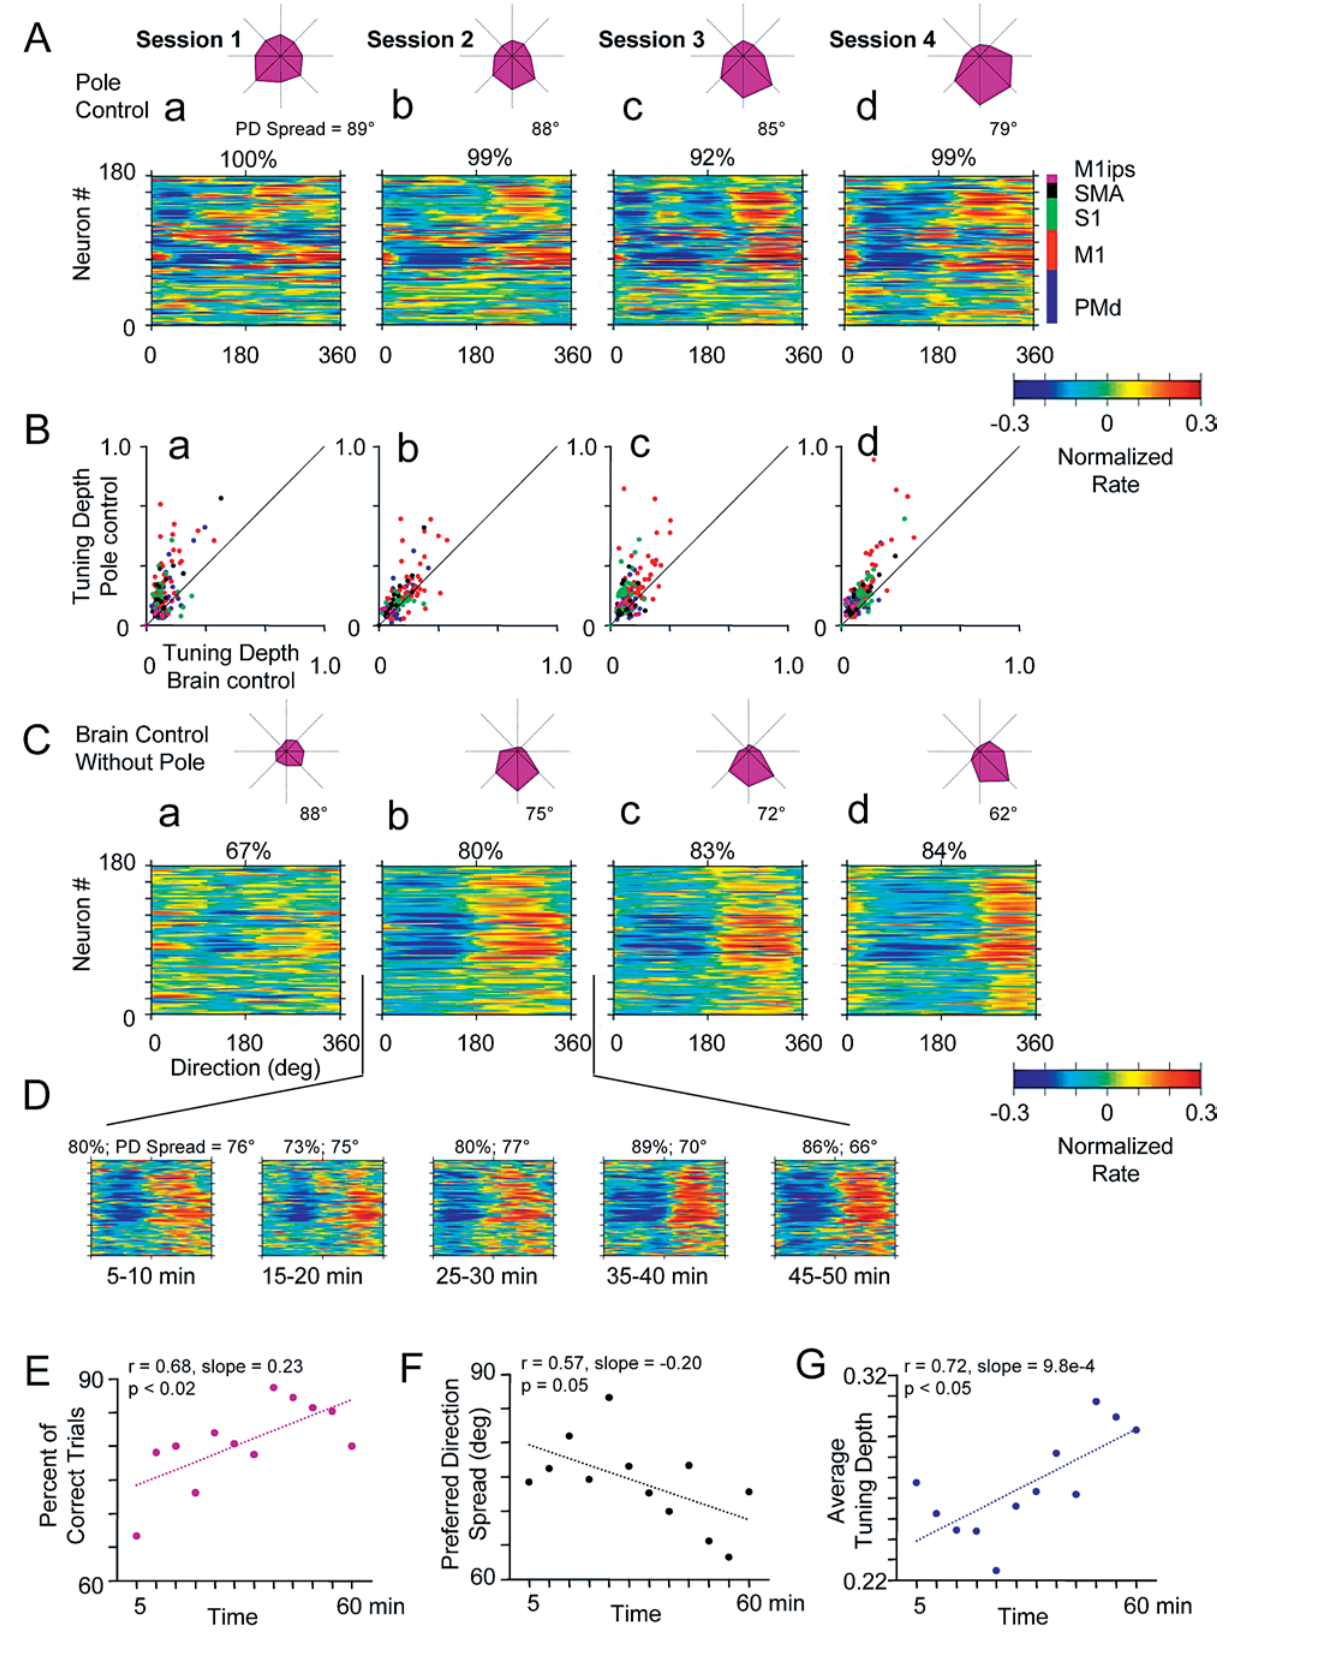
来源:原文 Fig. 5,PDF 第 10 页。
图 5 · 脑控训练中方向调谐的可塑性。 (A, C) 同一群体在四个 session 里杆控(A)与脑控(C)的调谐曲线:脑控的曲线随训练从杂乱无章逐渐聚成若干共享 preferred direction 的集团,散布角收窄,群体平均调谐(极坐标图)变尖并逐步顺时针旋转;每幅标注当天的正确率。(B) 逐日杆控 vs 脑控的 DTD 散点,杆控始终更深。(D–G) 单个 60 min session 内的动态:按 5 min 切片看,调谐分布逐段收紧(D),行为性能同步爬升(E),preferred direction 散布持续下降(F),平均调谐深度缓慢回升但仍不及杆控(G)。如果说图 4 是状态对比,这张图就是过程记录——重组既发生在天与天之间,也发生在分钟与分钟之间,时间尺度与技能学习对得上。
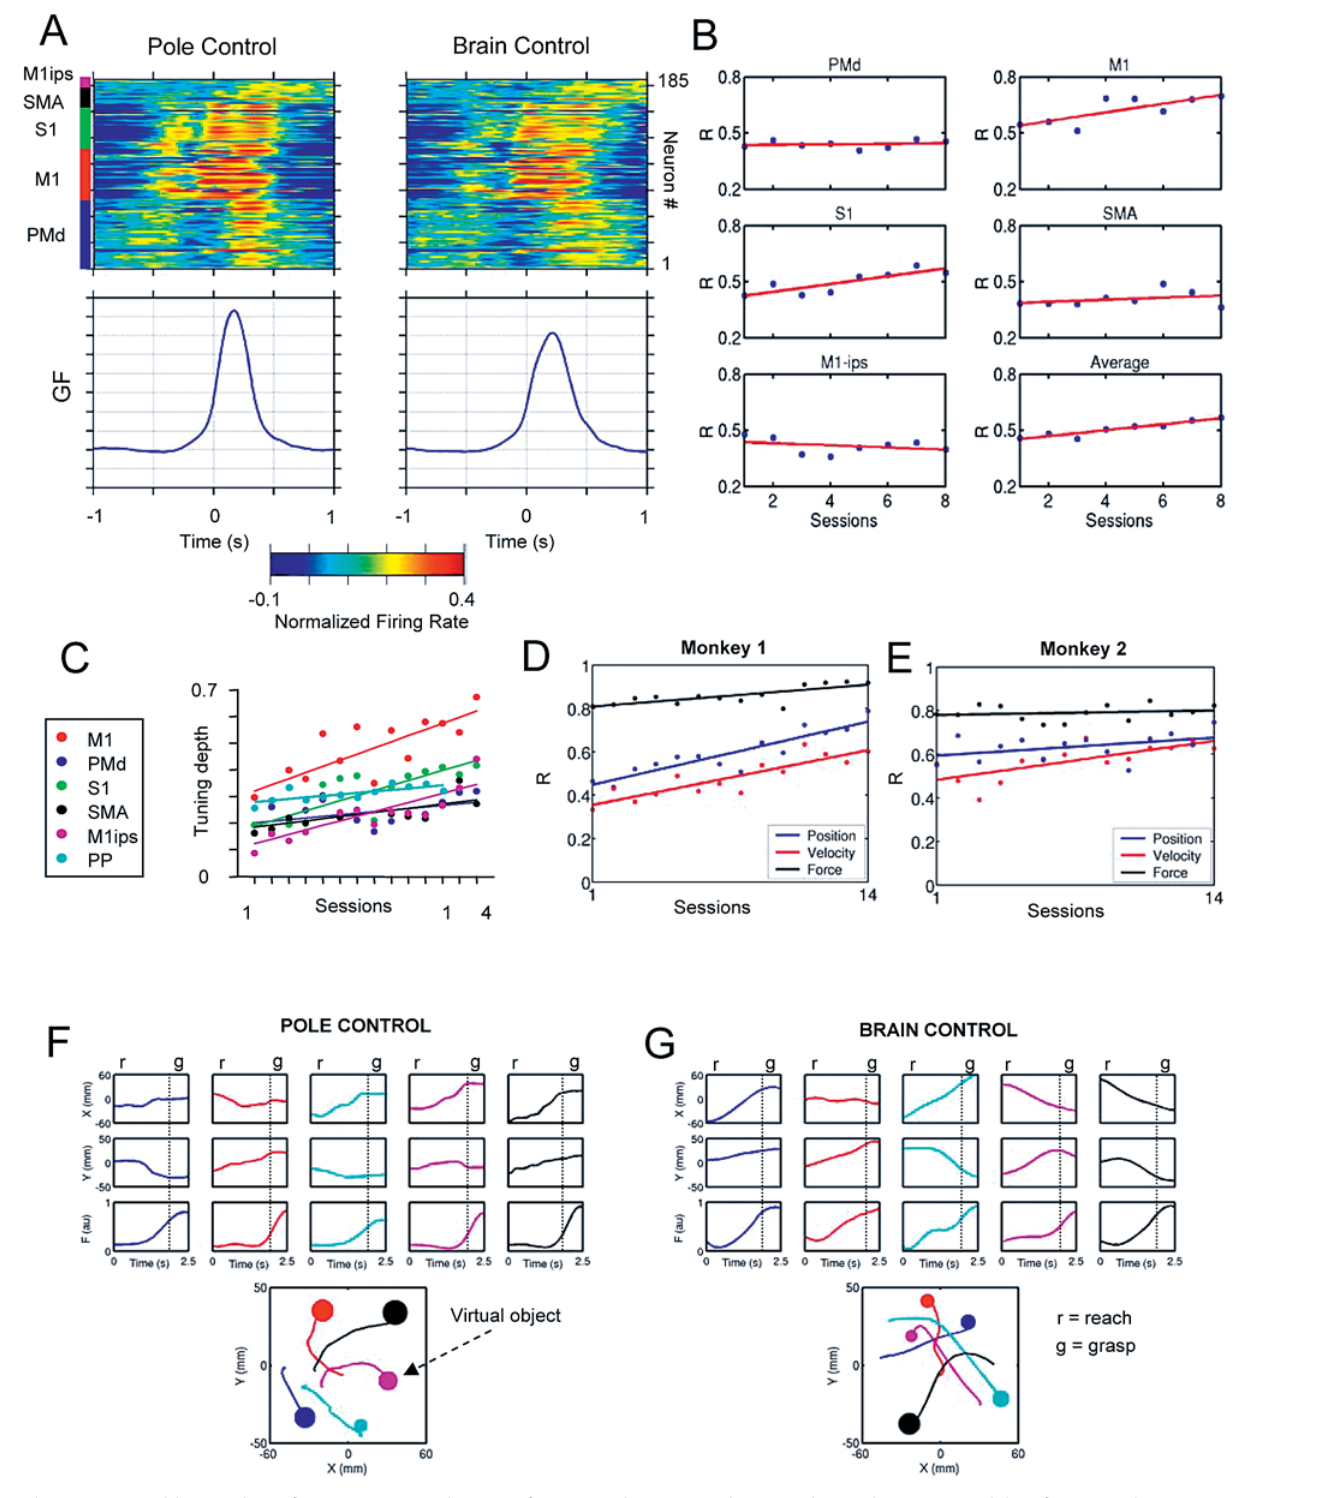
来源:原文 Fig. 6,PDF 第 12 页。
图 6 · 握力的群体编码与伸手抓握的整合。 (A) Task 2 中按握力起始对齐的群体 PETH(逐神经元归一化、色码显示),上方色条标皮层位置,杆控(左)与脑控(右)的模式高度相似,不同脑区的激活图案清晰可辨。(B) Task 2 学习期间各脑区对模型预测贡献的演化:M1 和 S1 显著上升,PMd、SMA、同侧 M1 基本不动——不同脑区对这两类任务的预测贡献变化不同,不能据此划分互不重叠的功能模块。(C) Task 3 杆控训练期间六个脑区的 DTD 几乎线性增长,M1 增幅最大。(D, E) 14 个 session 中两只猴对位置、速度、握力三类模型实时预测的演化:运动学预测持续改善,握力预测高开稳走。(F, G) 训练后期杆控与脑控的代表性轨迹与握力曲线,圆盘大小表示握力,虚线划分伸手相与抓握相——两种模式下都是先位移、后发力。这张图是全文命题的收口:BMI 不止能移动光标,它能按正确的时间结构组织和输出一整套上肢动作。
讨论与解读边界
这项研究把运动参数解码、真实执行器和闭环学习联系起来。本文行为主要限制在二维位移与一维握力,伸手后用力的时序可以重现,但不能据此宣称完整自然抓握已得到恢复。文中“最多解释 85%、80%、95%、61% 的方差”分别对应位置、速度、握力及 EMG,不能改写为相同数值的相关系数 R。
学习中贡献度、调谐和相关结构的变化是重要观察,但与执行器动力学被“写入大脑”之间仍有推论距离。EMG 控制削弱了所测肌肉运动的解释;它既不测量所有肌肉,也不验证身体所有权。跨论文比较解码精度,还须匹配任务、变量、时间对齐与评估指标,不能据年份或单个 R 值判断某种算法全面优越。
思考问题
- 若保持视觉反馈与任务不变,只改变机械臂延迟或惯性,哪些神经变化可归因于执行器动力学?
- 从握力控制扩展到独立手指姿态时,原有神经群体和线性解码是否仍足够?