B02 · A brain-machine interface enables bimanual arm movements in monkeys
Ifft, P.J., Shokur, S., Li, Z., Lebedev, M.A., & Nicolelis, M.A.L. (2013). Science Translational Medicine, 5, 210ra154. doi:10.1126/scitranslmed.3006159
双半球、多脑区记录支持猕猴同时控制两条虚拟手臂。本文的联合解码优于所比较的分臂模型,学习伴随神经调制及相关结构变化;这些变化尚不是可塑性机制的因果证明。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
同时控制两个效应器,要求解码器处理双臂条件下的神经活动,而不能预设两个单臂响应简单相加。被动观察训练还提供了不依赖实际手臂运动的初始化方式。
研究思路
研究结合双半球多区记录、双臂虚拟控制和联合四维解码,比较单臂与双臂调谐及联合与分开的解码方案。被动观察后转入脑控,检验控制表现与群体统计变化;这里的双臂同时控制不等于复杂双手物体操作。
方法
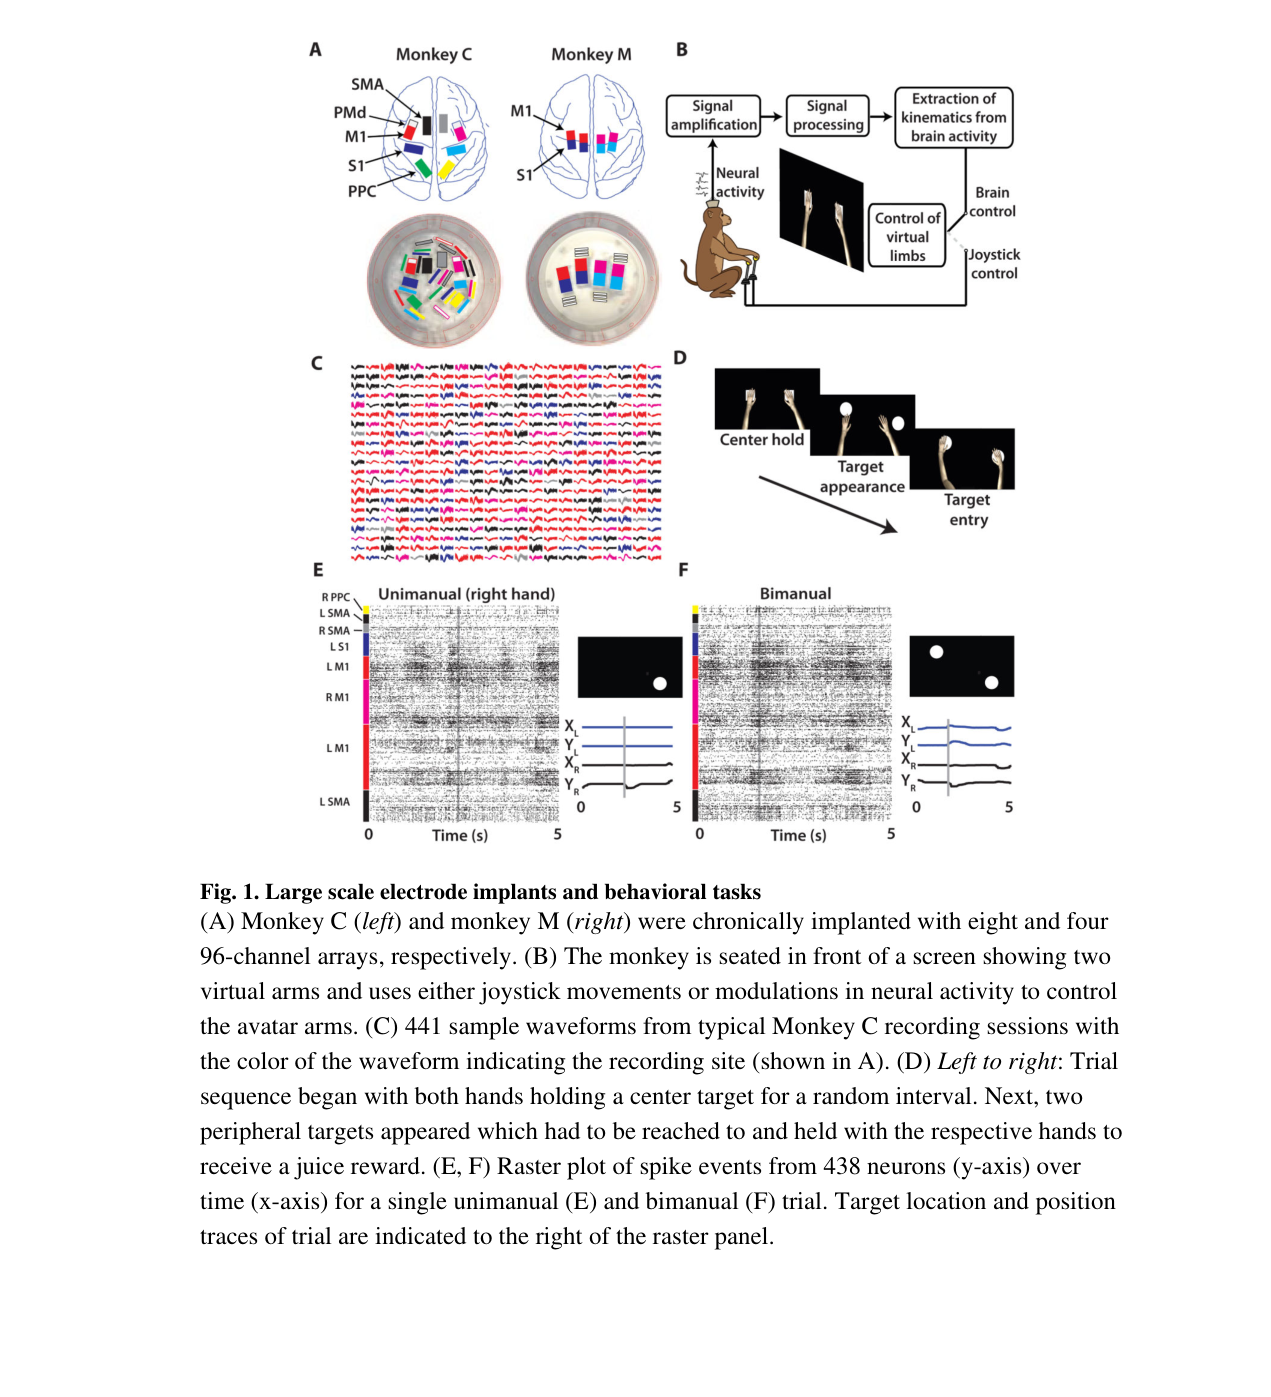
两只恒河猴。猴 C(雌性,6.2 kg)植入八个 96 通道阵列(共 768 通道,双侧 SMA、M1、S1、PMd、PPC;受采集系统限制同时只录 384 通道,PMd 因单元质量差被排除),术前已过度训练 12 个月的单双臂 center-out 任务,joystick 正确率 >97%。猴 M(雄性,10.6 kg)四个 96 通道阵列(384 通道,双半球的 arm/leg M1 与 S1,只用 arm 区数据),只学过左手单臂 joystick,对双臂任务完全 naive。任务为第一人称视角的双臂 center-out:两手先各按住中央方靶(随机保持 400–1000 ms),然后出现两个外周圆靶(左右手各四选一,共 16 种组合),双手各到达并保持 100 ms 得果汁奖励,10 s 超时。控制模式三级递进:双 joystick 手控 → BC with arms(脑控但手仍握杆,仅猴 C,24 个 session)→ BC without arms(双臂绑住遮盖,两猴都做)。解码器为 UKF,每 100 ms 更新,5 阶即 3 个过去 + 2 个未来 100 ms bin 的放电历史,用每天开头 5–7 分钟的 joystick 或 passive observation 数据拟合。分析上用 Δz(运动期 150–600 ms 对基线的 z-score 差)量化调制,用回归拟合双臂方向调谐,用 neuron dropping 曲线考察群体规模效应,用 k-NN(k=5)解码目标位置以避开"解码器自己制造调谐"的循环论证,并用 shuffled-target 重放估计 chance 水平。注意力用眼动追踪监控,注视屏幕不足 90% 的 trial 剔除。
主要结果
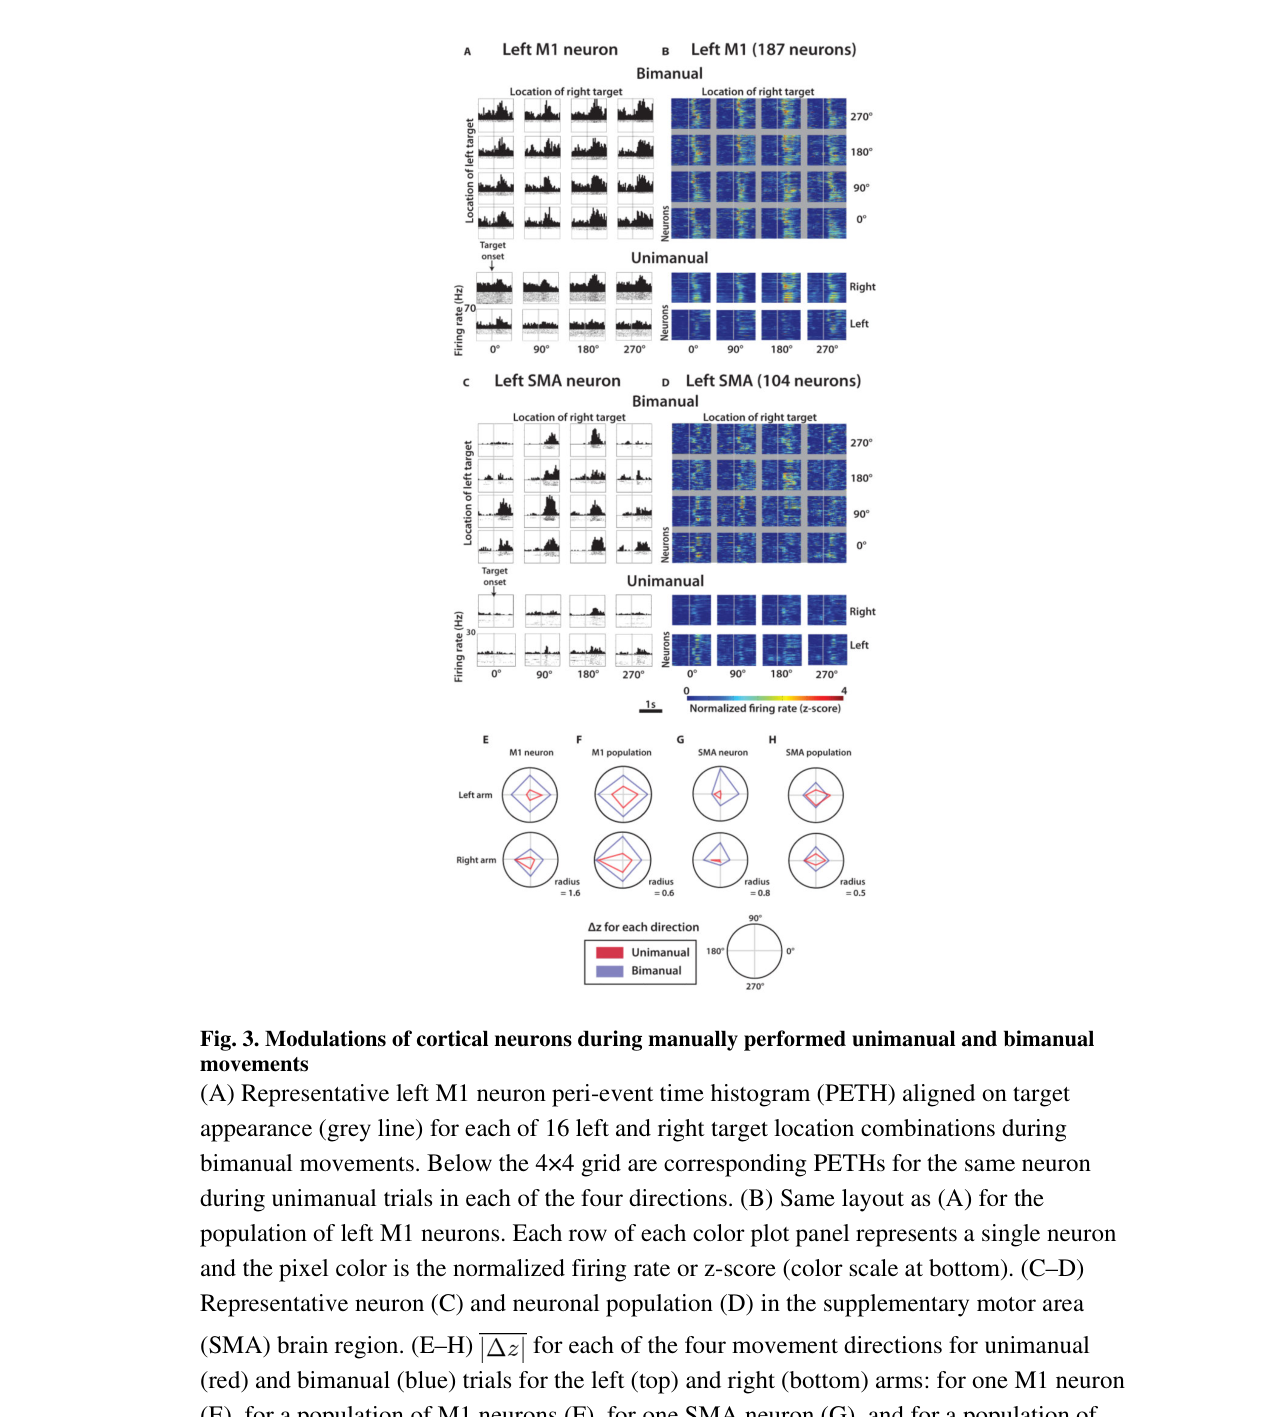
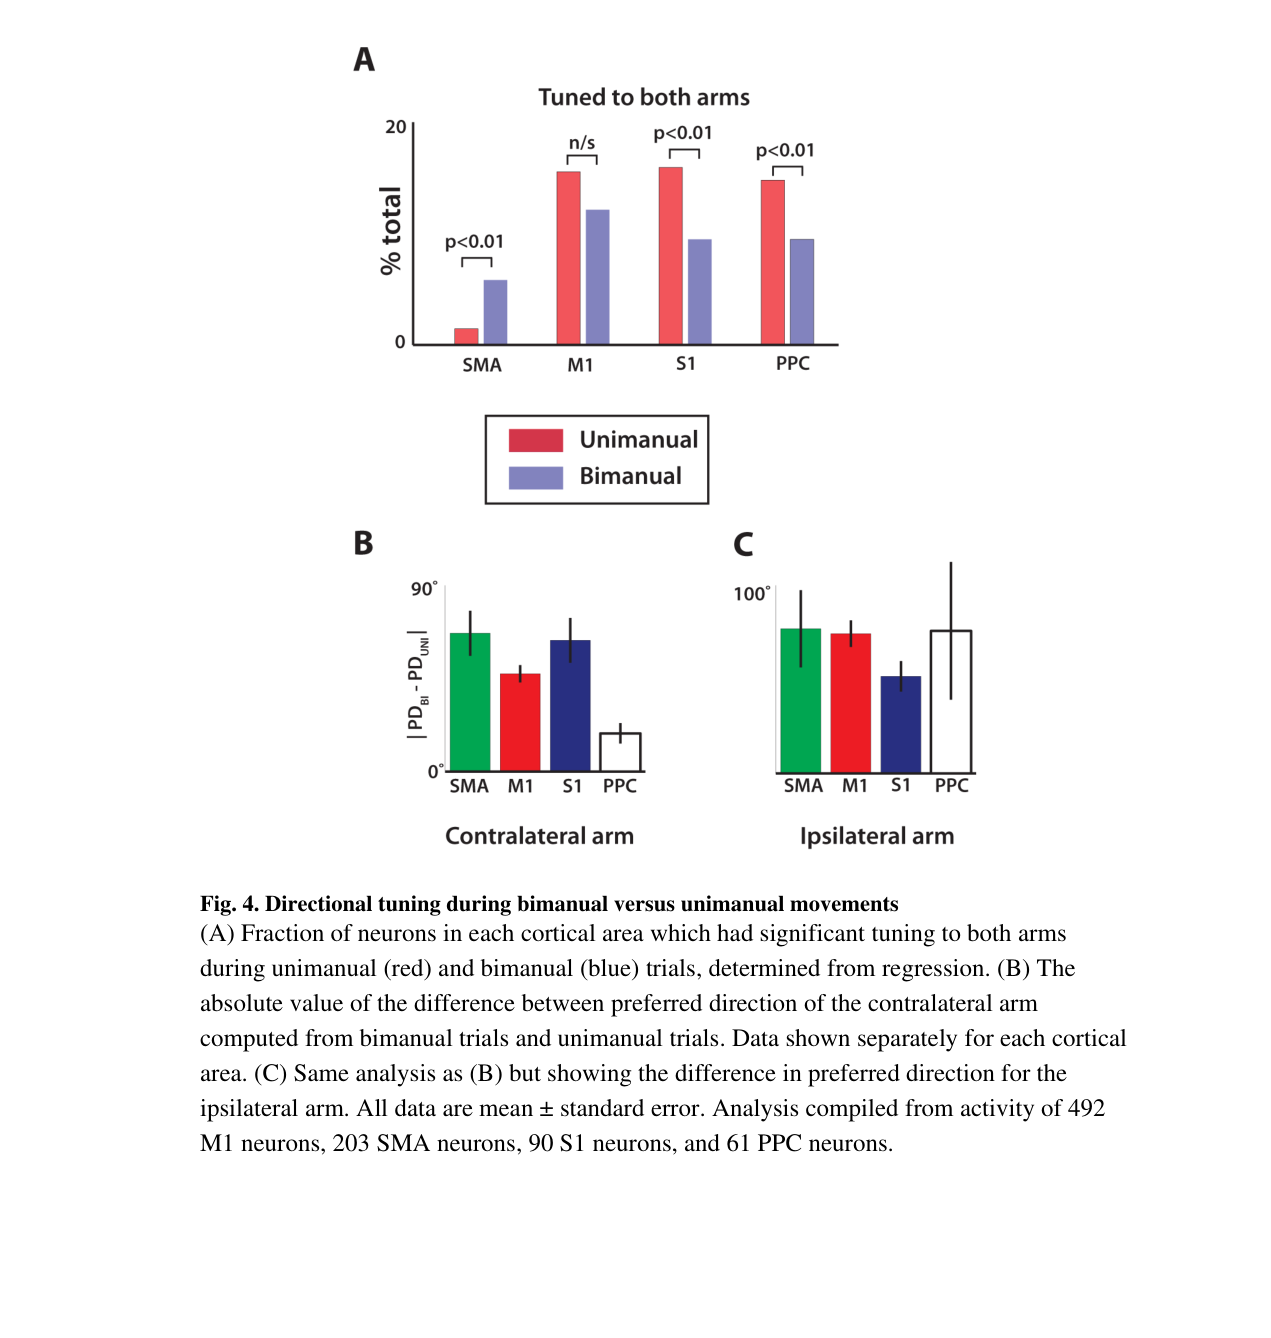
单双臂的皮层表征确实不是一回事。从单臂切到双臂,总体调制显著增强:左 M1 提高 76.7%、右 M1 34.6%,左、右 SMA 各提高 35.8% 和 37.9%(p<0.01)。单臂时 M1 明显偏爱与对侧手(调制深 28.3%、调谐深 22.3%),SMA 反而偏爱同侧手;双臂时两臂调谐深度趋于相等(σ(Δz) 0.08 vs 0.09)。更关键的是 preferred direction 在单双臂条件之间平均偏移 53.1±4.0°(对侧臂)和 66.0±5.4°(同侧臂),SMA 是唯一在双臂条件下"双臂都调谐"的神经元比例显著上升的区域。个体神经元和群体的双臂响应都不能写成单臂模式的加权和——作者称之为网络进入了一个独立的"双臂状态"。
解码端的结论呼应了上述非线性。Neuron dropping 曲线显示同样用 2D UKF 解到 r=0.5,单臂平均只需 80 个神经元、双臂每只要 145 个;精度随神经元数的对数线性增长,这个关系在运动学解码和目标位置解码(k-NN)里都成立。区域贡献上 M1 最大(n=245,r=0.73±0.03),SMA 单独较差(n=73,r=0.22±0.02),但全群体曲线抬升超过 M1 单独的上限,Top-50 神经元里 54% 来自 M1、32% 来自 SMA、8% PPC、6% S1——分布式表征。4D 联合 UKF 在手控数据上一致优于两个独立 2D 模型,两手间距也能从 4D 预测中一并解出。
闭环成绩的爬坡是全文最实用的部分。猴 C 从手控切到 BC with arms 时成绩骤降,24 个 session 后稳定超过 70%(单臂各自 >90%),其中把解码器从 1 阶升到 5 阶又带来一波提升。BC without arms 两只猴都在 5–10 个 session 内显著进步:猴 C 从 43% 升到 79%,猴 M 从 15% 升到 62%;末段单臂成绩猴 C 为左手 98.5%、右手 94.4%,猴 M 左手 96.4%、右手 77.7%——两只猴都是左侧更好,与 passive observation 解码精度的不对称(猴 C 左 r=0.46±0.05 vs 右 0.12±0.05;猴 M 0.47±0.03 vs 0.23±0.02)同向。21 个 BC without arms session 里 20 个显著超过 shuffled-target chance(20–30%/10–20%)。k-NN 分析显示目标位置本身(chance 0.25)从靶出现起就被群体活动持续表征,而且这条通路不经过 UKF 的调谐模型,减少了对 UKF 调谐假设的依赖,但仍需考虑闭环中的行为与感觉相关;有趣的是猴 M 的 M1 腿区神经元也携带目标信息(n=100 时 fraction correct 0.31±0.03,虽不及 arm 区的 0.43±0.02)。
最后是学习伴随的可塑性。每个 session 开头的 passive observation 解码精度随训练逐周提升,说明 avatar 的皮层表征被学习强化了。群体内成对放电相关性(25 ms bin)在早期 BC without arms session 里比同日 passive observation 高 1.7–2.2 倍,随后几天持续下降至 passive observation 水平;跨半球相关性的降幅大于半球内(猴 C 85.2% vs 54.0%),跨区域大于区域内(猴 C 76.6% vs 54.0%)。作者的解释是:早期学习靠相关的协同活动,后期双手需要独立控制时,放电独立性反而成为支撑。
逐图解读
来源:原文 Fig. 1,PDF 第 23 页。
图 1 · 大规模植入与任务总览。 (A) 两只猴的植入布局:猴 C 八个 96 通道阵列覆盖双侧 SMA/M1/S1/PMd/PPC,猴 M 四个阵列覆盖双侧 arm/leg M1/S1——双半球、多区域是这个研究的硬件卖点。(B) 猴子面对屏幕上的两条 avatar 手臂,用 joystick 或神经活动控制。(C) 441 个样本波形按记录位点上色,展示日常可隔离的单元规模(接近 500,当时 NHP 之最)。(D) trial 时序:双手按中央方靶 → 随机延迟 → 16 种组合之一的双靶出现 → 各自到达并保持 100 ms 得奖。(E, F) 单个 unimanual(E)和 bimanual(F)trial 的 438 神经元 raster,右侧附目标位置和手位置轨迹——粗看就能发现双臂 trial 的群体调制比单臂更铺开、更强,这是后两图量化分析的直观预告。
来源:原文 Fig. 2,PDF 第 24 页。
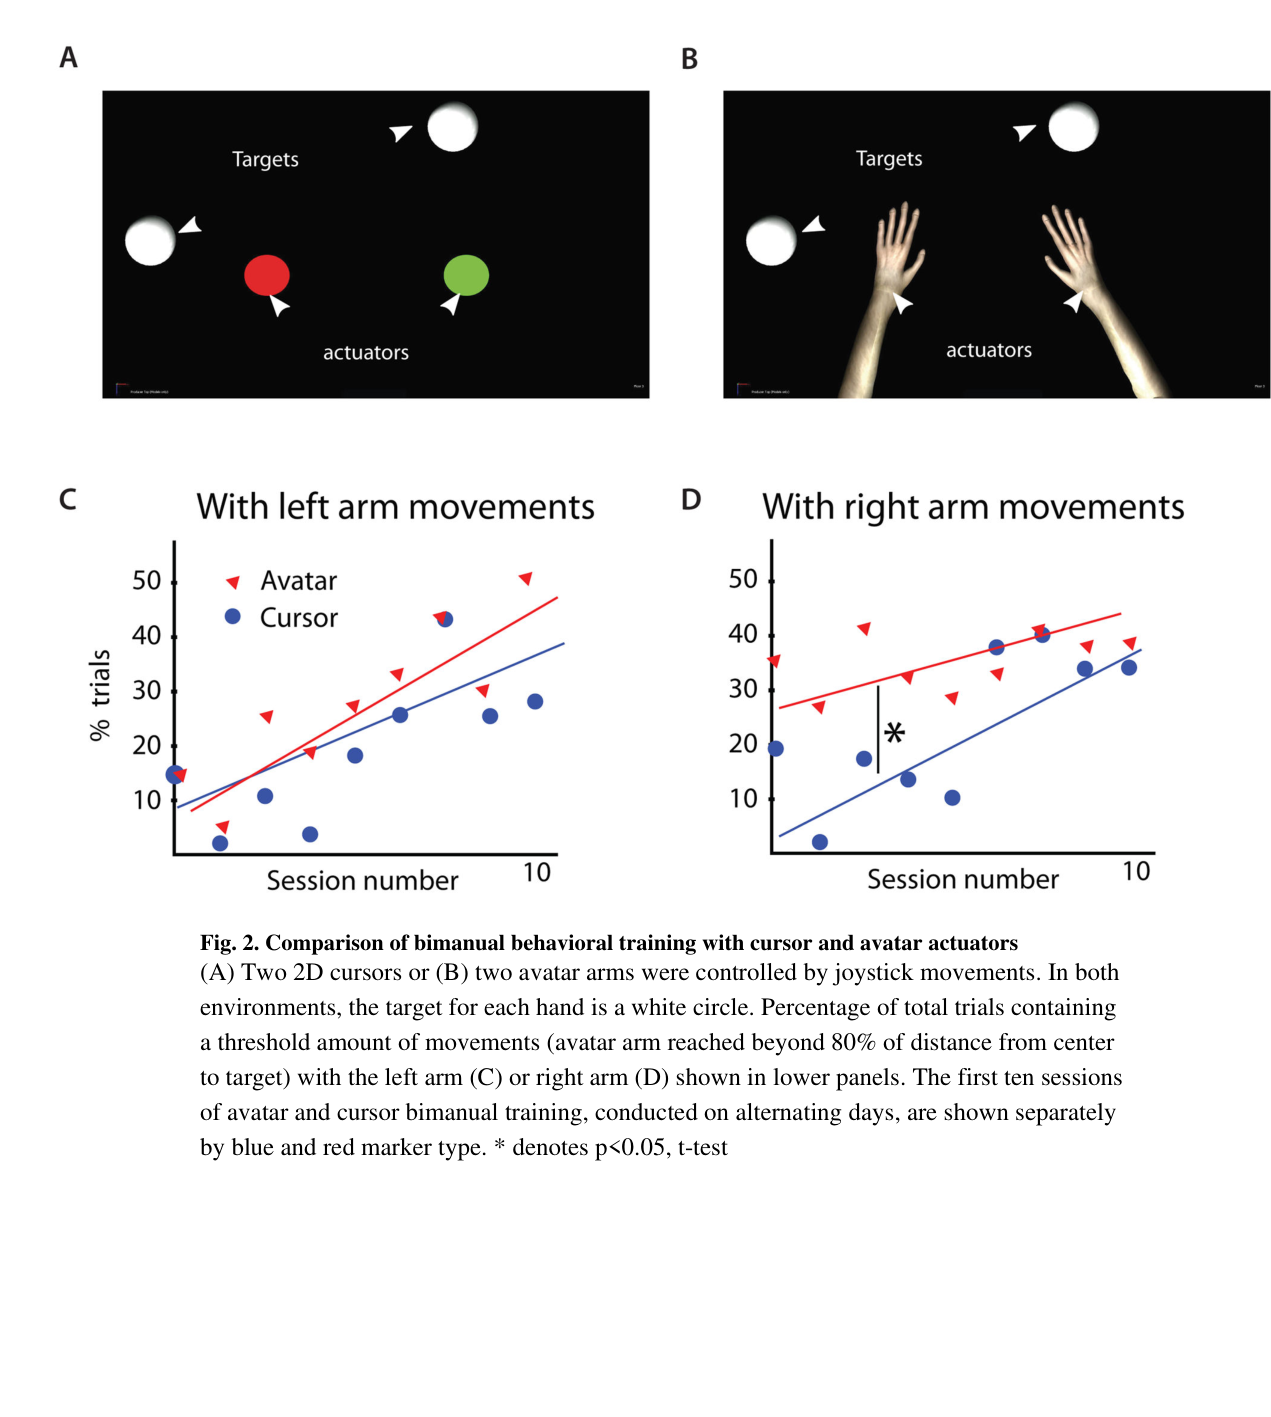
图 2 · Cursor 与 avatar 手臂的行为学比较。 (A, B) 分别用两个 2D cursor 和两条 avatar 手臂做双臂 joystick 训练的环境截图,靶是白色圆圈。(C, D) 左臂、右臂"产生足够运动"(avatar 手越过中心到靶距离的 80%)的 trial 比例,前十个 session 隔天交替进行,蓝红两色分开标记 cursor 与 avatar 条件,星号表示 p<0.05。这张图在正文里着墨不多,主要支撑一个论点:猴子对 avatar 手臂和抽象 cursor 的投入程度不同,avatar 更容易被"当回事"。作者讨论了拟真虚拟肢体用于临床 BMI 训练的潜力,但本文并未用匹配的光标条件单独检验其优势,也未进行患者验证。这是全文设计哲学的注脚,值得留意但证据还只是初步的。
来源:原文 Fig. 3,PDF 第 25 页。
图 3 · 单双臂运动时的皮层调制:不是线性叠加。 (A) 左 M1 一个代表神经元的 PETH,4×4 网格对应 16 种左右靶组合(灰线对齐靶出现),下方是同一神经元单臂四方向的 PETH;对比可见双臂条件下的响应无法由两个单臂响应拼出来。(B) 左 M1 群体的相同的布局,每行一个神经元、颜色为 z-score——群体层面同样如此。(C, D) SMA 的代表神经元与群体。(E–H) 定量对比:四个方向上单臂(红)与双臂(蓝)的 Δz,分别为 M1 单神经元(E)、M1 群体(F)、SMA 单神经元(G)、SMA 群体(H),上下排分别是左臂和右臂。这张图论证的是全文的生理学前提:双臂运动把皮层推入一个不可分解的"双臂状态",直接拼接本文的单臂模型不足以获得最佳双臂解码。
来源:原文 Fig. 4,PDF 第 26 页。
图 4 · 方向调谐在单双臂之间的重构。 (A) 各皮层区域中同时对双臂显著调谐的神经元比例,单臂(红)与双臂(蓝)对比——SMA 是唯一在双臂条件下比例显著上升的区域,与其在双臂协调中的经典角色吻合;样本量为 492 个 M1、203 个 SMA、90 个 S1、61 个 PPC 神经元。(B, C) 双臂条件下算出的 preferred direction 与单臂条件之差的绝对值,(B) 对侧臂、(C) 同侧臂,按区域分列:对侧臂平均偏移 53.1°、同侧臂 66.0°,偏移在各区域普遍存在。读这张图要抓住的意思是:调谐并非双臂运动中保持不变的"标签",而是随运动情境整体重构——这正是 4D 联合解码器优于独立 2D 解码器的生理学根据。
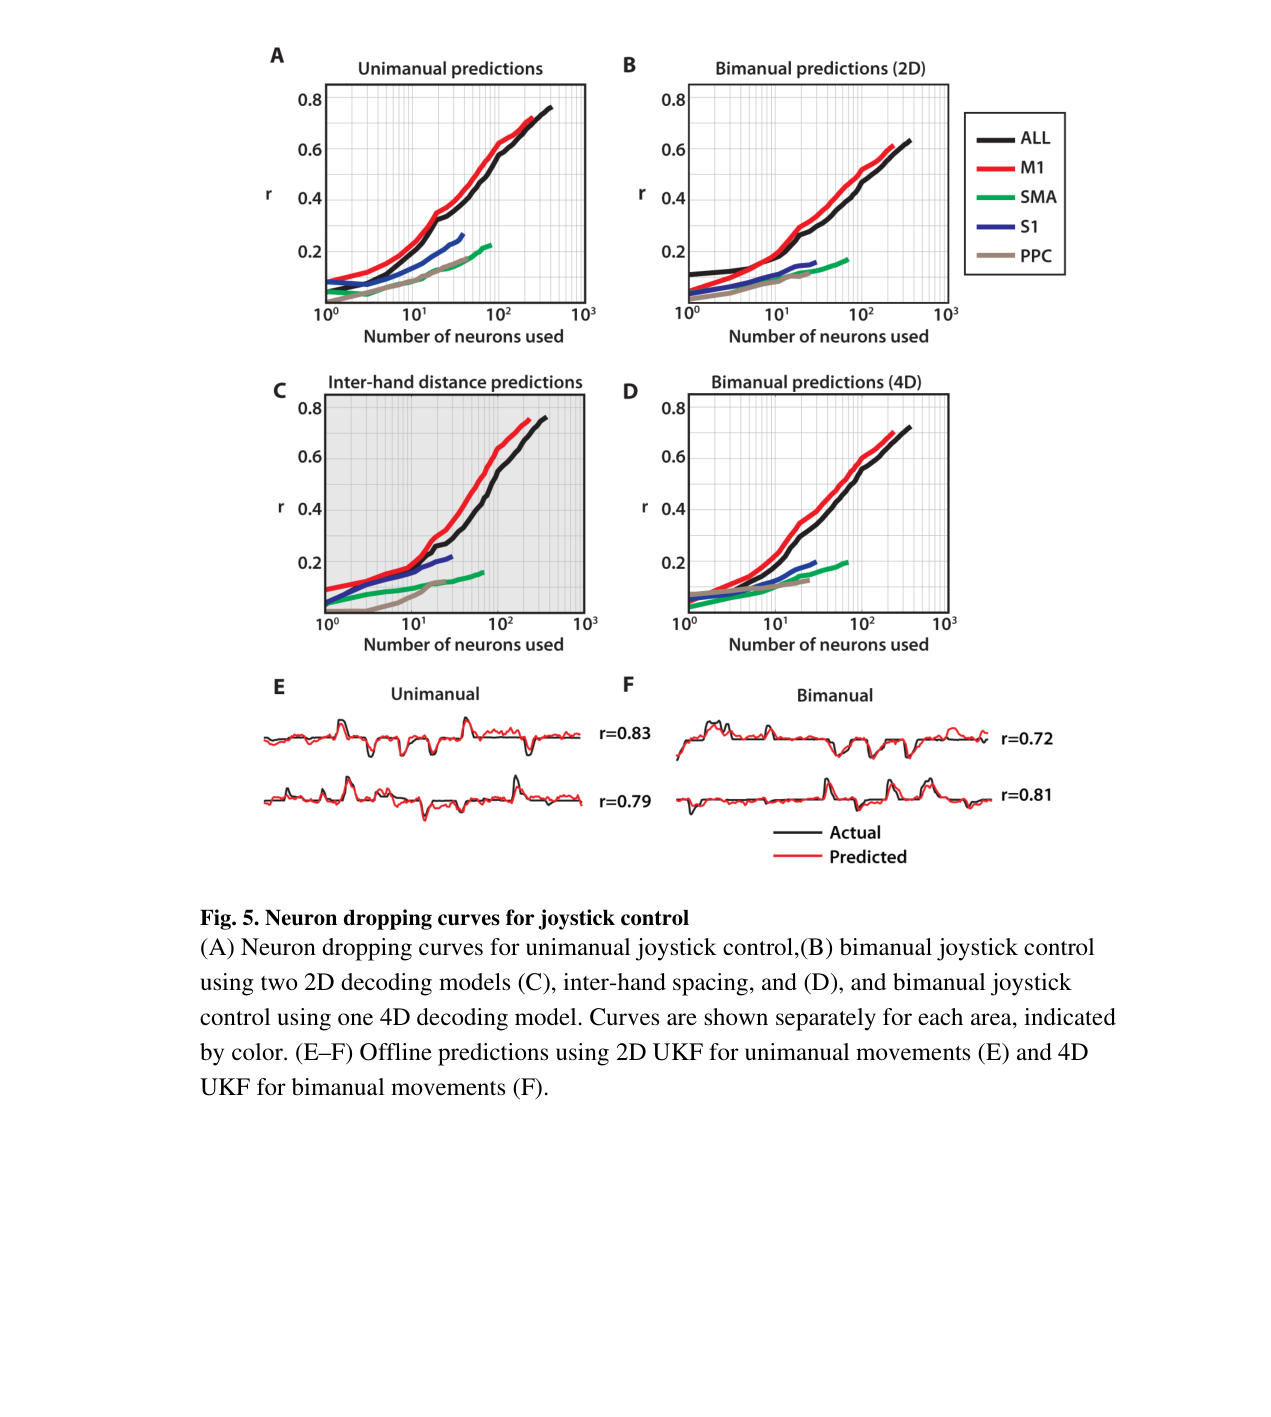
来源:原文 Fig. 5,PDF 第 27 页。
图 5 · Neuron dropping 曲线:双臂需要更大的群体。 (A) 单臂 joystick 控制的解码精度 r 随神经元数(对数横轴)的爬升曲线,按区域分色;(B) 双臂控制、每臂独立用 2D UKF;(C) 从 4D 预测导出的两手间距同样可解;(D) 双臂控制、单个 4D UKF——(D) 的曲线整体优于 (B),是"联合建模优于分开建模"的直接证据。核心数字:同样解到 r=0.5,单臂平均 80 个神经元、双臂每臂 145 个。M1 曲线(红)最高但封顶,全群体曲线(黑)继续抬升,Top-50 神经元里近一半不是 M1——分布式编码的量化版本。(E, F) 离线预测示例:2D UKF 单臂(E)与 4D UKF 双臂(F)的实际(黑)与预测(红)位置对比。这张图也是 Nicolelis 组"真正功能模块是大群体而非单神经元"立场的经典论据。
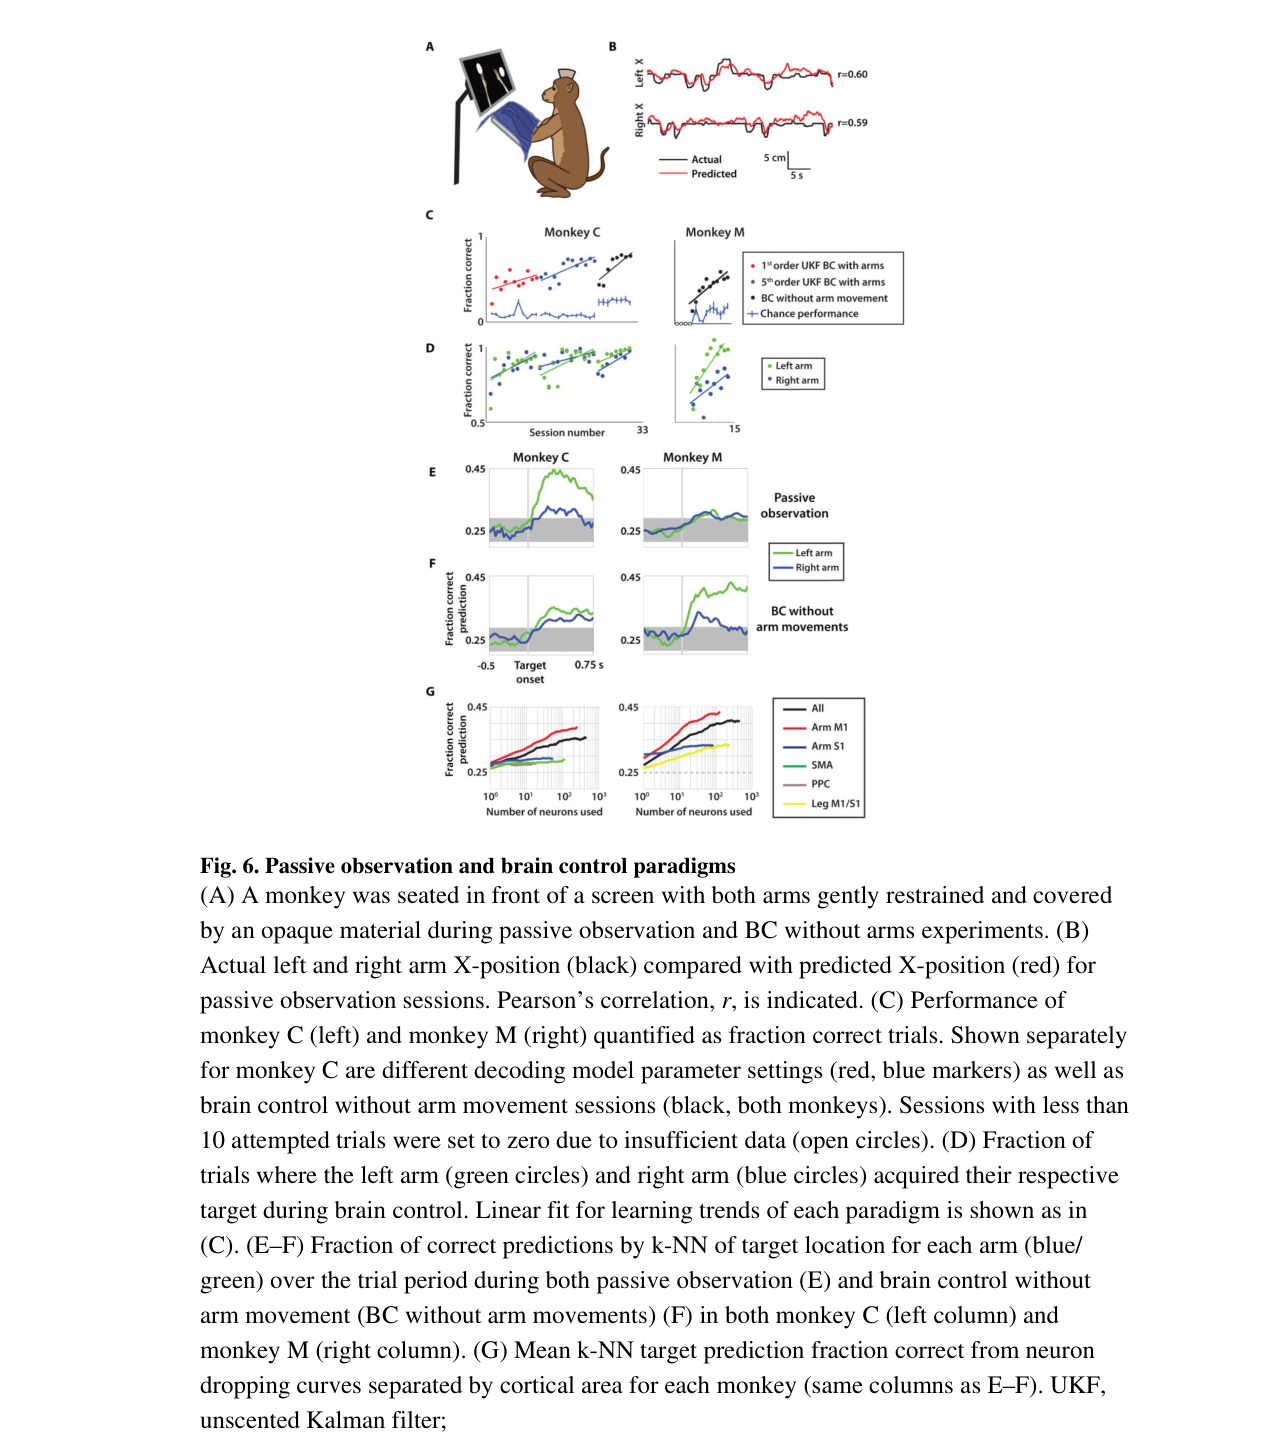
来源:原文 Fig. 6,PDF 第 28 页。
图 6 · Passive observation 训练与闭环脑控成绩。 (A) 实验场景:双臂绑在软垫架上并遮盖,猴子只能看屏幕。(B) Passive observation 时实际(黑)与 UKF 预测(红)的手臂 X 位置,相关系数标在图内——绑着手也能"读出"运动,这是训练路径成立的前提。(C) 两猴的闭环正确率:猴 C 的 BC with arms 段落用红蓝区分 1 阶与 5 阶 UKF(升级后明显抬升),黑圈为两猴的 BC without arms;空心圈是不足 10 个有效 trial 记为零的 session;水平带为 shuffled-target 重放估出的 chance。5–10 个 session 内猴 C 从 43% 到 79%、猴 M 从 15% 到 62%。(D) 分臂成绩:绿为左臂、蓝为右臂,两猴一致地左侧更好。(E–G) k-NN 目标位置解码:passive observation(E)与 BC without arms(F)中目标身份从靶出现起持续可解(chance 0.25),左靶好于右靶,与 (D) 的行为不对称同向;(G) 按区域分色的 k-NN dropping 曲线,同样随神经元数对数增长。这张图展示健康猴从被动观察到双臂脑控的学习过程,为后续研究提供可行性依据。
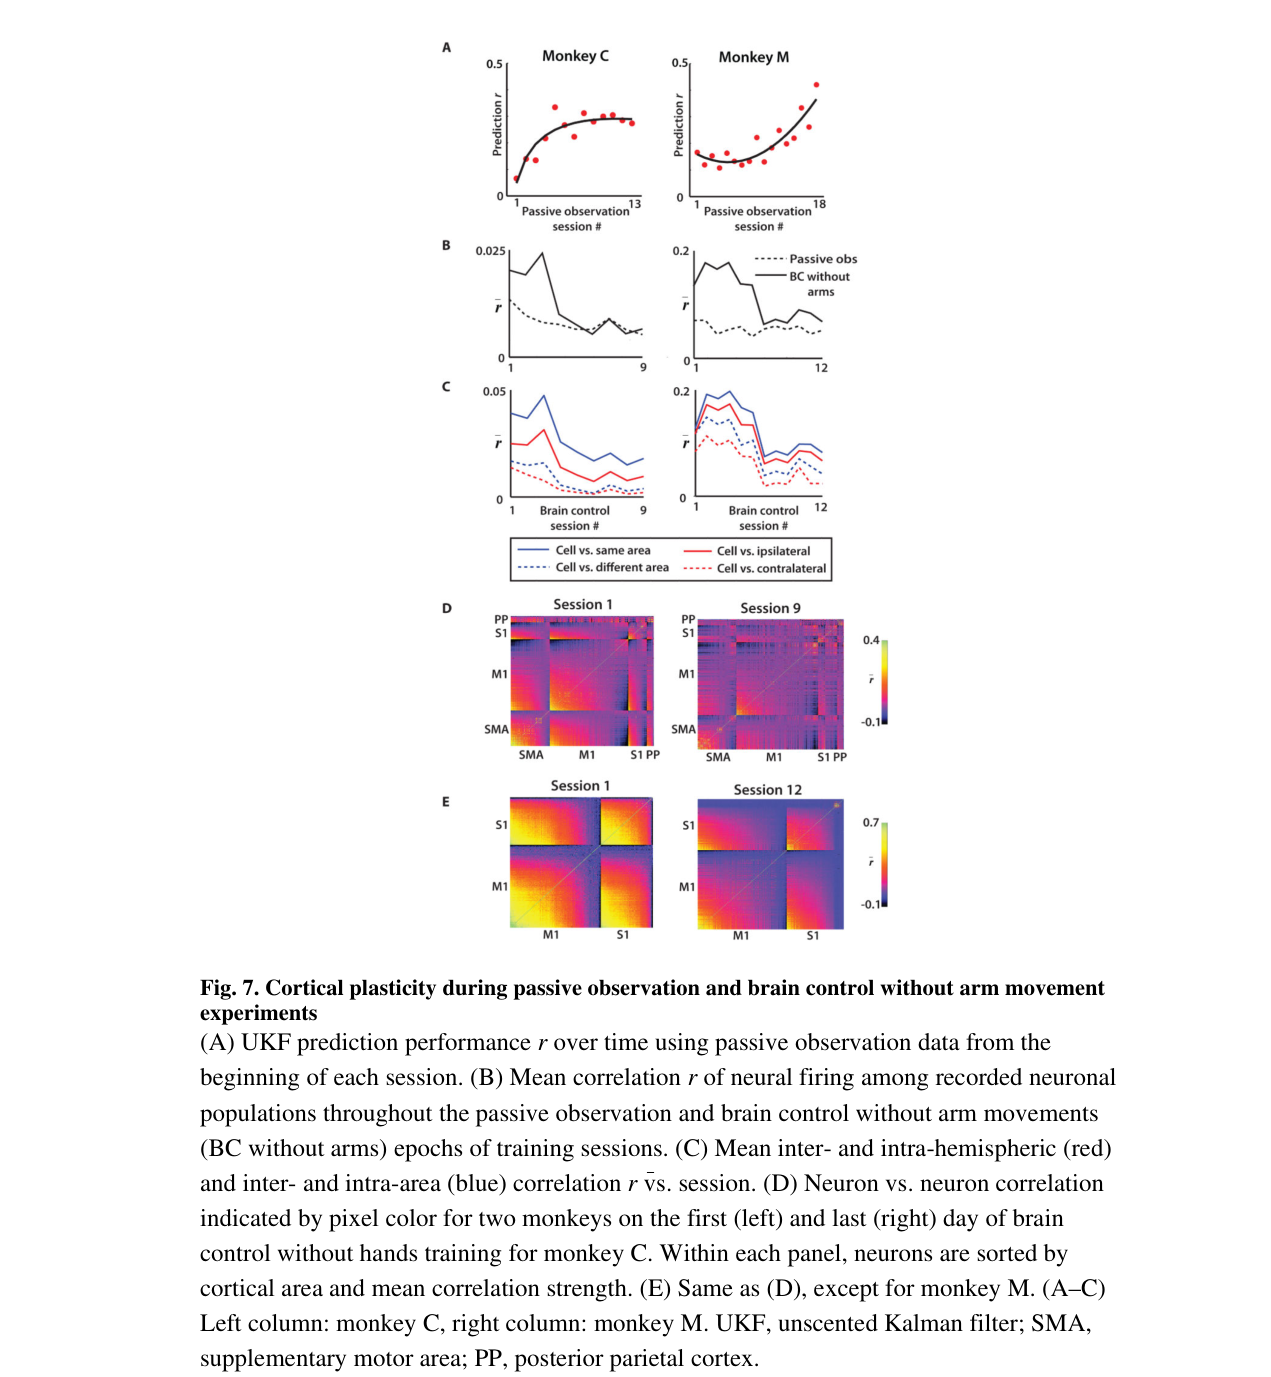
来源:原文 Fig. 7,PDF 第 29 页。
图 7 · 学习过程中的皮层可塑性。 (A) 每日 session 开头 passive observation 的 UKF 解码精度 r 随训练进程逐周上升——avatar 的皮层表征被经验强化。(B) 全记录群体的平均成对放电相关性:早期 BC without arms session 比同日 passive observation 高 1.7–2.2 倍,随后几天回落到 passive observation 水平。(C) 相关性按半球关系(红:跨/同半球)与区域关系(蓝:跨/同区域)分解,实线为同半球/同区域、虚线为跨半球/跨区域——跨半球与跨区域的降幅都更大(猴 C 跨半球降 85.2% vs 半球内 54.0%)。(D, E) 猴 C 与猴 M 第一天与最后一天的神经元×神经元相关矩阵,按区域排序——对角块收缩、整体变淡的过程可以看出。作者的解读颇有分寸:早期学习靠相关的协同活动,后期双手要独立控制,放电独立性反而成了支撑;这与人类 EEG 里双手技能学习时半球间 coherence 下降的旧结果遥相呼应。
讨论与解读边界
本文同时检验了双臂控制的工程可行性和单双臂情境下神经表征的变化。被动观察训练为不依赖当前手臂运动的校准提供了方案,但健康猴的观察与脑控结果不能直接等同于瘫痪患者的临床验证。
调谐变化说明简单地把单臂响应相加不足以描述所测数据,并不证明任何模块化解码器都不可行。两手同时到达独立目标,也不同于握持同一物体时的紧密双手协作。跨半球相关下降与学习同时发生,但不能据此认定去相关是学习成功的原因;k-NN 分析提供补充读出证据,也不能排除目标、反馈与行为共同造成的相关。
思考问题
- 让两条虚拟手臂共同搬运同一物体时,联合解码器的优势是否更明显?
- 在控制试次数量、运动轨迹和共同输入后,学习相关的跨半球去相关还剩多少?