F03 · Proprioceptive and Visual Feedback Responses in Macaques Exploit Goal Redundancy
Cross, K.P., Guang, H., & Scott, S.H. (2023). The Journal of Neuroscience, 43, 787–802. doi:10.1523/JNEUROSCI.1332-22.2022
猕猴会按目标允许的误差范围调节反馈纠正:宽目标下,视觉和机械扰动引起的修正通常更小。肌电可在约90 ms和70–100 ms量级表现出目标依赖,但具体时刻随动物和分析而异。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
若目标允许一段范围内的误差,运动系统未必需要纠正所有偏移。本文检验猕猴是否像人类一样,在快速反馈响应中利用这种空间冗余。
研究思路
窄目标与宽目标交错出现,分别施加视觉光标跳变和机械负载。机械扰动时暂时隐藏光标以减少即时视觉反馈,运动学与肌电用于比较纠正幅度和首次可检出的目标形状效应。
方法
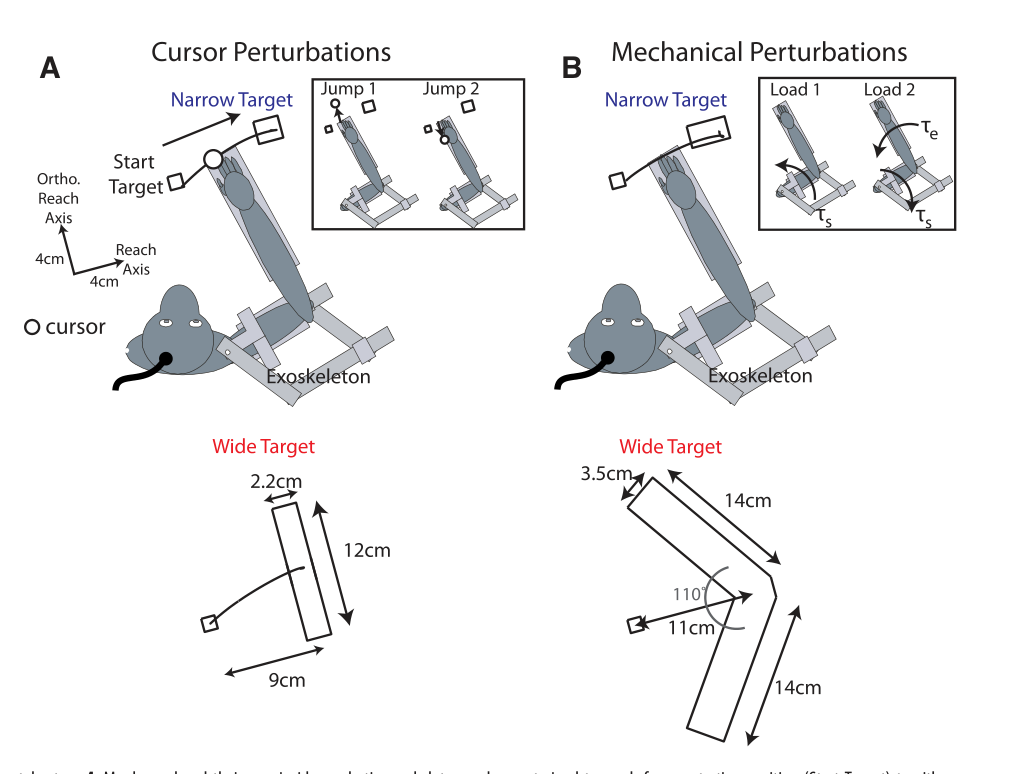
四只雄性猕猴(M、A、T、C,10–20 kg),手臂置于 Kinarm 外骨骼(Scott 1999)中限制在水平面运动,虚拟现实系统投影目标与手部 cursor。视觉扰动实验:伸手全程 9.2 cm(外偏 8 cm、前伸 4.4 cm),窄方 2×2 cm 或宽 12×2.2 cm 目标,cursor 跳 ±3.5–4 cm(按猴调整),跳变 trial 额外加 500 ms;每 block 10 trial(6 无扰动+4 跳变),每 session 10–25 个 block,得 60–150 个无扰动与 40–100 个扰动 trial;四只猴各录 6、7、14、12 个 session,成功率 89–100%。机械扰动实验:宽目标改为 28 cm 的箭头形(两矩形以 110° 相交,边缘更靠近手臂),肩关节 0.3–0.5 Nm 推离或推离加肘关节 0.07–0.15 Nm 推向(按猴调整以产生相近的手偏移),cursor 消隐 200 ms;每 block 12 trial(8 无负荷+4 负荷),每 session 10–15 block,80–120 无扰动+40–60 扰动 trial;各录 10、11、8、9 个 session。运动学 1 kHz 采样;EMG 方面猴 M 植入 32 通道慢性系统(Ripple Link-32),覆盖肱桡肌、肱肌、三头肌外侧头与长头、肱二头肌、胸大肌、三角肌前/后束共 8 块肌肉、每肌两个差分样本共 16 个,猴 C 用 Delsys 表面电极记 4 块肌肉。分析上,终点投影到冗余轴;运动学纠正 onset 用逐时间点 ROC(AUC>0.8 维持 10 ms 再回溯 knee);肌肉按 preferred direction 归一化后平均成 population signal,epoch 分析窗口机械负荷取 20–50、50–75、75–100、120–180 ms,视觉跳变整体后移 50 ms(因为视觉反馈通路天生慢约 50 ms)。
主要结果
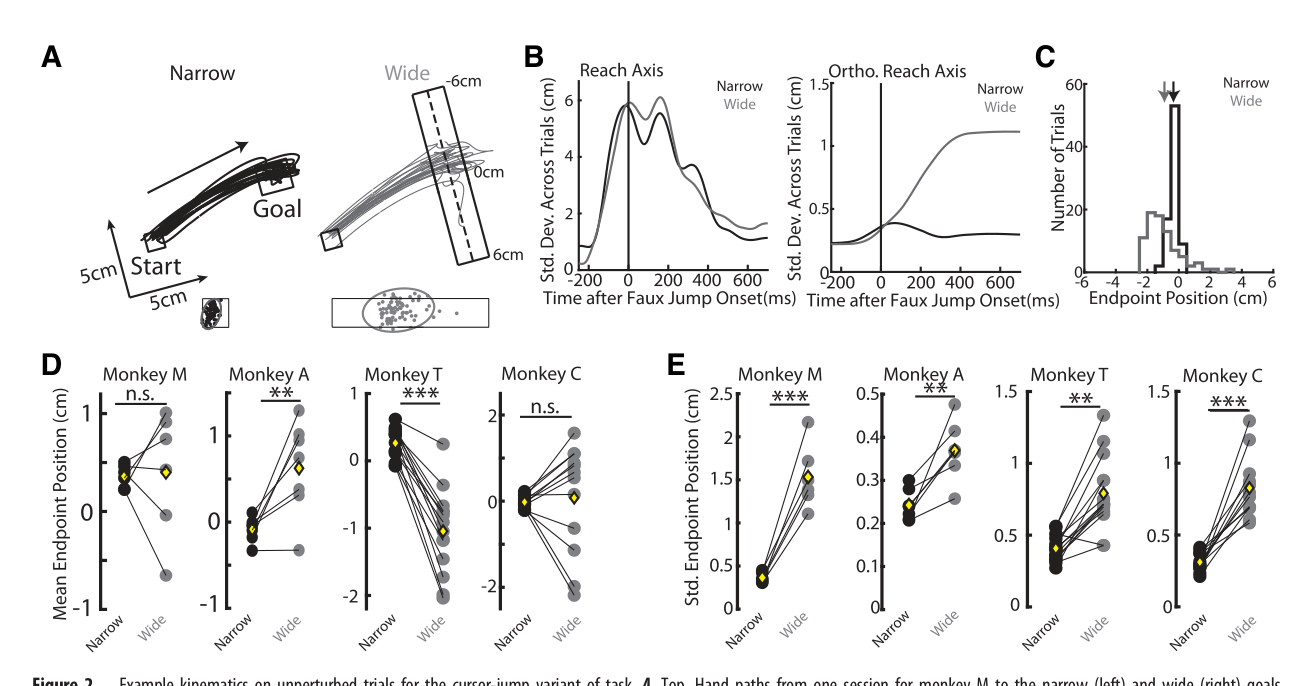
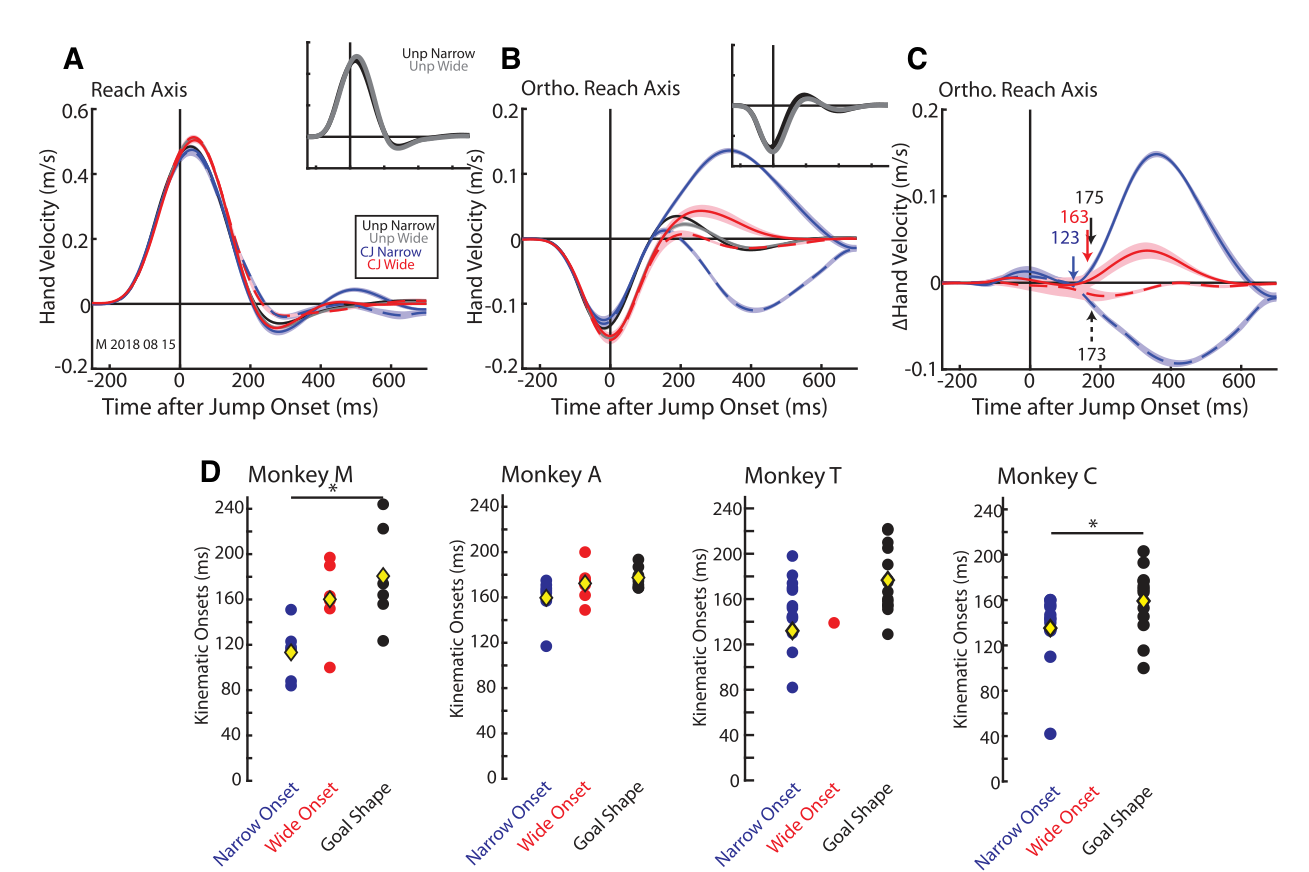
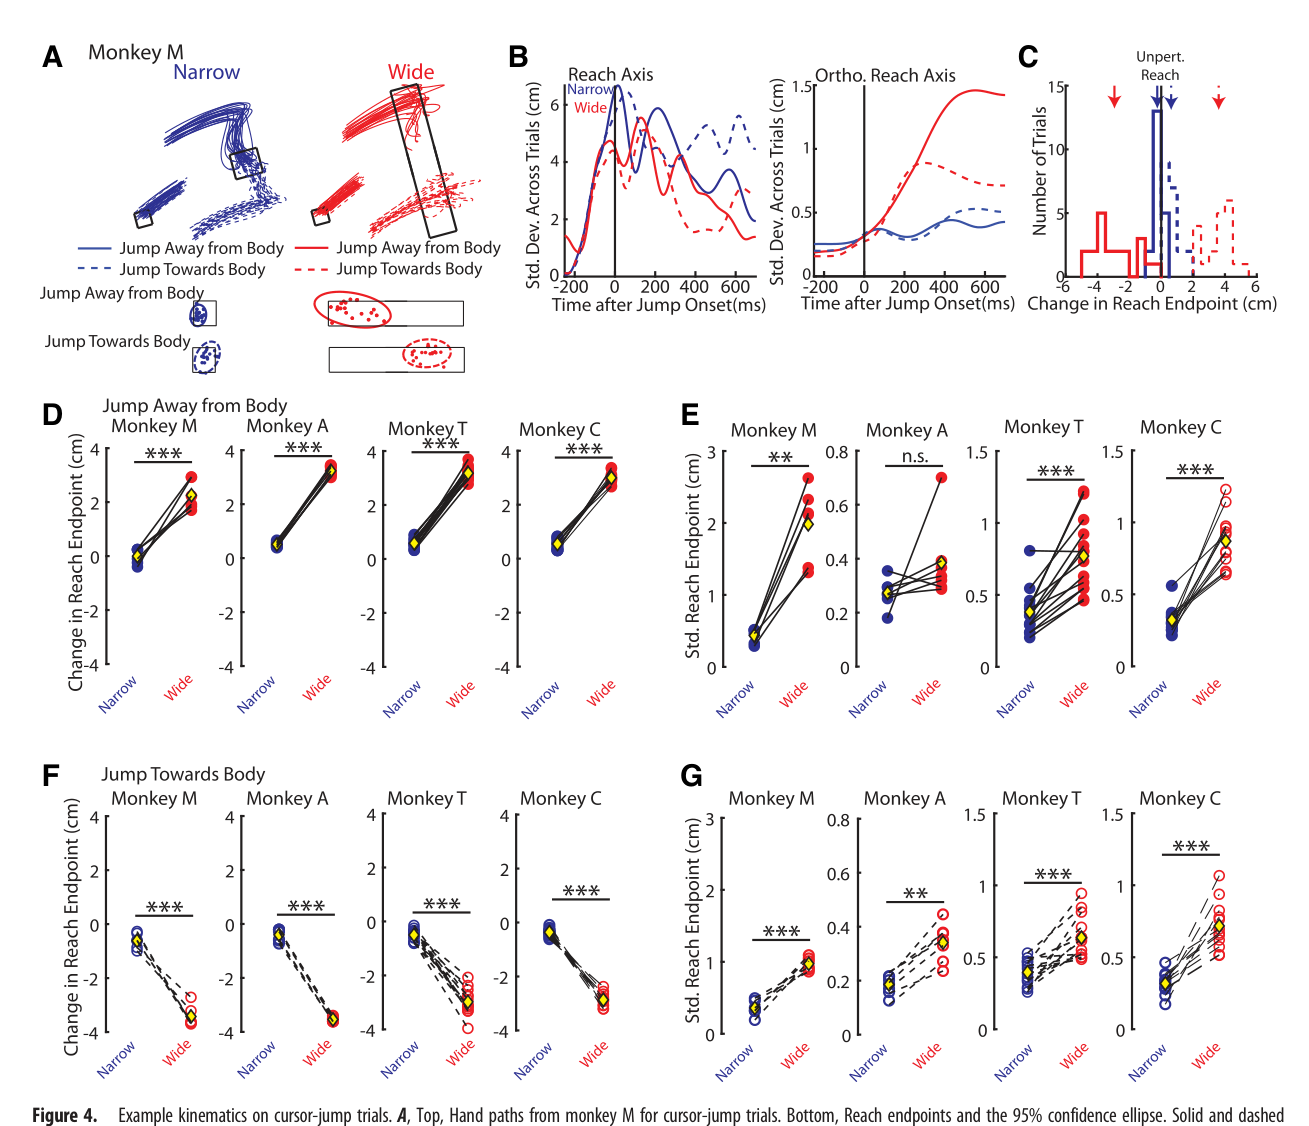
无扰动 trial 的行为就是 OFC 签名:宽目标终点 SD 是窄目标的 1.4–4.2 倍(视觉任务 M/A/T/C 分别 4.2、1.5、2.0、1.9 倍,机械任务 2.2、1.4、1.4、2.3 倍,全部 p≤0.004),变异性沿冗余轴累积,而平均终点位置最多只差 0.7–1.3 cm。cursor jump 的结果更干脆:窄目标下终点几乎回到无扰动位置(示例 session 位移仅 0.26 与 -0.55 cm),宽目标下则基本忽略跳变(位移 2.9 与 3.6 cm,且终点更偏目标边缘);四只猴、两个方向全部显著(t 值最高到 49)。运动学上,窄目标的纠正最早 113–135 ms 出现,宽目标 160–173 ms(猴 T、C 干脆检不出可靠纠正),两种目标形状的响应在 159–181 ms 分道扬镳。
肌电分析进一步估计了响应时序。无扰动 trial 的肌电两种目标形状高度相似(幅度相关 r=0.99,时间结构中位相关 0.80),猴 M 有 75% 样本在窄目标下略强(平均 15%)——这一差异需纳入后续对 gain scaling 的讨论。cursor jump 下,猴 M 的 population 信号窄目标 89 ms 起跳,宽目标检不出任何 onset,两者的差值信号同样 89 ms 出现(猴 C 稍晚,116/122 ms,表面电极更噪);epoch 分析显示 70–100 ms 已有 17% 样本按形状显著分化,到 170–230 ms 达 78%,宽目标的响应平均小 78–88%;组水平主效应 F(1,17)=58.1,p<0.001。机械负荷下模式对应但更早:population 信号 62/64 ms(窄/宽,猴 M)即从基线抬升——这段初始响应不看目标形状,与先出现较少目标依赖的早期响应相符,但并非OFC的唯一预测——78 ms(猴 M)与 106 ms(猴 C)按形状分化;75–100 ms epoch 47% 样本显著,120–180 ms 达 94%;主效应 F(1,19)=22.3,p<0.001。两条通路的时间尺度与人类(视觉约 90 ms、机械约 70 ms)几乎重合。
逐图解读
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 实验范式。 (A) 视觉扰动版本:Kinarm 里的伸手构型、窄方与宽矩目标,inset 示意 cursor 正交跳变;(B) 机械负荷版本:28 cm 箭头形宽目标与正交推肢的负荷。这张图概括了实验范式——两个实验、两种反馈模态、同一个目标冗余操纵,后面十张图都在这个框架里展开。
来源:原文 Fig. 2,PDF 第 5 页。
图 2 · 无扰动 trial 的运动学(视觉任务)。 上排是一个 session 的手路径与终点 95% 置信椭圆,宽目标轨迹明显更散;中间是跨 trial 的位置 SD;下面是终点直方图(零点为冗余轴中点)与跨 session 的均值与 SD 汇总。它论证的是 OFC 的第一条预测:不需要任何扰动,冗余就已经在无扰动行为的变异性结构里显形。
来源:原文 Fig. 3,PDF 第 6 页。
图 3 · 无扰动与跳变 trial 的手速度(视觉任务)。 (A、B) 沿伸手轴与正交轴的速度,inset 为无扰动版本;(C) 扣除无扰动速度后的正交速度变化,蓝/红箭头标窄/宽目标最早纠正 onset,黑箭头标形状分化时间;(D) 跨 session 的三组 onset。读点在 (C):窄目标速度曲线很快反向(纠正),宽目标下的纠正较小,两簇曲线的分离点是运动学中首次检出目标形状效应的时刻。
来源:原文 Fig. 4,PDF 第 7 页。
图 4 · Cursor-jump trial 的运动学。 (A、B) 跳变 trial 的手路径与位置 SD,宽目标下依然高变异性——说明猴子没有把跳变 trial 学成"固定够某个点";(C) 终点变化直方图:窄目标两方向都聚在零附近,宽目标分布在 ±3 cm 之外;(D–G) 跨 session 的均值与 SD 统计。这张图是视觉模态的核心证据:纠正量按目标形状分级,且四只猴一致。
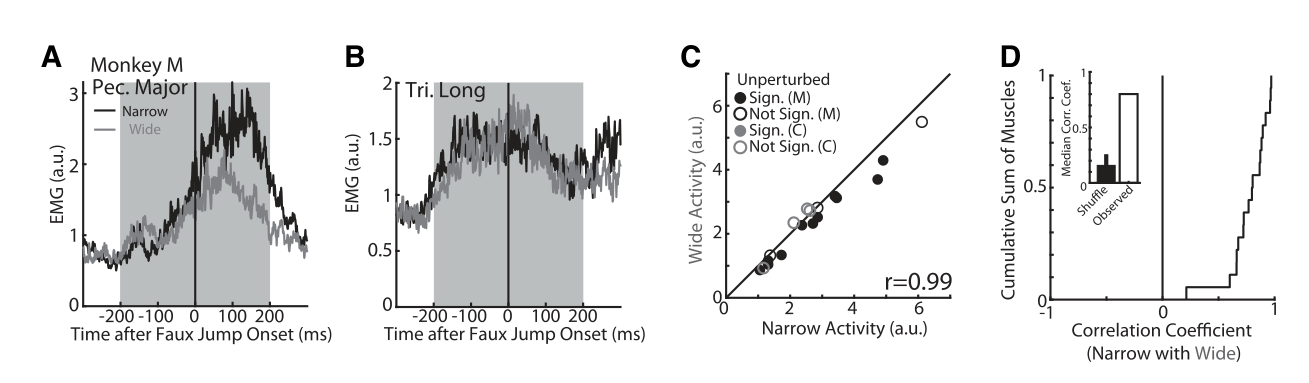
来源:原文 Fig. 5,PDF 第 8 页。
图 5 · 无扰动 trial 的肌肉活动(视觉任务)。 (A、B) 胸大肌与三头肌长头的平均活动,两种目标时间结构几乎相同;(C) 各肌肉窄 vs 宽幅度对比(幅度相关 r=0.99,猴 M 的样本多数略高于对角线);(D) 时间相关系数的累积分布(中位 0.80,远超 shuffle 的 0.16)。它为后面的扰动分析立好基线:背景肌电的形状差异极小,后续仍需结合背景幅度和短潜伏期响应,判断简单增益缩放能解释多少差异。
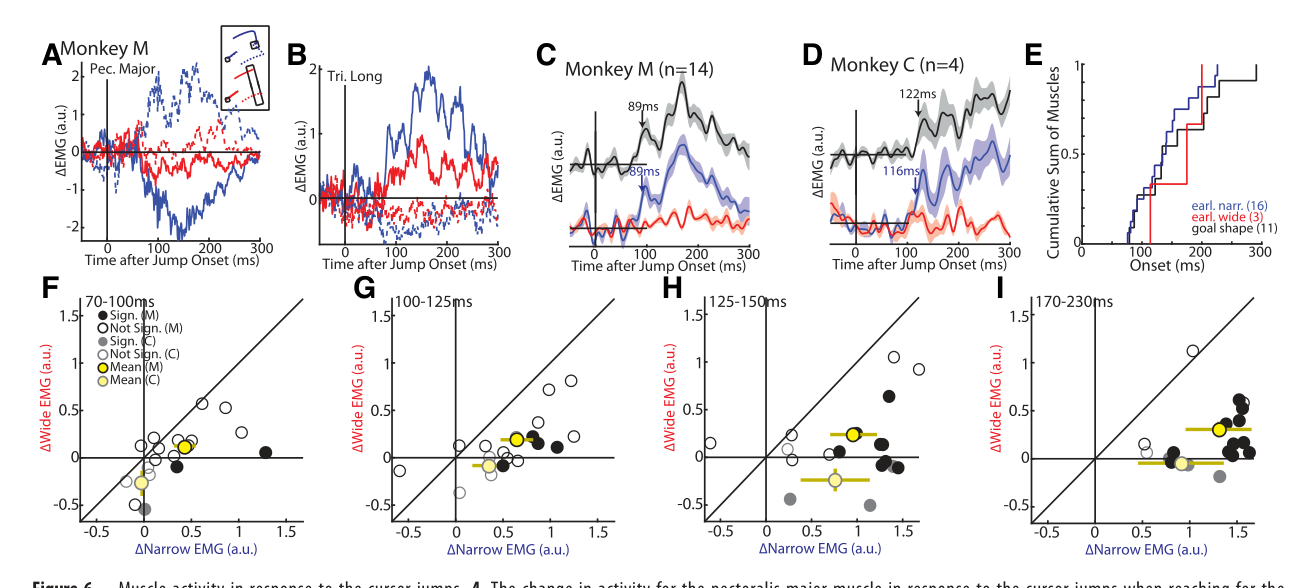
来源:原文 Fig. 6,PDF 第 8 页。
图 6 · Cursor jump 诱发的肌肉活动。 (A、B) 胸大肌与三头肌长头的 ΔEMG,100 ms 内即可见方向与形状的双分离;(C) 猴 M 的 population 信号:窄目标 89 ms 起跳、宽目标无 onset、差值信号 89 ms;(D) 猴 C 的对应结果(116/122 ms);(E) 单肌肉 onset 的累积分布;(F–I) 四个 epoch 的逐样本对比,显著样本比例从 17% 爬到 78%。这张图把"猴子利用冗余"从运动学主张升级为 90 ms 级的肌肉响应主张。
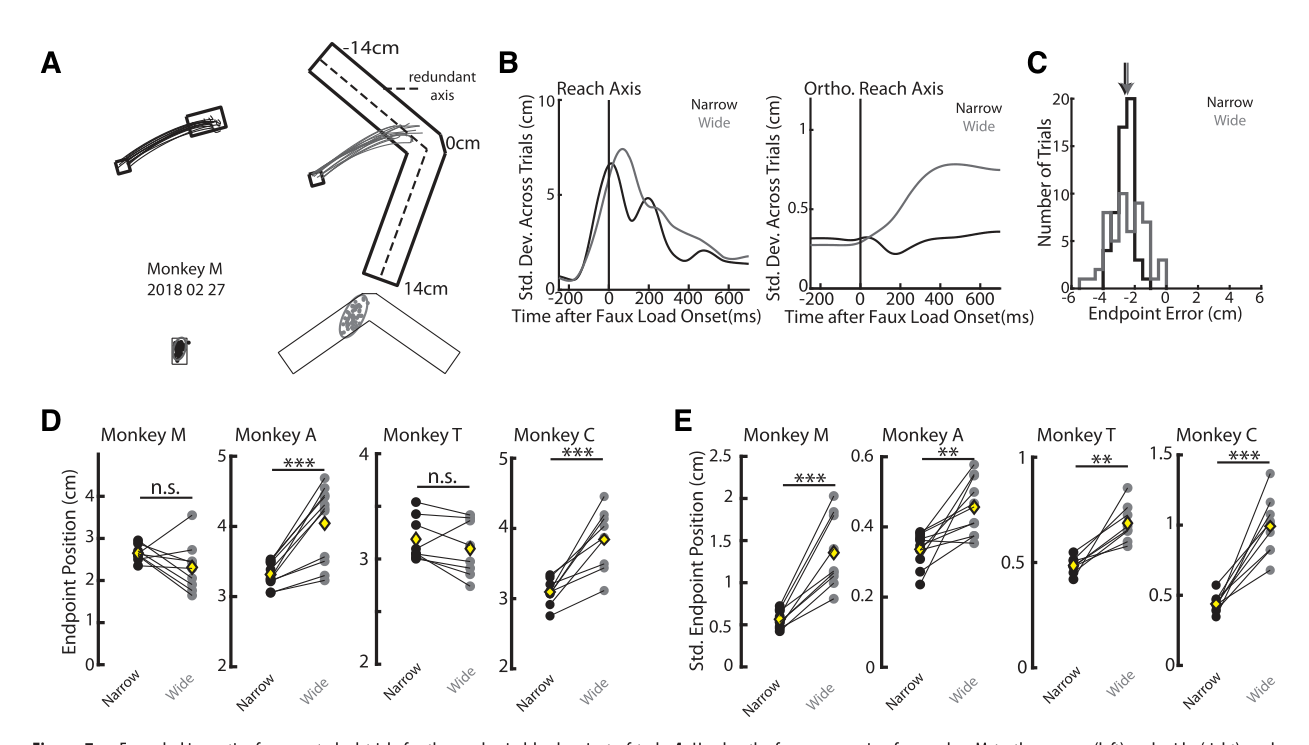
来源:原文 Fig. 7,PDF 第 9 页。
图 7 · 无扰动 trial 的运动学(机械任务)。 与图 2 平行的箭头形宽目标版本:宽目标终点 SD 是窄目标的 1.4–2.3 倍。该结果表明目标冗余效应也见于所测机械扰动任务,换一套目标几何依然成立。
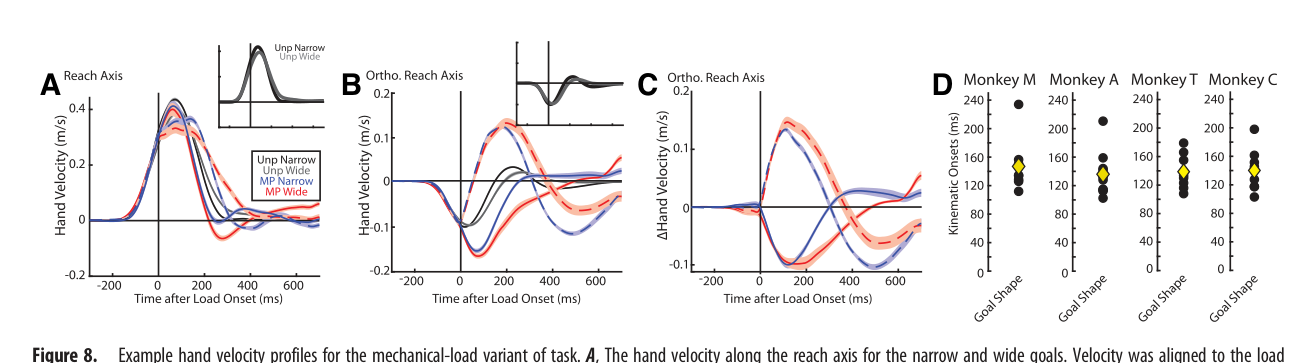
来源:原文 Fig. 8,PDF 第 10 页。
图 8 · 机械负荷 trial 的手速度。 (A、B) 沿伸手轴与正交轴的速度(inset 为无扰动);(C) 扣除基线后的正交速度变化,负荷本身先把手推偏(动量所致),故只标形状分化时间;(D) 四只猴的形状分化 onset 集中在 136–147 ms。注意机械扰动的运动学分化比视觉(159–181 ms)略早,方向正确。
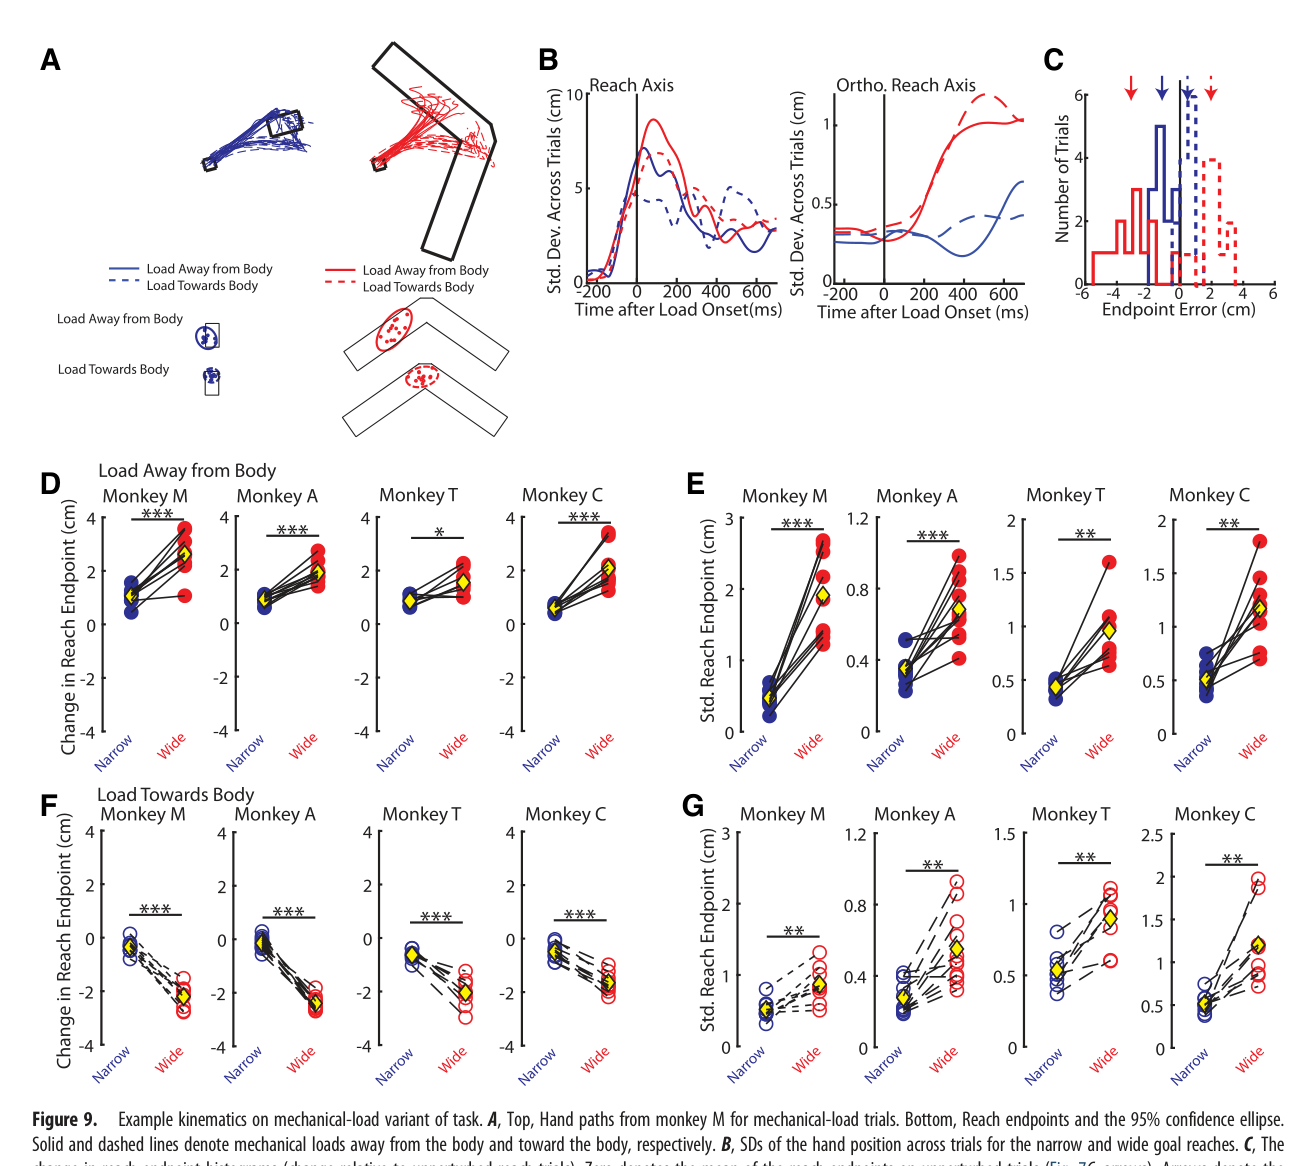
来源:原文 Fig. 9,PDF 第 11 页。
图 9 · 机械负荷 trial 的运动学。 跳变版本的镜像:窄目标终点几乎回到基线位置,宽目标被负荷推走 2–4 cm 且变异性更大,四只猴两个方向全部显著。与图 4 对读可以看到两种反馈模态在行为层面的对称性。
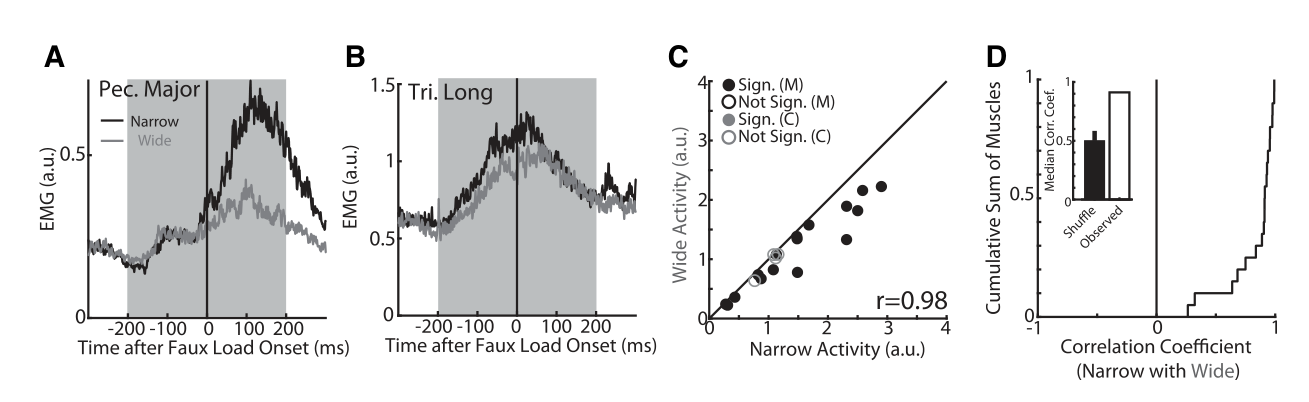
来源:原文 Fig. 10,PDF 第 12 页。
图 10 · 无扰动 trial 的肌肉活动(机械任务)。 结构与图 5 平行:幅度相关 r=0.98,时间中位相关 0.891;猴 M 全部样本窄目标略强(宽目标平均小 17%),猴 C 无差异。这个"背景差异"被作者拿到讨论里当靶子:如果 gain scaling 主导,分化应出现在 20–50 ms,而实际在 75 ms 之后——简单背景增益缩放不足以解释全部目标形状效应。
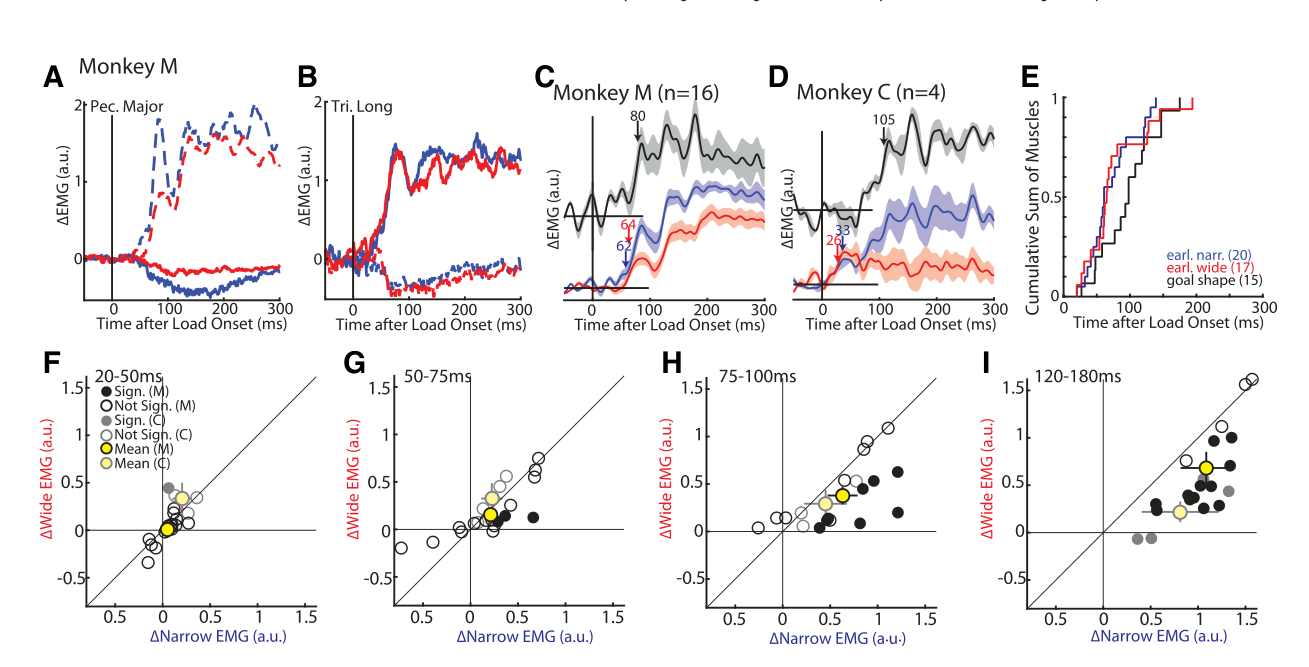
来源:原文 Fig. 11,PDF 第 12 页。
图 11 · 机械负荷诱发的肌肉活动。 (A、B) 单肌肉 ΔEMG;(C) 猴 M 的 population 信号:窄/宽目标 62/64 ms 同步起跳(形状无关的初始稳定响应),差值信号 78 ms 出现;(D) 猴 C 更早(33/26 ms 起跳,106 ms 分化);(E) 单肌肉 onset 累积分布;(F–I) 四个 epoch 的逐样本统计,20–50 ms 仅 6% 显著、120–180 ms 达 94%。这张图的时间结构是值得关注的结果:先有无差别的稳定,再有按目标形状的取舍,这种时序与OFC解释相符,但不具有机制唯一性。
讨论与解读边界
四只动物的运动学及两只动物的肌电,为目标冗余影响快速反馈提供了直接证据。宽目标的较大终点变异与较小纠正量符合最小干预原则;视觉与机械操纵的并置使该范式适合进一步研究反馈回路。
本文主要测量行为和肌肉,未记录或扰动相关神经群体,所以不能定位控制器,也不能证明最优反馈控制是唯一机制。响应分化时刻是统计检出的输出变化,不是大脑首次识别目标形状的时刻。部分背景肌电确有差异;其幅度和短潜伏期结果不支持简单增益缩放解释全部效应,而不是将任何背景贡献完全排除。
思考问题
- 同步记录PMd、M1与肌电后,目标形状首先改变哪些活动成分,以及它们如何预测纠正量?
- 连续改变目标宽度而非只用两档时,反馈增益是否平滑调整,调整规律能否预测未见宽度?