D11 · Dynamic population coding of kinematic structure across executed and observed actions in primate premotor cortex
Chatzimichail, K., Paschalidis, C., Tzamali, E., Papadourakis, V., & Raos, V. (2026). Science Advances, 12, eaed9309. doi:10.1126/sciadv.aed9309
动作执行与观察包含随时间变化的抓握信息,并在前运动皮层群体层面呈现部分共享的几何结构。神经活动与手部运动学相关,但共享程度依赖时间、细胞子集和对齐方法。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
动作执行和观察可以激活部分相同神经元,但相同单元是否使用相同动态编码,需要在群体层面定量检验。本文关注抓握信息、共享空间和运动学之间的关系。
研究思路
作者用跨时间与跨情境解码、PCA/CCA和运动学回归分析前运动皮层数据。剔除单元是离线分析操作;神经元组成伪群体,动捕来自独立session,这些条件限制了单试次和因果解释。
方法
两只成年雌性恒河猴,左半球,单钨电极(0.5–1.5 MΩ)在 PMd 和 PMv 记录,共 433 个神经元:285 个在执行和观察中都任务相关(MirN),148 个只在执行中调制(non-MirN);每 grip 每条件至少 9 个 trial 的 240 个 MirN 和 129 个 non-MirN 构成分析数据集,PMd 与 PMv 汇总处理(分区、分猴都做了重复,见补充图 S9/S10)。装置是一个旋转的六棱柱,每个面装一个 3D 物体:40 mm 球配 whole-hand prehension、40 mm 长 20 mm 底的圆柱配不用拇指的 finger prehension、15 mm 的环配 hook grip、10 mm 立方体(置于垂直槽内)配 advanced precision grip。执行时装置距猴 25 cm(intrapersonal space),观察时 50 cm(extrapersonal space)。GE trial:LED 亮起,猴子注视并按住按钮 800–1200 ms,LED 闪烁提示松手伸手,抓握保持 600–900 ms(10° 注视窗),LED 熄灭提示放手;GO trial:猴子不动,看右侧的实验者用右手做同样动作(LED 不亮,指令来自猴子看不见的屏幕),每 trial 结束给等量奖励,95% 以上的观察 trial 注视落在物体周围 10° 内。放电率用 100 ms 滑窗(25 ms 步进)计算,按 LED(t=0)和运动起始(t=1.25 s)双事件对齐拼接(0.8 s 处有断点),每 4 s trial 157 个 bin。动捕用 OptiTrack 120 Hz,反光标记贴在食指、拇指指甲和尺骨茎突,得到位置、速度、grip aperture 及其变化率共 20 个运动学变量;动捕与神经记录分 session 进行(两猴加一实验者共 3 个 session,每动作约 55 次重复、每动作 n=170)。解码用 Poisson naïve Bayes(Neural Decoding Toolbox)在 pseudopopulation 上做,每 bin 36 个样本,leave-one-out 交叉验证重采样 100 次,500 次 label shuffle 定显著性(P<0.002)。
主要结果
第一层:信息有,而且是动态的。四种 grip 在 MirN 的观察(GO)、执行(GE)和 non-MirN 里都能解出来;GO 里解码率随动作展开爬升、在运动末端达峰、hold 期维持,物体呈现期没有信息——该群体的抓握类别信息主要随可见动作展开而增强,不能直接推断动物何时形成主观判断;而 GE 从物体呈现期就有信息(物体形状直接预告 grip),运动期达峰,hold 期保持。信息分布上,前 80 个最选择性神经元的解码接近全体,第 81–160 名也显著,剔掉前 160 名后运动和 hold 期仍有残余解码——分布式、部分冗余。cross-temporal 矩阵基本只亮对角线,movement 期泛化最差、hold 期最好:动作早期多种结局皆有可能,群体状态自然不稳定,越接近完成越收敛。
第二层:动态的来源是"轮换制"。选择性的起始时段因神经元而异;在某个时间点把当时最选择性的 120 个神经元(non-MirN 65 个)从训练集剔掉,解码损伤只局限在该时段附近,别处照旧——不同时段由不同的神经元扛信息。selectivity stability 热图也只在时间对角线上高,hold 期泛化变好。执行-观察的单神经元匹配依旧惨淡:按跨条件的 grip 排名一致性算 congruency index,240 个 MirN 里只有 67 个(28%)够格。
第三层:但群体几何是共享的。前 10 个 PC 在条件内解释 65–67% 方差;GO 的 PC 能解释 execution 数据 26.7% 的方差,GE 的 PC 反向解释 32.5%——部分重叠的子空间,alignment index 显著高于随机。CCA 进一步找到了成对的、grasp 相关活动跨条件最大协变的维度;投到前两个 canonical 维度上,四种 grip 的轨迹分开,同一 grip 的执行与观察轨迹彼此靠近、全程没有纠缠重排。原始空间里的跨条件解码(GO→GE、GE→GO)在运动中段到 hold 双向显著,其中67个congruent神经元子集表现出较强泛化,67 个随机 incongruent 神经元在该跨情境检验中未达显著;而一旦进了 CCA 空间,incongruent 也能解了(弱但显著)——共享是分级的,不是全或无。更妙的是 MirN-GE 与 non-MirN 之间也有对齐维度,跨群体解码在运动和 hold 期双向显著:运动学信息不是 MirN 的特权,是整个抓握相关群体的性质。
第四层:共享流形里装的是运动学。双向 MLR 都成立:神经 PC 预测 20 个运动学变量,运动学 PC 反向预测神经成分,交叉验证的 R² 相当可观(observation 高于 execution,作者解读为执行时叠加了非运动学成分);用回归预测出来的数据仍能解出 grip;运动早期 200 ms 的窗口就足以让模型预测到 trial 末端;93%(GE)/79%(GO)的 MirN 和 94% 的 non-MirN 与运动时长有显著的 trial-by-trial 相关。把活动限制到执行-观察共享的 12 维子空间后,运动学预测依旧成立——运动学信息嵌在共享流形内部,不是藏在条件专属维度里。跨 agent 的结果最耐人寻味:用 observation 数据加人手运动学训练的回归模型,直接套到 execution 神经活动上,能预测猴手运动学并保留 grip 结构;反过来用 execution 训练的模型套到 observation 上则不成立——不对称。而运动学本身跨 agent 可解码(中后期运动显著,CCA 对齐后显著区扩大),其时间进程与神经层面的对齐平行。
逐图解读
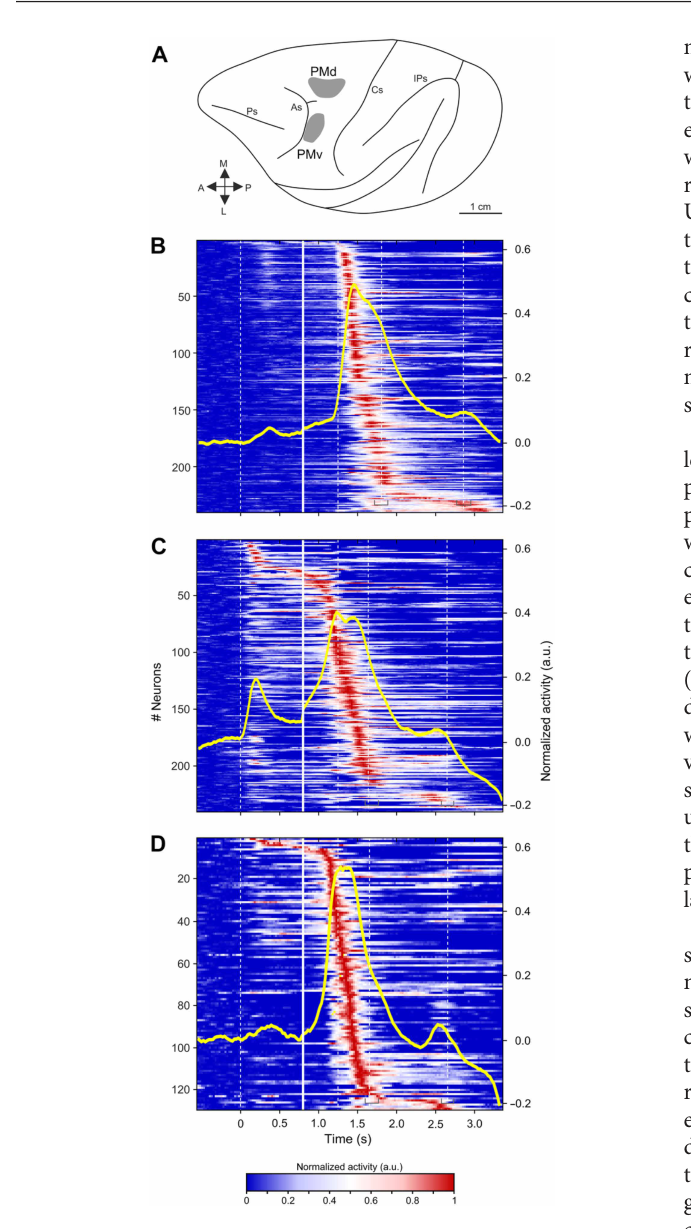
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 记录位置与数据全貌。 (A) 左半球示意图,PMd、PMv 的记录范围(两猴合并),邻近 arcuate、central、principal 沟。(B–D) 三个数据集的归一化放电热图:MirN 在观察、MirN 在执行、non-MirN 在执行,各自按本条件的峰值时间排序,黄色粗线是群体均值,白色竖线是双事件对齐的拼接断点。这张图先立事实:观察和执行各自都有一大片任务相关活动,non-MirN 只在执行时出现——后面所有"共享结构"的分析对象就是这三块活动。
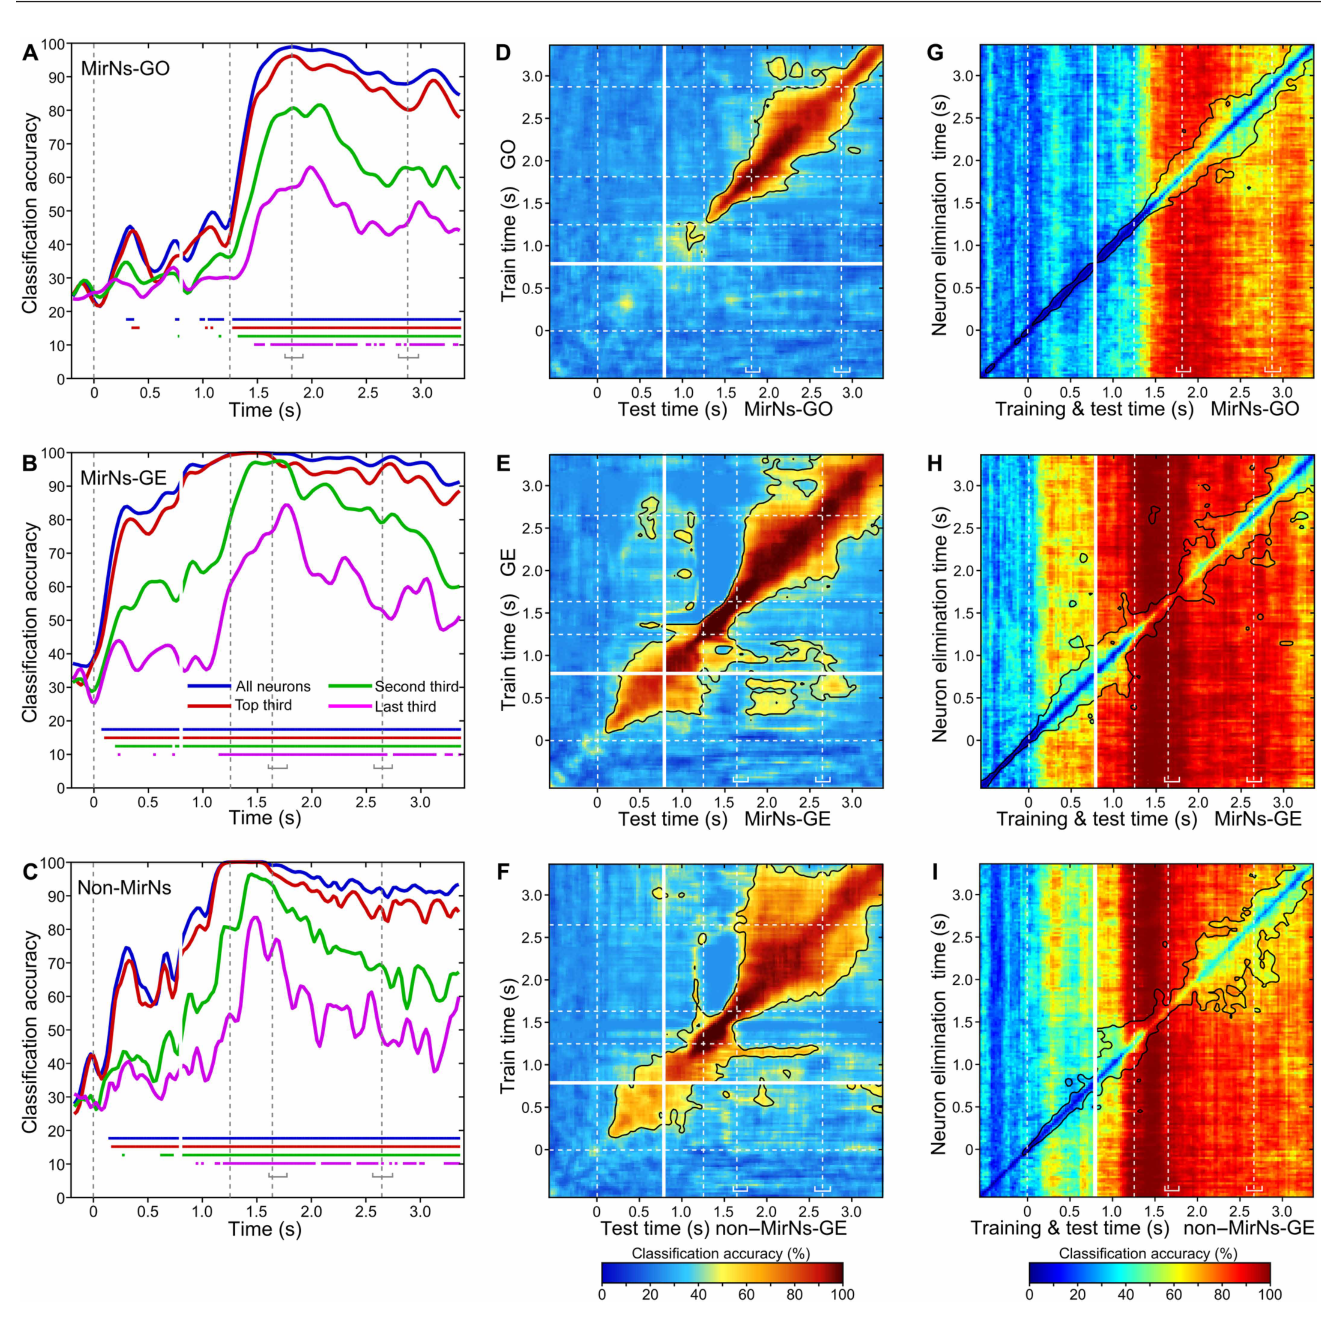
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · 分布式且动态的群体解码。 A–C是 time-resolved 解码:蓝线全体,红线当 bin 最选择性的 80 个神经元,绿线第 81–160 名,紫线剔掉前 160 名后的残部(non-MirN 按 43 个一组),底部横线标超过 shuffle 零分布的时段。看点有二:GO 的解码从运动期才起步而 GE 从物体呈现期就有;紫线在运动和 hold 期仍然显著——信息广泛分布、冗余但不完全。D–Fcross-temporal 矩阵,对角带窄、hold 期的方块变宽。G–I剔除实验:在 y 轴某个时间点抽走当时最选择性的 120 个神经元,x 轴上的解码只在对应时段塌陷——信息在神经元之间轮换,这是"动态群体编码"四个字的具体内容。
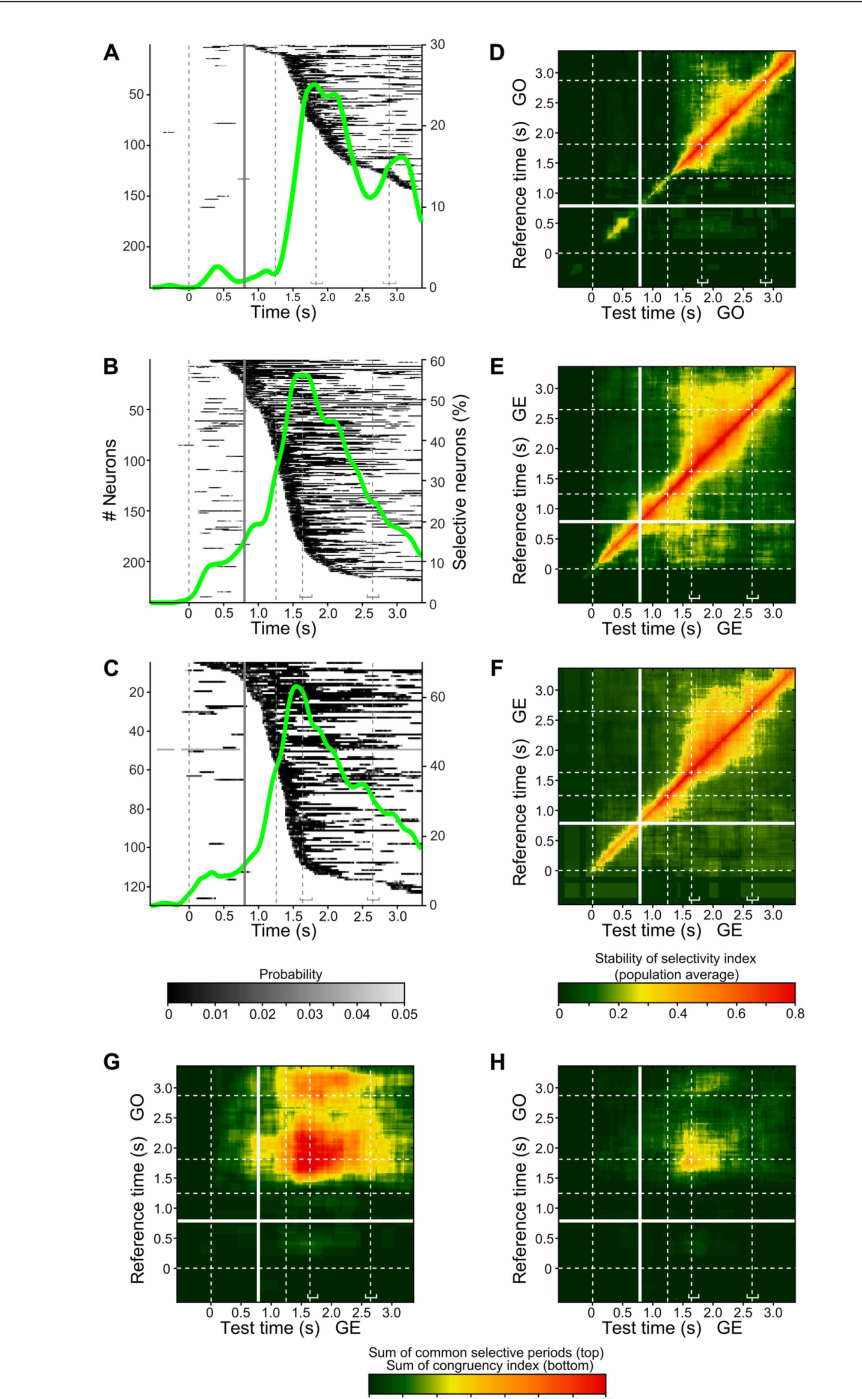
来源:原文 Fig. 3,PDF 第 5 页。
图 3 · 选择性的时间结构与 congruency。 (A–C) 每个神经元的选择性时段光栅(灰度是 ANOVA p 值,绿线是选择性神经元比例的时间过程):选择性的起止五花八门,没有哪个固定子群体贯穿全 trial。(D–F) selectivity stability 热图,只有对角线附近亮,hold 期泛化变好。(G) 在两个条件下都有选择性的神经元数量(时间对×时间对)。(H) 群体 congruency index 的时间对矩阵。(G) 和 (H) 要对照着图 5 的结论读:单神经元层面的匹配确实稀薄(congruent 仅 67/240),但其时间分布集中在运动和 hold 期——恰好是后面群体层面对齐最强的时段。
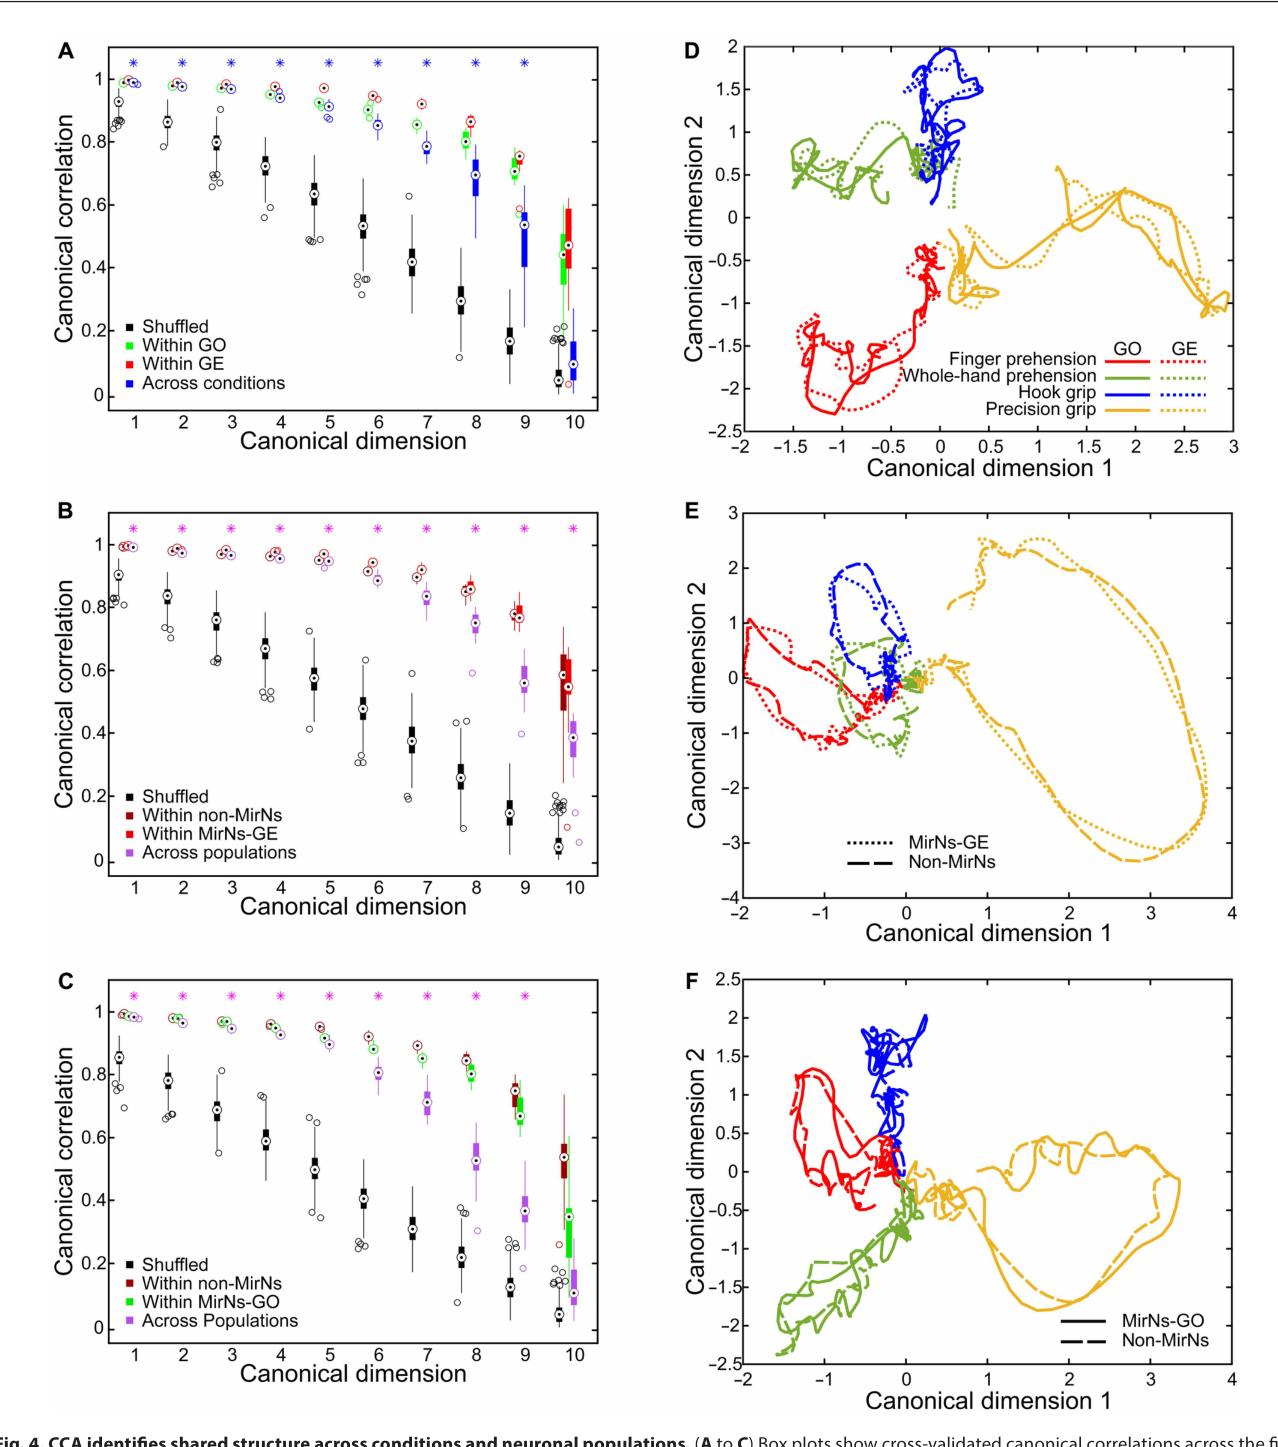
来源:原文 Fig. 4,PDF 第 6 页。
图 4 · CCA 找到跨条件、跨群体的对齐维度。 (A–C) 前 10 个 canonical 维度的箱线图:真实数据对 shuffle 零分布(黑色),三组比较全部显著——MirN 的执行对观察、MirN-GE 对 non-MirN、MirN-GO 对 non-MirN。(D–F) 把各 grip 的 trial 平均轨迹投到前两个 canonical 维度:不同 grip 的轨迹分开,同一 grip 的执行与观察轨迹靠拢,全程没有交叉重排。这张图是"共享群体几何"的主证据:PCA 的跨投影只回答"子空间重叠多少",CCA 直接去找"编码同样东西的配对轴"。
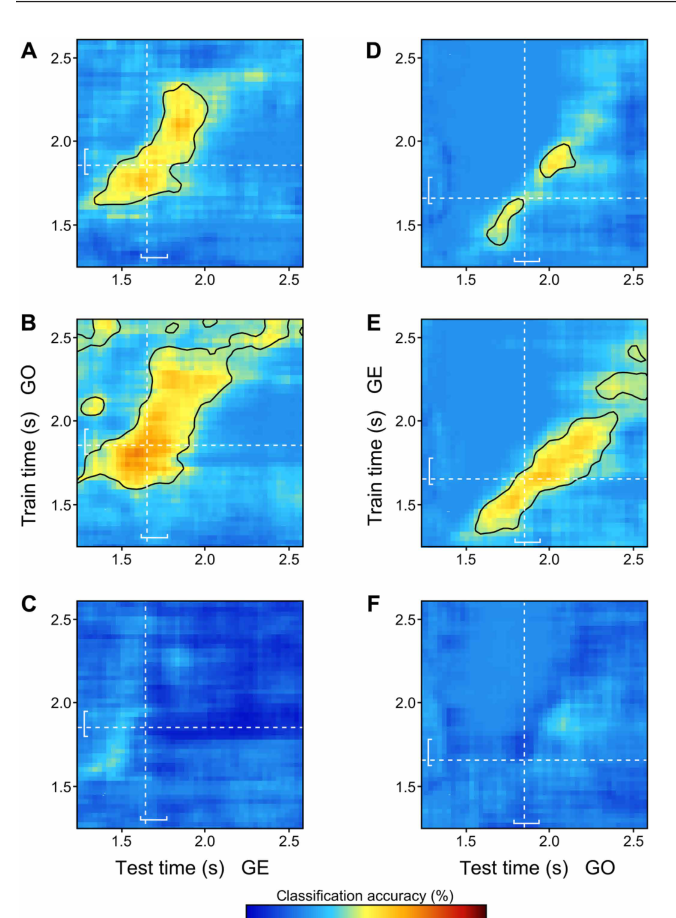
来源:原文 Fig. 5,PDF 第 7 页。
图 5 · 原始空间的跨条件解码及其 congruent 依赖。 A–C为GO→GE、D–F为GE→GO;依次比较全体 240 个、67 个 congruent、67 个随机 incongruent 神经元。全体的显著区在运动中段到 hold;congruent 子集几乎复现全体的表现;incongruent 一片空白。结论干净:在不做任何对齐的原始神经元空间里,响应一致的细胞子集在这项原始空间检验中表现出较强泛化——这顺带验证了 CI 这个自定义指数挑人的有效性。
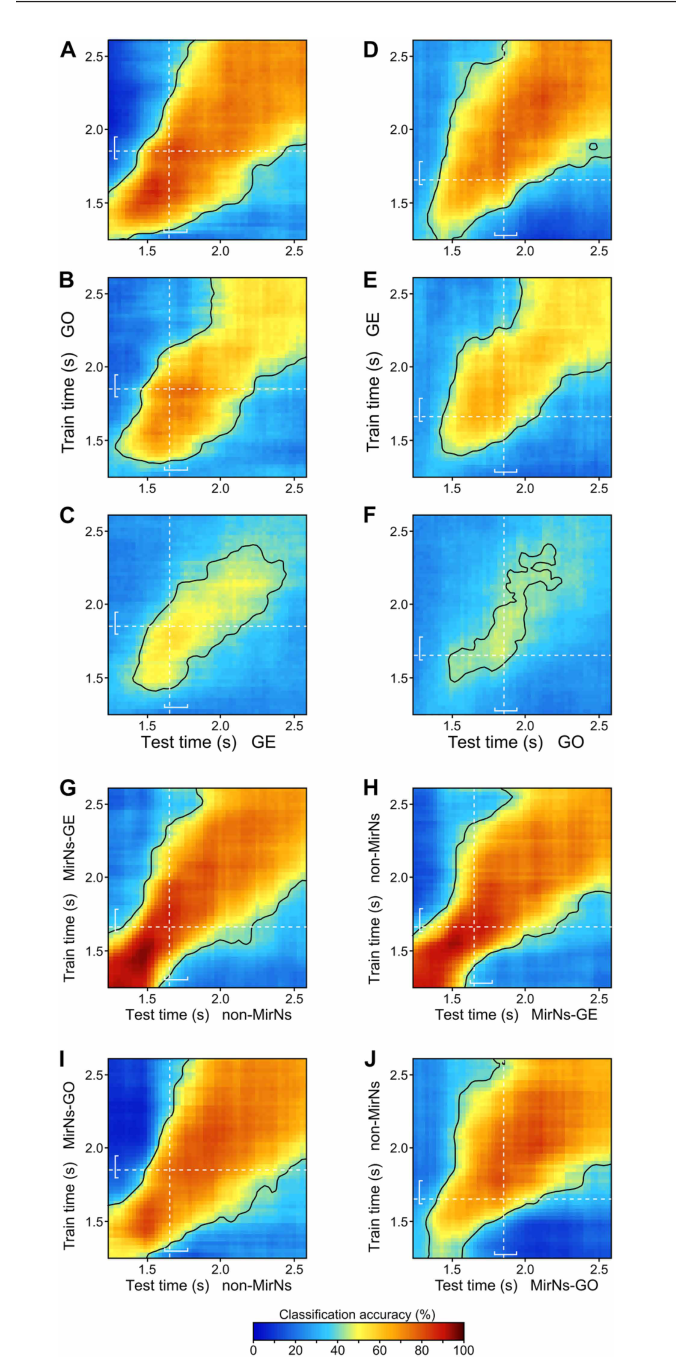
来源:原文 Fig. 6,PDF 第 8 页。
图 6 · CCA 空间里的跨条件与跨群体解码。 (A–F) 与图 5 同样的设计,但解码发生在 10 个 canonical 维度里:incongruent 神经元现在也能跨条件解码了(弱但显著),说明它们并非没有共享信息,只是那份信息在原始权重下读不出来、要进对齐坐标系才显形。(G–J) MirN 与 non-MirN 四个方向的跨群体解码,运动和 hold 期全部显著。这张图把"分级的共享"讲完整了:从 incongruent 的零,到 congruent 的高,再到 CCA 空间里 incongruent 的复活,是一条连续的谱,而不是镜像/非镜像的二元分界。
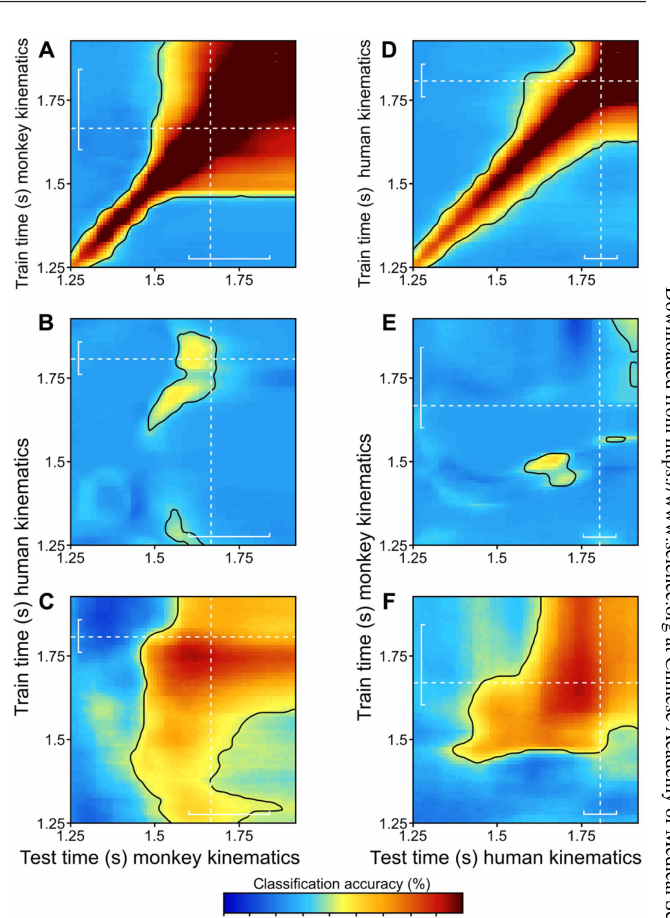
来源:原文 Fig. 7,PDF 第 8 页。
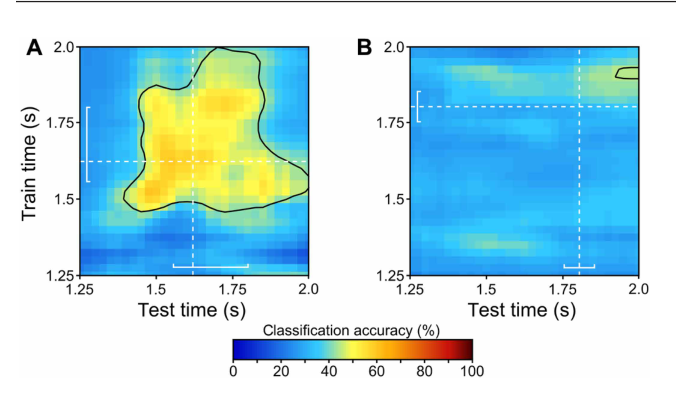
图 7 · 运动学的跨 agent 解码。 (A, D) 猴和人各自运动学的 cross-temporal 解码——运动学本身就有时间结构,对角带之外泛化有限,越接近动作完成越稳定。(B, E) 原始运动学空间的跨 agent 解码(人→猴、猴→人),中后期运动开始显著。(C, F) CCA 对齐后的跨 agent 解码,显著区明显扩大。这张图是后面神经层面结论的前提:两种 agent 做同样动作时,手的时间演化结构本身是部分对齐的——不然神经层面的跨 agent 泛化无从谈起。
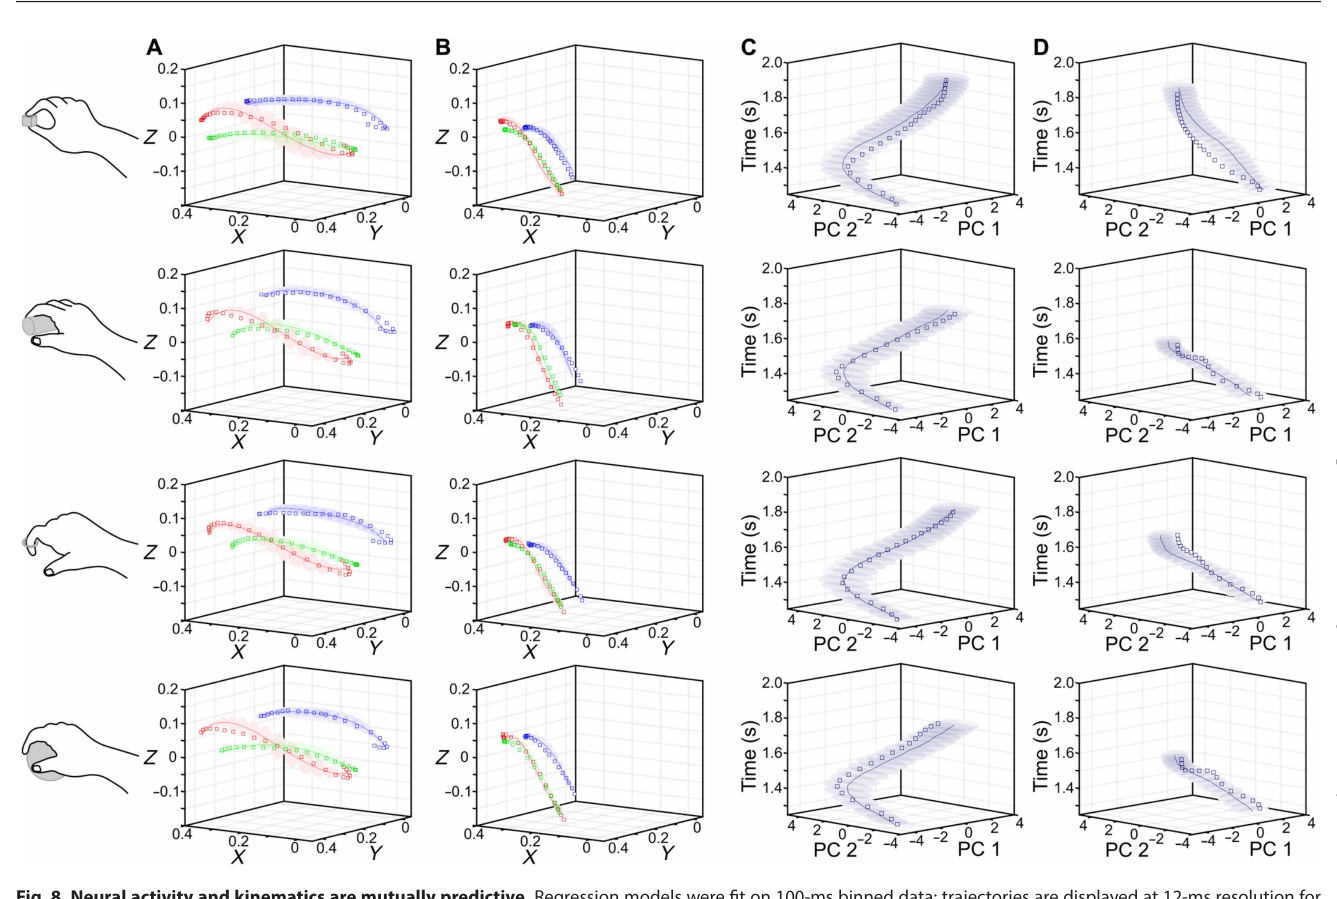
来源:原文 Fig. 8,PDF 第 9 页。
图 8 · 神经与运动学互为预测。 (A, B) 从神经活动回归预测的人手、猴手 3D 轨迹:食指(红)、拇指(绿)、尺骨茎突(蓝)的预测位置贴着实测均值±SD 走,三轴为前后、左右、上下。(C, D) 反方向:从运动学 PC 预测的前两个神经 PC 轨迹同样贴合。这张图是全文"kinematic structure"主张的可视化版本——不是解码一个离散标签,而是连续轨迹级的双向映射。
来源:原文 Fig. 9,PDF 第 10 页。
图 9 · 跨条件回归泛化的不对称。 (A) 用 observation 活动加人手运动学训练的模型,套到 execution 神经活动上预测猴手运动学,再用真实运动学训练的分类器去测预测值——能解出 grip,结构保留。(B) 反方向:execution 训练的模型套到 observation 活动上预测人手运动学——不成立。作者把这份不对称解读为部分重叠几何的自然推论:执行活动里含有观察所没有的额外成分,可能与执行和观察中成分及噪声的差异有关,但集合大小并不能直接推出这一泛化方向。
讨论与解读边界
研究用跨时间、跨情境解码及CCA检验共享表征,而不是只看同一神经元在两种情境是否响应。运动学回归支持动态动作结构是共享信息的重要组成部分,不能据此比较所有目标、手形和运动学编码假说。本文没有单独操纵动作目的或行为理解。
神经元按顺序记录并组成伪群体,动捕又在独立session采集;因此不能将结果当作同步群体在每个真实试次中预测完整手轨迹。CCA是利用对应条件学习的对齐,成功不等于两情境原始代码完全相同。原始空间中不一致细胞子集未显著泛化,也不等于它们完全不含共享信息。
思考问题
- 同步记录神经群体和逐试次手部运动学后,共享结构能预测动作内部的自然变异吗?
- 保持运动学近似相同而改变动作目的时,观察与执行的共享维度是否仍然保持?