D10 · Continuous sensorimotor transformation enhances robustness of neural dynamics to perturbation in macaque motor cortex
Zheng, C., Wang, Q., & Cui, H. (2025). Nature Communications, 16, 3213. doi:10.1038/s41467-025-58421-1
ICMS对静止与移动目标任务的影响不同:静止目标条件更容易出现反应时延长,移动目标条件的群体状态恢复较快。持续反馈输入模型为这种差异提供了可行解释。
核对版本:Zotero VR 集合中的本地 PDF(2026-09-18);Zotero 条目 · 打开原文。图下页码均为该 PDF 的文件页序,从 1 开始,可能不同于期刊印刷页码。
背景
拦截移动目标要求持续更新准备状态,可能改变神经群体对扰动的响应。本文比较静止与移动目标条件下的准备活动和ICMS后恢复。
研究思路
研究在延迟期不同时间施加亚阈值刺激,测量反应时及神经轨迹偏移,再用反馈控制网络检验可能解释。运动学相近减少部分混淆,但不能完全匹配两任务;模型支持的反馈机制还需通路层面的实验。
方法
两只成年雄性恒河猴做主分析:G(8.4 kg,13 岁,左手操作,记录右半球)和 L(10.0 kg,6 岁,右手操作,记录左半球),第三只 D 只进补充材料。任务:触摸屏幕中心 600 ms,目标出现(TO),要么静止要么以 −120°/s 为主(部分 session −240°/s 或 +180°/s)绕中心旋转,delay 200 ms(short)或 900 ms(long)后中心点熄灭为 GO,要求 800 ms 内触到目标(误差容差 2.8 cm)并按住 600 ms 得奖。designed static 和 designed moving trial 各占 20–30%,另有 40–60% 随机初始位置的 moving trial 防止方向预测。ICMS 用单根钨电极给 100 ms、300 Hz 的双相脉冲串,幅度定在阈值下 5–10 μA(从 30 μA 逐级加到出现肌肉抽动再往下微调;G 平均 67.5±22.1 μA,L 34.7±11.4 μA),EMG 确认基本不引起肌肉活动;时机为 PreGO(GO 前 100–0 ms)或 PreMO(GO 后 0–150 ms)。同时用 64 通道 S-probe(触点间距 75 μm)在 4–5 mm 外记录 M1 或 PMd,G 记了 14 个 session、L 15 个(每 site 每 session 刺激 trial 压在 200 以内保护组织)。分析上:ΔRT 用条件匹配的 NS trial 中位数逐 trial 做差;PCA 用 static NS trial 建 3D 子空间(解释 >60% 方差),配 bootstrap 和 Procrustes 对齐;PC1 的 cross-correlation 定 NS/ST 轨迹的时移;无偏神经状态距离借 Willett 2020 的交叉验证框架;target location 与 reach direction 的子空间用 TDR(Mante 2013 版、Sun 2022 简化版)分离;眼动用 EyeLink 以 1000 Hz 记录。
主要结果
行为上先看到干净的双向分离。ICMS 对 reach 精度和速度几乎无影响,但 RT 的变化方向取决于条件:static 条件下,PreGO ICMS 使 G 的 RT 延长 13.3 ms(95% CI [7.5, 18.2]),PreMO ICMS 延长 G 10.3 ms、L 15.0 ms——复现了 Churchland & Shenoy 的经典效应;而 moving 条件下,PreGO ICMS 反而把 RT 缩短 8.2 ms(G 和 L 都是)。效应还依赖刺激位置:static 条件的 RT 延长随刺激 site 前移(靠 PMd 侧)而增强,其中一猴达到显著(R²=0.28、p=0.04),与 PMd 和运动准备的经典关联吻合;moving 条件的缩短效应则与前后位置没有显著关系——提示两种效应背后机制不同。ΔRT 与刺激幅度无关。
神经层面给出机制的第一层:ICMS 后,static 条件的 ST 神经轨迹滞后于 NS,moving 条件的 ST 轨迹反而领先。PC1 互相关定出的时移在 static 为正、moving 为负(G:n=54,p=0.0012;L:n=59,p=0.029),与 RT 变化方向一致。定量上,ICMS 后 moving 条件的神经状态距离更小(偏离更少),状态演化速度也更快——不是"被打偏了慢慢爬回来",而是"没怎么偏、还加速了"。
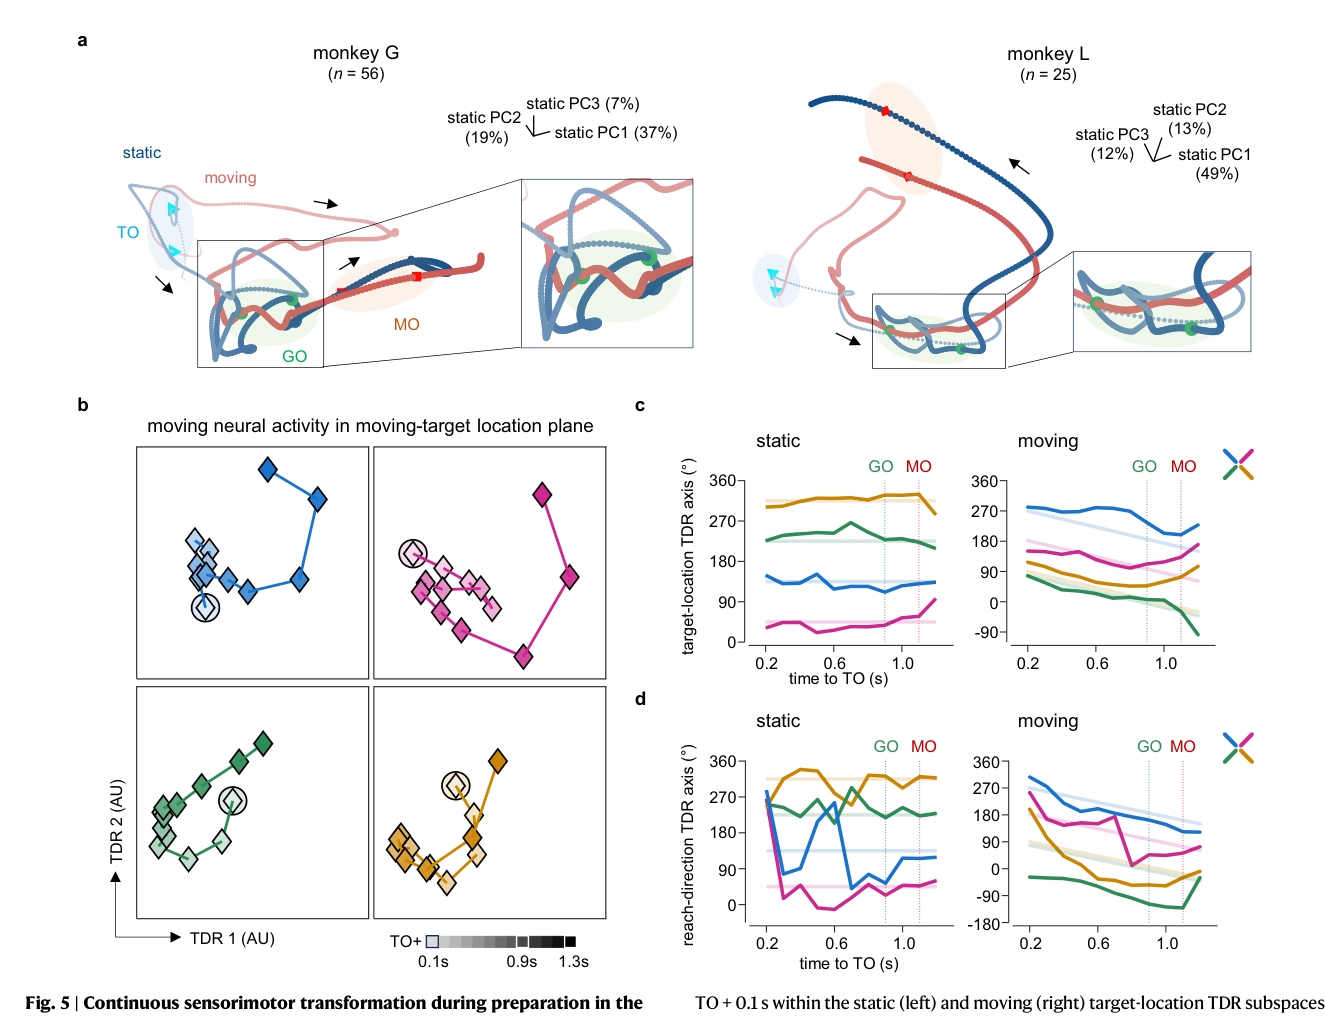
那两种条件的准备动力学到底差在哪?单神经元层面,static 的方向调谐集中在 TO 附近和运动期,moving 的方向调谐在整个 delay 后期持续增长、preferred direction 随时间变化;群体层面,static 轨迹在 GO 附近明显扭转,moving 轨迹相对笔直。TDR 把这件事看得最清楚:以 TO 后 100 ms 的活动建 target-location 子空间,moving 条件的神经状态绕该时刻的状态顺时针旋转——跟着目标转,static 条件则停在原地;以 MO 前 100 ms 建 reach-direction 子空间,moving 的神经状态逐渐向 MO 附近的状态演化,static 的运动意图表征在 TO 后早早成形并维持到 GO 之后。用作者的话说,moving 条件整个 delay 期都在做 continuous sensorimotor transformation,static 条件的"准备"在 TO 后不久就完工了。
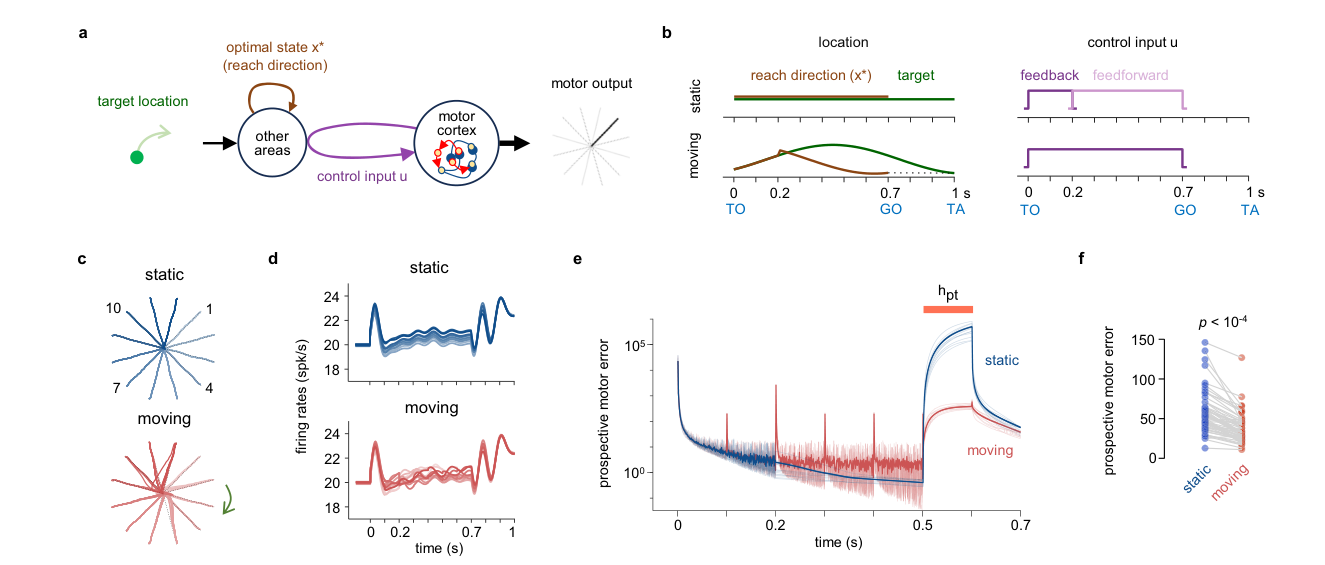
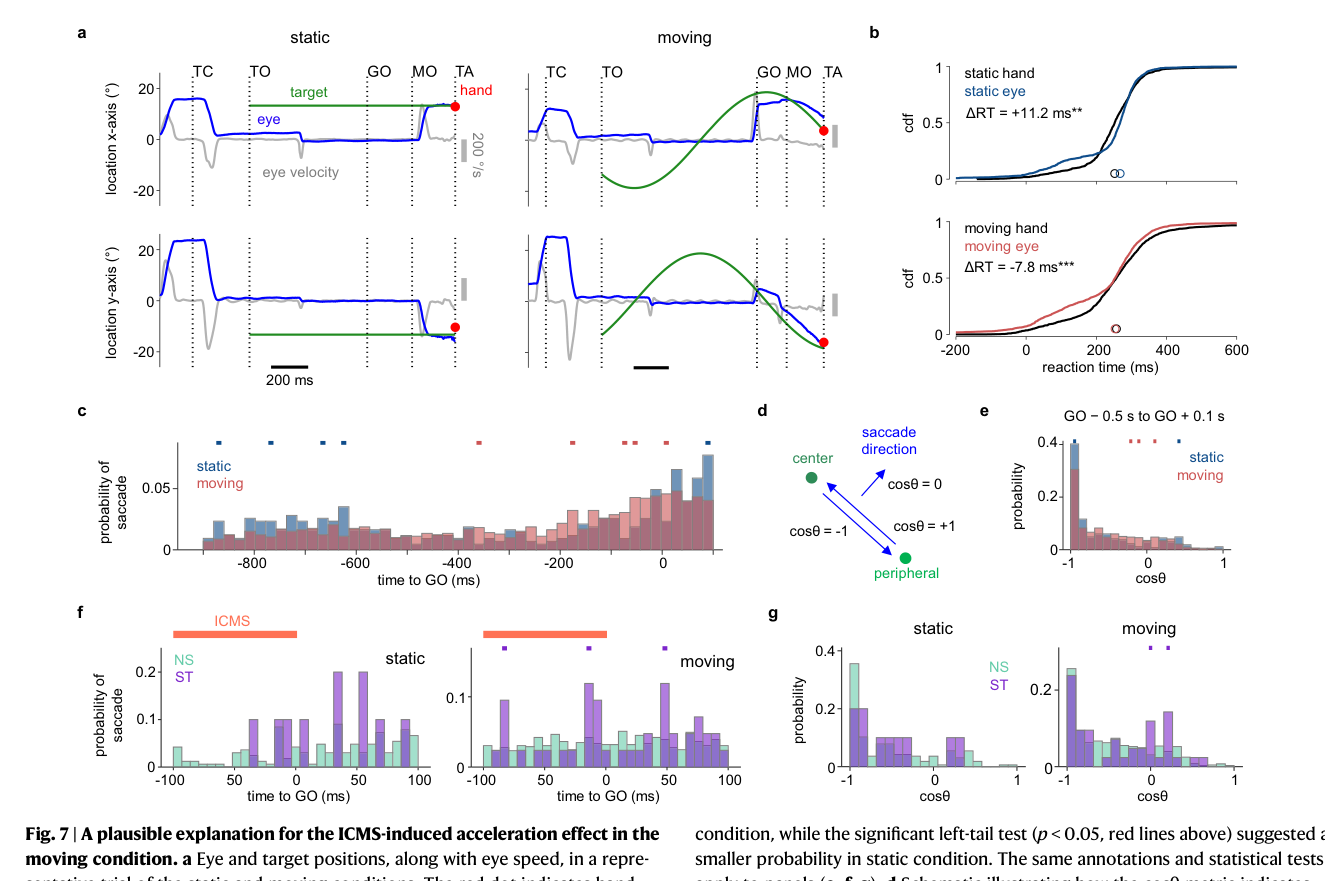
模型检验了一种可能机制。在 Kao 的 100 兴奋 + 100 抑制平衡网络里做两种设定:static 的最优状态 x 固定、控制输入在 TO 后 200 ms 起从 feedback 切换成 feedforward;moving 的 x 每 100 ms 顺次更新、feedback 全程在线。对 100 个单元(网络的一半)在 MO 前 200 ms 打 100 ms 扰动,static 条件的 prospective motor error(若此刻出发会犯的错)显著高于 moving(p<10^-4)。也就是说,持续反馈在该模型中能够产生抗扰动差异,实际反馈来源仍待验证。眼动分析则解释了意外之喜:moving 条件下猴子在 GO 后先扫视再平滑追踪,眼动先于手(RTeye−RThand = −7.8 ms),delay 后期的扫视概率也更高——追踪目标和识别 GO 信号存在竞争;而 PreGO ICMS 只在 moving 条件显著提高 GO 附近的扫视概率,且扫视方向从离心偏向回中。作者据此提出,ICMS 在这里充当了帮助 GO 识别的隐式线索,让 RT 不升反降。
逐图解读
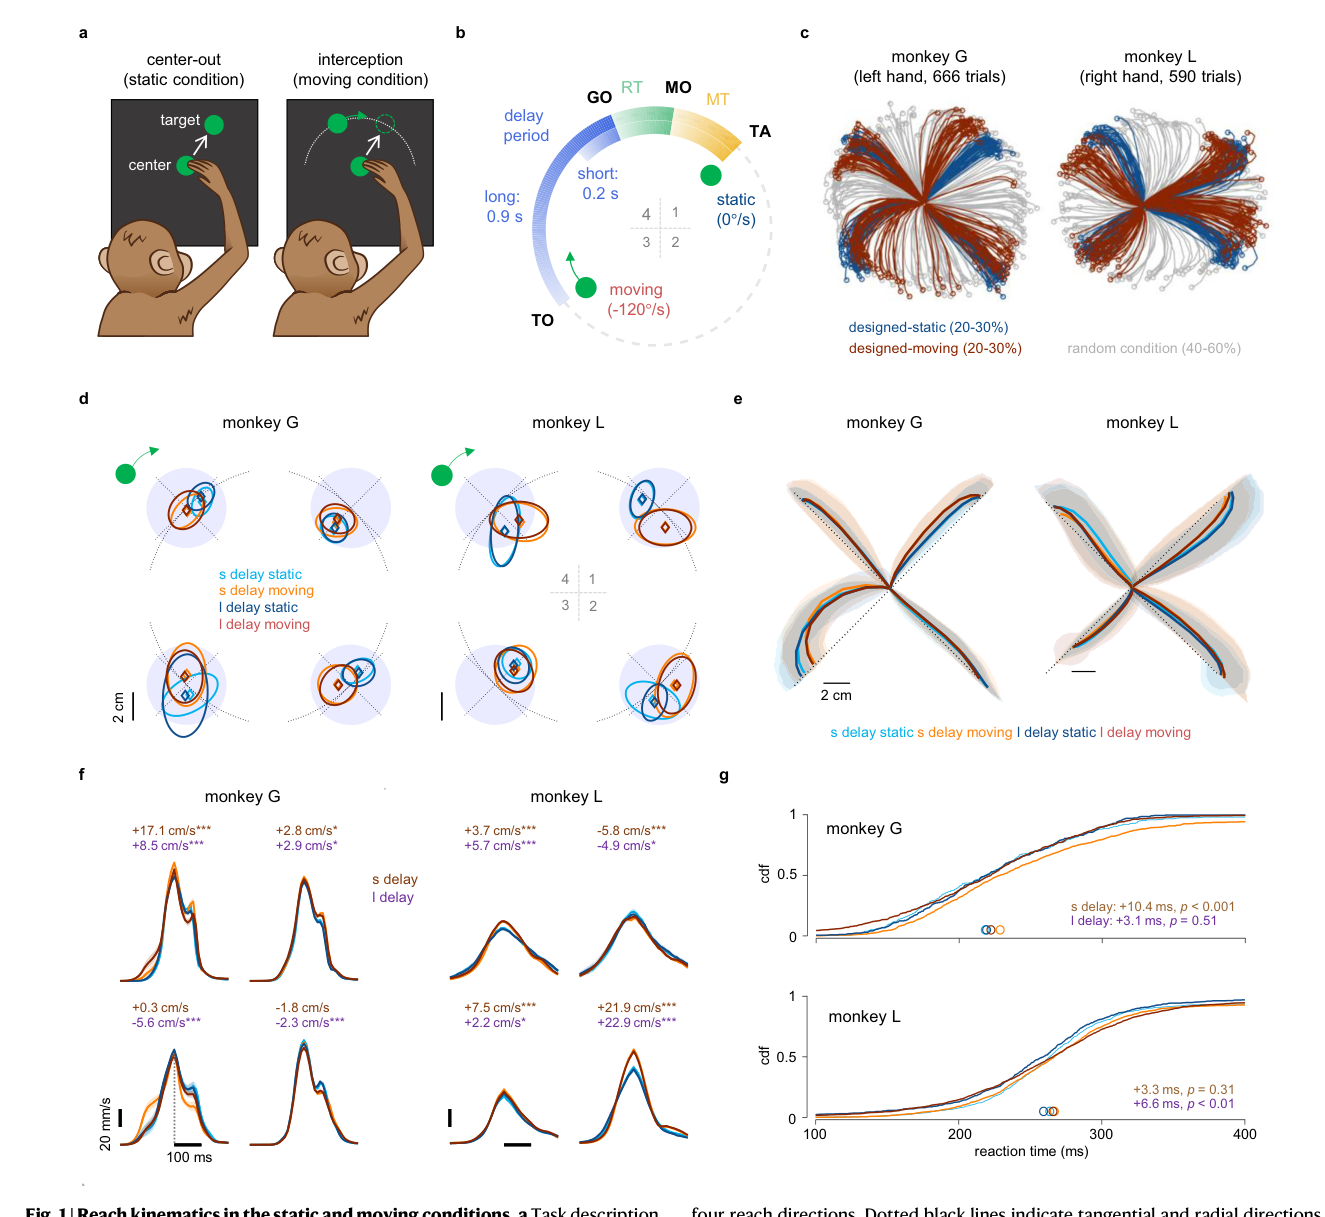
来源:原文 Fig. 1,PDF 第 3 页。
图 1 · 两种条件的运动学拉平。 (a, b) 任务结构:中心外展对拦截旋转目标,TO 后 delay 200/900 ms,GO 后 800 ms 内触到。(c) 一个 session 的轨迹:designed static/moving 的初始位置对应四个方向,random 条件散布各处。(d) 各方向终点相对目标的分布,两种条件都稳定地滞后或超前于目标、方差很小,紫色是 2.8 cm 容差。(e) 按方向对齐后的轨迹,两种条件弯曲模式相似。(f) 手速度:moving 的 peak speed 总体更高但随方向变化。(g) RT 的累积分布,moving 更长。这张图的任务是比较两类任务的运动学;轨迹有相似之处,但速度与反应时仍有差异。
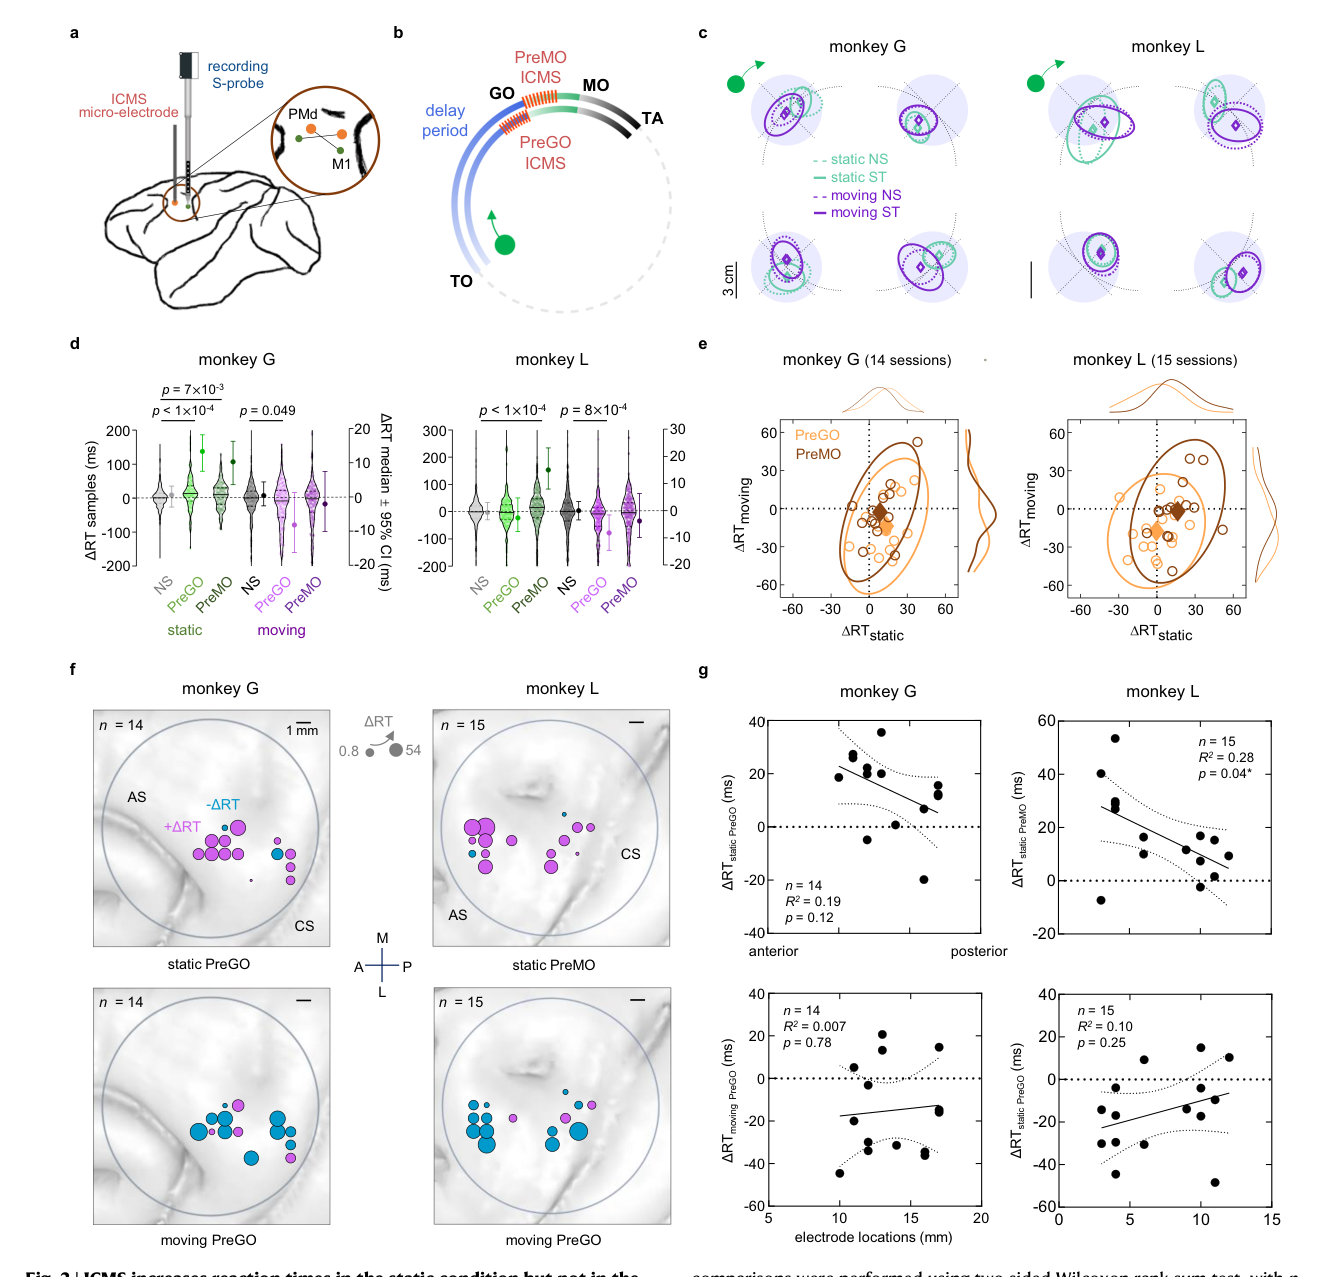
来源:原文 Fig. 2,PDF 第 4 页。
图 2 · 核心行为结果:ICMS 的双向效应。 (a) 刺激电极与 S-probe 的排布(M1 或 PMd,相距 4–5 mm)。(b) PreGO/PreMO 的时机。(c) ICMS 后终点分布不变——在所测指标下,刺激对启动时间的影响比对终点的影响更明显。(d) ΔRT 的 violin 图加逐 trial 散点:static 各组为正、moving PreGO 为负,这是全文的行为锚点。(e) 单 session 的 ΔRT 分布,绝大多数 session 方向一致。(f, g) 刺激位置从 PMd(0 mm)到 M1(20 mm)与 ΔRT 的关系:static 条件的延长效应随位置前移而增强。读这张图留意 monkey L 只在 PreMO 显示显著延长——该猴的 RT 本来就长,PreMO 才落在关键准备窗口内,这正是 Churchland & Shenoy 框架预期的样子。
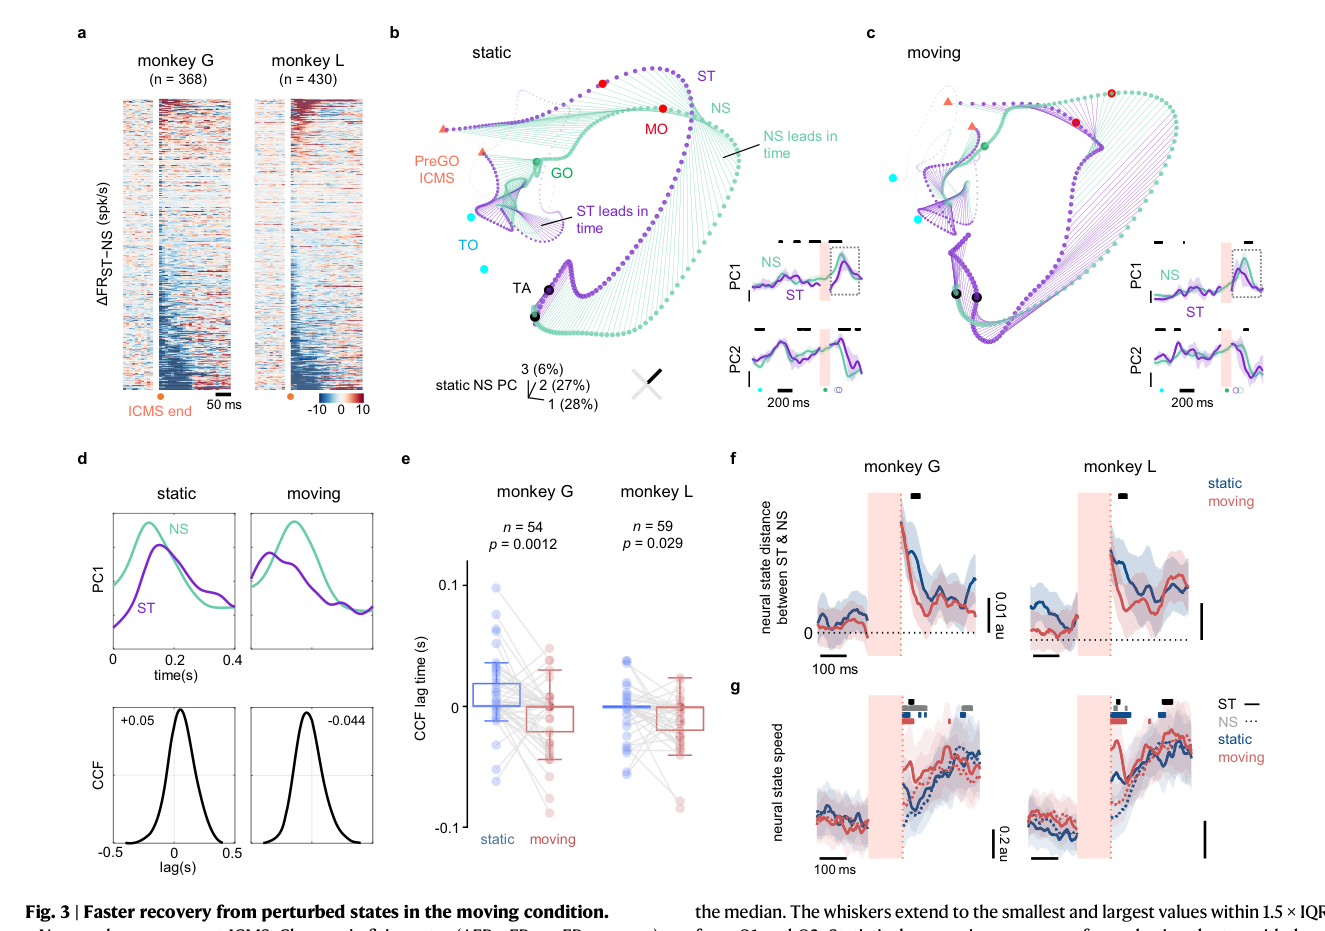
来源:原文 Fig. 3,PDF 第 5 页。
图 3 · 神经状态的偏离与恢复。 (a) ICMS 结束后单单元放电变化的热图(按结束后 100 ms 窗口内的 ΔFR 排序;G 368 个、L 430 个单元),抑制型响应居多,与刺激幅度有关。(b, c) 用同一个 static-NS 建的 PCA 子空间看 static/moving 各一条代表性轨迹:ICMS 后 ST 与 NS 分岔,static 的 ST 落在后面、moving 的 ST 跑在前面。(d, e) PC1 互相关定时移:示例 CCF 曲线和汇总箱线图。(f) 无偏神经状态距离:moving 条件 ICMS 后偏离显著更小。(g) 神经状态速度:moving 条件 ICMS 后演化更快。滞后、偏离、速度三件套合起来讲同一个故事:moving 条件不仅偏得少,还回得快。
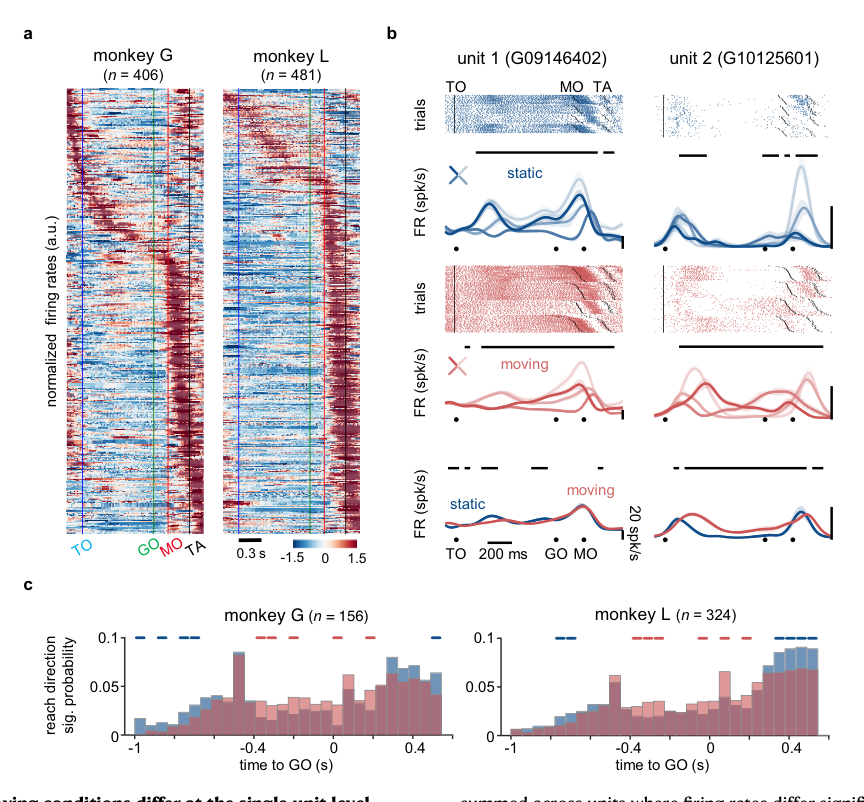
来源:原文 Fig. 4,PDF 第 6 页。
图 4 · 单神经元层面的两种准备。 (a) 全体单元按峰值时间排序的放电热图(G 406、L 481 个),delay 期活跃与运动期活跃的单元都不少。(b) 两个示例单元:unit 1 在 static 条件整个 delay 保持同一方向调谐,在 moving 条件调谐随时间变;unit 2 在 moving 条件放电整体更高。(c) 方向信息显著的时间窗统计(G 156、L 324 个单元):static 在 TO 附近和运动期领先,moving 在 delay 后期持续走高。这张图是"static 一次成形、moving 持续演化"在单细胞尺度上的预告,也和真实神经群体动力学的思路接上了头——单个神经元的复杂响应,要到群体子空间里才能读出条理。
来源:原文 Fig. 5,PDF 第 7 页。
图 5 · TDR 子空间里的连续转换。 (a) 用 static 条件建的 PC 子空间里看两种条件的轨迹(各方向示例,附 GO 附近放大):static 轨迹在 GO 附近扭了个弯,moving 轨迹顺利得多。(b–d) 是全文的机制图:以 TO+0.1 s 的活动建 target-location TDR 平面,moving 条件的神经状态(四色对应四个方向)绕初始状态顺时针旋转、与目标运动同步,static 条件的状态停在原地;reach-direction 平面里 moving 状态逐渐收敛到 MO 附近的状态,static 的意图表征早早稳定。数据来自 G 的 7 个 session、181 个神经元。神经表征跟着目标转——这就是 与持续感觉运动转换相容的群体活动表征。
来源:原文 Fig. 6,PDF 第 8 页。
图 6 · 输入驱动网络模型。 (a) 框图:上游把目标信息转成最优状态 x,外部控制输入 u 把皮层网络推向最优子空间。(b) 两种条件的关键设定差异:static 的 x 固定、控制策略在 TO 后 200 ms 从 feedback 切到 feedforward;moving 的 x* 持续前移、feedback 全程在线。(c, d) 模型生成的伸手轨迹和单元 PETH:static 单元方向调谐稳定,moving 复杂多变,与图 4 的真实数据对得上。(e, f) MO 前 200 ms 对 100 个单元打 100 ms 扰动后,static 条件的 prospective motor error 显著更高。模型单独比较持续外部反馈输入的贡献,在模型设定内重现了抗扰动差异。这构成一种充分性示例,不能唯一确定动物中的反馈通路。
来源:原文 Fig. 7,PDF 第 9 页。
图 7 · RT 缩短效应的眼动解释。 (a) 示例 trial 的目标、眼位和眼速。(b) 眼、手 RT 的累积分布:moving 条件眼先于手(−7.8 ms),static 条件手先于眼(+11.2 ms)。(c) delay 后期扫视概率:moving 显著更高。(d, e) cosθ 的定义与分布:大多数扫视落在 −1 附近,即从屏幕中心射向外周目标。(f, g) PreGO ICMS 只在 moving 条件提高 GO 附近的扫视概率,且使扫视方向偏向回中。作者的解读是:拦截任务里追踪目标和识别 GO 信号彼此竞争,ICMS 恰好在 GO 前给了一个内部线索,帮猴子抓住 GO 时机。这部分证据链明显弱于主结果,作者自己也把它定位成"一个合理的解释"。
讨论与解读边界
研究结合实际微刺激、神经记录和行为比较,说明准备过程对扰动的敏感性随任务而变。动态目标条件需要持续更新视觉和动作信息;模型表明持续反馈能够减少扰动后误差,给出了可检验的计算解释。
任务间仍有反应时、速度及眼动差异,不能称为运动学完全匹配。实际ICMS干预证明了刺激效应的条件依赖性,并没有直接隔离是哪一条反馈通路产生恢复。移动目标条件下反应时缩短可能涉及刺激提示与眼动,这部分证据弱于抗延迟的主要结果;不宜推广成运动皮层普遍“越动态越抗扰”。
思考问题
- 若匹配注视、GO检测难度和反应时分布,两条件的ICMS差异还剩多少?
- 暂时阻断候选上游反馈通路,是否会特异性消除移动目标条件的快速恢复?